Pokazujemy krok po kroku protokół badania funkcji genów w makrofagach rezydujących w tkance otrzewnej in vivo, przy użyciu wektorów lentiwirusowych.
Artykuł metodologiczny
Preparat wektora lentiwirusowego do skutecznej modulacji genów i mikroRNA makrofagów rezydujących w tkankach jamy otrzewnej in vivo u myszy
W tym artykule
Podsumowanie
Streszczenie
Makrofagi rezydujące w tkance otrzewnej pełnią szerokie funkcje w utrzymaniu homeostazy i biorą udział w patologiach w obrębie lokalnych i sąsiednich tkanek. Ich funkcje są podyktowane sygnałami mikrośrodowiskowymi; Dlatego konieczne jest zbadanie ich zachowania w niszy fizjologicznej in vivo. Obecnie specyficzne metodologie celowania w makrofagi otrzewnowej wykorzystują modele transgeniczne całych myszy. W tym miejscu opisano protokół skutecznej modulacji in vivo ekspresji mRNA i małych gatunków RNA (np. mikroRNA) w makrofagach otrzewnowych przy użyciu cząstek lentiwirusa. Preparaty lentiwirusowe wytwarzano w HEK293T komórkach i oczyszczano na pojedynczej warstwie sacharozy. Walidacja in vivo skuteczności lentiwirusa po wstrzyknięciu dootrzewnowym wykazała dominujące zakażenie makrofagów ograniczone do tkanki miejscowej. Celowanie w makrofagi otrzewnowe było skuteczne podczas homeostazy i zapalenia otrzewnej wywołanego tioglikolanem. Omówiono ograniczenia protokołu, w tym stan zapalny o niskim poziomie wywołany dootrzewnowym podawaniem lentiwirusa oraz ograniczenia czasowe dla potencjalnych eksperymentów. Ogólnie rzecz biorąc, badanie to przedstawia szybki i przystępny protokół szybkiej oceny funkcji genów w makrofagach otrzewnowych in vivo.
Wprowadzenie
Makrofagi rezydujące w tkankach (Mφ) to niejednorodna populacja fagocytarnych komórek odpornościowych, które wyczuwają i reagują na atakujące patogeny1,2. Ponadto odgrywają istotną rolę w rozwoju, przebudowie i utrzymaniu homeostazy tkanek1,3. Wiele tkanek Mφ pochodzi od komórek progenitorowych woreczka żółtkowego podczas embriogenezy i utrzymuje się w tkance przez całe życie4,5. Fenotyp i funkcje tych komórek są podyktowane wspólnymi i hierarchicznymi interakcjami określonych czynników transkrypcyjnych oraz lokalnego mikrośrodowiska6,7,8,9. Coraz lepsze zrozumienie tej zależności zwiększa zapotrzebowanie na skuteczne metody manipulacji genami Mφ in vivo w ich fizjologicznie istotnej niszy.
wektory lentiwirusowe są często wykorzystywanym narzędziem do manipulowania kwasami nukleinowymi w określonych populacjach komórek in vivo10,11,12, szczególnie ze względu na ich zdolność do infekowania zarówno dzielących się, jak i niedzielących się komórek oraz do stabilnej integracji z genomem gospodarza13,14. W ciągu ostatnich dwóch dekad technologia dostarczania lentiwirusa została zoptymalizowana, a alternatywne koperty i syntetyczne promotory zostały zbadane w celu zwiększenia celowania specyficznego dla linii8,15. Ze względu na szeroki tropizm komórkowy, wirus pęcherzykowego zapalenia jamy ustnej otacza glikoproteinę (VSV-G)16,17 stał się "złotym standardem" otoczki stosowanej w technologii lentiwirusów.
W tym protokole18, pseudotypowane cząstki lentiwirusowe VSV-G są wykorzystywane do demonstracji ukierunkowanego i skutecznego dostarczania krótkiego RNA spinki do włosów (shRNA) i mikroRNA (miR) do mysiego Mφ (pMφ) in vivo, w stanie ustalonym19. Ekspresja transgenu była napędzana przez promotor wirusa tworzącego ognisko śledziony (SFFV). Produktywne zakażenie komórek zdefiniowano na podstawie ekspresji wzmocnionego białka zielonej fluorescencji (GFP) pochodzącego z lentiwirusa. Zastosowanie tego podejścia umożliwiło łatwy odczyt na potrzeby eksperymentów in vivo lentiwirusa w celu określenia optymalnej dawki i ram czasowych eksperymentu. Wreszcie, prowokacja lentiwirusowa in vivo myszy podczas zapalenia wywołanego tioglikolanem ujawniła naturalną skłonność do selektywnego zakażenia pMφ.
Protokół
Wszystkie prace nad zwierzętami były prowadzone zgodnie z wytycznymi Instytucji i Ministerstwa Spraw Wewnętrznych Wielkiej Brytanii.
UWAGA: Wszystkie badania in vivo z lentiwirusem powinny być przeprowadzane zgodnie z lokalnymi i krajowymi wytycznymi dotyczącymi etycznego wykorzystywania zwierząt w badaniach, a także przestrzegać wszystkich przepisów związanych z używaniem materiałów zakaźnych kategorii II. Dobrostan zwierząt powinien być również monitorowany zgodnie z lokalnymi przepisami. Na tym etapie protokołu należy zachować szczególną ostrożność podczas pracy z cząstkami lentiwirusowymi i ostrymi narzędziami.
1. Przygotowanie komórek HEK293T do transfekcji
UWAGA: Wykonaj te kroki pod sterylnym kolektorem bezpieczeństwa biologicznego do hodowli tkankowej.
- Przygotuj kompletną zmodyfikowaną pożywkę Eagle Medium (cDMEM) firmy Dulbecco dla komórek HEK293T, łącząc 450 ml DMEM z 10% (v/v) płodową surowicą cielęcą (50 ml) i końcowym stężeniem 100 U/ml penicyliny/streptomycyny.
- Rozmrażaj komórki HEK293T co najmniej 1 tydzień przed planowaną transfekcją. Utrzymuj zdrowe warunki wzrostu i pasażu co 2-3 dni za pomocą trypsyny + EDTA do odłączenia komórek od kolby.
- Na dzień przed transfekcją ostrożnie odessać pożywkę wzrostową z komórek i delikatnie umyć komórki sterylnym DPBS. Dodać 1-5 ml trypsyny do kolby i inkubować w temperaturze 37 °C w inkubatorze o stężeniu 5% CO2 przez 2-5 minut.
- Dodać 5-10 ml cDMEM i wirować komórki w temperaturze 350 x g przez 5 minut. Usuń płyn i ponownie zawieś osad komórek w 10 ml cDMEM. Policz komórki i zasiej 10-11 x 106 żywotnych komórek HEK293T na kolbę T175 w 20 ml cDMEM.
- Inkubować w temperaturze 37 °C w inkubatorze o stężeniu 5%CO2 przez noc, aby umożliwić komórkom HEK293T osiągnięcie zbiegu 70%-80%.
- Następnego dnia potwierdź zbieg komórek pod mikroskopem świetlnym.
- Usunąć pożywkę z kolby za pomocą paski serologicznej o pojemności 25 ml, nie naruszając monowarstwy komórek.
- Delikatnie dodaj 10 ml DPBS i kołysz płytką, aby umyć komórki, uważając, aby nie naruszyć monowarstwy komórek.
- Usunąć DPBS za pomocą 25 ml paski serologicznej.
- Dodać 15 ml nowego cDMEM na ściankę do kolby T175, aby nie naruszyć monowarstwy komórek, i umieścić płytkę z powrotem w inkubatorze w temperaturze 37 °C.
2. Transfekcja komórek HEK293T za pomocą odczynnika do transfekcji lipidów nieliposomalnych
- W probówce wirówkowej o pojemności 15 ml przygotuj składniki lentiwirusowe: 2 μg plazmidu lentiwirusowego, 1,5 μg pΔ8,91 (pCMV-Δ8,91) i 1 μg pMD2.G (pCMV-MD2.G) z buforem EC (zestaw odczynników do transfekcji) do końcowej objętości 600 μl.
- Dodać 36 μl roztworu wzmacniacza. Wymieszać składniki za pomocą pipety o pojemności 1 ml, kilkakrotnie zasysając część płynu i umieszczając ją z powrotem kropla po kropli bezpośrednio na pozostały roztwór. Pozostaw na 5 minut w temperaturze pokojowej (RT).
- Dodać 120 μl odczynnika do transfekcji i wymieszać jak wyżej około 20 razy. Inkubować przez 10 minut w temperaturze pokojowej.
- Dodać 5,2 ml cDMEM i wymieszać jak powyżej z 5 ml pasków serologicznych.
- Za pomocą jednorazowej pipety transferowej dodawać mieszaninę do transfekcji kroplami bezpośrednio na monowarstwę komórek HEK293T (omijając ścianki kolby), rozprowadzając mieszaninę w różnych miejscach kolby.
- Rozprowadzić plazmid, delikatnie kołysząc kolbą z boku na bok. Nie dopuścić do dostania się płynów do pokrywy kolby.
- Inkubować kolbę w temperaturze 37 °C w inkubatorze z 5 % CO2 przez 48 godzin. Potwierdzić skuteczną transfekcję HEK293T komórek poprzez pojawienie się markera fluorescencyjnego, w tym przypadku GFP, w ciągu 24 godzin od transfekcji, monitorowanego pod mikroskopem fluorescencyjnym do obrazowania komórek.
UWAGA: W przypadku konstruktów bez markera fluorescencyjnego, komórki HEK293T muszą zostać przebadane pod kątem obecności użytego genu markerowego lub zmiany ekspresji w genie/białku będącym przedmiotem zainteresowania za pomocą odpowiednich technik, np. qPCR. Alternatywnie, udana transfekcja może być pośrednio zweryfikowana podczas testowania kolekcji lentiwirusa na komórkach Jurkat na późniejszych etapach protokołu za pomocą powyższych technik.
UWAGA: Transfekowane komórki HEK293T są uważane za zakaźne i podczas obchodzenia się z tymi komórkami należy wdrożyć odpowiednie środki ostrożności. Należy przestrzegać lokalnych przepisów, które zazwyczaj mogą obejmować pracę w komorze bezpieczeństwa biologicznego kategorii II, stosowanie podwójnych rękawic i odpowiedniego roztworu odkażającego do dezynfekcji, na przykład zwiększone stężenie wybielacza odpadowego (2000 ppm) lub równoważnego roztworu zgodnie z instytucjonalnymi wytycznymi dotyczącymi bezpieczeństwa biologicznego. Wszystkie roztwory i tworzywa sztuczne mające kontakt z preparatem lentiwirusa powinny być dezynfekowane zgodnie z instytucjonalnymi procedurami bezpieczeństwa biologicznego.
3. Zbiór cząsteczek lentiwirusowych
- Przygotuj roztwór do odkażania, roztwór wybielacza (podchloryn sodu) o wysokim stężeniu (2 000 ppm) lub równoważny środek zgodnie z instytucjonalnymi wytycznymi dotyczącymi bezpieczeństwa biologicznego w wiadrze i umieść go w komorze bezpieczeństwa biologicznego.
- Przygotuj szafkę bezpieczeństwa biologicznego, usuwając wszelkie nadmiarowe przedmioty, takie jak puste stojaki na probówki itp.
- Wstępnie oznaczyć probówkę wirówkową o pojemności 50 ml na kolbę HEK293T komórek T175 i zdjąć pokrywkę z probówki wirówkowej. Umieść rurki w stabilnym stojaku.
- Pobrać kolbę z inkubatora i potwierdzić ekspresję GFP za pomocą mikroskopu fluorescencyjnego z laserem o długości fali 488 nm (Rysunek 1A). Intensywność sygnału zależy od skuteczności transfekcji zabiegu i użytych konstrukcji.
- Zebrać pożywkę z komórek do wstępnie oznakowanej probówki wirówkowej o pojemności 50 ml. Przechylić kolbę T175 HEK293T z transfekowanymi komórkami tak, aby pożywka zebrała się w dolnym rogu kolby. Używając pasetki serologicznej o pojemności 25 ml, zebrać pożywkę bez naruszania monowarstwy komórek. Niektóre pływające komórki mogą być widoczne w tym momencie. Przenieś pożywkę do czystej probówki wirówkowej o pojemności 50 ml i zamknij pokrywę.
- Używając 25 ml pasiaka serologicznego, dodać 25 ml świeżego, ciepłego cDMEM do kolby. Upewnij się, że strumień medium jest skierowany na ścianki kolby, aby nie naruszyć monowarstwy komórek. Kolbę z transfekowanymi komórkami HEK293T umieścić z powrotem w inkubatorze (37 °C, 5 % CO2 ).
UWAGA: Drugie pobranie lentiwirusa i dalsze oczyszczanie można przeprowadzić po dodatkowych 24 godzinach, postępując zgodnie z procedurą opisaną w powyższych krokach.
- Używając 25 ml pasiaka serologicznego, dodać 25 ml świeżego, ciepłego cDMEM do kolby. Upewnij się, że strumień medium jest skierowany na ścianki kolby, aby nie naruszyć monowarstwy komórek. Kolbę z transfekowanymi komórkami HEK293T umieścić z powrotem w inkubatorze (37 °C, 5 % CO2 ).
- Gdy pobieranie lentiwirusa zostanie zakończone po 24 godzinach lub 48 godzinach, dodaj roztwór odkażający do komórek, upewniając się, że pokrywa on monowarstwę komórki. Kolbę należy trzymać poziomo przez następne 24 godziny, a następnie wyrzucić ją zgodnie z odpowiednimi przepisami kategorii II.
4. Oczyszczanie lentiwirusa
- Przefiltruj pożywkę zbiorczą z kroku 3.5.
- Wyjąć tłok ze strzykawki o pojemności 50 ml i włożyć do końcówki strzykawki sterylny filtr z polieterosulfonu lub polifluorku winylidenu 0,45 μm o niskiej zawartości wiązania z białkami. Używając pasetki serologicznej o pojemności 25 ml, dodać do strzykawki zebraną pożywkę z kroku 3.5.1 i delikatnie wcisnąć tłok.
- Powoli wciskaj korek, aby przepuścić medium przez filtr do świeżej probówki wirówkowej o pojemności 50 ml. Jeśli przepływ znacznie się zmniejszy, należy ustawić strzykawkę z filtrem skierowanym do góry i wyciągnąć tłok na tyle, aby usunąć medium z filtra.
- Ostrożnie wymienić filtr w strzykawce na nowy, a zużyty filtr wyrzucić do roztworu odkażającego. Kontynuuj filtrację pożywki. Po zakończeniu należy odkazić filtr i strzykawkę, zanurzając filtr i napełniając strzykawkę roztworem odkażającym.
- Wstępnie schłodzić ultrawirówkę, ustawiając temperaturę na 4 °C i zamknąć pokrywę, aby temperatura się przyczyniła.
- Dodać 3 ml 20% roztworu sacharozy (20% w/v w ultraczystej wodzie, przefiltrować wysterylizowane przy użyciu filtra 0,22 μm) na dno stożkowej probówki ultrawirówki.
- Używając pasetki serologicznej o pojemności 25 ml, nałożyć przefiltrowaną pożywkę na warstwę sacharozy, uważając, aby nie naruszyć warstw.
- Użyj najniższego ustawienia prędkości w pipetowniku. Ustawić stożkową probówkę ultrawirówki pod kątem około 45° i powoli dodawać przefiltrowaną pożywkę zawierającą lentiwirusa z kroku 4.1 do ścianki probówki. Upewnij się, że podłoże i sacharoza nie mieszają się ze sobą i widoczne jest wyraźne oddzielenie warstw (Rysunek 1B). Wraz ze wzrostem objętości warstwy pożywki powoli przechylaj probówkę ultrawirówki z powrotem do pozycji pionowej.
- Jeśli całkowita objętość, łącznie z sacharozą i pożywką, w probówce ultrawirówki jest mniejsza niż 29 ml, uzupełnij ją świeżym cDMEM, aby uniknąć zapadnięcia się probówki podczas wirowania. W przypadku wielu kolekcji T175 ml należy wymieszać przefiltrowane preparaty pożywki i użyć wielu probówek ultrawirówek. W razie potrzeby uzupełnij ostatnią probówkę ultrawirówki pożywką.
- Upewnij się, że wiadra do ultrawirówek są czyste; na dnie wiadra lub nakrętkach nie ma średnich pozostałości. W razie potrzeby przetrzeć ~70% alkoholem. Umieść odpowiednie adaptery probówek na dnie każdego wiadra (Rysunek 1C) i delikatnie opuść probówki ultrawirówki do wiader.
- Szczelnie zamknij wiadra i zawieś je w wyznaczonych miejscach na wirniku wirującym.
- Upewnij się, że wiadra są zrównoważone tymi samymi objętościami sacharozy i podłoża. Wirnik wirujący nigdy nie może być uruchamiany bez łyżek, chociaż przeciwległe łyżki mogą pozostać puste20 (Rysunek 1D).
- Ostrożnie włóż wirnik do ultrawirówki i włącz próżnię. Ustaw szybkość przyspieszania i zwalniania ultrawirówki na najniższe ustawienie i uruchom preparaty lentiwirusowe przy 85 000 x g przez 90 minut w temperaturze 4 °C.
- Poczekaj, aż ultrawirówka osiągnie wymaganą prędkość (około 3-5 minut) przed odejściem, aby upewnić się, że wirnik jest prawidłowo włożony, a wirowanie się nie zakończy.
- Podczas pracy ultrawirówki należy posprzątać miejsce pracy zgodnie z wymogami bezpieczeństwa kategorii II i przygotować przestrzeń do kolejnych kroków.
- Po zakończeniu wirowania wyłącz próżnię i ostrożnie wyjmij wirnik, aby nie naruszyć próbek.
- Zbadaj ultrawirówkę pod kątem wycieków i upewnij się, że nie ma wycieków z wiader. W przypadku rozlania należy założyć dwie rękawice i odkazić wirówkę oraz zewnętrzną powierzchnię wiader produktami przeciwwirusowymi.
- Wyjmij wiadra z ultrawirówki i ostrożnie przetransportuj wiadra do szafki bezpieczeństwa biologicznego kategorii II.
UWAGA: Cząsteczki lentiwirusa gromadzą się na dnie probówki ultrawirówkowej. Śrut nie jest widoczny gołym okiem. - Wlej sacharozę i pożywkę jednym płynnym ruchem bezpośrednio do pojemnika na odpady z roztworem do odkażania.
- Trzymając probówkę ultrawirówki odwróconą, przenieś ją na podwójną warstwę tkanki i pozostaw do wyschnięcia na 10 minut. W międzyczasie wytrzyj wnętrze wiader chusteczką nasączoną wodą i wysusz na powietrzu do góry nogami.
- Ostrożnie osusz pozostałą ciecz z krawędzi probówki ultrawirówki chusteczką przed obróceniem jej do pozycji pionowej. Zdezynfekuj tkankę i powierzchnię pod spodem.
- Zawiesić osad wirusa w 1 ml pożywki lub roztworu bez surowicy, wymaganego do dalszych eksperymentów, delikatnie pipetując roztwór w górę i w dół. Pozostaw na 15 minut w temperaturze pokojowej w komorze bezpieczeństwa biologicznego kategorii II.
- Delikatnie wymieszać preparaty lentiwirusa za pomocą pipety o pojemności 1 ml przed rozdzieleniem na 1,5 ml zakręcane probówki (np. krioprobówki). Przygotować podwielokrotności do pracy in vivo (wielokrotność 100 μl) i do miana lentiwirusa w limfocytach T Jurkata (1 x 20 μl) (patrz etap 5).
- Należy unikać cykli zamrażania i rozmrażania; preparaty lentiwirusowe można przechowywać w temperaturze -80 °C przez okres do 6 miesięcy bez negatywnego wpływu na zakaźność.
5. Miareczkowanie produkcji lentiwirusa w limfocytach T Jurkata
- Przygotuj kompletną pożywkę Roswell Park Memorial Institute 1640 (cRPMI-1640) dla limfocytów T Jurkat, uzupełniając 500 ml RPMI-1640 10% (v/v) płodową surowicą cielęcą i końcowym stężeniem 100 U/ml penicyliny/streptomycyny.
- Aby zapewnić zdrową hodowlę limfocytów T Jurkat, należy utrzymywać komórki w hodowli do 1 tygodnia przed zakażeniem.
- W dniu miareczkowania lentiwirusa należy umieścić żywe limfocyty T Jurkat na 24-dołkowej płytce w ilości 2 x 10⁵ komórek/dołek w 200 μl na studzienkę cRPMI-1640.
- Użyć świeżo pobranego lentiwirusa lub rozmrozić fiolkę z lentiwirusem zawierającą 20 μl na lodzie i delikatnie wymieszać, pipetując w górę i w dół.
- Stosując seryjne rozcieńczanie w cRPMI-1640, zainfekuj limfocyty T Jurkat 0,25 μl, 0,5 μl, 1 μl, 2,5 μl, 5 μl i 10 μl lentiwirusa. Delikatnie kołysz płytką, aby zapewnić równomierne rozprowadzenie lentiwirusa. Niezakażone limfocyty T Jurkata służą jako kontrola negatywna.
- Inkubować płytkę w temperaturze 37 °C. Po 4 godzinach uzupełnić każdą studzienkę cRPMI do całkowitej objętości 400 μl. Umieścić płytkę z powrotem w inkubatorze w temperaturze 37 °C na 3 dni.
- Po 48 godzinach od zakażenia potwierdź ekspresję GFP w systemie obrazowania fluorescencyjnego.
- 3 dni po zakażeniu zebrać każdą studzienkę z 24-dołkowej płytki do oddzielnych probówek zbiorczych o pojemności 1,5 ml i odwirować komórki w temperaturze 350 x g w temperaturze 4 °C przez 5 minut.
- Odrzucić supernatant. Zawiesić granulat w 300 μl 2% paraformaldehydu (PFA) przygotowanego do 2% (w/v) w DPBS i pozostawić na 15 minut na lodzie w ciemności.
- Odwirować komórki w temperaturze 350 x g w temperaturze 4 °C przez 5 minut i ponownie zawiesić osad w buforze do sortowania komórek aktywowanego fluorescencją (FACS) (sterylny DPBS + 4% FCS + 1 mM sterylny EDTA).
- Przeanalizuj częstotliwość ekspresji GFP i średnią intensywność fluorescencji zakażonego lentiwirusem i jego komórek kontrolnych za pomocą cytometrii przepływowej (Rysunek 2).
6. Zakażenie in vivo lentiwirusem makrofagów otrzewnowych rezydujących w tkance
- Do komory bezpieczeństwa biologicznego kategorii II należy umieścić igły insuliny o łącznej objętości 200 μl pożywki niezawierającej surowicy zawierającej wymaganą ilość lentiwirusa (należy używać igieł jednorazowego użytku, 30 G ze względu na dobrostan zwierząt i w celu uniknięcia utraty płynu w igle).
- Umieścić osłonkę igły z powrotem na igle, używając techniki czerpania jedną ręką. Trzymać igłę na lodzie i wstrzyknąć w ciągu 30 minut.
- W pomieszczeniu dla zwierząt przed wstrzyknięciami należy założyć komorę bezpieczeństwa biologicznego kategorii II (Rysunek 1E).
- Połóż arkusz czystej chusteczki. Poluzować osłonkę igły insulinowej zawierającej lentiwirusa.
- Przygotuj szalkę Petriego zawierającą małe kawałki tkanki i środek dezynfekujący na bazie glukonianu chlorheksydyny, probówkę o pojemności 50 ml zawierającą roztwór odkażający (roztwór wybielacza 2000 ppm) oraz ostry bezpieczny pojemnik.
- Powstrzymaj mysz, chwytając skórę na karku21. Prawidłowo unieruchomiona mysz jest nieruchoma, co jest wymagane ze względów bezpieczeństwa.
- Z brzuchem skierowanym do góry, skieruj głowę zwierzęcia lekko w dół. Wstrzyknąć lentiwirusa dootrzewnowo w prawy dolny kwadrant jamy brzusznej. Ma to na celu uniknięcie wstrzyknięcia do jakichkolwiek narządów jamy otrzewnej.
- Przed uwolnieniem myszy napełnij strzykawkę roztworem odkażającym i bezpiecznie wyrzuć ją do ostrego sejfu.
- Przetrzyj miejsce wstrzyknięcia na brzuchu myszy chusteczką nasączoną środkiem dezynfekującym i umieść zwierzę z powrotem w klatce.
- Mysz z wstrzykniętym lentiwirusem należy przechowywać w skantainerze kategorii II lub w klatkach wentylowanych indywidualnie (IVC) (izolowane klatki z wysokowydajną filtracją powietrza) przez co najmniej 72 godziny po wstrzyknięciu. Umieść odpowiednią kartę informacyjną z przodu klatki.
- Przenieś mysz do nowej klatki kategorii I po 72 godzinach od zakażenia, w zależności od lokalnych atestów bezpieczeństwa. Monitoruj myszy codziennie przez łącznie 3 dni od wstrzyknięcia.
7. Pobieranie komórek otrzewnej od myszy zakażonej lentiwirusem
UWAGA: W przypadku pobierania w ciągu 72 godzin od wstrzyknięcia lentiwirusa, postępuj zgodnie z instytucjonalnymi zasadami bezpieczeństwa biologicznego kategorii II. Ściółka i klatka, w której trzymano zakażone zwierzęta w ciągu pierwszych 72 godzin po wstrzyknięciu lentiwirusa, muszą zostać odkażone zgodnie z instytucjonalnymi zasadami bezpieczeństwa biologicznego kategorii II.
- Eutanazja myszy odbywa się zgodnie z regulacjami instytucjonalnymi, na przykład poprzez wdychanie rosnącego stężenia CO2 , a następnie potwierdzenie śmierci przez zwichnięcie szyjki macicy.
- Oczyść brzuch myszy 70% izopropanolem i ostrożnie przeciąć skórę, aby odsłonić błonę jamy otrzewnej.
- Przepłukać jamę otrzewnej 6 ml lodowatego buforu FACS za pomocą strzykawki o pojemności 10 ml i igły 23 G. Unikaj nakłuwania jakichkolwiek narządów.
- Delikatnie masuj otrzewną, aby usunąć komórki do bufora FACS.
- Zebrać płyn otrzewnowy za pomocą tej samej strzykawki i igły.
- Wyjąć igłę i przenieść komórki do probówki wirówkowej o pojemności 15 ml.
- Płukanie otrzewnowe należy przechowywać na lodzie.
- Należy pobrać inne wymagane narządy i przechowywać je zgodnie z potrzebami badania.
- Zwłoki zwierzęce należy utylizować zgodnie z lokalnymi wytycznymi dotyczącymi zwierząt i bezpieczeństwa.
8. Barwienie i analiza komórek otrzewnej
- Odwirować płukanie otrzewnowe w temperaturze 350 x g w temperaturze 4 °C przez 5 minut, odrzucić supernatant do roztworu odkażającego i ponownie zawiesić komórki w 1 ml buforu FACS.
- Policz zebrane komórki i płytkę 4 x 10⁵ komórek na dołek w 96-dołkowej płytce z dnem w kształcie litery V.
- Barwienie żywotności należy wykonać za pomocą odczynnika do utrwalania (np. zestawu do barwienia martwych komórek w bliskiej podczerwieni używanego tutaj) zgodnie z instrukcjami producenta.
- Jeśli komórki zostały zakażone w ciągu ostatnich 72 godzin, utrwal komórki w 2% PFA przez 15 minut na lodzie. Dodać równą objętość zimnego DPBS i ponownie odwirować przy 350 x g w temperaturze 4 °C przez 5 minut.
- Przygotować bufor blokujący: Wymieszać 4 μg/ml przeciwciała 2,4G2 w 10% (v/v) surowicy szczura w buforze FACS do barwienia powierzchni lub buforze przepuszczalnym do barwienia wewnątrzkomórkowego.
- Zawiesić ponownie każdą studzienkę zawierającą osad komórkowy w 50 μl buforu blokującego i inkubować w temperaturze 4 °C przez 15 minut.
- Przygotować mieszaninę przeciwciał w 50 μl buforu FACS (do barwienia powierzchni) lub buforu permeabilizacji (do barwienia wewnątrzkomórkowego) na każdą próbkę. Ostateczna objętość barwienia dla każdej próbki wynosi 100 μl, w tym 50 μl buforu blokującego. Obliczyć odpowiednio stężenia przeciwciał (tabela 1).
- Dodać 50 μl mieszaniny przeciwciał do próbek i 50 μl próbek kontrolnych izotypu i buforu kontrolnego do próbek kontrolnych. Próbki należy inkubować przez 30 minut na lodzie w ciemności. W razie potrzeby dołącz niebarwione komórki i kontrole izotypu.
- Przemyć każdą studzienkę 100-200 μl lodowatego DPBS i odwirować płytkę o sile 350 x g w temperaturze 4 °C przez 5 minut. Powtórz ten krok, aby zmyć wszelkie niezwiązane przeciwciała. Przeanalizować próbki za pomocą cytometru przepływowego.
9. Pobieranie komórek z organów
- Przygotuj 1 ml mieszanki trawiennej na narząd: Wymieszaj zbilansowany roztwór soli Hanka (HBSS), 2 mg/ml kolagenazy typu IV i 0,03 mg/ml DNazy I (w tym 1,5 mg/ml hialuronidazy do trawienia płuc).
- Przenieś pobrany narząd do 1 ml mieszanki trawiącej i zmiel go nożyczkami.
- Przefiltrować komórki przez sitko o wielkości 40 μm i odwirować przy 350 x g w temperaturze 4 °C przez 5 minut.
- W przypadku izolowania komórek z płuc, śledziony lub wątroby należy lizować czerwone krwinki za pomocą buforu do lizy ACK (150 mM NH4Cl, 10 mM KHCO3, 0,1 mM Na2EDTA pH = 7,4). Przefiltrować komórki przez sitko o wielkości 40 μm i odwirować przy 350 x g w temperaturze 4 °C przez 5 minut.
- Wybarwić i przeanalizować komórki zgodnie z opisem w sekcji 8.
Wyniki
Przy pełnym i prawidłowym zastosowaniu, protokół ten pozwala na uzyskanie łącznie 1,5 mL wysokiej jakości zapasu lentiwirusa z jednego przygotowania, co jest wystarczające do dwunastu wstrzyknięć in vivo w optymalnej objętości określonej w niniejszym badaniu18. Sukces transfekcji można ocenić na wczesnym etapie protokołu. Zdrowe i konfluentne komórki HEK293T powinny wykazywać, jeśli znajdują się w plazmidach, łatwo wykrywalny sygnał markera (np. GFP użytego w tym badaniu) po 48 h od transfekcji plazmidowej (Rysunek 1A). Niska intensywność sygnału, nadmierne odrywanie się komórek oraz niska konfluencja na wczesnych etapach protokołu mogą wskazywać na śmierć komórek i doprowadzą do niskiej wydajności preparatu lentiwirusowego. Pewne odrywanie się komórek przed opcjonalnym pobraniem II (krok 3.5.1.) jest widoczne i oczekiwane.
W niniejszym protokole do generowania cząsteczek lentiwirusa wykorzystuje się trzy plazmidy: plazmid pakujący pCMV-ΔR8.91 kodujący białko strukturalne HIV-1 (Gag), białka akcesoryjne Tat i Rev oraz polimerazę odwrotnej transkrypcji (Pol)22; pMD2.G kodujący otoczkę VSV-G pod promotorem CMV13; oraz plazmid pHR'SIN-cPPT-SEW (kodujący marker eGFP)19, odpowiednio zmodyfikowany w celu ekspresji shRNA lub mikroRNA.
Preparaty lentiwirusów są mianowane na linii komórkowej limfocytów T Jurkat ze względu na ich wysoką zakaźność23. Prawidłowo przygotowany lentiwirus pozwoli uzyskać wskaźnik zakażenia powyżej 95% przy dawce tak niskiej jak 5 µL (Rysunek 2A). Średnia intensywność fluorescencji zakażonych komórek nadal wzrasta przy wyższych dawkach (Rysunek 2B,C). W razie potrzeby miana wirusa można zmierzyć za pomocą PCR w czasie rzeczywistym dla zintegrowanych komponentów wirusowych, np. promotora SFFV, co korelowało liniowo z odsetkiem komórek wykazujących ekspresję GFP i logarytmicznie z MFI dla GFP (Rysunek 2D). W zależności od konstruktu, szczególnie w przypadku tych z dużym insertem24, niektóre preparaty lentiwirusów mogą wykazywać obniżoną zakaźność w komórkach T Jurkat, co zademonstrowano dla konstruktu Cre-GFP użytego w niniejszym badaniu (Rysunek 2E,F). W takim przypadku można połączyć kilka preparatów cząstek lentiwirusowych i resuspenderować je w 1 mL. Zalecamy walidację odpowiedzi immunologicznej na te preparaty in vivo przed rozpoczęciem eksperymentów. Naturalnie preparaty lentiwirusów z alternatywnymi receptorami wejścia niż zastosowany tutaj VSV-G mogą wykazywać inną wydajność zakażania w linii komórkowej T Jurkat, w zależności od ekspresji receptorów na komórkach. Linie komórkowe wykorzystywane do mianowania powinny być dobrane tak, aby wykazywały ekspresję receptora używanego przez cząstki lentiwirusów do wnikania do komórek i najlepiej nie posiadały lub miały bardzo niską ekspresję czynników restrykcyjnych25.
Pomyślną produkcję cząsteczek lentiwirusowych potwierdzono ponadto poprzez infekcję pMφ (zdefiniowanych jako populacja CD11b+ F4/80+ oraz Tim4+)18 (Rycina 3A). Ustalono, że wewnątrzbrzuszne wstrzyknięcie 100 µL preparatu lentiwirusowego (w całkowitej objętości 200 µL pożywki bezsurowiczej) zapewnia najwyższy odsetek i intensywność sygnału GFP w tych komórkach (Rycina 3B,C). Wstrzyknięcia wyższych dawek (150 µL i 200 µL preparatu lentiwirusowego) nie miały korzystnego wpływu na ekspresję GFP w pMφ. Eksperymenty w zależności od czasu w godzinie 4 h, oraz w 3, 7 i 14 dniu po wewnątrzbrzusznej (i.p) injekcji 100 µL lentiwirusa wykazały znaczący odsetek rezydujących pMφ wykazujących ekspresję GFP w 3. i 7. dniu, a następnie zanik zainfekowanej populacji w 14. dniu (Rycina 3D, E). Co ciekawe, pMφ wykazujące ekspresję GFP znikają głównie do 14. dnia po infekcji, częściowo ze względu na immunologiczne rozpoznanie markera GFP. Rzeczywiście, eksperymenty z lentiwirusem z markerem GFP u myszy selektywnych dla T-Reg, Foxp3-DTR-eGFP, zapobiegają odrzuceniu zainfekowanych rezydujących pMφ przynajmniej do 21. dnia (Rycina 3F). W przypadku preparatów lentiwirusowych o obniżonej skuteczności w komórkach Jurkat, do osiągnięcia oczekiwanego stopnia infekcji in vivo wymagana byłaby wyższa ilość. Jednakże, jak wykazano w przypadku preparatu lentiwirusowego Cre-GFP, zależnie od projektu konstruktu, nawet dawka 300 µL w 7. dniu po wstrzyknięciu i.p może przynieść słaby rezultat (Rycina 3G). Wcześniej wykazaliśmy pomyślne zastosowanie tego protokołu do nadekspresji i wyciszania genów in vivo w mysich pMφ, w tym lentiwirusowe wyciszanie genów Map3k8 i Gata6 za pomocą shRNA oraz nadekspresję Gata619. Tutaj pokazujemy, że protokół ten może być również skutecznie wykorzystany do nadekspresji mysiego mikroRNA 146b (mmu-miR-146b) oraz do wyciszania cząsteczki adhezyjnej międzykomórkowej 1 (ICAM1, CD54) przy użyciu pochodnego od lentiwirusa shRNA w rezydujących pMφ (Rycina 3H,I).
Zakażanie komórek pierwotnych, takich jak makrofagi, wymaga większej ilości lentiwirusów, co prawdopodobnie wynika z obecności czynników restrykcyjnych w tych komórkach. Czynniki restrykcyjne to naturalne mechanizmy ochronne komórek, które zakłócają etapy cyklu życiowego wirusów, takie jak odwrotna transkrypcja lub integracja, co prowadzi do zahamowania ekspresji genów z konstruktów.
Dalsza walidacja protokołu in vivo wykazała brak wpływu dostarczania lentiwirusa drogą i.p. na żywotność komórek odpornościowych otrzewnej (Rysunek 4A) i wskazała na odmienną zakaźność rezydentnych subpopulacji pMφ (zdefiniowanych przez ekspresję markerów CD73 i Tim4) (Rysunek 4B,C). Co istotne, produkcyjna infekcja lentiwirusem była ograniczona do rezydentnych Mφ w miejscu wstrzyknięcia, o czym świadczył brak znaczącej ekspresji GFP w Mφ węzłów chłonnych krezkowych (mLN), płuc, wątroby lub śledziony 7 dni po podaniu (Rysunek 4D). Biorąc pod uwagę, że w wielu przypadkach celowanie genetyczne w Mφ musi być przeprowadzone w warunkach zapalnych, zbadaliśmy skuteczność tego protokołu u myszy poddanych wyzwaniu poprzez dostrychnawcze wstrzyknięcie 0,1 mL 4% tioglikolanu. Wstrzyknięcie tioglikolanu wywołuje napływ zapalnych Mφ pochodzących z monocytów oraz komórek monocytowych, które można podzielić na 5 odrębnych populacji (Rysunek 4E). Analiza cytometrii przepływowej ujawniła fenotyp oporny na infekcję lentiwirusem w przypadku komórek podobnych do monocytów (populacje Ly6Chi 1 i 2), co jest zgodne z wcześniejszymi odkryciami w komórkach ludzkich26. W przeciwieństwie do nich, rezydentne Mφ i monocyty (grupy 3-5) pozostały najbardziej podatne na infekcję (Rysunek 4F).
Szczegółowa analiza cytometryczna wykazała ekspresję GFP głównie w rezydentnych makrofagach otrzewnej (Mφ) oraz rezydentnych pMφ z głównym kompleksem zgodności tkankowej (MHC) klasy II+ (MHCII+ F4/80+ Tim4+) (do 60 % w 3. dniu po wstrzyknięciu) (Rycina 5A). Słaby lub żaden sygnał GFP nie został wykryty w innych populacjach komórek otrzewnej, w tym w makrofagach/komórkach dendrytycznych otrzewnej pochodzących z szpiku kostnego (MHCII+, CD11b+, CD11c+), limfocytach B (CD19+), limfocytach T (CD3+), komórkach tucznych (CD11b-, FcεR1+), eozynofilach (Siglec-F+), komórkach NK (CD19-, NK1.1+) oraz neutrofilach (Ly6G+) (Rycina 5A,B). Trwałość ekspresji GFP (Rycina 5C) we wszystkich populacjach odpowiadała trwałości w rezydentnych makrofagach otrzewnej (Rycina 1D). Przejściowy wzrost częstości występowania neutrofili odnotowano po 4 h od wstrzyknięcia dootrzewnowego 100 µL (w całkowitej objętości 200 µL medium bez surowicy) lentiwirusa (Rycina 5D), co wskazuje na wczesny, łagodny stan zapalny u zwierząt poddanych działaniu preparatu. Ostatecznie w przypadku rezydentnych pMφ zaobserwowano znaczny spadek częstości występowania między 7. a 14. dniem po zakażeniu (Rycina 5E), co sugeruje, że optymalne okno eksperymentalne przypada między 3. a 7. dniem po wstrzyknięciu.

Rycina 1: Produkcja lentiwirusów w komórkach HEK293T. (A) Reprezentatywne zdjęcia immunofluorescencyjne komórek HEK293T 48h po udanej transfekcji (mikroskop fluorescencyjny [pik pobudzenia 488 nm, pik emisji 510 nm], powiększenie 20x, pasek skali = 400 µm). (B) Zdjęcie stożkowej probówki do ultrawirówki zawierającej warstwę 20% sacharozy (dół, przezroczysta) oraz warstwę medium pobranego z transfekowanych komórek HEK293T (góra, czerwona). (C) Zdjęcie prawidłowego umieszczenia stożkowej probówki do ultrawirówki w koszyczku, wraz z adapterem. (D) Zdjęcia przedstawiające prawidłowe i nieprawidłowe wyważenie rotora ultrawirówki. (E) Zdjęcie optymalnej konfiguracji komory Cat II i materiałów do iniekcji in vivo dla osoby praworęcznej. Rycina została zmodyfikowana za zgodą Ipseiz N et al.18. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rysunek 2: Miareczkowanie lentiwirusa w komórkach T Jurkat. (A) Reprezentatywna analiza cytometryczna komórek T Jurkat 72 h po infekcji rosnącymi dawkami lentiwirusa zawierającego plazmid GFP, przedstawiająca odsetek komórek GFP+ (GFP+), (B) średnia intensywność fluorescencji (MFI) komórek GFP+ oraz (C) reprezentatywny histogram ekspresji GFP. (D) Wykres rozrzutu przedstawiający MFI (lewa oś Y) i odsetek komórek zainfekowanych lentiwirusem wykazującym ekspresję GFP (prawa oś Y) w funkcji liczby kopii wirusa wykrytej na pg DNA (oś X). (E) Reprezentatywny histogram infekcji komórek T Jurkat suboptymalnym preparatem lentiwirusa Cre-GFP (Cre-GFP LV) oraz kontrolnym lentiwirusem GFP (GFP LV) oraz (F) dane zbiorcze przedstawiające odsetek komórek T Jurkat zainfekowanych lentiwirusem Cre-GFP (GFP+). Rysunek został zmodyfikowany za zgodą Ipseiz N et al.18. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
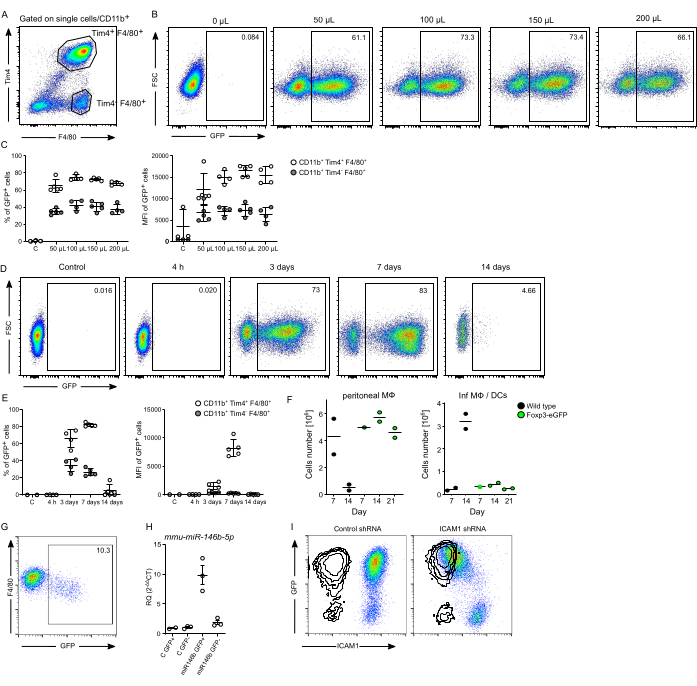
Rysunek 3: Efektywność zakażenia rezydentnych pMФ. (A) Strategia bramkowania rezydentnych pMφ (CD11b+, Tim4+, F4/80+) oraz komórek Tim4-, F4/80+. Bramkowanie komórek przeprowadzono najpierw na singletach, a następnie na CD11b+. (B) Reprezentatywne wykresy kropkowe oraz (C) podsumowanie częstotliwości zakażenia (% komórek GFP+) i intensywności (MFI) komórek GFP+ wyizolowanych 3 dni po zakażeniu in vivo różnymi ilościami preparatu lentiwirusa GFP. (D) Reprezentatywny wykres kropkowy oraz (E) podsumowanie częstotliwości zakażenia (% komórek GFP+) i intensywności (MFI) komórek GFP+ wyizolowanych w różnych punktach czasowych po zakażeniu in vivo 100 µL lentiwirusa w całkowitej objętości 200 µL pożywki bezsurowiczej. (F) Podsumowanie liczby komórek w dniach 7, 14 i 21 po dostarczeniu dootrzewnowym lentiwirusa wykazującego ekspresję GFP u myszy Foxp3-DTR-eGFP, przedstawiające liczbę pMφ wykazujących ekspresję GFP oraz makrofagów zapalnych i komórek dendrytycznych (InfMØs/DCs [F480low]). (n= 1-2 na grupę). (G) Reprezentatywny wykres kropkowy suboptymalnego zakażenia in vivo rezydentnych pMφ z linii Gata6-KOmye 19 300 µL lentiwirusa Cre-GFP 7 dni po wstrzyknięciu dootrzewnowym. (H) Ilościowe oznaczenie RT-qPCR ekspresji mmu-miR-146b-5p w rezydentnych makrofagach otrzewnowych poddanych działaniu in vivo 100 µL lentiwirusa kodującego mysie mikroRNA-146b (miR-146b) lub kontroli (C). Rezydentne pMφ (białe kółka) i komórki Tim4-, F4/80+ (szare kółka). (I) Reprezentatywny wykres kropkowy pomyślnej downregulacji ICAM1 na pMφ u samic myszy 129S6, 7 dni po wstrzyknięciu dootrzewnowym lentiwirusa zawierającego celowane shRNA. Przedstawiono kontrolne shRNA. Nałożona warstwa przedstawia kontrolę izotypową. Dane przedstawiono jako średnia ± SEM, n≥2 myszy. Rysunek został zmodyfikowany za zgodą Ipseiz N et al.18. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 4: Efektywność infekcji subpopulacji rezydujących pMφ. (A) Procent całkowitej liczby pojedynczych komórek oraz żywotnych rezydujących Mφ 7 dni po wstrzyknięciu dootrzewnowym 100 µL pożywki bezsurowiczej (-) lub lentiwirusa GFP (+). (B) Strategia bramkowania pokazująca cztery główne populacje pMφ znalezione in vivo: CD73+Tim4+, CD73-Tim4-, CD73+Tim4-, CD73-Tim4+, oraz (C) odpowiadająca im częstość infekcji (% komórek GFP+) i intensywność (MFI komórek GFP+) tych populacji. (D) Procent komórek GFP+ w wielu organach 7 dni po wstrzyknięciu dootrzewnowym 100 µL lentiwirusa. Skróty: mLN, węzeł chłonny krezkowy. (E) Myszy otrzymały wstrzyknięcia dootrzewnowe 0,1 mL 4% tioglikolanu przez 5 dni, a następnie wstrzyknięcie dootrzewnowe lentiwirusa. Strategia bramkowania pMφ i monocytów 3 dni po wstrzyknięciu dootrzewnowym lentiwirusa. (F) Analiza częstości infekcji, MFI i liczby komórek GFP+ monocytów (Ly6C+) i Mφ (Ly6C-). Dane przedstawione jako średnia ± SEM, n≥3 myszy. Rycina została zmodyfikowana za zgodą Ipseiz N et al.18. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
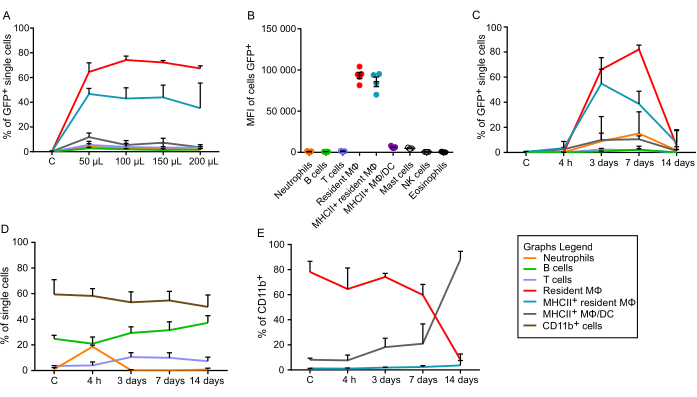
Rycina 5: Wpływ wstrzyknięcia lentiwirusa na zapalenie otrzewnej. Myszy otrzymały wstrzyknięcia in vivo i.p. lentiwirusa ekspresyjnego GFP. (A) Częstość zakażenia populacji komórek w jamie otrzewnej po wstrzyknięciu różnych ilości lentiwirusa (50 µL, 100 µL, 150 µL lub 200 µL). (B) Intensywność ekspresji GFP w produktywnie zakażonych populacjach komórek 7 dni po wstrzyknięciu i.p. (C) Częstość zakażenia populacji komórek w jamie otrzewnej w różnych punktach czasowych po wstrzyknięciu i.p. (D) i (E) Procent komórek w różnych punktach czasowych po wstrzyknięciu i.p. Wszystkie wstrzyknięcia lentiwirusa przeprowadzono z taką samą całkowitą objętością 200 µL, uzupełnioną medium bezsurowiczym. O ile nie określono inaczej, zastosowano dawkę 100 µL lentiwirusa. Myszy kontrolne („C”) otrzymały 200 µL czystego medium bezsurowiczego. Dane przedstawiono jako średnia ± SEM, n≥3 myszy. Rycina została zmodyfikowana za zgodą Ipseiz N et al.18. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Cel przeciwciała | Fluorofor | Klon | Zastosowane rozcieńczenie | stężenie końcowe [μg/mL] |
| Antygen rdzenia HIV-1 | RD1 | FH190-1-1 | 1/100 | 1 |
| I-A/I-E | PerCpCy5.5 | M5/114.15.2 | 1/400 | 0.5 |
| Ly6G | PerCpCy5.5 | 1A8 | 1/400 | 0.5 |
| CD3e | PerCpCy5.5 | 17A2 | 1/200 | 1 |
| CD3e | PE/Cy7 | 500A2 | 1/400 | 0.5 |
| CD11c | PE/Cy7 | N418 | 1/800 | 0.25 |
| CD11c | BV605 | N418 | 1/400 | 0.5 |
| CD226 | AF647 | 10 E 5 | 1/400 | 1.25 |
| Tim4 | AF647 | RTM4-54 | 1/600 | 0.83 |
| CD4 | APC | GK1.5 | 1/400 | 0.5 |
| CD11b | AF700 | M1/70 | 1/700 | 0.71 |
| CD11b | PerCpCy5.5 | M1/70 | 1/400 | 0.5 |
| F4/80 | Pacific Blue | BM8 | 1/700 | 0.71 |
| F4/80 | BV605 | BM8 | 1/400 | 0.25 |
| F4/80 | BV711 | BM8 | 1/400 | 0.5 |
| CD73 | eFluor450 | TY/11.8 | 1/400 | 2.5 |
| CD19 | V450 | 1D3 | 1/400 | 0.5 |
| CD19 | APC | 1D3 | 1/400 | 0.5 |
| CD8a | eFluor450 | 53-6.7 | 1/400 | 0.5 |
| SiglecF | BV421 | E50-2440 | 1/400 | 0.5 |
| NK1.1 | APC/Cy7 | PK136 | 1/400 | 0.5 |
| FceR1 | eFluor450 | MAR-1 | 1/400 | 0.5 |
| ICAM1 | PE | 1A29 | 1/100 | 2 |
| Kontrola izotypowa szczurza IgG1, κ | PE | 1/100 | 2 |
Tabela 1: Lista przeciwciał
Dyskusja
Makrofagi rezydujące w tkankach pełnią szereg funkcji homeostatycznych i zapalnych specyficznych dla tkanek 1,2 podyktowanych ich środowiskiem fizjologicznym 6,7,8,9. W protokole tym wprowadzono skuteczną metodę18 manipulacji makrofagami rezydującymi w otrzewnej in vivo przy użyciu cząstek lentiwirusa w celu zbadania funkcji makrofagów w ich biologicznym mikrośrodowisku.
Dla powodzenia protokołu niezbędne jest wykorzystanie zdrowych komórek HEK293T. Najlepszą praktyką jest rozmrażanie komórek co najmniej tydzień przed rozpoczęciem tego protokołu, aby zapewnić regenerację komórek i dobrą liczbę. Komórki powinny być wysiane w odpowiedniej objętości pożywki na jeden dzień przed planowaną transfekcją i powinny osiągnąć około 80% zbiegu w dniu transfekcji. Niedostatecznie lub nadmiernie zlewające się preparaty komórkowe spowodują zmniejszenie wydajności lentiwirusa. W celu uzyskania najlepszych rezultatów zalecamy transfekcję HEK293T komórek odczynnikiem do transfekcji zgodnie z instrukcjami producenta. Podstawowe etapy transfekcji obejmują odpowiednie wymieszanie plazmidów i odczynników oraz kroplowe dodawanie mieszaniny bezpośrednio do monowarstwy komórek HEK293T. W tym protokole można zastosować transfekcję fosforanu wapnia komórek HEK293T27,28. Użytkownik powinien jednak mieć świadomość, że skuteczność tej metody może się różnić i może skutkować zmniejszoną wydajnością transfekcji.
Środki ostrożności powinny być uwzględnione w protokole od dnia transfekcji komórek HEK293T. Obejmują one pracę w komorze bezpieczeństwa kategorii II, noszenie podwójnych rękawic podczas pracy z zanieczyszczonym materiałem oraz odpowiednie wybielanie skażonego materiału (roztworem odkażającym, na przykład roztworem wybielającym o stężeniu 2 000 ppm) przez co najmniej 4 godziny. Użytkownicy powinni zapoznać się ze swoimi regulacjami instytucjonalnymi dotyczącymi pracy z patogenami i odpadami kategorii II.
W tym protokole preparat lentiwirusa jest najpierw oczyszczany za pomocą filtra 0,45 μm w celu usunięcia HEK293T resztek komórek. Należy unikać stosowania mniejszych filtrów (0,22 μm) i membran z estrów celulozy, ponieważ spowoduje to utratę cząsteczek lentiwirusa. Zaleca się stosowanie filtrów polieterosulfonowych lub fluorku winylidenu o niskiej zdolności wiązania białek29. Drugi etap oczyszczania przeprowadza się na pojedynczej 20% warstwie sacharozy w ultrawirówce w celu usunięcia pozostałych zanieczyszczeń, co jest szczególnie ważne dla późniejszego podawania in vivo preparatu lentiwirusa. W instytucjach, w których ultrawirówka nie jest dostępna, inne30 opisało oczyszczanie lentiwirusa na bazie sacharozy przy użyciu standardowej wirówki laboratoryjnej. Można to zaimplementować w tym protokole jako alternatywę. Preparat lentiwirusa jest miareczkowany w limfocytach T Jurkat na podstawie ekspresji sygnału markerowego (np. GFP stosowanego w tym protokole). W przypadku konstruktów bez markerów, fizyczne cząstki lentiwirusa można ocenić poprzez kwantyfikację białka p24gag HIV-1 za pomocą zestawu ELISA31, analizę cytometrii przepływowej antygenu rdzeniowegoHIV-1 18 lub pomiar zmian w docelowym genie (preferencyjnie przy użyciu metod umożliwiających pomiar zmian w poszczególnych komórkach, np. cytometrii przepływowej lub mikroskopii). Jeżeli miareczkowanie kontroli i lentiwirusa różni się znacznie w limfocytach T Jurkat, objętości wykorzystane w badaniach in vivo można dostosować tak, aby osiągnąć najbardziej porównywalne zakażenie między preparatami lentiwirusa.
Głównym ograniczeniem protokołu jest obserwowany zanik Mφ otrzewnej rezydenta GFP+ w ciągu 14 dni od wstrzyknięcia lentiwirusa ip. W przypadku badań długoterminowych należy wziąć pod uwagę linie myszy ze stabilnymi zmianami genetycznymi w określonym typie komórek lub tkanek32. Na przykład, ponieważ makrofagi otrzewnowe nie wyrażają Foxp3 (białka T-Reg), wykorzystaliśmy myszy Foxp3-DTR-eGFP33 i potwierdziliśmy, że ekspresja GFP utrzymuje się w otrzewnowym Mφ po 21 dniach od infekcji (Figura 3F). Należy jednak zauważyć, że lentiwirusy zawierają inne obce składniki, a to wydłużenie trwałości zakażonych komórek u myszy Foxp3-DTR-GFP może nie być trwałe. Dodatkowym słabym punktem tej metody jest niski poziom stanu zapalnego, który można zaobserwować w jamie otrzewnej po wstrzyknięciu lentiwirusa, czego dowodem jest napływ neutrofili po 4 godzinach od wstrzyknięcia (ryc. 5D), co może oznaczać, że powtarzające się infekcje przyspieszyłyby związaną ze stanem zapalnym utratę Mφ rezydenta otrzewnej wyrażającego GFP. Chociaż nie wykryliśmy interferonów typu I (IFN) w jamie otrzewnej, wcześniej wykazano, że cząstki lentiwirusa pseudotypowane VSV-G indukują niektóre geny stymulowane przez IFN w ludzkim Mφ przy braku wykrywalnych IFN34. Należy to wziąć pod uwagę przy stosowaniu tego protokołu do eksperymentów badających przeciwwirusowe odpowiedzi immunologiczne. Wystąpienie ostrego i utrzymującego się stanu zapalnego po wstrzyknięciu doiniegdzie preparatu lentiwirusa może wskazywać na zanieczyszczenie preparatu.
Obszary rozwiązywania problemów obejmują: 1) w przypadku niskiego miana lentiwirusa należy zapewnić zdrowie komórek HEK293T i skuteczną transfekcję (np. ekspresję markera, jeśli jest obecny, w komórkach HEK293T). Jeśli wskaźnik infekcji pozostaje niski, należy wziąć pod uwagę rozmiar konstrukcji. Konstrukty z większymi wstawkami lub bardziej złożonymi strukturami drugorzędowymi mogą wpływać na końcowe miano lentiwirusa i zakaźność24. Dlatego każdy konstrukt powinien być testowany niezależnie i równolegle do odpowiedniego wektora kontrolnego; 2) Jeśli wymagana jest duża ilość lentiwirusa, zaleca się przygotowanie wielu kolb T175 z komórkami HEK293T i odpowiednie zwiększenie produkcji. Aby uniknąć różnic w preparatach lentiwirusa, najlepszą praktyką jest łączenie końcowych kolekcji przed porcjowaniem i przechowywaniem. W przypadku tak dużej produkcji mieszanina plazmidów (sekcja 2) powinna być przygotowana w probówkach o pojemności 50 ml, aby zapewnić skuteczne wymieszanie składników.
Pomimo szerokiego tropizmu, pseudotypowane cząstki lentiwirusa VSV-G głównie celują w makrofagi tkankowe, jak wykazano wcześniej dla pęcherzyków płucnych35, a tutaj18 dla pMФ, gdy są podawane odpowiednimi drogami. Zmiany w otoczce na cząstkach lentiwirusa mogą w niektórych przypadkach powodować zmniejszoną transdukcję makrofagów in vivo36 i nie są konieczne dla tego protokołu. W porównaniu z innymi podejściami wirusowymi do manipulacji genami in vivo w makrofagach (omówionymi w37), zastosowanie wektorów lentiwirusowych zapewnia stabilną integrację transgenu w makrofagach tkankowych35, wydajną ekspresję transgenu i największy limit wielkości wektora (około 8 Kb).
Mφ otrzewnej odgrywają ważną rolę w zapobieganiu, powstawaniu, progresji i ustępowaniu różnych chorób, w tym raka jamy brzusznej, zapalenia trzustki i zapalenia otrzewnej38. Protokół ten opisuje skuteczne narzędzie do modyfikacji genów u myszy pMφ, umożliwiając badanie procesów biologicznych stojących za tymi patologiami w fizjologicznie istotnym mikrośrodowisku. Podczas gdy wektory lentiwirusowe same w sobie stają się narzędziem zainteresowania w interwencjach klinicznych39, ze względu na pochodzenie od wirusa niedoboru odporności i stabilną integrację genomu, obawy dotyczące bezpieczeństwa utrudniają ich terapeutyczne wdrażanie. Pogłębienie wiedzy na temat odpowiedzi makrofagów na modulację genów lentiwirusa może przyczynić się do rozwoju tego wysoce skutecznego narzędzia w warunkach klinicznych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie zostało sfinansowane, w całości lub w części, przez Wellcome Trust Investigator Award [107964/Z/15/Z]. PRT jest również wspierany przez brytyjski Instytut Badań nad Demencją. Magister nauk biologicznych jest wspierany przez Radę ds. Badań Biotechnologii i Nauk Biologicznych Discovery Fellowship (BB/T009543/1). Dla celów otwartego dostępu autor zastosował publiczną licencję praw autorskich CC BY do każdej wersji manuskryptu zaakceptowanej przez autora powstałej w wyniku tego zgłoszenia. L.C.D jest wykładowcą na Uniwersytecie w Swansea i honorowym pracownikiem naukowym Uniwersytetu w Cardiff. Praca ta jest wspierana przez prace przeprowadzone przez Ipseiz et al. 202018.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,05% Trypsyna-EDTA (1x) (Trypsyna 500 mg/L lub 0,02 mM) | Thermo Fisher Scientific | 25300054 | |
| 0,22 μ m sterylny filtr millex GP | Merck | SLGS033SS | |
| 0,45 μ m sterylny filtr millex GP | Merck | SLHP033RS | |
| 0,5 ml strzykawka insulinowa U-100 z igłą, 0,33 mm x 12,7 mm (29 G) | BD | 324892 | |
| 1 litrowy pojemnik na ostre | Nie | ||
| Przeciwciało 2,4G2 (TruStain FcX anti-mouse CD16/32) | Biolegend | 101320 | |
| 40 μ m sitko | Thermo Fisher Scientific | 22363547 | |
| AimV medium (klasa badawcza), AlbuMax Suplement | Thermo Fisher Scientific | 31035025 | |
| Bufor blokujący | przygotowany we własnym zakresie | ||
| Pożywka z tioglikolanu browarniczego | Sigma-Aldrich | B2551 | 4% roztwór podstawowy przygotowany w wodzie, autoklawowany i przechowywany w stanie zamrożonym. |
| CD11b | Biolegend | 101222 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| CD11b | BD | 550993 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| CD11c | Biolegend | 117317 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| CD11c | Biolegend | 117333 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| CD19 | BD | 560375 | Patrz tabela 1 w celu uzyskania informacji na temat rozcieńczenia i stężenia |
| CD19 | Biolegend | 152410 | tabela 1 w celu sprawdzenia rozcieńczenia i stężenia |
| CD226 | Biolegend | 128808 | rozcieńczeniem i stężeniem |
| CD3e | BD | 560527 | Patrz tabela 1 w celu zapoznania się z rozcieńczeniem i stężeniem |
| CD3e | Biolegend | 152313 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| CD4 | Biolegend | 100412 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| CD73 | eBioscience | 16-0731-82 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| CD8a | eBioscience | 48-0081-82 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| Kolba do hodowli komórkowych (T175 fask 175, 175 cm2, 550 mL) | Greiner Bio One | 658175 | |
| Probówki wirówkowe, stożkowe probówki denne 25 mm x 89 mm | Wirówki do redlic Beckman Coulter | 358126 | |
| Beckman Coulter | i wirówka TC | ||
| Kolagenaza typ IV | Sigma-Aldrich | C5138 | |
| Stożkowe probówki wirówkowe (15 ml i 50 ml) | Greiner Bio One | 11512303 & 11849650 | |
| Cryotubes | Greiner Bio One | 123277 | lub cryotubes |
| DMEM medium (1x) + 4,5g/L D-glukozy, 400 &mikro; M L-glutamina | Thermo Fisher Scientific | 41965-062 | |
| Dnaza I | Sigma-Aldrich | 11284932001 | |
| Odczynnik do transfekcji Effectene | Qiagen | 301425 | |
| F4/80 | Biolegend | 123123 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| F4/80 | Biolegend | 123133 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| F4/80 | Biolegend | 123147 | Patrz Tabela 1 w celu uzyskania informacji na temat rozcieńczenia i stężenia |
| FceR1 | eBioscience | 48-5898-80 | Patrz Tabela 1 w celu rozcieńczenia i stężenia |
| Surowicy cielęcej płodu (FCS) | Thermo Fisher Scientific | 10270-106 | inaktywowany termicznie przez 30 min w temperaturze 56 stopni; C i sterylne przefiltrowane przez 0,22 μ m filtr |
| Cytometr przepływowy | Thermo Fisher Scientific | ||
| przygotowany we własnym zakresie | |||
| Fluorescencyjny mikroskop do hodowli tkanek | Thermo Fisher Scientific | EVOS FL | |
| Kleszcze | N/A | N/A | Preferencje użytkownika |
| Zrównoważony roztwór soli Hanka (HBSS) | Gibco, Life Technologies | 14175-053 | |
| HEK293T linia | komórkowa | uprawiane przez co najmniej tydzień przed transfekcją. Wolny od mykoplazmy | |
| HIV-1 Antygen rdzeniowy | Beckman Coulter | 6604667 | |
| Hialuronidaza | Sigma-Aldrich | H3506 | |
| Peeling chirurgiczny Hydrex, glukonian chlorheksydu 4% w/v środek do mycia skóry | Ecolab | 3037170 | |
| I-A/I-E | Biolegend | 107625 | Patrz tabela 1, aby zapoznać się z rozcieńczeniem i stężeniem |
| ICAM1 | Becton Dickinson | 554970 | Patrz Tabela 1 w celu zapoznania się z rozcieńczeniem i stężeniem |
| linii | Jurkat hodowanej przez co najmniej tydzień przed użyciem. Wolny od mykoplazmy | ||
| ŻYWY/MARTWY zestaw do barwienia martwych komórek w bliskiej podczerwieni | Thermo Fisher Scientific | L34975 | |
| Ly6G | Biolegend | 127615 | Patrz Tabela 1, aby zapoznać się z rozcieńczeniem i stężeniem |
| Myszy | używały tutaj samic C57BL/6 w wieku 8-12 tygodni (Charles Rivers), chyba że określono inaczej | ||
| Pipety mikrokapilarne (zakres objętości 0,5-1,000 μ L) | Fisher Scientific & Starlab | 11963466 & 11943466 & 11973466 & S1111-3700 | |
| NK1.1 | Biolegend | 108724 | Patrz Tabela 1 w celu zapoznania się z rozcieńczeniem i stężeniem |
| Paraformaldehydu | Sigma-Aldrich | P6148-500G | przygotowanego do 2% w/v w PBS |
| pCMV-Δ Plazmid pakujący R8.91 | Zuffrey, R., et al. 1997 | Oporność na ampicilinę. | |
| Penicylina / Streptomycyna (100x, 10 000 U / ml) | Thermo Fisher Scientific | 15140122 | |
| szalka Petriego | Greiner Bio One | 664160 | |
| plazmid pHR'SIN-cPPT-SEW | Rosas, M. i in. 2014 | Koduje marker EGFP za promotorem SFFV i przed wzmacniaczem wirusa hepatitiv Woodchuck. Oporność na ampicilinę. | |
| pMD2.G | Naldini, L. i wsp. 1996 | koduje otoczkę g-glikoproteiny wirusa pęcherzykowego zapalenia jamy ustnej (VSV-G). Oporność na ampicilinę. | |
| Kontrola izotypu IgG1 szczura | Becton Dickinson | 550617 | Patrz Tabela 1 dla rozcieńczenia i stężenia |
| Surowica szczura | Sigma-Aldrich | R9759-10ML | |
| Bufor do lizy ACK z krwią czerwoną | przygotowany w domu | ||
| RPMI 1640 pożywka (1x) + 400 uM L-glutamina | Thermo Fisher Scientific | 21875-091 | |
| Saponin | Sigma-Aldrich | S4521 | |
| SiglecF | BD | 562681 | Patrz Tabela 1 w celu zapoznania się z rozcieńczeniem i stężeniem |
| Podchloryn sodu Tabletki (wybielacz, 2,000 ppm) | Guest Medical | H8818 | |
| Sterylna 24-dołkowa płytka do hodowli komórkowej | Greiner Bio One | 662160 | |
| Sterylny PBS (DPBS) firmy Dulbecco (1x) Mg++ i Ca2+ - bezpłatnie | Thermo Fisher Scientific | 14190144 | |
| Sterylne EDTA | Thermo Fisher Scientific | 15575020 | |
| Sterylne jednorazowe pipety transferowe VWR (23,0 ml, 30 cm) | VWR | 612-4515 | |
| Sacharoza | Thermo Fisher Scientific | ||
| N/A | /A | Preferencje użytkownika | |
| Strzykawki (50 ml i 1 0 mL) | Fisher Scientific | 10084450 & 768160 | |
| Tim4 | Biolegend | 130007 | Patrz Tabela 1, aby zapoznać się z rozcieńczeniem i zatężeniem |
| 96-dołkowej płytki do hodowli komórkowej z dnem U | Greiner Bio One | 650180 |
Bibliografia
- Wynn, T. A., Chawla, A., Pollard, J. W. Macrophage biology in development, homeostasis and disease. Nature. 496 (7446), 445-455 (2013).
- Jantsch, J., Binger, K. J., Muller, D. N., Titze, J. Macrophages in homeostatic immune function. Front Physiol. 5, 146(2014).
- Wynn, T. A., Vannella, K. M. Macrophages in tissue repair, regeneration, and fibrosis. Immunity. 44 (3), 450-462 (2016).
- Ginhoux, F., Guilliams, M. Tissue-resident macrophage ontogeny and homeostasis. Immunity. 44 (3), 439-449 (2016).
- Epelman, S., Lavine, K. J., Randolph, G. J. Origin and functions of tissue macrophages. Immunity. 41 (1), 21-35 (2014).
- Amit, I., Winter, D. R., Jung, S. The role of the local environment and epigenetics in shaping macrophage identity and their effect on tissue homeostasis. Nat Immunol. 17 (1), 18-25 (2016).
- Gosselin, D., et al. Environment drives selection and function of enhancers controlling tissue-specific macrophage identities. Cell. 159 (6), 1327-1340 (2014).
- Lavin, Y., et al. Tissue-resident macrophage enhancer landscapes are shaped by the local microenvironment. Cell. 159 (6), 1312-1326 (2014).
- Davies, L. C., et al. Peritoneal tissue-resident macrophages are metabolically poised to engage microbes using tissue-niche fuels. Nat Commun. 8 (1), 2047(2017).
- Shi, J., Hua, L., Harmer, D., Li, P., Ren, G. Cre driver mice targeting macrophages. Methods Mol Biol. 1784, 263-275 (2018).
- Wang, X., et al. Recent advances in lentiviral vectors for gene therapy. Sci China Life Sci. 64 (11), 1842-1857 (2021).
- Kosaka, Y., et al. Lentivirus-based gene delivery in mouse embryonic stem cells. Artif Organs. 28 (3), 271-277 (2004).
- Naldini, L., et al. In vivo gene delivery and stable transduction of nondividing cells by a lentiviral vector. Science. 272 (5259), 263-267 (1996).
- Yamashita, M., Emerman, M. Capsid is a dominant determinant of retrovirus infectivity in nondividing cells. J Virol. 78 (11), 5670-5678 (2004).
- Wilson, A. A., et al. Lentiviral delivery of RNAi for in vivo lineage-specific modulation of gene expression in mouse lung macrophages. Mol Ther. 21 (4), 825-833 (2013).
- Burns, J. C., Friedmann, T., Driever, W., Burrascano, M., Yee, J. K. Vesicular stomatitis virus G glycoprotein pseudotyped retroviral vectors: concentration to very high titer and efficient gene transfer into mammalian and nonmammalian cells. Proc Natl Acad Sci U S A. 90 (17), 8033-8037 (1993).
- Finkelshtein, D., Werman, A., Novick, D., Barak, S., Rubinstein, M. LDL receptor and its family members serve as the cellular receptors for vesicular stomatitis virus. Proc Natl Acad Sci U S A. 110 (18), 7306-7311 (2013).
- Ipseiz, N., et al. Effective in vivo gene modification in mouse tissue-resident peritoneal macrophages by intraperitoneal delivery of lentiviral vectors. Mol Ther Methods Clin Dev. 16, 21-31 (2020).
- Rosas, M., et al. The transcription factor Gata6 links tissue macrophage phenotype and proliferative renewal. Science. 344 (6184), 645-648 (2014).
- BeckmanCoulter. , https://www.mybeckman.uk/resources/technologies/centrifugation/principles/rotor-balancing (2023).
- JoVE Science Education Database. Lab Animal Research. Rodent Handling and Restraint Techniques. , JoVE, Cambridge, MA. (2023).
- Zufferey, R., Nagy, D., Mandel, R. J., Naldini, L., Trono, D. Multiply attenuated lentiviral vector achieves efficient gene delivery in vivo. Nat Biotechnol. 15 (9), 871-875 (1997).
- Nasri, M., Karimi, A., Allahbakhshian Farsani, M. Production, purification and titration of a lentivirus-based vector for gene delivery purposes. Cytotechnology. 66 (6), 1031-1038 (2014).
- Optimized production and concentration of lentiviral vectors containing large inserts. J Gene Med. al Yacoub, N., Romanowska, M., Haritonova, N., Foerster, J. 9 (7), 579-584 (2007).
- Malim, M. H., Bieniasz, P. D. HIV restriction factors and mechanisms of evasion. Cold Spring Harb Perspect Med. 2 (5), a006940(2012).
- Sonza, S., et al. Susceptibility of human monocytes to HIV type 1 infection in vitro is not dependent on their level of CD4 expression. AIDS Res Hum Retroviruses. 11 (7), 769-776 (1995).
- Kingston, R. E., Chen, C. A., Rose, J. K. Calcium phosphate transfection. Curr Protoc Mol Biol. Chapter 9, Unit 9.1(2003).
- Brown, L. Y., Dong, W., Kantor, B. An Improved protocol for the production of lentiviral vectors. STAR Protoc. 1 (3), 100152(2020).
- Moce-Llivina, L., Jofre, J., Muniesa, M. Comparison of polyvinylidene fluoride and polyether sulfone membranes in filtering viral suspensions. J Virol Methods. 109 (1), 99-101 (2003).
- Jiang, W., et al. An optimized method for high-titer lentivirus preparations without ultracentrifugation. Sci Rep. 5, 13875(2015).
- Czubala, M. A., et al. TGFbeta induces a SAMHD1-independent post-entry restriction to HIV-1 infection of human epithelial langerhans cells. J Invest Dermatol. 136 (10), 1981-1989 (2016).
- Bouabe, H., Okkenhaug, K. Gene targeting in mice: a review. Methods Mol Biol. 1064, 315-336 (2013).
- Kim, J. M., Rasmussen, J. P., Rudensky, A. Y. Regulatory T cells prevent catastrophic autoimmunity throughout the lifespan of mice. Nat Immunol. 8 (2), 191-197 (2007).
- Decalf, J., et al. Sensing of HIV-1 entry triggers a Type I Interferon response in human primary macrophages. J Virol. 91 (15), e00147-e00217 (2017).
- Wilson, A. A., et al. Amelioration of emphysema in mice through lentiviral transduction of long-lived pulmonary alveolar macrophages. J Clin Invest. 120 (1), 379-389 (2010).
- Markusic, D. M., van Til, N. P., Hiralall, J. K., Elferink, R. P., Seppen, J. Reduction of liver macrophage transduction by pseudotyping lentiviral vectors with a fusion envelope from Autographa californica GP64 and Sendai virus F2 domain. BMC Biotechnol. 9, 85(2009).
- Burke, B., Sumner, S., Maitland, N., Lewis, C. E. Macrophages in gene therapy: cellular delivery vehicles and in vivo targets. J Leukoc Biol. 72 (3), 417-428 (2002).
- Bain, C. C., Jenkins, S. J. The biology of serous cavity macrophages. Cell Immunol. 330, 126-135 (2018).
- Milone, M. C., O'Doherty, U. Clinical use of lentiviral vectors. Leukemia. 32 (7), 1529-1541 (2018).
Przedruki i uprawnienia
