Tutaj opisujemy protokół, rozszerzoną metodę hodowli komórek śródbłonka (EECM), która umożliwia różnicowanie pluripotencjalnych komórek macierzystych do komórek podobnych do komórek mikronaczyniowych śródbłonka mózgu (BMEC). Komórki te wykazują ekspresję cząsteczki adhezyjnej komórek śródbłonka, a zatem są modelem bariery krew-mózg odpowiednim do badania interakcji komórek odpornościowych in vitro.
Artykuł metodologiczny
Różnicowanie indukowanych przez człowieka pluripotencjalnych komórek macierzystych do komórek podobnych do mikronaczyń śródbłonka mózgu o dojrzałym fenotypie immunologicznym
W tym artykule
Podsumowanie
Streszczenie
Dysfunkcja bariery krew-mózg (BBB) jest patologicznym znakiem rozpoznawczym wielu chorób neurodegeneracyjnych i neurozapalnych wpływających na ośrodkowy układ nerwowy (OUN). Ze względu na ograniczony dostęp do próbek BBB związanych z chorobą, nadal nie wiadomo dokładnie, czy nieprawidłowe funkcjonowanie bariery krew-mózg jest przyczyną rozwoju choroby, czy raczej konsekwencją procesu neurozapalnego lub neurodegeneracyjnego. Ludzkie indukowane pluripotencjalne komórki macierzyste (hiPSC) stanowią zatem nową okazję do stworzenia modeli BBB in vitro od zdrowych dawców i pacjentów, a tym samym do zbadania specyficznych dla choroby cech bariery krew-mózg u poszczególnych pacjentów. Ustalono kilka protokołów różnicowania w celu uzyskania komórek podobnych do komórek mikronaczyniowych śródbłonka mózgu (BMEC) z hiPSC. Rozważenie konkretnego pytania badawczego jest niezbędne do prawidłowego wyboru odpowiedniego protokołu różnicowania BMEC. W tym miejscu opisujemy metodę rozszerzonej hodowli komórek śródbłonka (EECM), która jest zoptymalizowana pod kątem różnicowania hiPSC w komórki podobne do BMEC o dojrzałym fenotypie immunologicznym, co pozwala na badanie interakcji komórka odpornościowa - BBB. W tym protokole hiPSC są najpierw różnicowane w śródbłonkowe komórki progenitorowe (EPC) poprzez aktywację sygnalizacji Wnt / β-kateniny. Otrzymana hodowla, która zawiera komórki przypominające mięśnie gładkie (SMLC), jest następnie sekwencyjnie pasażowana w celu zwiększenia czystości komórek śródbłonka (EC) i wywołania właściwości specyficznych dla bariery krew-mózg. Jednoczesna hodowla EECM-BMEC z tymi SMLC lub kondycjonowaną pożywką z SMLC pozwala na odtwarzalną, konstytutywną i regulowaną cytokiną ekspresję cząsteczek adhezyjnych EC. Co ważne, komórki podobne do EECM-BMEC mają właściwości barierowe porównywalne z pierwotnymi ludzkimi BMEC, a ze względu na ekspresję wszystkich cząsteczek adhezyjnych EC, komórki podobne do EECM-BMEC różnią się od innych modeli BBB pochodzących z hiPSC in vitro. Komórki podobne do EECM-BMEC są zatem modelem z wyboru do badania potencjalnego wpływu procesów chorobowych na poziomie bariery krew-mózg, z wpływem na interakcję komórek odpornościowych w spersonalizowany sposób.
Wprowadzenie
Jednostka nerwowo-naczyniowa (NVU) w centralnym układzie nerwowym (OUN) składa się z wysoce wyspecjalizowanych komórek śródbłonka mikronaczyniowego (ECs), perycytów osadzonych w błonie podstawnej śródbłonka, jak również błony podstawnej miąższu i stóp końcowych astrocytów1. W obrębie NVU komórki śródbłonka mikronaczyniowego mózgu (BMEC) są kluczowymi elementami tworzącymi barierę krew-mózg (BBB). BMEC tworzą złożone i ciągłe połączenia ścisłe i mają wyjątkowo niską aktywność pinocytotyczną w porównaniu z mikronaczyniowymi EC w narządach obwodowych, co pozwala BBB hamować wolną parakomórkową dyfuzję cząsteczek rozpuszczalnych w wodzie do OUN. Ekspresja specyficznych transporterów napływu i pomp odpływowych przez BMEC zapewnia pobieranie i eksport składników odżywczych i szkodliwych cząsteczek, odpowiednio, z klasy CNS2. Ponadto bariera krew-mózg ściśle kontroluje wnikanie komórek odpornościowych do OUN poprzez ekspresję niskich poziomów cząsteczek adhezyjnych śródbłonka, kluczowych dla transportu komórek odpornościowych do CNS3. W warunkach fizjologicznych poziomy ekspresji cząsteczek adhezyjnych na powierzchni BMEC, takich jak cząsteczka adhezji międzykomórkowej-1 (ICAM-1) i cząsteczka adhezji komórek naczyniowych-1 (VCAM-1), są niskie, ale poziomy te wzrastają w niektórych zaburzeniach neurologicznych2. Rozkład morfologiczny i funkcjonalny bariery krew-mózg występuje w wielu chorobach neurologicznych, takich jak udar mózgu4, stwardnienie rozsiane (MS)5 i kilka chorób neurodegeneracyjnych6,7,8. Szczegółowe badania charakterystyki komórkowej i molekularnej BMEC zarówno w warunkach fizjologicznych, jak i patologicznych są podejściem do identyfikacji nowych strategii terapeutycznych ukierunkowanych na barierę krew-mózg.
Do niedawna do badania BBB używano podstawowych lub nieśmiertelnych BMEC ludzi i gryzoni. Nie jest jednak jasne, czy wnioski oparte na zwierzęcych modelach BBB można łatwo zastosować do ludzkiego BBB, ponieważ ekspresja kilku ważnych cząsteczek, w tym cząsteczek adhezyjnych i rozpuszczonych białek nośnikowych, różni się między ludźmi a gryzoniami9,10. Chociaż ludzkie linie BMEC, takie jak hCMEC/D3, wyrażają odpowiednie poziomy cząsteczek adhezyjnych11, te unieśmiertelnione BMEC na ogół nie mają skomplikowanych ścisłych połączeń i solidnych właściwości barierowych12. Podstawowe ludzkie BMEC są przydatne do badania funkcji barierowych13, ale nie są łatwo dostępne dla wszystkich badaczy. Co więcej, pierwotne BMEC od pacjentów mogą być trudne do uzyskania, ponieważ muszą być one pobrane za pomocą biopsji mózgu lub operacji, która jest wykonywana tylko w określonych warunkach klinicznych.
Ostatnie postępy w technologii komórek macierzystych umożliwiły różnicowanie różnych typów komórek ludzkich, wynikających ze źródeł komórek macierzystych, takich jak ludzkie indukowane pluripotencjalne komórki macierzyste (hiPSC). Modele pochodzące z hiPSC pozwalają nam ustalić modele patofizjologiczne przy użyciu próbek pochodzących od pacjenta. Kilka typów komórek pochodzących z hiPSC można połączyć w celu stworzenia autologicznych kokultur lub organoidów, które lepiej naśladują warunki fizjologiczne. Kilka powszechnie stosowanych protokołów14,15,16,17,18,19 mogą być używane do różnicowania komórek podobnych do BMEC pochodzących z hiPSC, które mają silne właściwości bariery dyfuzyjnej z ekspresją transporterów specyficznych dla BBB i pomp wypływowych, i są przydatne do badania parakomórkowej dyfuzji małych Molekuły, mechanizmy transportu molekularnego i dostarczanie leków do mózgu20,21. Jednak wcześniejsze badania wykazały, że szeroko stosowane komórki podobne do BMEC pochodzące z hiPSC nie mają ekspresji kluczowych cząsteczek adhezyjnych śródbłonka, w tym VCAM-1, selektyn i ICAM-2, które są odpowiedzialne za pośredniczenie w interakcjach między komórkami odpornościowymi a klasą BBB22. Ponadto doniesiono, że poprzednie BMEC pochodzące z hiPSC wykazują mieszane cechy śródbłonka i nabłonka na poziomie transkrypcji23. W związku z tym opracowaliśmy metodę rozszerzonej hodowli komórek śródbłonka (EECM), nowatorski protokół, który umożliwia różnicowanie hiPSC w komórki podobne do BMEC, które przypominają pierwotne ludzkie BMEC pod względem morfologii, charakterystyki bariery i ekspresji cząsteczki adhezyjnej śródbłonka. Protokół ten opisuje szczegółowe procedury metodologiczne różnicowania hiPSC do komórek podobnych do BMEC wykazujących dojrzały fenotyp immunologiczny.
Protokół
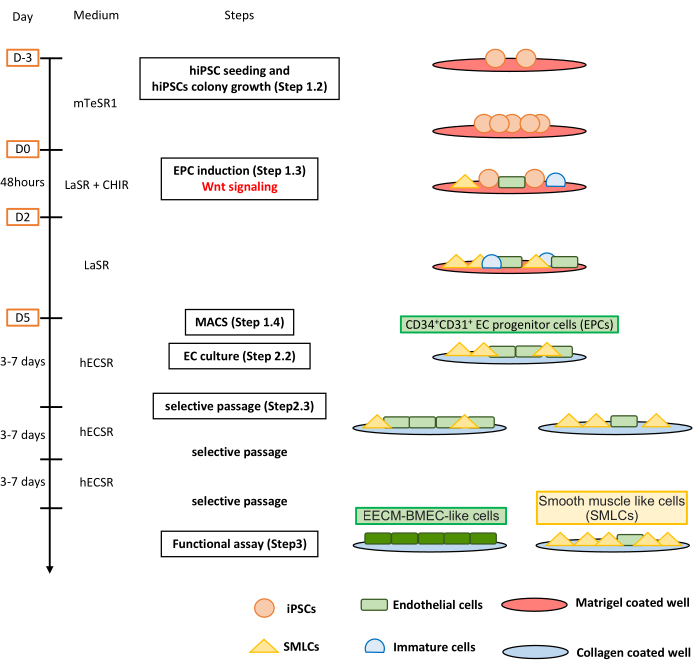
Rysunek 1: Przegląd protokołu. Manuskrypt przedstawia szczegółowy protokół różnicowania hiPSC w komórki przypominające EECM-BMEC. Schematy po prawej stronie przedstawiają populacje komórek na każdym etapie. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Linia hiPSC, HPS1006, została udostępniona przez RIKEN BRC w ramach National Bio-Resource Project MEXT/AMED w Japonii.
1. Indukcja różnicowania hiPSC w komórki progenitorowe śródbłonka (EPCs)
- Płytki pokryte macierzą zewnątrzkomórkową (ECM) i odczynniki
- Przygotować płytki 12-dołkowe pokryte macierzą błony podstawnej, rozdzielając 2,5 mg żelu macierzy do probówek wirówkowych o pojemności 50 mL w celu przechowywania w temperaturze -20 °C przez maksymalnie 6 miesięcy. Do probówki dodać 30 mL zimnej pożywki Dulbecco's modified Eagle's medium/nutrient mixture F-12 (DMEM/F12), przechowywanej w lodówce (4 °C). Mieszać delikatnie pipetując, aż żel się rozpuści, a następnie dodać 500 µL roztworu do każdego dołka płytki 12-dołkowej. Umieścić płytkę w inkubatorze (37 °C, 5% CO2) na co najmniej 1 h.
UWAGA: Żel macierzy błony podstawnej jest wrażliwy na temperaturę i należy z nim postępować zgodnie z instrukcjami producenta dotyczącymi rozdzielania na alikwoty i pokrywania płytek. Stężenie białek macierzy zewnątrzkomórkowej może różnić się między partiami. Aby zapewnić dokładność, należy sprawdzić dokładne stężenie w certyfikacie jakości dla konkretnej partii, korzystając z numeru serii. Na przykład, jeśli dokładne stężenie wynosi 10,0 mg/mL, należy użyć 250 µL żelu, aby uzyskać łącznie 2,5 mg. - Przygotować roztwór stokowy inhibitora kinazy rho (ROCK), rozpuszczając inhibitor ROCK w sterylnej wodzie do stężenia 10 mM (Tabela 1). Rozdzielić roztwór stokowy na alikwoty o objętości 100-200 µL i przechowywać w -20 °C, aby uniknąć cykli zamrażania i rozmrażania.
- Przygotować roztwór stokowy kwasu L-askorbinowego o stężeniu 100 mg/mL, rozpuszczając 5 g kwasu L-askorbinowego w 50 mL sterylnej wody i przechowując w -20 °C (Tabela 1). Dodać 6,25 mL glutaminy i 305 µL roztworu stokowego kwasu L-askorbinowego do 500 mL pożywki advanced DMEM/F12, aby przygotować pożywkę LaSR24 (Tabela 1). Przechowywać w temperaturze 2-8 °C przez maksymalnie 2 tygodnie.
- Przygotować roztwór CHIR99021, rozpuszczając CHIR99021 w nierozcieńczonym dimetylosulfoksydzie (DMSO) do końcowego stężenia 10 mM (Tabela 1). Rozdzielić roztwór na alikwoty o objętości 100-200 µL, aby uniknąć cykli zamrażania i rozmrażania, i przechowywać w -20 °C przez maksymalnie 1 rok. Robocze alikwoty roztworu stokowego przechowywać w 4 °C przez maksymalnie 1 miesiąc.
- Przygotować pożywkę DMEM/F12-10, dodając 50 mL inaktywowanej ciepłem płodowej surowicy bydlęcej do 450 mL DMEM/F12. Przechowywać pożywkę w temperaturze 2-8 °C przez maksymalnie 1 miesiąc (Tabela 1).
- Przygotować bufor przepływowy-1 (flow buffer-1), dodając 33,3 mL 7,5% albuminy surowicy bydlęcej (BSA) do 467 mL soli fizjologicznej z buforem fosforanowym Dulbecco (PBS) (Tabela 1). Przechowywać w temperaturze 2-8 °C przez maksymalnie 6 miesięcy.
- Przygotować płytki 12-dołkowe pokryte macierzą błony podstawnej, rozdzielając 2,5 mg żelu macierzy do probówek wirówkowych o pojemności 50 mL w celu przechowywania w temperaturze -20 °C przez maksymalnie 6 miesięcy. Do probówki dodać 30 mL zimnej pożywki Dulbecco's modified Eagle's medium/nutrient mixture F-12 (DMEM/F12), przechowywanej w lodówce (4 °C). Mieszać delikatnie pipetując, aż żel się rozpuści, a następnie dodać 500 µL roztworu do każdego dołka płytki 12-dołkowej. Umieścić płytkę w inkubatorze (37 °C, 5% CO2) na co najmniej 1 h.
- Wysiew zsingularyzowanych hiPSC i ekspansja do różnicowania w EPC (Dzień -3 do Dnia -1)
- Rozpocząć różnicowanie, gdy kolonie hiPSC na płytce 6-dołkowej nie wykazują spontanicznego różnicowania i osiągną odpowiednią gęstość do pasażowania, zazwyczaj około 80% konfluencji (2,5-3,5 x 10⁶ komórek). Uważnie monitorować komórki spontanicznie zróżnicowane pod mikroskopem, aby ocenić, czy wymagane są wielokrotne pasażowania w celu wyeliminowania komórek niezróżnicowanych. Informacje dotyczące pożywki do hodowli komórkowych i macierzy zewnątrzkomórkowej znajdują się w uwadze poniżej kroku 1.4.15.
- Odssać pożywkę, dodać 1 mL odczynnika dysocjującego do dołków i inkubować przez 5-7 min w 37 °C. Zdysocjować i zsingularyzować komórki, delikatnie pipetując roztwór odczynnika dysocjującego nad powierzchnią dołków dwa lub trzy razy.
- Przenieść odspojone komórki do probówki 15 mL zawierającej 4 mL pożywki do utrzymania hiPSC i dokładnie resuspender komórki. Odstawić alikwot 10 µL do zliczenia komórek.
- Osadzić komórki poprzez wirowanie przez 5 min przy 200 x g w temperaturze 20-25 °C. Zliczyć komórki i obliczyć wymaganą objętość, aby osiągnąć odpowiednią gęstość hiPSC (75-400 x 103 na dołek) na płytce 12-dołkowej pokrytej macierzą błony podstawnej (krok 1.1.1).
- Odssać roztwór pokrywający z dołków i dodać 1 mL pożywki hiPSC zawierającej 10 µM inhibitora ROCK do każdego dołka (rozcieńczenie 1:1 000). Po wirowaniu odessać nadsącz i zdysocjować osad w 1 mL pożywki hiPSC.
- Dodać wymaganą objętość hiPSC, wyznaczoną w kroku 1.2.4, do każdego dołka płytki 12-dołkowej. Do zróżnicowania jednego klonu hiPSC może wystarczyć od dwóch do czterech płytek 12-dołkowych. Patrz krok 1.2.4 w celu określenia liczby płytek wymaganych do wysiewu komórek.
- Umieścić płytkę w inkubatorze (37 °C, 5% CO2). Równomiernie rozłożyć komórki, delikatnie przesuwając płytkę w przód i w tył, a następnie z boku na bok w inkubatorze.
- Następnego dnia (tj. Dzień -2) wymienić pożywkę na 2 mL pożywki do utrzymania hiPSC bez inhibitora ROCK. Kolejnego dnia (Dzień -1) wymienić pożywkę na 2 mL świeżej pożywki do utrzymania hiPSC.
- Indukcja EPC za pomocą inhibitora kinazy 3 syntazy glikogenu (GSK-3) CHIR99021 (Dzień 0 do Dnia 5)
- W Dniu 0 zastąpić pożywkę do utrzymania hiPSC w każdym dołku 2 mL pożywki LaSR zawierającej 8 µM CHIR99021.
- W Dniu 1 odessać pożywkę i dodać 2 mL świeżej pożywki LaSR zawierającej 8 µM CHIR99021.
- W Dniach 2, 3 i 4 zastąpić pożywkę 2 mL świeżej pożywki LaSR bez CHIR99021.
- Magnetyczna separacja komórek (MACS) w celu oczyszczenia CD31+ EPC (Dzień 5)
- W Dniu 5 odessać pożywkę, a następnie dodać 1 mL odczynnika dysocjującego do każdego dołka przed inkubacją przez 6-8 min w 37 °C.
- Zdysocjować i zsingularyzować komórki za pomocą mikropipety i przepuścić przez sito komórkowe 40 µm, aby przefiltrować zawiesinę do probówki 50 mL zawierającej 10 mL pożywki DMEM/F12-10. Zawiesinę komórkową zebraną z więcej niż dwóch płytek 12-dołkowych filtrować do co najmniej dwóch probówek 50 mL.
- Zatrzymać reakcję trawienia, dodając pożywkę DMEM/F12-10 (do 50 mL). Dokładnie wypipetować i odstawić 10 µL do zliczenia komórek. Osadzić komórki poprzez wirowanie przez 5 min przy 200 x g w temperaturze 20-25 °C.
- Po usunięciu nadsączu dodać 10 mL pożywki DMEM/F12-10 i przenieść zawiesinę komórkową do świeżych probówek 15 mL. Osadzić komórki poprzez wirowanie przez 5 min przy 200 x g w temperaturze 20-25 °C.
- Odssać nadsącz i resuspender w buforze przepływowym-1 do gęstości 1,0 x 10⁷ komórek na 100 µL buforu.
- Dodać odczynnik blokujący FcR w stosunku 1:100 i inkubować przez 5 min przed dodaniem przeciwciała CD31 znakowanego izotiocyjanianem fluoresceiny (FITC) w rozcieńczeniu 1:200. Inkubować zawiesinę przez 30 min w ciemności w temperaturze 20-25 °C.
- Dodać 10 mL buforu przepływowego-1, odstawiając 10 µL zawiesiny do analizy cytometrii przepływowej w celu określenia frakcji komórek CD31+ (Rysunek 2).
- Osadzić komórki poprzez wirowanie przy 200 x g przez 5 min w temperaturze 20-25 °C. Następnie usunąć nadsącz i resuspender do gęstości 1,0 x 10⁷ komórek na 100 µL roztworu buforu przepływowego-1. Dodać koktajl selekcyjny FITC (5 µL na 100 µL zawiesiny komórkowej). Dokładnie wymieszać pipetując i inkubować w ciemności przez 15 min w temperaturze 20-25 °C.
- Dodać 5 µL nanocząstek magnetycznych na 100 µL zawiesiny komórkowej, dobrze wypipetować i inkubować w ciemności przez 10 min w temperaturze 20-25 °C.
- Przenieść zawiesinę komórkową do probówki do cytometrii przepływowej o pojemności 5 mL i dodać bufor przepływowy-1 do uzyskania całkowitej objętości 2,5 mL. Umieścić probówkę do cytometrii przepływowej w magnesie na 5 min.
- Jednym płynnym ruchem odwrócić magnes i zlać zawiesinę komórkową zawierającą komórki, które nie zostały znakowane przeciwciałem FITC-CD31. Utrzymać magnes i probówkę w pozycji odwróconej przez 2-3 s, a następnie usunąć pozostałą ciecz. Odssać wszelkie krople z krawędzi probówki przed przywróceniem jej do pozycji pionowej.
- Wyjąć probówkę do cytometrii przepływowej z magnesu i dodać 2,5 mL buforu przepływowego-1, aby wypłukać pozostałe komórki CD31+. Resuspender komórki, delikatnie pipetując je w górę i w dół dwa lub trzy razy. Umieścić probówkę w magnesie na 5 min.
- Powtórzyć kroki 1.4.11-1.4.12 trzy razy, a następnie krok 1.4.11 jeszcze raz, aby łącznie wykonać cztery płukania.
- Wyjąć probówkę z magnesu i dodać wskazaną ilość odpowiedniej pożywki (np. bezsurowiczej pożywki dla ludzkich komórek śródbłonka [hECSR] do przedłużonej hodowli EC lub pożywki do mrożenia w celu zamrożenia) do probówki, aby resuspender oczyszczone komórki CD31+. Odstawić dwie alikwoty zawiesiny po 10 µL, jedną do zliczenia komórek, a drugą do przeprowadzenia analizy cytometrii przepływowej w celu oceny czystości komórek CD31+ w próbkach po MACS (Rysunek 2). Jeśli cytometr przepływowy nie jest dostępny natychmiast, przechowywać alikwot w 4 °C do czasu analizy.
- Jeśli kolejne kroki (aż do kroku 2) nie mogą być natychmiast wykonane, zamrozić CD31+ EPC na tym etapie. W celu ekspansji i selektywnego pasażowania EPC przejść do kroku 2.
UWAGA: Płytki 12-dołkowe pokryte witronektyną25 oraz bardziej stabilna pożywka do utrzymania hiPSC (mTeSR plus) mogą być stosowane zamiast płytek pokrytych macierzą błony podstawnej i pożywki do utrzymania hiPSC (mTeSR1). Aby przygotować płytki 12-dołkowe pokryte witronektyną, rozcieńczyć witronektynę buforem rozcieńczającym do końcowego stężenia 10 µg/mL, a następnie przenieść 500 µL rozcieńczonego roztworu do każdego dołka płytek 12-dołkowych. Pozostawić płytki w temperaturze 20-25 °C na co najmniej 1 h. Gęstość wysiewu zsingularyzowanych hiPSC jest porównywalna do tej stosowanej dla płytek pokrytych macierzą błony podstawnej. Zmiana pożywki hodowlanej lub składu macierzy może wpłynąć na proliferację i spontaniczne różnicowanie hiPSC, które zazwyczaj wymagają 1-2 tygodni na adaptację do nowych warunków hodowli. Jeśli do utrzymania hiPSC stosowana jest bardziej stabilna pożywka, można jej użyć do różnicowania EPC zamiast standardowej pożywki do utrzymania hiPSC. W takim przypadku bardziej stabilną pożywkę do utrzymania hiPSC należy wymienić w Dniu -2, aby usunąć inhibitor ROCK, a wymianę w Dniu -1 można pominąć.
2. Metoda przedłużonej hodowli komórek śródbłonka (EECM) w celu różnicowania komórek podobnych do komórek śródbłonka mikrokrążenia mózgowego (komórki BMEC-like) oraz komórek podobnych do komórek mięśni gładkich (SMLCs)
- Przygotowanie płytek pokrytych kolagenem i odczynników
- Przygotować płytki 6-dołkowe pokryte kolagenem, rozpuszczając 5 mg krystalicznego kolagenu typu IV w 5 mL sterylnej wody. Inkubować przez noc w temperaturze 4 °C przed podzieleniem na alykwoy i przechowywaniem w temperaturze -20 °C. Rozcieńczyć alykwoy kolagenu IV w sterylnej wodzie w stosunku 1:100, aby uzyskać roztwory o stężeniu 10 µg/mL, a następnie dodać 1 mL roztworu kolagenu IV (10 µg/mL) do każdego dołka płytek 6-dołkowych. Inkubować płytki przez co najmniej 30 min w temperaturze 37 °C. Płytki można przechowywać w temperaturze 37 °C do 1 tygodnia.
- Przygotować roztwór zapasowy ludzkiego czynnika wzrostu fibroblastów 2 (FGF2), rozpuszczając 500 µg FGF w 5 mL PBS Dulbecco, dodać 7,5% BSA do stężenia końcowego 0,1% i podzielić roztwór zapasowy na alykwoy o objętości 20-200 µL. Można je przechowywać w temperaturze -20 °C do 3 miesięcy (Tabela 1). Roztwory zapasowe można przechowywać w temperaturze 4 °C do 1 miesiąca; należy unikać cykli zamrażania i rozmrażania. Przygotować medium hECSR, dodając 2 mL suplementu B-27 i 20 µL FGF2 do 98 mL medium hECSR (Tabela 1). Medium hECSR można przechowywać w temperaturze 2-8 °C do 2 tygodni.
- Przygotować medium do zamrażania dla EPC, komórek typu EECM-BMEC i SMLC, dodając 15 mL płodowej surowicy bydlęcej, 5 mL DMSO i 25 µL roztworu inhibitora ROCK do 30 mL medium hECSR (Tabela 1). Medium do zamrażania można przechowywać w temperaturze 2-8 °C do 2 tygodni.
- Wysiew EPC do przedłużonej hodowli komórek śródbłonka
- Usunąć roztwór kolagenu z płytek 6-dołkowych. Następnie przenieść 1,0-2,0 x 10⁵ oczyszczonych EPC CD31+ w 2 mL medium hECSR zawierającego 5 µM inhibitora ROCK (rozcieńczenie 1:2000). Umieścić płytkę w inkubatorze (37 °C, 5% CO2). Równomiernie rozłożyć komórki, delikatnie przesuwając płytki w przód i w tył, a następnie od boku do boku.
- Następnego dnia usunąć medium hECSR zawierające inhibitor ROCK i dodać 2 mL świeżego medium hECSR bez inhibitora ROCK. Wymieniać medium hECSR co drugi dzień, aż do osiągnięcia 100% konfluencji.
UWAGA: Jeśli nie można utrzymać regularnego harmonogramu karmienia w weekend, medium można wymienić wieczorem w ostatnim dniu roboczym tygodnia i ponownie wczesnym rankiem po weekendzie.
- Selektywne pasażowanie w celu oczyszczenia komórek typu EECM-BMEC i SMLC
- Usunąć medium hECSR z płytek 6-dołkowych zawierających mieszaninę komórek śródbłonka (EC) i populacji niebędących EC. Dodać 1 mL odczynnika dysocjującego do każdego dołka.
- Uważnie monitorować morfologię komórek pod mikroskopem. Gdy komórki EC (ale nie komórki nie-EC) staną się jasne i okrągłe (zazwyczaj w ciągu 2-5 min), odkleić je, opukując krawędź płytki. Większość komórek nie-EC pozostaje przytwierdzona do płytki.
- Zebrać odklejone komórki EC za pomocą mikropipety, dbając o to, aby nie resuspenderować komórek nie-EC. Przenieść komórki EC do probówki wirówkowej 15 mL lub 50 mL zawierającej 4 mL DMEM/F12-10 na każdy 1 mL odczynnika dysocjującego.
- Dodać 2 mL medium hECSR do dołków zawierających pozostałe przytwierdzone komórki nie-EC, aby utworzyć SMLC. Umieścić płytkę w inkubatorze.
- Zmieszać zawiesinę EC w probówce wirówkowej za pomocą pipety i odłożyć 10 µL zawiesiny do zliczenia komórek. Wirować pozostałe komórki przez 5 min przy 200 x g w temperaturze 20-25 °C. Usunąć nadsącz z osadu i dodać 2 mL medium hECSR na 1,0-2,0 x 10⁵ komórek EC.
- Po usunięciu roztworu kolagenu IV z nowej płytki 6-dołkowej dodać 2 mL zawiesiny EC do każdego dołka, a następnie inkubować w temperaturze 37 °C przy 5% CO2. Aby równomiernie rozłożyć komórki na płytce, delikatnie poruszać nią w przód i w tył oraz od boku do boku na półce inkubatora.
- Wymieniać medium hECSR co drugi dzień, aż komórki EC osiągną 100% konfluencji.
- Powtarzać kroki 2.3.1-2.3.7 do czasu uzyskania czystej monowarstwy EC. Jeśli kolejne kroki nie mogą być wykonane, zamrozić komórki EC CD31+ (patrz krok 2.4.2). Aby przeanalizować funkcje EC, przejść do kroku 3.
UWAGA: Zazwyczaj potrzeba dwóch lub trzech selektywnych pasażów, aby uzyskać niemal czyste hodowle EC odpowiednie do analiz funkcjonalnych; komórki te uznajemy za komórki typu EECM-BMEC. Po więcej niż pięciu lub sześciu pasażach proliferacja komórek zazwyczaj zwalnia, choć zmienna ta zależy od linii hiPSC. - Aby hodować SMLC, wymieniać medium hECSR co drugi dzień. W celu zebrania medium warunkowanego (CM) przez SMLC, przepuszczać zebrane medium przez filtr 0,22 µm przy każdej wymianie medium. CM może być użyte do upregulacji ekspresji VCAM-1 w komórkach typu EECM-BMEC. Gromadzić SMLC-CM, aż SMLC osiągną 100% konfluencji.
- Kriokonserwacja i rozmrażanie EPC, komórek typu EECM-BMEC i SMLC
- Aby zamrozić EPC, po ostatnim płukaniu MACS (krok 1.4.13), resuspenderować EPC w medium do zamrażania zamiast w medium hECSR, przy gęstości 1,0-2,0 x 10⁶ komórek/mL. Rozdzielić 1 mL zawiesiny komórek do krioprobówek. Umieścić krioprobówki w urządzeniu do zamrażania z kontrolowaną szybkością, a następnie szybko przenieść do temperatury -80 °C. Do długoterminowego przechowywania przenieść probówki do zbiornika z ciekłym azotem od 24 do 48 h po zamrażaniu.
- Aby zamrozić komórki typu EECM-BMEC i SMLC, po usunięciu medium z dołków dodać odczynnik dysocjujący (1 mL/dołek) i inkubować płytkę w temperaturze 37 °C przy 5% CO2, aż komórki się odkleją (odpowiednio 5-7 min dla komórek typu EECM-BMEC i 20-30 min dla SMLC). Zebrać komórki do probówki wirówkowej 15 mL lub 50 mL zawierającej 4 mL DMEM/F12-10 na każdy 1 mL odczynnika dysocjującego.
- Dokładnie wymieszać za pomocą pipety i odłożyć 10 µL zawiesiny komórek do zliczenia. Osadzić komórki poprzez wirowanie przy 200 x g przez 5 min w temperaturze 20-25 °C. Usunąć nadsącz i dokładnie resuspenderować komórki w medium do zamrażania do gęstości 1,0-2,0 x 10⁶ komórek/mL. Rozdzielić 1 mL zawiesiny komórek do nowych krioprobówek.
- Umieścić krioprobówki w urządzeniu do zamrażania z kontrolowaną szybkością i natychmiast przenieść do temperatury -80 °C. Do długoterminowego przechowywania probówki można przenieść do zbiornika z ciekłym azotem od 24 do 48 h po zamrażaniu.
- W celu rozmrożenia EPC, komórek typu EECM-BMEC i SMLC, toczyć fiolki z krioprobówkami w dłoniach lub inkubować w łaźni wodnej o temperaturze 37 °C, aż komórki zostaną prawie całkowicie rozmrożone. Dodać 500 µL DMEM/F12-10 i delikatnie przenieść zawiesinę komórek do probówki 15 mL zawierającej 4 mL medium DMEM/F12-10. Przepłukać krioprobówkę raz, dodając 1 mL DMEM/F12-10, a następnie wirować komórki przy 200 x g przez 5 min w temperaturze 20-25 °C.
- Odssać nadsącz i resuspenderować osad w 2 mL medium hECSR zawierającego 5 µM inhibitora ROCK (rozcieńczenie 1:2000) do gęstości 1,0-2,0 x 10⁵ komórek na 2 mL dla EPC oraz 2,0-3,0 x 10⁵ komórek na 2 mL dla komórek typu EECM-BMEC i SMLC. Rozdzielić zawiesinę komórek pomiędzy dołki płytek 6-dołkowych pokrytych kolagenem po odessaniu roztworu kolagenu.
- Delikatnie poruszać płytkami w przód i w tył, a następnie od boku do boku, na półce inkubatora w temperaturze 37 °C i 5% CO2, aby równomiernie rozłożyć komórki w dołkach.
- Następnego dnia wymienić medium na świeże medium hECSR bez inhibitora ROCK. Wymieniać medium hECSR co drugi dzień, aż do osiągnięcia 100% konfluencji. Następnie przystąpić do selektywnego pasażowania w przypadku EPC (patrz krok 2.3) i analiz funkcjonalnych dla komórek typu EECM-BMEC (patrz krok 3). Przed przeprowadzeniem charakterystyki molekularnej i testów funkcjonalnych, komórki typu EECM-BMEC powinny być w 100% konfluentne, co zazwyczaj następuje 2-3 dni po rozmrożeniu.
3. Walidacja komórek typu EECM-BMEC oraz SMLC
- Test przepuszczalności dla małocząsteczkowych znaczników
- Oceń integralność bariery komórek typu EECM-BMEC poprzez pomiar przepuszczalności fluoresceiny sodowej, zgodnie z opisem Nishihara i wsp.26. Wysiej komórki typu EECM-BMEC na wkładki filtracyjne w celu wytworzenia pełnych monowarstw i zmierz przepuszczalność fluoresceiny sodowej.
- Barwienie immunofluorescencyjne w celu oceny kluczowych cząsteczek.
- Do barwienia immunofluorescencyjnego w celu monitorowania ekspresji cząsteczek połączeń, cząsteczek adhezyjnych lub białek cytoszkieletu komórek typu EECM-BMEC w monowarstwach lub SMLC, zastosuj szkiełka komorowe, płytki 96-dołkowe lub membrany z wkładkami filtracyjnymi. Oceń ekspresję cząsteczek adhezyjnych powierzchni komórkowych w komórkach typu EECM-BMEC z lub bez stymulacji cytokinami zapalnymi, zgodnie z opisem Nishihara i wsp.26.
- Cytometria przepływowa w celu analizy ekspresji cząsteczek adhezyjnych powierzchni komórkowych na komórkach typu EECM-BMEC
- Zastosuj cytometrię przepływową do półilościowej oceny ekspresji cząsteczek adhezyjnych powierzchni komórkowych zaangażowanych w migrację komórek odpornościowych do OUN, w tym ICAM-1, ICAM-2, VCAM-1, P-selektyny, E-selektyny, CD99 oraz cząsteczki adhezyjnej komórek śródbłonka płytek krwi-1 (PECAM-1), zgodnie z opisem Nishihara i wsp.26. Hoduj komórki typu EECM-BMEC w pożywce kondycjonowanej przez SMLC w obecności i w nieobecności cytokin zapalnych przez 16-18 h.
- Test adhezji komórek odpornościowych w warunkach statycznych w celu oceny ekspresji funkcjonalnych cząsteczek adhezyjnych
- Zastosuj metodę opisaną przez Nishihara i wsp.26, aby określić, czy cząsteczki adhezyjne powierzchni komórkowych w komórkach typu EECM-BMEC są funkcjonalne.
- Krótko opisując: wysiej komórki typu EECM-BMEC na szkiełko komorowe w zagęszczeniu 5.5 x 10⁴/cm2 i hoduj do osiągnięcia konfluencji. Około 24 h później wymień pożywkę hodowlaną na pożywkę kondycjonowaną przez SMLC w obecności lub nieobecności cytokin prozapalnych i inkubuj komórki typu EECM-BMEC przez kolejne 16 h.
- W dniu eksperymentu rozmroź kriokonserwowane komórki odpornościowe (np. limfocyty T lub mononuklearne komórki krwi obwodowej [PBMCs]) przy użyciu buforu do przemywania limfocytów T (Tabela 1) i oznacz barwnikami fluorescencyjnymi (np. barwnikami typu cell tracker) w pożywce dla limfocytów T (Tabela 1). Optymalizacja pożywki hodowlanej dla komórek odpornościowych powinna być dostosowana do konkretnego badanego typu komórek odpornościowych.
- Do szkiełka komorowego z 16 komorami dodaj 2 x 10⁴ komórek Th1 do komórek typu EECM-BMEC. W szczególności zaobserwowano, że w przypadku pracy z efektorowymi limfocytami T, takimi jak komórki Th1, wykazują one silniejsze przywieranie do komórek typu EECM-BMEC w porównaniu do PBMCs (Nishihara i wsp. [2022]). W związku z tym liczba PBMCs dodawanych do komórek typu EECM-BMEC musi być wyższa w porównaniu do czystych efektorowych limfocytów T.
- Inkubuj komórki odpornościowe z monowarstwą komórek typu EECM-BMEC przez 30 min w pożywce do testu migracji (Tabela 1). Po 30 min ostrożnie przemyj szkiełko dwukrotnie, zanurzając je w słoiku z PBS Dulbecco, a następnie utrwal w 2.5% roztworze glutaraldehydu w 4 °C przez 2 h.
- Po utrwaleniu przemyj szkiełko dwukrotnie, zanurzając je w słoiku z PBS Dulbecco i przykryj szkiełkiem nakrywkowym. Następnie wykonaj obrazy mikroskopii fluorescencyjnej centrum monowarstwy na szkiełkach w celu policzenia komórek odpornościowych przywierających do monowarstw komórek typu EECM-BMEC.
Wyniki
Test przepuszczalności
Przepuszczalność fluoresceiny sodowej obliczono poprzez pomiar intensywności fluorescencji medium pobranego z dolnej komory w 15, 30, 45 i 60 min. W każdym punkcie czasowym pobierano łącznie 150 µL medium, a brakującą objętość 150 µL uzupełniano medium hECSR. Intensywność fluorescencji odczytywano za pomocą fluorescencyjnego czytnika płytek (pobudzenie 485 nm/emisja 530 nm), a poprawne sygnały, objętości klirensu i przepuszczalności obliczono zgodnie z wcześniej opisanym wzorem18 (Tabela 2). Zaleca się potwierdzenie, czy intensywność fluorescencji fluoresceiny sodowej wzrasta w czasie. W celu zapewnienia powtarzalności w jednym teście należy użyć wielu filtrów – co najmniej w trzech powtórzeniach. Dla komórek typu EECM-BMEC pochodzących od zdrowej kontroli przepuszczalność fluoresceiny sodowej (376 Da) powinna być niższa niż 0,3 x 10⁻³ cm/min. Aby potwierdzić utworzenie konfluentnej warstwy komórek typu EECM-BMEC, po zakończeniu tego testu należy przeprowadzić barwienie immunofluorescencyjne białek połączeń komórkowych dla komórek typu EECM-BMEC na każdym filtrze wykorzystanym w testach przepuszczalności.
Barwienie immunofluorescencyjne
Barwienie immunofluorescencyjne cząsteczek połączeń komórkowych w komórkach przypominających BMEC pochodzących z EECM, w tym klaudyny-5, okludyny i VE-kadheryny1wykorzystano do oceny morfologii komórek oraz obecności ciągłych i dojrzałych połączeń (Rycina 4). Monowarstwy komórek typu EECM-BMEC na membranach wkładów filtrujących utrwalono zimnym metanolem (-20 °C) przez 20 s, zablokowano buforem blokującym (Tabela 1), a następnie inkubowano z przeciwciałami pierwszorzędowymi i drugorzędowymi. Komórki typu EECM-BMEC wykazywały wrzecionowaty kształt oraz zygzakowate połączenia, co stanowi charakterystyczne cechy morfologiczne BMEC.27Stymulacja komórek typu EECM-BMEC wysianych na szkiełkach komorowych cytokinami prozapalnymi, takimi jak czynnik martwicy nowotworu-α (TNF-α) i interferon-γ (IFN-γ) (0,1 ng/mL TNF-α + 2 IU/mL IFN-γ) rozcieńczonych w pożywce warunkowanej pochodzącej z linii SMLC, spowodowała upregulację ekspresji cząsteczek adhezyjnych, takich jak ICAM-1 i VCAM-1.28 (Rysunek 5). Reprezentatywne obrazy markerów komórek mięśni gładkich, w tym α-aktyny mięśni gładkich (SMA), kalponiny oraz białka mięśni gładkich 22-alfa (SM22a)29są przedstawione w Rycina 6SMLC wysiane na szkiełku komorowym utrwalono 4% paraformaldehydem przez 10 min, zablokowano buforem blokującym, a następnie inkubowano z przeciwciałami pierwszorzędowymi i drugorzędowymi.
Analiza cytometryczna ekspresji cząsteczek adhezyjnych powierzchni komórkowej w komórkach typu EECM-BMEC
Reprezentatywne wyniki ekspresji powierzchniowej śródbłonkowych cząsteczek adhezyjnych w komórkach typu EECM-BMEC przedstawiono na Rysunku 7. Stymulacja cytokinami prozapalnymi, takimi jak TNF-α i INF-γ, zwiększyła ekspresję powierzchniową kilku cząsteczek adhezyjnych, w tym ICAM-1, VCAM-1 i P-selektyny. Hodowla komórek typu EECM-BMEC w medium warunkowanym przez SMLC zwiększyła powierzchniową ekspresję śródbłonkowego VCAM-1. Efekt indukcji powierzchniowej ekspresji VCAM-1 może różnić się w zależności od partii medium warunkowanego przez SMLC. Zaleca się przechowywanie kilku partii medium warunkowanego pobranego z SMLC pochodzących z tego samego źródła hiPSC podczas różnicowania SMLC, aby zweryfikować, która partia indukuje odpowiednią ekspresję VCAM-1.
Test adhezji komórek odpornościowych w warunkach statycznych
Liczba przytwierdzonych komórek odpornościowych korelowała z poziomem ekspresji funkcjonalnych cząsteczek adhezyjnych na powierzchni komórek podobnych do EECM-BMEC. Stymulacja cytokinami zapalnymi zwiększyła ekspresję śródbłonkowych cząsteczek adhezyjnych i spowodowała wzrost liczby komórek odpornościowych przylegających do monowarstw komórek podobnych do EECM-BMEC (Rycina 8). Przeprowadzony eksperyment wykazał funkcjonalność cząsteczek adhezyjnych w komórkach podobnych do EECM-BMEC, co czyni ten model odpowiednim do badania oddziaływań między komórkami odpornościowymi a komórkami śródbłonka.
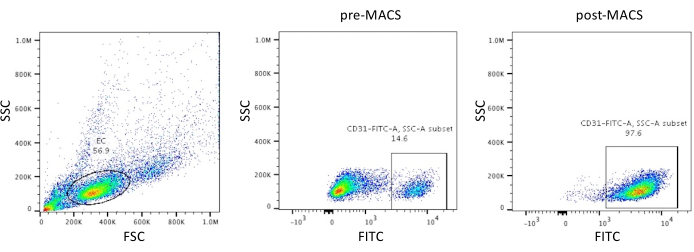
Rysunek 2: Oczyszczanie EC CD31+. Wykresy kropkowe reprezentatywnych danych z cytometrii przepływowej z bramkowania rozproszenia EC oraz barwienia populacji komórek przeciwko CD31 znakowanemu FITC przed (krok 1.4.7) i po (krok 1.4.14) MACS. MACS zwiększa czystość EPC CD31+ w populacji. Skróty: SSC = side scatter; FSC = forward scatter; FITC = fluorescein isothiocyanate; MACS = magnetic activated cell sorting. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
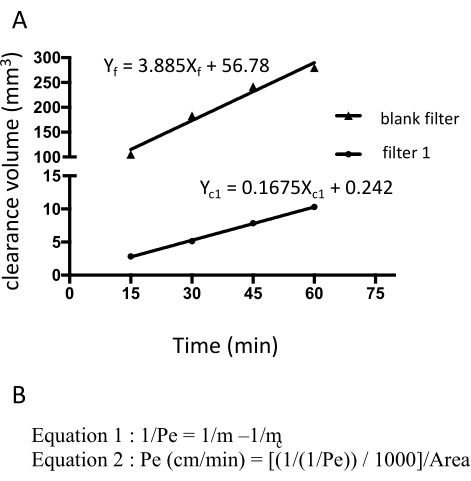
Rycina 3: Przepuszczalność monowarstwy EECM-BMEC (10-3 cm/min) obliczona na podstawie surowej intensywności fluorescencji fluoresceiny sodowej. Liniowy nachylenie objętości oczyszczania oblicza się za pomocą regresji liniowej dla każdego filtra (Rycina 3A). Przepuszczalność fluoresceiny sodowej oblicza się za pomocą dwóch wzorów (Rycina 3B). (A) Liniowe nachylenie objętości oczyszczania w funkcji czasu obliczono za pomocą regresji liniowej dla filtra 1 (mc1) oraz filtra kontrolnego (mf). mc1 i mf są odpowiednio współczynnikami Xc1 i Xf. (B) Wzór do obliczania przepuszczalności fluoresceiny (Pe) przy użyciu mc i mf (Wzór 1). Jednostki Pe przekształcono przy użyciu powierzchni filtra (Wzór 2). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
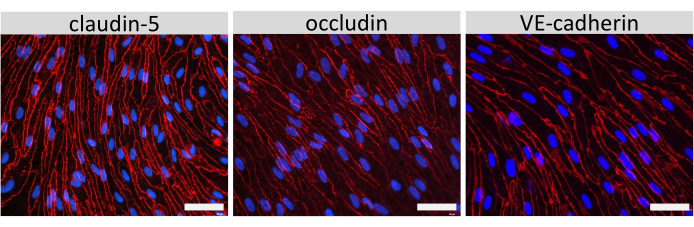
Rycina 4: Komórki EECM-BMEC-like wykazują dojrzałe połączenia komórkowe. Barwienie immunofluorescencyjne na claudin-5, occludin lub VE-cadherin (czerwony) w komórkach EECM-BMEC-like hodowanych na membranach wkładów filtracyjnych. Jądra komórkowe zabarwiono przy użyciu 4′,6-diamidino-2-phenylindole (DAPI) (niebieski). Barwienie przeprowadzono na tych samych wkładach filtracyjnych, które wykorzystano w testach przepuszczalności. Pasek skali = 50 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
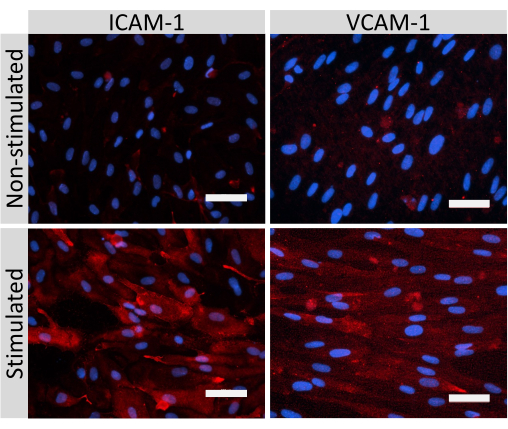
Rysunek 5: Ekspresja cząsteczek adhezyjnych śródbłonka w komórkach EECM-BMEC-like. Barwienie immunofluorescencyjne przeprowadzono na komórkach EECM-BMEC-like hodowanych na membranach wkładów filtracyjnych w obecności CM pochodzącej z SMLC. Przedstawiono immunobarwienie dla ICAM-1 lub VCAM-1 (czerwony) dla niestymulowanych oraz stymulowanych 1 ng/mL TNF-α + 20 IU/mL IFN- γ komórek EECM-BMEC-like. Jądra barwiono DAPI (niebieski). Pasek skali = 50 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
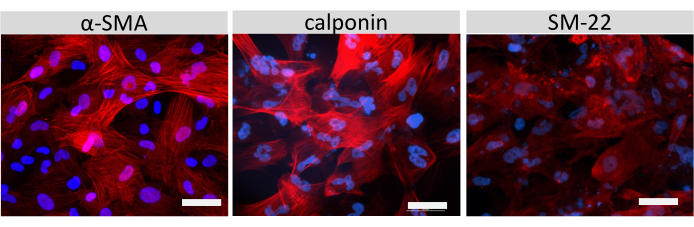
Rysunek 6: Charakterystyka SMLCs. Przedstawiono immunocytochemię α-aktyny mięśni gładkich (SMA), kalponiny lub białka mięśni gładkich 22-Alfa (SM22a) (kolor czerwony) dla SMLCs hodowanych na szkiełkach komorowych. Jądra zostały zabarwione DAPI (kolor niebieski). Pasek skali = 50 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
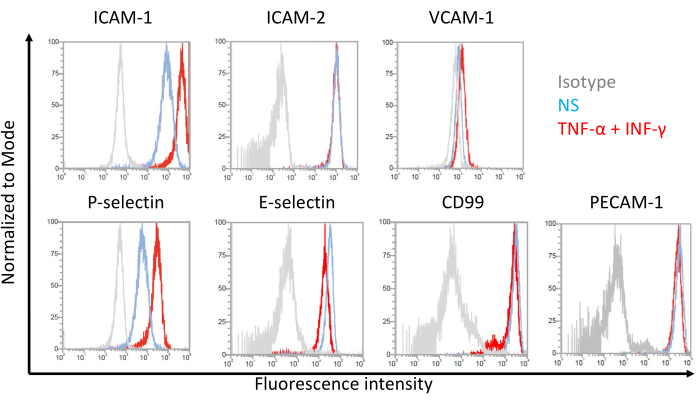
Rysunek 7: Ekspresja cząsteczek adhezyjnych na powierzchni komórek śródbłonka w komórkach typu EECM-BMEC. Przedstawiono wyniki analizy cytometrii przepływowej ekspresji cząsteczek adhezyjnych na powierzchni komórek typu EECM-BMEC. Komórki typu EECM-BMEC hodowano z wykorzystaniem pożywki kondycjonowanej pochodzącej z SMLC. Niebieskie, czerwone i szare linie na nałożonych histogramach przedstawiają odpowiednio stan niestymulowany (NS), stan stymulowany 1 ng/mL TNF-α + 20 IU/mL IFN-γ oraz kontrolę izotypową. Oceńiono ekspresję powierzchniową śródbłonkowych cząsteczek adhezyjnych, w tym cząsteczki adhezji międzykomórkowej 1 (ICAM-1), ICAM-2, cząsteczki adhezji komórek naczyniowych 1 (VCAM-1), P-selektyny, E-selektyny, CD99 oraz cząsteczki adhezyjnej komórek śródbłonka i płytek krwi-1 (PECAM-1). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
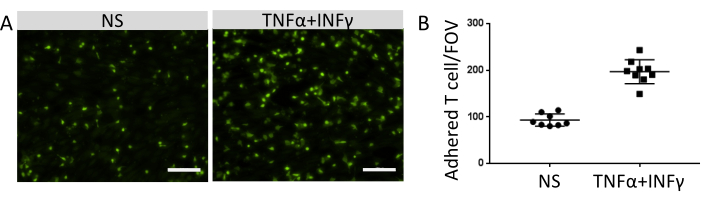
Rycina 8: Adhezja komórek odpornościowych do komórek EECM-BMEC-like. (A) Obrazy fluorescencyjnie znakowanych adherentnych komórek odpornościowych na monowarstwach komórek EECM-BMEC-like niestymulowanych (NS) oraz stymulowanych 0,1 ng/mL TNF-α + 2 IU/mL IFN-γ (TNF-α + IFN-γ). Obrazy odpowiadają środkom studzienek. Pasek skali = 50 µm. (B) Liczba fluorescencyjnie znakowanych komórek odpornościowych na monowarstwach niestymulowanych oraz stymulowanych TNF-α + IFN-γ komórek EECM-BMEC-like. Liczba adherentnych komórek odpornościowych na pola widzenia (FOV) została policzona automatycznie przy użyciu oprogramowania FIJI. Kropki reprezentują liczbę przyłączonych limfocytów T. Słupki przedstawiają wartość średnią, a słupki błędów odchylenie standardowe (SD) z ośmiu prób. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela 1: Szczegóły dotyczące konkretnych odczynników do analiz. Opisano nazwy i dokładne ilości składników dla każdego konkretnego odczynnika. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 2: Przykład surowych danych z fluorescencyjnego czytnika płytek do obliczeń Pe. Liczby zapisane pogrubioną czcionką to surowa intensywność fluorescencji fluoresceiny sodowej zmierzona czytnikiem płytek. Aby dokładnie przeanalizować dane, konieczne jest usunięcie sygnału tła z wartości surowych oraz uwzględnienie wszelkich strat sygnału wynikających z pobierania próbek z dolnej komory, a następnie skorygowanie sygnału. Na przykład, po odjęciu tła, próbka z 15 min wykazuje sygnał wynoszący 100 względnych jednostek fluorescencji (RFU), a próbka z 30 min wykazuje sygnał 150 RFU. Skorygowany sygnał w 30 min wynosi (150 RFU + brakujące wartości w 15 min [100 RFU x 150 µL/1,500 µL]), co daje 150 RFU + 10 RFU = 160 RFU. Objętość klirensu = (1,500 x [SB,t])/(ST,60 min), gdzie 1,500 to objętość dolnej komory (1,500 µL), SB,t to skorygowany sygnał w czasie t, a ST,60 min to sygnał górnej komory w 60 min. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Punkty krytyczne i rozwiązywanie problemów
Przed rozpoczęciem różnicowania EPC badacze powinni upewnić się, że w hodowlach hiPSC nie wystąpiły żadne spontaniczne zdarzenia różnicowania komórek. Brak spontanicznie różnicujących się komórek i zastosowanie czystych kolonii hiPSC ma kluczowe znaczenie dla uzyskania powtarzalnych wyników. Gęstość wysiewu hiPSC w dniu -3 jest ważna dla uzyskania wysokiej czystości EPC CD31+ po MACS. Gęstość wysiewu dla każdej linii hiPSC i każdego przejścia może wymagać optymalizacji. W zależności od linii hiPSC i liczby przejścia, gęstość wysiewu może wynosić od 75 x 103 do 400 x 103 hiPSC na studzienkę płytki 12-dołkowej (20-100 x 103/cm2). Minimalnym punktem kontrolnym zagęszczenia hiPSC jest gęstość komórek w dniu 2. HiPSC powinny osiągnąć 100% zbieżność najpóźniej do dnia 2. Jeśli hiPSC nie zlewają się do dnia 2, czystość EPC CD31 + po MACS będzie zwykle dość niska. W takim przypadku można zwiększyć gęstość wysiewu hiPSC. Jeśli duża liczba różnicujących się komórek oderwie się od płytki około 3 do 5 dnia, początkowa gęstość wysiewu hiPSC może zostać zmniejszona. Z naszego doświadczenia wynika, że CHIR99021 7-8 μM jest optymalnym stężeniem dla zastosowanych tutaj linii hiPSC, ale stężenie może wymagać optymalizacji dla innych linii hiPSC, które mogą inaczej reagować na leczenie inhibitorem. Czystość CD31+ EPC powinna być potwierdzona przed i po MACS. Przed kontynuacją MACS wstępnie posortowana mieszanina komórek powinna składać się z >10% komórek CD31+ . Procent komórek CD31 + wynoszący <6% zwykle powoduje <80% EPC po MACS. W tej sytuacji konieczna jest optymalizacja początkowej gęstości wysiewu i/lub zagęszczenia CHIR99021.
Dla udanego selektywnego pasażowania i generowania czystych monowarstw EC, czystość EPC CD31+ po MACS ma kluczowe znaczenie. Jeśli czystość po MACS wynosi <90%, zaleca się jedno lub dwa dodatkowe prania (kroki 1.4.11-1.4.12). Idealnie, czystość po MACS powinna wynosić >95%. Gęstość wysiewu EPC na płytkach pokrytych kolagenem powinna być zoptymalizowana zgodnie z linią hiPSC, aby osiągnąć 100% zbieżność w ciągu 3-7 dni. Czekanie, aż EC będą w 100% zlewne, zwykle prowadzi do pomyślnego selektywnego przejścia. Jednak nawet w przypadku w 100% zlewających się EC SMLC niektórych linii hiPSC również odłączają się wcześnie. W takim przypadku skuteczne może być selektywne pasażowanie przy niższym zbieganiu (np. ≤80%). Jeśli niektóre SMLC odczepią się wcześniej niż EC, EC często nie mogą zostać uratowane z mieszanej populacji EC-SMLC. W takim przypadku pomocne może być skrócenie czasu aktywacji odczynnika dysocjacyjnego w pasażujących EC i powtarzającym się selektywnym pasażowaniu. Użycie komercyjnego odczynnika dysocjacyjnego zamiast trypsyny jako odczynnika dysocjacyjnego jest korzystne dla selektywnego pasażowania, ponieważ trypsyna nie pozwala na oddzielne odłączenie EC i SMLC. Nasze testy przepuszczalności z wykorzystaniem znaczników małocząsteczkowych oraz testowanie poziomów ekspresji cząsteczek ścisłych i adhezyjnych wskazują, że EPC, komórki podobne do EECM-BMEC i SMLC mogą być przechowywane w ciekłym azocie przez co najmniej 2 lata.
Znaczenie i ograniczenia metody
Metoda różnicuje CD31+ EPC od hiPSC poprzez zastosowanie chemicznych inhibitorów GSK-3 do aktywacji sygnalizacji Wnt / β-kateniny. Po pozytywnej selekcji CD31 + EPC przez MACS, EPC są hodowane w określonym podłożu śródbłonkowym, które sprzyja różnicowaniu się w mieszane populacje śródbłonka i SMLC. Selektywne pasażowanie tych mieszanych populacji o różnych właściwościach adhezyjnych pozwala na oddzielenie EC od SMLC. Po jednym lub dwóch pasażach komórki podobne do EECM-BMEC wykazują właściwości barierowe i ekspresję cząsteczek adhezyjnych śródbłonka, które przypominają te z pierwotnych ludzkich BMEC. Jednoczesna hodowla z SMLC lub ich supernatantami indukuje indukowaną cytokiną ekspresję VCAM-1.
In vivo BBB utrzymuje homeostazę OUN poprzez ustanowienie niskiej przepuszczalności cząsteczki w warstwie przykomórkowej i transkomórkowej, poprzez transport składników odżywczych przez specyficzne transportery i kontrolę transportu komórek odpornościowych do OUN. Do badań bariery krew-mózg niezbędny jest odpowiedni model, który wyświetla odpowiednie cząsteczki i funkcje, które są przedmiotem zainteresowania. Produkcja komórek podobnych do EECM-BMEC przy użyciu zdefiniowanych odczynników i próbek od pacjentów lub osób zdrowych zapewnia skalowalny model ludzkiej bariery krew-mózg. Zalety modelu wykorzystującego komórki podobne do EECM-BMEC w porównaniu z innymi modelami BBB to: 1) morfologia i profil transkryptomu śródbłonka30, który przypomina pierwotny ludzki BMEC; 2) obecność dojrzałych połączeń ścisłych; 3) pożądane właściwości barierowe; oraz 4) silna ekspresja cząsteczek adhezyjnych śródbłonka, w tym ICAM-1, ICAM-2, VCAM-1, selektyny E i P, CD99, cząsteczki adhezyjnej komórek czerniaka (MCAM) i aktywowanej cząsteczki adhezji komórek leukocytów (ALCAM)22. W związku z tym model ten jest szczególnie przydatny do badania interakcji między komórkami odpornościowymi a BMEC. Chociaż przepuszczalność znaczników małocząsteczkowych jest wyższa dla komórek podobnych do EECM-BMEC niż wcześniej zgłaszana dla komórek podobnych do BMECpochodzących z iPSC 14,15, właściwości barierowe dość dobrze wypadają w porównaniu z tymi opisanymi dla pierwotnych ludzkich BMEC. To podobieństwo wskazuje, że komórki podobne do EECM-BMEC mogą być dobrym modelem BBB in vitro. Ekspresja selektyny E na komórkach podobnych do EECM-BMEC w warunkach fizjologicznych musi być brana pod uwagę przy użyciu tego modelu do badania niezapalnych barier krew-mózg, które nie mają konstytutywnej ekspresji selektyny E in vivo31. W naszym poprzednim badaniu wykazaliśmy, że komórki podobne do EECM-BMEC mogą fenokopować barierę krew-mózg, jak obserwowano w mózgach pacjentów ze stwardnieniem rozsianym w odniesieniu do zakłóconych połączeń ścisłych. Powoduje to większą przepuszczalność małych cząsteczek i zwiększoną ekspresję funkcjonalnej cząsteczki adhezyjnej, pośredniczącej w zwiększonej adhezji i transmigracji komórek odpornościowych przez komórki podobne do BMEC32. Ponadto wykazaliśmy, że aktywacja sygnalizacji Wnt / β-kateniny może złagodzić przerwanie połączeń ścisłych i zwiększoną ekspresję VCAM-1 w komórkach podobnych do EECM-BMEC pochodzących z MS32. Wyniki te wskazują, że model jest rzeczywiście przydatny do badania roli bariery krew-mózg w chorobach neuroimmunologicznych, takich jak stwardnienie rozsiane.
Podsumowując, komórki podobne do EECM-BMEC są obiecującym narzędziem do dogłębnego zrozumienia mechanizmów patofizjologicznych na poziomie bariery krew-mózg oraz jako narzędzie do opracowania nowych celów terapeutycznych dla stabilizacji bariery krew-mózg. W przyszłości model może zostać zastosowany do badania dysfunkcji bariery krew-mózg w szerszym spektrum chorób i może otworzyć drogę do nowatorskich podejść terapeutycznych.
Oświadczenia
BE otrzymało grant od firmy Biogen na badania nad rozszerzonym dawkowaniem natalizumabu w celu wpływu na migrację limfocytów T przez barierę krew-mózg oraz grant od CSL Behring na zbadanie molekularnych podstaw dysfunkcji bariery krew-mózg w zaburzeniach neurologicznych. HN i BE są wynalazcami tymczasowych amerykańskich zgłoszeń patentowych związanych z ogniwami podobnymi do EECM-BMEC (63/084980 i 63/185815).
Podziękowania
HN był wspierany przez Uehara Memorial Foundation, ECTRIMS Postdoctoral Research Exchange Fellowship, JSPS w ramach Wspólnego Programu Badawczego realizowanego we współpracy z SNSF (JRPs) Grant No. Grant JPJSJRP20221507 i KAKENHI nr 22K15711, program JST FOREST (numer grantu JPMJFR2269, Japonia), grant Fundacji YOKOYAMA na rzecz Farmakologii Klinicznej nr YRY-2217, FUNDACJA ICHIRO KANEHARA, Fundacja Badań Neurologicznych Narishige, Fundacja NOVARTIS (Japonia) na rzecz Promocji Nauki oraz FUNDUSZ UNIWERSYTECKI YAMAGUCHI. BE było wspierane przez Szwajcarskie Towarzystwo Stwardnienia Rozsianego i Szwajcarską Narodową Fundację Nauki (granty 310030_189080 i ZLJZ3_214086) oraz grant Strategicznego Japońsko-Szwajcarskiego Programu Nauki i Technologii (SJSSTP) IZLJZ3_214086.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Filtr strzykawkowy 0,22 mm | TPP | 99722 | |
| 15 mL Probówka wirówkowa | Falcon | 352196 | |
| 40 μ m Sitko do komórek Falcon | Falcon 352340 | ||
| 5 ml Probówka okrągłodenna | SPL | 40005 | |
| 50 ml Probówka wirówkowa | Falcon | 352070 | |
| Płytka 96-dołkowa, okrągłodenna | SPL | 34096 | |
| Accutase | Sigma-Aldrich | A6964-500ml | |
| Kwas octowy | Sigma-Aldrich | 695092 | |
| DMEM/F12 | Life Technologies | 12634 | |
| All-in-One | Keyence | BZ-X810 | |
| B-27 Suplement (503), bez surowicy | Thermo Fischer Scientific | 17504044 | |
| Albumina surowicy bydlęcej (BSA), 7,5% w dPBS | Sigma-Aldrich | A8412 | |
| Bufor rozcieńczający CellAdhere | STEMCELL Technologies | ST-07183 | |
| CellTracker Green CMFDA Dye | Invitrogen | C7025 | |
| Szkiełka komorowe | Thermo Fischer Scientific | 178599 | |
| CHIR99021 | Selleck Chemicals | S1263 | |
| Kolagen IV z ludzkiego łożyska | Sigma-Aldrich | C5533 | |
| Płytki do hodowli tkankowych Corning (12-dołkowe) | Corning | 3512 | |
| Płytki do hodowli tkankowych Corning (6-dołkowe) | Corning | 3506 | |
| Wewnętrzna nasadka do probówki kriogenicznej 2,0 ml | Watson | 1396-201S | |
| Dimetylosulfotlenek (DMSO), sterylny | Sigma-Aldrich | D2650 | |
| DMEM (13), [+] 4,5 g/L D-glukozy, [-] L-glutamina, [-] pirogronian | Thermo Fischer Scientific | 31053-028 | |
| Dulbecco' s d) PBS (bez wapnia, magnezu) | Thermo Fisher | 14190250 | |
| Dulbecco" s zmodyfikowany Orzeł" s mieszanina pożywki i składników odżywczych F-12 (DMEM-F12) | Thermo Fischer Scientific | 11320074 | |
| Zestaw pozytywnej selekcji EasySepFITC II | STEMCELL Technologies | 18558 | |
| EasySepMagnet | Stemcell Technologies | 18000 | |
| Roztwór kwasu etylenodiaminotetraoctowego0,02% w DPBS | Sigma | E8008-100ML | |
| Płodowa surowica bydlęca, kwalifikowana | Thermo Fischer Scientific | 10270106 | |
| Fibronektyna z osocza bydlęcego | Sigma-Aldrich | F1141 | |
| Ficoll-Paque PLUS | Oprogramowanie Sigma-Aldrich | GE17144002 | |
| FIJI (wersja 2.0.0) | Obraz J, USA | ||
| FlowJo wersja10 | BD | ||
| Sól sodowa fluoresceiny | Sigma-Aldrich | F6377 | |
| Suplement GlutaMAX | Thermo Fischer Scientific | 35050-061 | |
| Roztwór aldehydu glutarowego | Sigma-Aldrich | G6257 | |
| HCL | Sigma-Aldrich | H1758 | |
| Roztwór buforowy HEPES | Thermo Fischer Scientific | 15630-056 | |
| Surowica śródbłonka ludzkiego Free Medium (hESFM) | Thermo Fischer Scientific | 11111-044 | |
| Ludzki czynnik wzrostu fibroblastów 2 (FGF2) | Tocris | 233-FB-500 | |
| iPS ludzkie indukowane pluripotencjalne komórki macierzyste | Riken RBC | HPS1006 | |
| Siarczan kanamycyny (100x) | Thermo Fischer Scientific | 15160-047 | |
| Kwas L-askorbinowy 2-fosforan sól seskwinimagnezowa hydrat | Sigma-Aldrich | A8960-5G | |
| L-Glutamina 200 mM (1003) | Thermo Fischer Scientific | 25030-024 | |
| Matrigel, obniżony czynnik wzrostu | Corning | 354230 | |
| MEM NEAA (1003) | Thermo Fischer Scientific | 11140-035 | |
| Metanol | Sigma-Aldrich | 32213 | |
| Mowiol | Sigma-Aldrich | 81381 | |
| mTeSR Plus-cGMP | STEMCELL Technologies | ST-100-0276 | |
| Kompletny zestaw mTeSR1 (podłoże podstawowe plus suplement 53) | STEMCELL Technologies | 85850 | |
| NaCl | Sigma-Aldrich | 71376 | |
| Paraformaldehyd | Millipore | 104005 | |
| Pen Strep | Thermo Fischer Scientific | 15140-122 | |
| Rekombinowane ludzkie białko IFN-gamma | R& D Systems | 285-IF-100 | |
| Rekombinowane ludzkie białko IL-2 | BD Biosciences | 554603 | |
| Rekombinowane ludzkie białko TNF-alfa | R& D Systems | 210-TA-020 | |
| Inhibitor ROCK Y-27632 | Tocris | 1254 | |
| RPMI medium 1640 | Thermo Fischer Scientific | 21875-034 | |
| Skalpel | FEATHER | 2975-11 | |
| Mleko odtłuszczone | BD Biosciences | 232100 | |
| Azydek sodu (NaN3) | Sigma-Aldrich | 71290 | |
| Sód pirogronian | Thermo Fischer Scientific | 11360-039 | |
| - Transwells - Membrana PC, 0,4 mm, 12 mm, | Corning | 3401 | |
| Tris base | Sigma-Aldrich | 93362 | |
| Triton X-100 | Sigma-Aldrich | X100 | |
| Vitronectin XF | STEMCELL Technologies | 078180 | |
| Woda, sterylna, hodowla | komórkowaSigma-Aldrich | W3500 |
Bibliografia
- Castro Dias, M., Mapunda, J. A., Vladymyrov, M., Engelhardt, B. Structure and junctional complexes of endothelial, epithelial and glial brain barriers. International Journal of Molecular Sciences. 20 (21), 5372(2019).
- Engelhardt, B., Sorokin, L. The blood-brain and the blood-cerebrospinal fluid barriers: function and dysfunction. Seminars in Immunopathology. 31 (4), 497-511 (2009).
- Marchetti, L., Engelhardt, B. Immune cell trafficking across the blood-brain barrier in the absence and presence of neuroinflammation. Vascular Biology. 2 (1), H1-H18 (2020).
- Yang, C., Hawkins, K. E., Dore, S., Candelario-Jalil, E. Neuroinflammatory mechanisms of blood-brain barrier damage in ischemic stroke. American Journal of Physiology. Cell Physiology. 316 (2), C135-C153 (2019).
- Nishihara, H., Engelhardt, B. Brain barriers and multiple sclerosis: novel treatment approaches from a brain barriers perspective. Handbook of Experimental Pharmacology. 273, 295-329 (2020).
- Pan, Y., Nicolazzo, J. A. Altered blood-brain barrier and blood-spinal cord barrier dynamics in amyotrophic lateral sclerosis: Impact on medication efficacy and safety. British Journal of Pharmacology. 179 (11), 2577-2588 (2022).
- Sweeney, M. D., Sagare, A. P., Zlokovic, B. V. Blood-brain barrier breakdown in Alzheimer disease and other neurodegenerative disorders. Nature Reviews Neurology. 14 (3), 133-150 (2018).
- Desai, B. S., Monahan, A. J., Carvey, P. M., Hendey, B. Blood-brain barrier pathology in Alzheimer's and Parkinson's disease: implications for drug therapy. Cell Transplantation. 16 (3), 285-299 (2007).
- Song, H. W., et al. Transcriptomic comparison of human and mouse brain microvessels. Scientific Reports. 10 (1), 12358(2020).
- Lecuyer, M. A., et al. Dual role of ALCAM in neuroinflammation and blood-brain barrier homeostasis. Proceedings of the National Academy of Sciences. 114 (4), E524-E533 (2017).
- Weksler, B. B., et al. Blood-brain barrier-specific properties of a human adult brain endothelial cell line. The FASEB Journal. 19 (13), 1872-1874 (2005).
- DeStefano, J. G., Jamieson, J. J., Linville, R. M., Searson, P. C. Benchmarking in vitro tissue-engineered blood-brain barrier models. Fluids and Barriers of the CNS. 15 (1), 32(2018).
- Lyck, R., et al. ALCAM (CD166) is involved in extravasation of monocytes rather than T cells across the blood-brain barrier. Journal of Cerebral Blood Flow and Metabolism. 37 (8), 2894-2909 (2017).
- Lippmann, E. S., et al. Derivation of blood-brain barrier endothelial cells from human pluripotent stem cells. Nature Biotechnology. 30 (8), 783-791 (2012).
- Qian, T., et al. Directed differentiation of human pluripotent stem cells to blood-brain barrier endothelial cells. Science Advances. 3 (11), e1701679(2017).
- Cecchelli, R., et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 9 (6), e99733(2014).
- Hollmann, E. K., et al. Accelerated differentiation of human induced pluripotent stem cells to blood-brain barrier endothelial cells. Fluids and Barriers of the CNS. 14 (1), 9(2017).
- Stebbins, M. J., et al. Differentiation and characterization of human pluripotent stem cell-derived brain microvascular endothelial cells. Methods. 101, 93-102 (2016).
- Praca, C., et al. Derivation of brain capillary-like endothelial cells from human pluripotent stem cell-derived endothelial progenitor cells. Stem Cell Reports. 13 (4), 599-611 (2019).
- Al-Ahmad, A. J. Comparative study of expression and activity of glucose transporters between stem cell-derived brain microvascular endothelial cells and hCMEC/D3 cells. American Journal of Physiology. Cell Physiology. 313 (4), C421-C429 (2017).
- Canfield, S. G., et al. An isogenic neurovascular unit model comprised of human induced pluripotent stem cell-derived brain microvascular endothelial cells, pericytes, astrocytes, and neurons. Fluids and Barriers of the CNS. 16 (1), 25(2019).
- Nishihara, H., et al. Advancing human induced pluripotent stem cell-derived blood-brain barrier models for studying immune cell interactions. The FASEB Journal. 34 (12), 16693-16715 (2020).
- Lu, T. M., et al. Pluripotent stem cell-derived epithelium misidentified as brain microvascular endothelium requires ETS factors to acquire vascular fate. Proceedings of the National Academy of Sciences. 118 (8), e2016950118(2021).
- Lian, X., et al. Efficient differentiation of human pluripotent stem cells to endothelial progenitors via small-molecule activation of WNT signaling. Stem Cell Reports. 3 (5), 804-816 (2014).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to Matrigel. Nature Reviews Materials. 5 (7), 539-551 (2020).
- Nishihara, H., et al. Differentiation of human pluripotent stem cells to brain microvascular endothelial cell-like cells suitable to study immune cell interactions. STAR Protocols. 2 (2), 100563(2021).
- Calabria, A. R., Weidenfeller, C., Jones, A. R., de Vries, H. E., Shusta, E. V. Puromycin-purified rat brain microvascular endothelial cell cultures exhibit improved barrier properties in response to glucocorticoid induction. Journal of Neurochemistry. 97 (4), 922-933 (2006).
- Engelhardt, B., Capture Ransohoff, R. M. crawl, cross: the T cell code to breach the blood-brain barriers. Trends in Immunology. 33 (12), 579-589 (2012).
- Duband, J. L., Gimona, M., Scatena, M., Sartore, S., Small, J. V. Calponin and SM 22 as differentiation markers of smooth muscle: spatiotemporal distribution during avian embryonic development. Differentiation. 55 (1), 1-11 (1993).
- Gastfriend, B. D., et al. Wnt signaling mediates acquisition of blood-brain barrier properties in naïve endothelium derived from human pluripotent stem cells. eLife. 10, e70992(2021).
- Eppihimer, M. J., Wolitzky, B., Anderson, D. C., Labow, M. A., Granger, D. N. Heterogeneity of expression of E- and P-selectins in vivo. Circulation Research. 79 (3), 560-569 (1996).
- Nishihara, H., et al. Intrinsic blood-brain barrier dysfunction contributes to multiple sclerosis pathogenesis. Brain. 145 (12), 4334-4348 (2022).
Przedruki i uprawnienia
