Bis-3-chloropiperydyny (B-CePs) są użytecznymi sondami chemicznymi do identyfikacji i charakteryzowania struktur G-kwadrupleksu w matrycach DNA in vitro. Protokół ten szczegółowo opisuje procedurę przeprowadzania reakcji sondowania z B-i rozpuszczania produktów reakcji za pomocą elektroforezy w żelu poliakrylamidowym o wysokiej rozdzielczości.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
In vitro Mapowanie chemiczne struktur DNA G-Quadruplex za pomocą bis-3-chloropiperydyn
W tym artykule
Podsumowanie
Streszczenie
G-quadruplexes (G4s) są biologicznie istotnymi, niekanonicznymi strukturami DNA, które odgrywają ważną rolę w ekspresji genów i chorobach, stanowiąc ważne cele terapeutyczne. Potrzebne są dostępne metody do charakterystyki in vitro DNA w obrębie potencjalnych sekwencji tworzących G-kwadrupleks (PQS). B-to klasa środków alkilujących, które okazały się użytecznymi sondami chemicznymi do badania struktury kwasów nukleinowych wyższego rzędu. W artykule opisano nowy test mapowania chemicznego wykorzystujący specyficzną reaktywność B-z N7 guaniny, a następnie bezpośrednie rozszczepienie nici w alkilowanym Gs.
Mianowicie, aby odróżnić fałdy G4 od rozwiniętych form DNA, używamy B-1 do zbadania aptameru wiążącego trombinę (TBA), 15-merowego DNA zdolnego do przyjęcia układu G4. Reakcja guaniny reagującej na B-z B-1 daje produkty, które można rozwiązać za pomocą elektroforezy w żelu poliakrylamidowym o wysokiej rozdzielczości (PAGE) na poziomie pojedynczego nukleotydu poprzez lokalizację poszczególnych adduktów alkilacyjnych i rozszczepienia nici DNA w alkilowanych guaninach. Mapowanie za pomocą B-CePs jest prostym i potężnym narzędziem do charakteryzowania in vitro sekwencji DNA tworzących G-kwadrupleks, umożliwiając precyzyjną lokalizację guaniny biorących udział w tworzeniu G-tetrad.
Wprowadzenie
Oprócz typowej podwójnej helisy Watsona-Cricka, kwasy nukleinowe mogą przybierać różne struktury drugorzędowe, takie jak alternatywna forma kwadrupleksu G (G4), ze względu na ich sekwencje bogate w guaninę. Struktura G4 opiera się na tworzeniu płaskich tetramerów, zwanych tetradami G, w których cztery guaniny oddziałują za pomocą wiązań wodorowych Hoogsteena. Tetrady G są ułożone warstwowo i dodatkowo stabilizowane przez kationy jednowartościowe, które są koordynowane w centrum rdzenia guaniny (Rysunek 1)1.
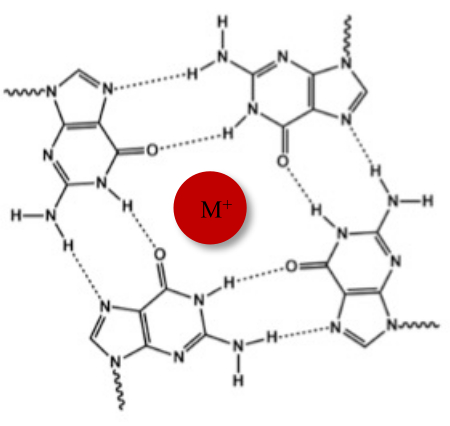
Rysunek 1: Schematyczna reprezentacja struktury G-kwadrupleksu. (A) Schematyczna reprezentacja G-tetrady. Układ płaski jest stabilizowany przez pary zasad Hoogsteena oraz centralny kation (M+). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Sekwencje zawierające cztery lub więcej serii co najmniej dwóch następujących po sobie nukleotydów guaniny są potencjalnymi sekwencjami tworzącymi G-kwadrupleksy (PQSs), które mogą zwijać się w struktury G-kwadrupleksowe. PQSs znajdują się w wielu różnych kontekstach komórkowych, takich jak telomery, promotory genów, rybosomalny DNA oraz miejsca rekombinacji, i biorą udział w regulacji wielu procesów biologicznych2. W związku z tym identyfikacja i eksperymentalna walidacja G4 w ludzkim genomie, przeprowadzana obecnie głównie za pomocą narzędzi obliczeniowych, jest kwestią istotną biologicznie3. Aby wesprzeć przewidywania obliczeniowe lub wykryć nieprzewidziane struktury G4, zaprezentowano tutaj przystępną metodę opartą na mapowaniu chemicznym w celu identyfikacji formowania G4 w matrycy DNA, umożliwiającą precyzyjne określenie guanin tworzących strukturę G-tetradową.
Opisany test mapowania chemicznego wykorzystuje różną reaktywność bis-3-chloropiperydyn (B-CePs) z guaninami po sformowaniu struktur G4. Ze względu na wysoką reaktywność z nukleofilami4,5,6,7,8,9, B-CePs są czynnikami alkilującymi kwasy nukleinowe, które mogą bardzo efektywnie reagować z pozycją N7 nukleotydów guaniny10. Alkilowaniu towarzyszy depurynacja i pękanie nici w konstrukcjach DNA jednoniciowego i dwuniciowego. Z kolei guaniny biorące udział w tworzeniu tetrad G w strukturach G4 są odporne na alkilację przez B-CeP, ponieważ pozycja N7 guanin jest zaangażowana w wiązania wodorowe Hoogsteena. Ta specyficzna reaktywność B-CePs pozwala nie tylko na detekcję struktur G4, ale także na identyfikację guanin tworzących tetradę(y), gdyż można je wywnioskować z ich względnej ochrony przed alkilacją w porównaniu z guaninami w DNA jednoniciowym i dwuniciowym.
W niniejszym dokumencie przedstawiono protokół mapowania chemicznego z wykorzystaniem B-CeP 1 (Rycina 2A) jako sondę do charakteryzacji aptameru wiążącego trombinę (TBA), 15-merowego DNA zdolnego do przyjmowania struktury G4 w obecności kationów potasu11,12Strukturę G4 TBA (G4-TBA) porównano bezpośrednio z dwiema kontrolami: TBA w formie jednoniciowej (ssTBA) oraz TBA przyłączoną do swojej sekwencji komplementarnej w celu utworzenia konstrukcji dwuniciowej (dsTBA) (Tabela 1). Produkty reakcji sondowania rozdziela się za pomocą wysokorozdzielczej elektroforezy w żelu poliakrylamidowym (PAGE) z rozdzielczością do pojedynczego nukleotydu, lokalizując poszczególne addukty alkilacyjne oraz pęknięcia nici DNA w miejscach alkilowanych guanin. Wizualizacja na żelu jest możliwa dzięki koniugacji oligonukleotydu TBA z fluoroforem na jego końcu 3' (Tabela 1). Niniejszy protokół przedstawia sposób zwijania TBA w jego różnych konformacjach (G4 oraz kontrole), a także sposób przeprowadzania reakcji sondowania z użyciem B-CePs z późniejszą analizą metodą PAGE.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie kwasu nukleinowego i sondy chemicznej
- Kwasy nukleinowe
UWAGA: Oligonukleotyd o nazwie "TBA" to 15-merowa sekwencja DNA 5'-GGT-TGG-TGT-GGT-TGG-3' znakowana na końcu 3' przez fluoroforową 5-karboksyfluoresceinę (FAM), aby umożliwić wizualizację na żelu. Nieznakowany oligonukleotyd "cTBA" jest jego komplementarną sekwencją DNA 5'-CCA-ACC-ACA-CCA-ACC-3'. TBA i cTBA stosuje się w celu uzyskania trzech różnych struktur, jak pokazano w tabeli 1.- Końcówki do autoklawu i probówki o pojemności 0,5 ml w celu uzyskania sterylnych materiałów jednorazowego użytku i uniknięcia zanieczyszczenia.
- Przygotować roztwory podstawowe, rozpuszczając każdy oligonukleotyd w wodzie ultraczystej do końcowego stężenia 100 μM. Określić dokładne stężenie oligonukleotydów za pomocą spektrofotometru UV-Vis w ultrafiolecie, stosując współczynnik ekstynkcji przy 260 nm podany przez producenta.
UWAGA: Współczynniki ekstynkcji: 164 300 M-1 cm-1 i 138 600 M-1 cm-1 zastosowano odpowiednio dla TBA i cTBA. - Roztwory podstawowe TBA i cTBA należy przechowywać w temperaturze -20 °C (w tych warunkach przez wiele miesięcy).
- Związek B-1
UWAGA: Związek B-1 jest syntetyzowany zgodnie z wcześniejszymi raportami6.- Przygotować roztwór podstawowy B-1 o stężeniu ~10 mM. Odważyć ~1 mg liofilizowanego związku za pomocą wagi analitycznej umieszczonej w dygestorium i rozpuścić go w 100% dimetylosulfotlenku (DMSO).
- Obliczyć dokładne stężenie związku na podstawie rzeczywistej ilości użytego związku i DMSO (d = 1,1 g/cm3).
UWAGA: Z związkiem należy obchodzić się w rękawiczkach przez cały czas (zarówno po liofilizacji, jak i po rozpuszczeniu w DMSO)13,14.
Tabela 1: Struktury oligonukleotydowe użyte w tym protokole. Kliknij tutaj, aby pobrać tę tabelę.
2. Składanie konstruktów kwasów nukleinowych
- Przygotowanie
- Przygotować roztwór buforowy BPE (kwas bifosforanowo-etylenodiaminotetraoctowy [EDTA], 5x: 2 mM NaH2PO4, 6 mM Na2HPO4, 1 mM Na2EDTA, pH 7,4) i roztwór 500 mM KCl w wodzie ultraczystej. Przefiltruj roztwory przez filtry o wielkości porów 0,22 μm.
UWAGA: Aby uzyskać najlepsze wyniki, używaj świeżo przygotowanych roztworów. Bufor BPE może być przechowywany w temperaturze 4 °C przez okres do 15 dni.
- Przygotować roztwór buforowy BPE (kwas bifosforanowo-etylenodiaminotetraoctowy [EDTA], 5x: 2 mM NaH2PO4, 6 mM Na2HPO4, 1 mM Na2EDTA, pH 7,4) i roztwór 500 mM KCl w wodzie ultraczystej. Przefiltruj roztwory przez filtry o wielkości porów 0,22 μm.
- Składanie próbek G4-TBA, ssTBA i dsTBA metodą ponownego składania na gorąco
UWAGA: Kationy potasu są niezbędne do fałdowania struktury G4 (G4-TBA). Nie dodawać kationów potasu do roztworu składającego kontrolnych ssTBA i dsTBA.- Przygotować 40 μL 4 μM roztworu G4-TBA w 1x BPE i 100 mM KCl. Denaturować roztwór oligonukleotydu G4-TBA poprzez podgrzanie probówki do 95 °C przez 5 minut i powoli schłodzić ją do temperatury pokojowej (RT), aby umożliwić TBA złożenie się w G-kwadrupleksy.
- Przygotować 40 μL 4 μM roztworu ssTBA w 1x BPE. Wykonaj procedurę ponownego składania na gorąco, jak wspomniano w kroku 2.2.1, aby złożyć TBA w postaci jednoniciowej.
- Przygotować 40 μl 4 μM roztworu dsTBA, mieszając równomolowe ilości TBA i cTBA w 1x BPE. Wykonaj procedurę ponownego fałdowania na gorąco, jak wspomniano powyżej (krok 2.2.1), aby TBA wyżarzał się do swojej komplementarnej sekwencji cTBA i tworzył dwuniciową formę TBA.
UWAGA: Ostateczna objętość każdego roztworu do składania opiera się na liczbie próbek do reakcji sondowania, biorąc pod uwagę, że na każdą próbkę potrzeba 5 μl roztworu o stężeniu 4 μM. Przygotuj niewielką nadmierną objętość każdego roztworu, aby uniknąć błędów w pipetowaniu.
3. Reakcje sondowania
UWAGA: Reakcje sondowania muszą być przeprowadzone natychmiast po procedurze ponownego składania na gorąco.
- Gdy roztwory do składania G4-TBA, ssTBA i dsTBA ostygną do RT, należy przeprowadzić wirowanie z krótkim wirowaniem (7 000 × g przez 5-8 s w temperaturze pokojowej) i rozpocząć reakcje sondowania.
- Przygotuj 21 pustych probówek autoklawowanych o pojemności 0,5 ml. Uporządkuj je w trzech zestawach po siedem probówek każdy w stojaku na próbki laboratoryjne, jak podano w tabeli 2.
UWAGA: Każdy zestaw kolumn odpowiada trzem różnym warunkom składania TBA: G4-TBA, ssTBA i dsTBA. Każdy rząd odpowiada trzem różnym czasom inkubacji. Każda komórka w kolumnie odpowiada końcowemu stężeniu sondy B-1 (tabela 2). Upewnij się, że rurki są wyraźnie oznaczone. - Dodaj 3 μl ultraczystej wody do każdej probówki.
- Dodać 5 μl złożonego G4-TBA do każdej probówki z pierwszego zestawu (krok 3.2). Dodać 5 μl złożonego ssTBA do każdej probówki z drugiego zestawu. Dodać 5 μl złożonego dsTBA do każdej probówki z trzeciego zestawu.
- Rozcieńczyć roztwór podstawowy B-1 do 250 μM i 25 μM w wodzie ultraczystej.
UWAGA: Rozcieńczenia sondy chemicznej B-1 muszą być świeżo przygotowane i natychmiast poddane reakcji z substratem DNA, aby uniknąć konkurencyjnych reakcji z wodą. - Dodać do próbek 2 μl odpowiedniego rozcieńczenia B-1 (25 μM i 250 μM). Zastąp związek ultraczystą wodą w trzech próbkach kontrolnych (C) w celu analizy różnie pofałdowanych TBA pod nieobecność związku. Inkubować wszystkie próbki w temperaturze 37 °C.
- Po 1 godzinach, 4 godzinach i 15 godzinach inkubacji należy przerwać reakcję, umieszczając probówki w temperaturze -20 °C do następnego etapu.
UWAGA: Próbki mogą być przechowywane w tych warunkach przez kilka dni. - Wysuszyć próbki w wirówce próżniowej.
UWAGA: Wysuszone próbki można przechowywać w temperaturze -20 °C przez kilka tygodni przed przystąpieniem do analizy PAGE.
Tabela 2: Próbki do reakcji sondowania (struktury, stężenia sondy i czas inkubacji). Każdy zestaw kolumn odpowiada trzem różnym warunkom składania TBA (G4-TBA, ssTBA i dsTBA). Każdy rząd odpowiada trzem różnym czasom inkubacji (1, 4, 15 godzin). Każda komórka w kolumnie odpowiada końcowemu stężeniu sondy B-1 (5 lub 50 μM). Kontrola (C) dla każdego zestawu odpowiada próbce różnie pofałdowanych TBA inkubowanych przez dłuższy czas (15 godzin) przy braku związku. Kliknij tutaj, aby pobrać tę tabelę.
4. STRONA w wysokiej rozdzielczości
- Przygotowanie denaturującego roztworu poliakrylamidu
UWAGA: Przygotuj wcześniej 500 ml 20% denaturującego roztworu żelu poliakrylamidowego. Do każdego eksperymentu zostanie użyte około 80 ml tego roztworu. Użyj butelki ze szkła oranżowego lub przykryj szklaną butelkę folią aluminiową do przechowywania roztworu w RT.
UWAGA: Poliakryloamid jest neurotoksyczny. Podczas wszystkich etapów przygotowania i nalewania żelu należy nosić rękawice i fartuch laboratoryjny. Wyrzuć spolimeryzowany akryloamid do odpowiedniego pudełka na zanieczyszczone materiały.- Odważyć 210 g mocznika w zlewce o pojemności 1 l. Dodać 250 ml 40% roztworu akrylamidu/bisakryloamidu (19/1) i 50 ml 10x TBE (890 mM Tris-HCl, 890 mM boranu, 20 mM EDTA, pH 8).
- Umieścić zlewkę na płytce mieszającej i wymieszać roztwór za pomocą mieszadła. Podczas mieszania przykryj zlewkę folią aluminiową, aby zapobiec rozpryskiwaniu i zanieczyszczeniu.
- Mieszać roztwór, aż mocznik całkowicie się rozpuści, a roztwór będzie klarowny.
UWAGA: Ten krok może potrwać wiele godzin. Aby przyspieszyć rozpuszczenie mocznika, dodaj niewielką porcję wody, nie przekraczając pożądanej objętości końcowej. - Wyjmij pręt mieszający. Wlej roztwór do cylindra i dodaj wodę do dokładnej końcowej objętości 500 ml.
- Ustawianie aparatury żelowej
- Oczyść dwie płytki (jedną z karbem i jedną bez karbu) 70% etanolem, pozwól im wyschnąć, a następnie potraktuj płytki roztworem dimetylodichlorosilanu.
UWAGA: Silanizację można pominąć, chociaż pomaga ona w uwalnianiu żelu z jednej z płytek po rozebraniu kanapki z żelem.
UWAGA: Z roztworem silanizacyjnym należy obchodzić się w rękawiczkach i przeprowadzać obróbkę płytki tym roztworem w dygestorium. - Umieść przekładki 0,4 mm wzdłuż długich krawędzi dłuższej płyty, umieść krótką płytkę na drugiej i wyrównaj dwie płytki na dole.
- Umieść wiele warstw taśmy papierowej wzdłuż wszystkich krawędzi z wyjątkiem góry.
- Aby uniknąć wycieków podczas odlewania, dodaj dodatkową warstwę taśmy na spód żelu.
- Przypnij boki szklanej kanapki czystymi zaciskami zgodnie z instrukcjami dostawcy (różni dostawcy używają nieco innego urządzenia, zacisków warstwowych i uszczelek).
- Oczyść dwie płytki (jedną z karbem i jedną bez karbu) 70% etanolem, pozwól im wyschnąć, a następnie potraktuj płytki roztworem dimetylodichlorosilanu.
- Nalewanie żelu
UWAGA: Wlać żel do temperatury RT (25 °C), ponieważ polimeryzacja poliakrylamidu jest wrażliwa na temperaturę.- Bezpośrednio przed użyciem wlać do zlewki 80 ml wcześniej przygotowanego roztworu poliakryloamidu denaturującego (krok 4.1), 450 μl 10% roztworu nadsiarczanu amonu (APS) o stężeniu 10% m/V oraz 45 μl tetrametyloetylenodiaminy (TEMED).
- Wymieszać roztwór i szybko wlać go między szklane płytki za pomocą strzykawki o pojemności 50 ml. Wprowadź grzebień z żądaną liczbą dołków między szklane płytki, unikając pęcherzyków. W razie potrzeby dodaj roztwór żelu, aby całkowicie wypełnić kanapkę. Umieść cztery zaciski na grzebieniu, aby docisnąć i umożliwić równomierne rozprowadzenie dołków.
- Pozwól żelowi polimeryzować przez co najmniej 45 minut.
- Uruchamianie żelu
- Po polimeryzacji usuń wszystkie zaciski i warstwy taśmy papierowej. Powoli wyjmij grzebień i dokładnie spłucz studzienki wodą destylowaną.
- Postępuj zgodnie z instrukcjami konkretnego dostawcy, aby prawidłowo umieścić kanapkę z żelem w pionowym aparacie do elektroforezy żelowej.
- Przygotować bufor do pracy TBE (1x: 89 mM Tris-HCl, 89 mM boran, 2 mM EDTA, pH 8) w wodzie dejonizowanej i napełnić buforem zarówno górny, jak i dolny zbiornik.
- Rozgrzej płytki, wykonując wstępny przebieg elektroforezy żelowej przez co najmniej 30 minut przy mocy 50 W.
- Przygotować denaturujący bufor ładujący żel (DGLB: 1 M Tris-HCl, 80% formamidu, 50% glicerolu, 0,05% błękitu bromofenolowego) w ultraczystej wodzie.
UWAGA: GLB pomaga śledzić przemieszczanie się próbek oligonukleotydów do systemu żelowego i umożliwia załadowanie próbek do studzienek żelu. Obecność środka denaturującego formamidu pozwala na rozdzielenie gatunków DNA w zależności od wielkości, nawet w niedenaturującym PAGE. - Ponownie zawiesić wysuszone próbki (próbki z etapu 3.8) w 5 μl DGLB.
- Przed załadowaniem próbek należy oczyścić studzienki za pomocą małej strzykawki i buforu TBE w górnej komorze buforowej w celu usunięcia mocznika z dołków.
UWAGA: Powtórz ten krok kilka razy, aby dokładnie wyczyścić studzienki, unikając w ten sposób pasm trudnych do interpretacji. - Załaduj próbki do czystych studzienek i zanotuj kolejność ładowania.
- Uruchom elektroforezę żelu przez 2 godziny przy mocy 50 W lub przynajmniej do momentu, gdy niebieski barwnik bromofenolowy spłynie w 2/3 w dół żelu.
- Obrazowanie żelu
- Po elektroforezie wyłącz zasilanie, wyjmij szklaną kanapkę i wyczyść szklanki.
- Wykryj fluorescencję prążków oligonukleotydowych znakowanych FAM, skanując za pomocą obrazownika żelowego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rysunek 2 przedstawia reprezentatywny wynik analizy mapowania chemicznego przeprowadzonej zgodnie z protokołem przy użyciu B-CeP 1 na oligonukleotydzie TBA sfałdowanym w trzech różnych strukturach. Układ G-kwadrupleks TBA (G4-TBA) uzyskano poprzez fałdowanie oligonukleotydu w BPE w obecności kationów K+, natomiast jednoniciową formę tej samej sekwencji TBA (ssTBA) sfałdowano wykluczając obecność potasu. Konstrukt dwuniciowy (dsTBA) przygotowano poprzez hybrydyzację TBA z jego sekw...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
G-kwadrupleksy to drugorzędowe struktury kwasów nukleinowych, które zazwyczaj fałdują się w sekwencjach DNA bogatych w guaninę i są ważnymi celami badawczymi ze względu na ich związek z kontrolą genetyczną i chorobami. Mapowanie chemiczne za pomocą B-CePs jest użytecznym protokołem do charakterystyki DNA G4s, który może być wykorzystany do identyfikacji zasad guaninowych zaangażowanych w tworzenie G-tetrad w fizjologicznych warunkach solnych.
Sonda chemiczna użyta w tym protokole to B-1 (
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez Wydział Nauk Farmaceutycznych i Farmakologicznych Uniwersytetu w Padwie (PRIDJ-BIRD2019).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Roztwór akrylamidu/bis-akrylamidu 40% | Zastosowanie | A3658 | R45-46-20/21-25-36/38-43-48/23/ 24/25-62 |
| Nadsiarczan amonu (APS) | Sigma Aldrich | A7460 | |
| Waga analityczna | Mettler Toledo | ||
| Autoklaw | pbi międzynarodowy | ||
| Kwas borowy | Sigma Aldrich | B0252 | |
| Błękit bromofenolowy Błękit brylantowy R | Sigma Aldrich | B0149 | |
| wodorofosforan sodu dwunastowodny | Fluka | 71649 | |
| DMSO | Sigma Aldrich | 276855 | |
| Oligonukleotydy DNA | Zintegrowane technologie DNA | synteza niestandardowych sekwencji | |
| EDTA disodowy | Sigma Aldrich | E5134 | |
| Formamid | Fluka | 40248 | H351-360D-373 |
| Obrazownik żelowy | GE Healtcare | STORM B40 | |
| Glicerol | Sigma Aldrich | G5516 | |
| Mikroprobówki 0,5 ml | Sarstedt | 72.704 | |
| Chlorek potasu | Sigma Aldrich | P9541 | |
| Aparatura do sekwencjonowania | Biometra | Model S2 | |
| Roztwór silanizacyjny I | Fluka | 85126 | H225, 314, 318, 336, 304, 400, 410 |
| Fosforan sodu jednozasadowy | Carlo Erba | 480086 | |
| Koncentrator Speedvac | Thermo Scientific | Savant DNA 120 | |
| TEMED | Fluka | 87689 | R11-21/22-23-34 |
| Tris-HCl | MERCK | 1.08387.2500 | |
| Mocznik | Sigma Aldrich | 51456 | |
| Spektrofotometr UV-Vis | Thermo Scientific | Nanodrop 1000 |
Bibliografia
- Davis, J. T. G-quartets 40 years later: from 5'-GMP to molecular biology and supramolecular chemistry. Angewandte Chemie. 43 (6), 668-698 (2004).
- Varshney, D., Spiegel, J., Zyner, K., Tannahill, D., Balasubramanian, S. The regulation and functions of DNA and RNA G-quadruplexes. Nature Reviews Molecular Cell Biology. 21 (8), 459-474 (2020).
- Chambers, V. S., et al. High-throughput sequencing of DNA G-quadruplex structures in the human genome. Nature Biotechnology. 33 (8), 877-881 (2015).
- Zuravka, I., Sosic, A., Gatto, B., Gottlich, R. Synthesis and evaluation of a bis-3-chloropiperidine derivative incorporating an anthraquinone pharmacophore. Bioorganic & Medicinal Chemistry Letters. 25 (20), 4606-4609 (2015).
- Zuravka, I., Roesmann, R., Sosic, A., Gottlich, R., Gatto, B. Bis-3-chloropiperidines containing bridging lysine linkers: Influence of side chain structure on DNA alkylating activity. Bioorganic & Medicinal Chemistry. 23 (6), 1241-1250 (2015).
- Zuravka, I., et al. Synthesis and DNA cleavage activity of bis-3-chloropiperidines as alkylating agents. ChemMedChem. 9 (9), 2178-2185 (2014).
- Sosic, A., Gottlich, R., Fabris, D., Gatto, B. B-CePs as cross-linking probes for the investigation of RNA higher-order structure. Nucleic Acids Research. 49 (12), 6660-6672 (2021).
- Sosic, A., et al. Bis-3-chloropiperidines targeting TAR RNA as a novel strategy to impair the HIV-1 nucleocapsid protein. Molecules. 26 (7), 1874(2021).
- Sosic, A., et al. In vitro evaluation of bis-3-chloropiperidines as RNA modulators targeting TAR and TAR-protein interaction. International Journal of Molecular Sciences. 23 (2), 582(2022).
- Sosic, A., et al. Direct and topoisomerase II mediated DNA damage by bis-3-chloropiperidines: The importance of being an earnest G. ChemMedChem. 12 (17), 1471-1479 (2017).
- Bock, L. C., Griffin, L. C., Latham, J. A., Vermaas, E. H., Toole, J. J. Selection of single-stranded DNA molecules that bind and inhibit human thrombin. Nature. 355 (6360), 564-566 (1992).
- Paborsky, L. R., McCurdy, S. N., Griffin, L. C., Toole, J. J., Leung, L. L. The single-stranded DNA aptamer-binding site of human thrombin. The Journal of Biological Chemistry. 268 (28), 20808-20811 (1993).
- Carraro, C., et al. Behind the mirror: chirality tunes the reactivity and cytotoxicity of chloropiperidines as potential anticancer agents. ACS Medicinal Chemistry Letters. 10 (4), 552-557 (2019).
- Carraro, C., et al. Appended aromatic moieties in flexible bis-3-chloropiperidines confer tropism against pancreatic cancer cells. ChemMedChem. 16 (5), 860-868 (2021).
- Kypr, J., Kejnovska, I., Renciuk, D., Vorlickova, M. Circular dichroism and conformational polymorphism of DNA. Nucleic Acids Research. 37 (6), 1713-1725 (2009).
- Onel, B., Wu, G., Sun, D., Lin, C., Yang, D. Electrophoretic mobility shift assay and dimethyl sulfate footprinting for characterization of G-quadruplexes and G-quadruplex-protein complexes. Methods in Molecular Biology. 2035, 201-222 (2019).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
