Opisano tutaj prosty proces różnicowania komórek śródbłonka od ludzkich pluripotencjalnych komórek macierzystych, a następnie szczegółowy protokół ich mechanicznej stymulacji. Pozwala to na badanie mechanobiologii rozwojowej komórek śródbłonka. Podejście to jest kompatybilne z dalszymi testami żywych komórek pobranych z chipa hodowlanego po stymulacji mechanicznej.
Artykuł metodologiczny
In vitro Model płodu ludzkiego naczynia na chipie do badania mechanobiologii rozwojowej
W tym artykule
Podsumowanie
Streszczenie
Serce jest pierwszym organem, który jest funkcjonalnie tworzony podczas rozwoju, inicjując w ten sposób krążenie krwi bardzo wcześnie w ciąży. Oprócz transportu tlenu i składników odżywczych w celu zapewnienia wzrostu płodu, krążenie płodu kontroluje wiele kluczowych wydarzeń rozwojowych zachodzących w warstwie śródbłonka za pomocą wskazówek mechanicznych. Sygnały biomechaniczne indukują zmiany strukturalne w naczyniach krwionośnych, ustalają specyfikację tętniczo-żylną i kontrolują rozwój hematopoetycznych komórek macierzystych. Niedostępność rozwijających się tkanek ogranicza zrozumienie roli krążenia we wczesnym rozwoju człowieka; Dlatego modele in vitro są kluczowymi narzędziami do badania mechanobiologii naczyń krwionośnych. W artykule opisano protokół różnicowania komórek śródbłonka od indukowanych przez człowieka pluripotencjalnych komórek macierzystych, a następnie ich umieszczania w urządzeniu fluidycznym w celu zbadania ich reakcji na sygnały mechaniczne. Takie podejście pozwala na długotrwałą hodowlę komórek śródbłonka pod wpływem stymulacji mechanicznej, a następnie pobranie komórek śródbłonka w celu charakterystyki fenotypowej i funkcjonalnej. Opracowany w ten sposób model in vitro będzie miał zasadnicze znaczenie dla wyjaśnienia wewnątrzkomórkowych mechanizmów molekularnych, które transdukują sygnalizację, w której pośredniczą sygnały mechaniczne, które ostatecznie kierują rozwojem naczyń krwionośnych podczas życia płodowego człowieka.
Wprowadzenie
Podczas rozwoju embrionalnego, serce jest pierwszym organem, który osiąga funkcjonalność1, z wykrywalnymi skurczami od najwcześniejszego etapu tworzenia się rurki wsierdziowej2. Krążenie, wraz z mechanicznymi sygnałami, w których pośredniczy przepływ krwi w naczyniu, kontroluje wiele kluczowych aspektów wczesnego rozwoju. Przed ustanowieniem krążenia płodowego układ naczyniowy jest zorganizowany w pierwotny splot kapilarny; Po funkcjonowaniu serca splot ten reorganizuje się w naczynia żylne i tętnicze3. Rola wskazówek mechanicznych w specyfikacji tętniczo-żylnej znajduje odzwierciedlenie w panśródbłonkowej ekspresji markerów tętniczych i żylnych przed inicjacją przepływu krwi4.
Siły hemodynamiczne nie tylko kontrolują rozwój samego układu krwi, ale także odgrywają fundamentalną rolę w kontrolowaniu tworzenia się krwinek. Hematopoetyczne komórki macierzyste i progenitorowe (HSPC) wyłaniają się z wyspecjalizowanych komórek śródbłonka zwanych śródbłonkiem hemogennym5,6,7,8, obecne w różnych regionach anatomicznych zarodków wyłącznie we wczesnym stadium rozwoju. Modele z niedoborem serca, wraz z modelami in vitro, wykazały, że mechaniczne sygnały instruują i zwiększają produkcję HSPC z hemogennego śródbłonka9,10,11,12,13,14.
Wykazano, że różne rodzaje dynamiki przepływu w różny sposób kontrolują cykl komórkowy15, znane jako ważne zarówno w endothelium hemogennym16,17 i specyfikacji komórek tętniczych18. Ogólnie rzecz biorąc, sygnały mechaniczne są krytycznymi determinantami tożsamości i funkcji komórki podczas rozwoju. Nowatorskie urządzenia fluidyczne in vitro pozwalają nam przezwyciężyć ograniczenia związane z badaniem mechanobiologii rozwojowej podczas rozwoju ludzkiej krwi in vivo.
Ogólnym celem protokołu w tym manuskrypcie jest opisanie, krok po kroku, eksperymentalnego procesu badania wpływu naprężeń ścinających na ludzkie komórki śródbłonka pochodzące in vitro z ludzkich indukowanych pluripotencjalnych komórek macierzystych (hiPSC). Protokół ten zawiera szczegółowe instrukcje dotyczące różnicowania hiPSC w komórki śródbłonka, a następnie ich umieszczania w chipach płynnych w celu protokołu stymulacji. Korzystając z tego, różne komórki śródbłonka pochodzące z in vitro mogą być testowane pod kątem ich zdolności do wyczuwania naprężeń ścinających, analizując ich orientację w odpowiedzi na przepływ. Umożliwi to innym laboratoriom zajęcie się pytaniami dotyczącymi reakcji na naprężenia ścinające i ich funkcjonalnych konsekwencji dla różnych tożsamości komórek śródbłonka.
Protokół
UWAGA: Wszystkie techniki hodowli komórkowej muszą być wykonywane w sterylnych warunkach w kapturze z przepływem laminarnym, a komórki muszą być inkubowane w temperaturze 37 °C w wilgotnej atmosferze z 5% CO2. Instrukcje dotyczące przygotowania cytokin zarówno do leczenia podtrzymującego (rhbFGF), jak i do protokołu różnicowania (rhBMP4, rhVEGF, rhbFGF, rhIL6, rhFLT3L, rhIGF1, rhIL11, rhSCF, rhEPO, rhTPO, rhIL3) znajdują się w tabeli uzupełniającej S1.
1. Hodowla hiPSC - rozmrażanie, utrzymywanie i zamrażanie komórek
- Przygotowanie pożywki konserwacyjnej, czynników wzrostu i innych odczynników
- Przygotować pożywkę hodowlaną, dodając cały suplement pożywki bez surowicy hESC, 36 ml 25% albuminy surowicy bydlęcej (BSA) i 1 ml 55 mM β-merkaptoetanolu do podłoża podstawowego Dulbecco Modified Eagle Medium/F12 (DMEM/F-12) (patrz tabela materiałów).
- Zawiesić 1 mg inhibitora kinazy Rho (iRock) w 1 ml DMSO, zrobić porcje 50 μl i przechowywać je w temperaturze -20 °C.
UWAGA: Te podwielokrotności można przechowywać w temperaturze -20 °C przez 1 rok. Po rozmrożeniu można je przechowywać w temperaturze 4 °C przez 1 tydzień. - Rozmrozić roztwór witronektyny (VTN-N) na lodzie i porcji 60 μl na fiolkę przed przechowywaniem w temperaturze -80 °C. Tuż przed pokryciem płytek należy rozcieńczyć 60 μl bulionu w 6 ml soli fizjologicznej buforowanej fosforanami (DPBS) firmy Dulbecco; końcowe stężenie 5 μg/ml.
- rozmrażanie linii komórkowej hiPSC
UWAGA: Ludzka pluripotencjalna linia komórek macierzystych SFCi55 została wcześniej opracowana wewnętrznie i szeroko stosowana do różnicowania w różne typy komórek i różne linie embrionalne19,20,21,22.- Pokryć jedno zagłębienie płytki 6-dołkowej 1 ml roztworu VTN-N przez 1 godzinę w temperaturze 37 °C.
UWAGA: Po inkubacji powlekane płytki można przechowywać w temperaturze 4 °C do 1 tygodnia. - Odessać roztwór VTN-N za pomocą pipety aspiracyjnej i dodać 1 ml wstępnie podgrzanej pożywki hodowlanej uzupełnionej 20 ng/ml rhbFGF (tabela uzupełniająca S1).
- Szybko rozmrozić fiolkę zawierającą hiPSC w łaźni wodnej i przenieść komórkę do 5 ml wstępnie podgrzanej pożywki hodowlanej.
- Wiruj komórki przez 3 minuty w temperaturze 300 × g w temperaturze pokojowej.
- Zawiesić osad komórkowy w 0,5 ml pożywki hodowlanej uzupełnionej 20 ng/ml rhbFGF.
- Przenieść komórki do jednego zbiornika powlekanego, zawierającego już 1 ml pożywki.
- Dodaj 5 μl iRock do studzienek zawierających komórki w sumie 1,5 ml pożywki.
- Hoduj komórki w inkubatorze, zmieniaj pożywkę codziennie w ciągu tygodnia i podwójnie nakarm komórki, dodając do komórek dwa razy więcej niż normalna objętość pożywki, aby zapewnić karmienie w weekend.
UWAGA: Komórki są hodowane w obecności iRock tylko przez 24 godziny.
- Pokryć jedno zagłębienie płytki 6-dołkowej 1 ml roztworu VTN-N przez 1 godzinę w temperaturze 37 °C.
- Konserwacja i przenikanie hiPSC
- Codziennie zmieniaj pożywkę na świeżą, wstępnie podgrzaną pożywkę hodowlaną uzupełnioną 20 ng/ml rhbFGF.
- Przechodzą komórki, gdy osiągną około 80% zbieżności, zwykle dwa razy w tygodniu.
- Aby przejść przez komórki, pokryj płytkę VTN-N, jak opisano wcześniej w krokach 1.2.1 i 1.2.2.
- Odessać pożywkę ze studzienek z komórkami i umyć je DPBS.
- Odessać DPBS i dodać 1 ml odczynnika dysocjacyjnego (patrz tabela materiałów) i inkubować przez 1 minutę.
- Zassać odczynnik dysocjacyjny i inkubować przez kolejne 3 minuty. Mocno postukać w płytkę 10 razy z każdej strony.
UWAGA: Etap dysocjacji może wymagać optymalizacji specyficznej dla typu komórki w czasie inkubacji i procedurze stukania. - Dodać 1 ml pożywki hodowlanej do komórek i za pomocą pipety Pasteura przemyć raz pożywką, aby upewnić się, że większość kolonii została zebrana.
- Dodaj 150 μl zawiesiny komórkowej do każdej studzienki, aby uzyskać współczynnik pasażu 1 studzienki do 6,
UWAGA: Natychmiast po rozmrożeniu nowej fiolki lepiej jest pasażować komórki w niższych proporcjach, takich jak 1:1 lub 1:2 przez jedno lub dwa pasaże, aby umożliwić im osiągnięcie stałej fazy wzrostu przed pasażowaniem w stosunku 1:6. - Hoduj komórki w inkubatorze, zmieniaj pożywkę codziennie w ciągu tygodnia i dwukrotnie nakarm komórki raz w ciągu weekendu.
- zamrażanie linii komórkowych hiPSCs
UWAGA: Zamrozić komórki w ciągu ich pierwszych dwóch pasaży po rozmrożeniu, aby zapewnić utrzymanie stałej partii zamrożonych fiolek o niskim pasażu, aby rozpocząć hodowlę. Zamroź komórki, gdy osiągną zbieg około 80%.- Zmienić pożywkę na świeżą, wstępnie ogrzaną pożywkę hodowlaną uzupełnioną 20 ng/ml rhbFGF i 5 μl iRock i inkubować przez co najmniej 1 godzinę.
- Odłącz ogniwa zgodnie z opisem w krokach 1.3.2.2-1.3.2.5.
- Zebrać oderwane komórki w probówce wirówkowej o pojemności 15 ml zawierającej 5 ml pożywki hodowlanej.
- Wirować przez 3 minuty w temperaturze 300 × g w temperaturze pokojowej.
- Odessać supernatant i dodać 1 ml roztworu do kriokonserwacji (patrz tabela materiałów).
- Za pomocą pipety Pasteura delikatnie pipetuj komórki w górę i w dół, aby wymieszać je w roztworze do krioprezerwacji.
UWAGA: Należy unikać nadmiernego pipetowania, ponieważ może to spowodować dysocjację klastrów komórek. - Podzielić zawiesinę komórek na dwie fiolki do krioprezerwacji po 0,5 ml każda.
- Przenieść fiolki do krioprezerwacji do pojemnika do krioprezerwacji wstępnie schłodzonego w temperaturze 4 °C.
- Przenieść pojemnik z komórkami do zamrażarki o temperaturze -80 °C na 24 godziny przed przeniesieniem fiolek do ciekłego azotu w celu długotrwałego przechowywania.
2. Różnicowanie hiPSC w komórki śródbłonka
- Przygotowanie pożywki różnicującej, cytokin i czynników wzrostu
- Przygotować pożywkę różnicującą bez surowicy (SFD) zgodnie z tabelą 1. Użyj tego podłoża od dnia 0 do dnia 5 różnicowania.
- Przygotuj pożywkę bez surowicy dla komórek CD34+ (SFM-34), dodając 34 suplementy odżywcze i 5 ml suplementu L-glutaminy do podłoża podstawowego 34 SFM (patrz tabela materiałów). Stosuj tę pożywkę od 6 dnia różnicowania.
- Zawiesić 1 mg CHIR99021 w 716 μl DMSO, aby uzyskać roztwór 3 mM. Inkubować w temperaturze pokojowej aż do całkowitego zawieszenia; w razie potrzeby szybko rozgrzać w temperaturze 37 °C. Przygotować 20 μl porcji i przechowywać je w temperaturze -20 °C przez okres do 6 miesięcy. Zużyć natychmiast po rozmrożeniu i nie zamrażać ponownie ani nie przechowywać.
- Zawiesić cytokiny zgodnie z instrukcją w tabeli uzupełniającej S1. Przechowywać wszystkie podwielokrotności cytokin w temperaturze -80 °C.
- Różnicowanie komórek śródbłonka
UWAGA: Na każdy dzień różnicowania należy przygotować 18 ml (3 ml pożywki/basenik) wstępnie podgrzanej pożywki SFD, zgodnie z mieszankami cytokin opisanymi w Tabeli 2.- Dzień 0 - tworzenie ciał zarodkowych (EB)
- Przygotować 18 ml pożywki SFD z mieszanką 1 cytokiny zgodnie z tabelą 2 dla każdej płytki 6-dołkowej (3 ml / dołek).
- Dodaj 2 ml wstępnie podgrzanej pożywki SFD z wymieszaniem 1 cytokiny w każdym dołku 6-dołkowej płytki odstraszającej komórki (patrz Tabela materiałów).
- Aby utworzyć EB, wykonaj czynności opisane w krokach 1.3.2.2-1.3.2.4.
UWAGA: Upewnij się, że hiPSC są zlewane w 70-80%, aby rozpocząć różnicowanie. - Dodaj 1 ml wstępnie podgrzanej pożywki SFD z wymieszaniem 1 cytokin do każdej studzienki odłączonych klastrów komórek.
- Za pomocą pipety Pasteura delikatnie przenieś skupiska komórek do pojedynczego dołka z dołkiem odstraszającym komórki w celu utworzenia EB w stosunku 1:1.
- Po umieszczeniu płytki w inkubatorze przesuwaj ją do przodu i do tyłu, w prawo i w lewo, aby równomiernie rozprowadzić EB w studzience.
- Dzień 1 - średnia zmiana w EBs
UWAGA: Ten krok jest konieczny tylko wtedy, gdy do 1 dnia różnicowania obok EB znajduje się wiele pojedynczych komórek w zawiesinie.- Przygotować 18 ml pożywki SFD z mieszanką 1 cytokiny zgodnie z tabelą 2 dla każdej płytki 6-dołkowej (3 ml / dołek).
- Zakręć płytką z EBs, aby przesunąć je do środka i zebrać za pomocą pipety Pasteura do probówki wirówkowej o pojemności 15 ml.
UWAGA: Jeśli EB wyglądają na zlepione ze sobą jak w sznurkach, oddziel je, pipetując je w górę iw dół za pomocą P1000 przed zebraniem ich do probówki wirówkowej o pojemności 15 ml. - Odczekaj 5-10 minut, aż EB osiądą na dnie probówki.
UWAGA: Jeśli EB są zbyt małe, odwiruj je przez 5 minut w temperaturze 100 × g, aby pomóc im się ustabilizować. - Umyj płytki odstraszające komórki sterylną wodą lub DPBS, aby usunąć wszelkie pojedyncze komórki lub zanieczyszczenia.
- Ostrożnie i powoli odsysać supernatant z EB, nie usuwając ich.
- Dodaj 2 ml SFD z cytokinami Mix 1 do każdej studzienki płytek odstraszających komórki.
- Ponownie zawiesić EB za pomocą 1 ml pożywki SFD z cytokinami Mix 1 dla każdej studzienki początkowej - w przypadku płytki 6-dołkowej dodać 6 ml pożywki.
- Przenieś EB na płytki odpychające komórki w objętości 1 ml na studzienkę, która zawiera już 2 ml pożywki SFD.
- Po umieszczeniu płytki w inkubatorze przesuwaj ją do przodu i do tyłu, w prawo i w lewo, aby równomiernie rozprowadzić EB w studzience.
- Dzień 2 - dodanie CHIR99021
- Zawiruj EB na środku płytki i dodaj CHIR99021 zgodnie z tabelą 2 z boku studzienki, aby uniknąć bezpośredniego kontaktu z komórkami.
UWAGA: Jeśli pożywka nie została zmieniona w dniu 1, wymień całą pożywkę zamiast dodawać samą pożywkę. Przygotować 18 ml pożywki SFD z mieszanką 2 zgodnie z tabelą 2 dla każdej płytki 6-dołkowej (3 ml / dołek). - Po umieszczeniu płytki w inkubatorze przesuwaj ją do przodu i do tyłu, w prawo i w lewo, aby równomiernie rozprowadzić EB w studzience.
- Zawiruj EB na środku płytki i dodaj CHIR99021 zgodnie z tabelą 2 z boku studzienki, aby uniknąć bezpośredniego kontaktu z komórkami.
- Dzień 3 - zmiana pożywki na EB i dodanie cytokin Mix 3
- Przygotuj 18 ml pożywki SFD z mieszanką 3 cytokin zgodnie z tabelą 2 dla każdej płytki 6-dołkowej (3 ml / dołek).
- Zbierz EB zgodnie z opisem w krokach 2.2.2.2-2.2.2.4.
- Dodaj podgrzane 2 ml pożywki SFD z mieszanką 3 cytokin do płytek odstraszających komórki.
- Ostrożnie odessać supernatant z EBs. Dodaj 1 ml / studzienkę SFD z mieszanką 3 cytokin.
- Rozprowadzić EB między studzienkami zgodnie z opisem w krokach 2.2.2.8-2.2.2.9.
- Dzień 6 - zmiana pożywki dla SFM-34 i dodanie cytokin Mix 4
- Przygotować 18 ml pożywki SFD z mieszanką 4 cytokin zgodnie z tabelą 2 dla każdej płytki 6-dołkowej (3 ml / dołek).
- Zbierz EB zgodnie z opisem w krokach 2.2.2.2-2.2.2.4.
- Dodaj 2 ml podgrzanej pożywki SFM-34 z wymieszaniem 4 cytokin do płytek odstraszających komórki.
- Ostrożnie odessać supernatant z EBs. Dodaj 1 ml / dołek SFM-34 z mieszanką 4 cytokin.
- Rozprowadzić EB między studzienkami zgodnie z opisem w krokach 2.2.2.8-2.2.2.9.
- Dzień 0 - tworzenie ciał zarodkowych (EB)
3. Izolacja komórek CD34+ i wprowadzenie ich do chipa
UWAGA: Komórki CD34+ są izolowane metodą pozytywnej izolacji za pomocą zestawu mikrokulek CD34 (patrz Tabela Materiałów), który zawiera mikrogranulki CD34 sprzężone z monoklonalnymi przeciwciałami myszymi, przeciwciałami antyludzkimi CD34 i odczynnikiem blokującym FcR (Human IgG). Ważne jest, aby potwierdzić skuteczność izolacji kolumny poprzez barwienie komórek przed i po izolacji w celu analizy cytometrii przepływowej, Poniżej wskazano, kiedy należy pobrać komórki do tej analizy.
- Przygotuj materiały i odczynniki.
- Przygotować bufor do przemywania przez dodanie 5 ml 5% roztworu BSA i 200 μl EDTA 0,5 M do 45 ml DPBS w celu uzyskania PBS + 0,5% BSA + 2 mM EDTA. Przygotuj świeże do każdej izolacji, przefiltruj-sterylizuj i przechowuj w lodówce do czasu użycia.
- Powłożyć płynne wióry roztworem lamininy przygotowanym przez rozcieńczenie rhLaminin 521 1:50 w DPBS Ca2 + Mg2+. Pokryć każdy wiór odpowiednią objętością dla używanego wióra i inkubować w inkubatorze przez 2 godziny przed siewem.
UWAGA: Do powlekania można zastosować inne matryce, które powinny być testowane pod kątem określonego typu ogniwa/eksperymentu. - Przygotować pożywkę Mix 4 SFM-34, uzupełniając 18 ml pożywki SFM-34 cytokinami Mix 4 zgodnie z tabelą 2 i umieścić mieszaninę w probówce o pojemności 50 ml w inkubatorze z lekko odkręconą pokrywą w celu ułatwienia wymiany gazowej.
- Umieść wybrane zestawy perfuzyjne i wszelkie inne rurki, które mają być używane w inkubatorze, aby odgazować.
- Dzień 8 - dysocjacja EB i izolacja CD34+
- Zbierz EB zgodnie z opisem w krokach 2.2.2.2-2.2.2.5.
- Dodać 1 ml odczynnika do dysocjacji komórek na początkową studzienkę zebranych EB (jeśli zebrano 6 studzienek, dodaj 6 ml).
- Przenieść z powrotem 1 ml zawiesiny EB w odczynniku do dysocjacji komórek do każdego dołka płytki odstraszającej komórki.
- Inkubować przez 10 minut w inkubatorze.
- Delikatnie pipetuj EB w górę iw dół do studzienki za pomocą P1000, nie więcej niż 10 razy.
- Powtórz kroki 3.2.4-3.2.5., aby uzyskać łącznie 3x.
UWAGA: Jeśli EB są trudne do rozdzielenia, powtórz powyższe kroki łącznie 4x. - Dodać 5 ml buforu płuczącego do każdej studzienki zdysocjowanych EB.
- Zebrać komórki do probówki wirówkowej o pojemności 50 ml, przepuszczając je przez sitko o pojemności 40 μm. Weź 10 μl zawiesiny komórek, aby policzyć komórki.
UWAGA: Aby przetestować skuteczność izolacji, przenieś 105 komórek/probówkę do dwóch różnych probówek (niebarwionej próbki kontrolnej i wstępnie posortowanej próbki testowej), które zostaną później wykorzystane do cytometrii przepływowej (jak opisano w krokach 4.3.9-4.3.13). W przypadku płytki 6-dołkowej należy zebrać ~106 komórek po filtracji. - Wiruj komórki przez 10 minut w temperaturze 300 × g.
- Ponownie zawiesić komórki w 300 μl buforu do płukania, delikatnie pipetując kilka razy, aby upewnić się, że nie ma grudek. Postępuj zgodnie z protokołem producenta (patrz Tabela materiałów).
- Wywoływanie komórek CD34+ do płynnych chipów
UWAGA: Układ fluidyczny użyty w protokole ma wysokość kanału 0,6 mm i długość 50 mm, co daje całkowity obszar wzrostu 2,5 cm2 (rysunek uzupełniający S1). Ten rodzaj chipa jest wysiewany z całkowitą objętością zawiesiny komórek wynoszącą 150 μL. Można stosować różne wióry, a objętość wysiewu i gęstość komórek należy dostosować do obszaru wzrostu. Może być potrzebna dodatkowa optymalizacja w zależności od użytej linii komórkowej i jej wzrostu.- Ponownie zawiesić wyizolowane komórki CD34 + w 300 μl wstępnie podgrzanej pożywki SFM-34 z cytokinami Mix 4.
- Pobrać 10 μl zawiesiny komórkowej i policzyć komórki.
- Zawiesić 2,5 × 10⁵ komórek w końcowej objętości 150 μl uzupełnionego SFM-34; dodać 0,5 μl iRock.
UWAGA: Aby przetestować skuteczność izolacji, przenieść 105 komórek/probówkę do probówki (posortowanej próbki testowej), która zostanie później wykorzystana do cytometrii przepływowej (zgodnie z opisem w krokach 4.3.9-4.3.13). - Powoli odsysaj lamininę z płynnych wiórów, umieszczając końcówkę P200 w zbiorniku na krawędzi kanału.
UWAGA: Jeśli płyn jest trudny do zebrania, powoli podnieś jedną stronę chipa, aby pomóc płynowi przesunąć się do przeciwległego zbiornika. - Stopniowo dodawaj zawiesinę komórkową do kanału, aby upewnić się, że nie tworzą się pęcherzyki.
UWAGA: Kroki 3.3.4-3.3.5 należy wykonać szybko, ale delikatnie, aby uniknąć wysychania lamininy i tworzenia się pęcherzyków w kanałach chipa. Jeśli utworzą się pęcherzyki, podnieś jedną stronę chipa i delikatnie postukaj w szkiełko, aby zmobilizować bąbelki; Kiedy dotrą do zbiornika, wzniosą się do interfejsu powietrza i nie powinny być w stanie wydzierżawić kanału. - Przenieś chip do inkubatora i pozostaw je na noc, aby komórki były całkowicie przymocowane do kanału i wyglądały na wydłużone.
- Gdy komórki są w pełni połączone, odessać pożywkę jak w kroku 3.3.4 i zastąpić ją 200 μl SFM-34 uzupełnionego cytokinami.
- Od teraz wymieniaj pożywkę codziennie, aż komórki osiągną 90%-100% zbieżności.
4. Zastosowanie ciągłego przepływu do komórek śródbłonka - Aorta-on-a-chip
- Przygotuj materiały i odczynniki.
- Przygotować pożywkę Mix 4 SFM-34, uzupełniając 18 ml pożywki SFM-34 cytokinami Mix 4 zgodnie z tabelą 2 i umieścić ją w probówce o pojemności 50 ml w inkubatorze z lekko odkręconą pokrywką w celu ułatwienia wymiany gazowej.
- Umieść wybrane zestawy perfuzyjne i wszelkie rurki, które mają być używane do konfiguracji płynowej w inkubatorze, aby odgazować.
- Montaż układu fluidycznego
- Zamontuj zestaw perfuzyjny w urządzeniu zgodnie z protokołem producenta.
UWAGA: Pamiętaj o użyciu clamów w systemie. Jeśli do tego kroku używane są zaciski przesuwne, należy je nasunąć na rurkę przed podłączeniem do chipa. - Podłącz nowy chip fluidyczny i dodaj pożywkę SFM-34 uzupełnioną cytokinami, upewniając się, że oba zbiorniki są napełnione w sterylnych warunkach w kapturze.
- Wykonaj program usuwania pęcherzyków powietrza i etap kalibracji.
- Wyjąć z inkubatora jednostkę fluidyczną wraz z podłączonym zestawem i przenieść ją do pokrywy; należy również pobrać wióry zawierające komórki z inkubatora.
- Clamp rurkę po obu stronach chipa testowego.
- Wyjmij rurkę z chipa testowego.
UWAGA: Sprawdź, czy w złączu Luer na końcu rurki nie ma pęcherzyków powietrza. Jeśli widoczne są pęcherzyki, ostrożnie zassaj je za pomocą pipety P200 i jeśli to konieczne, dodaj więcej pożywki, aby upewnić się, że łącznik jest wypełniony medium. - Połącz chip zawierający ogniwa z rurką.
- Zdejmij lub otwórz zaciski.
- Przenieś system do inkubatora i podłącz pompę powietrza do jednostki fluidycznej.
- Uruchomić wstępnie wybrany program za pomocą oprogramowania dedykowanego dla pompy (rysunek uzupełniający S2) ze stopniowym wzrostem naprężenia ścinającego opisanym w tabeli 3.
UWAGA: W zależności od konkretnego eksperymentu, który jest potrzebny, program stymulacji może wymagać optymalizacji. Opisano tutaj stopniowy wzrost naprężenia ścinającego prowadzący do końcowej wartości 5 dyn/cm2, która naśladuje naprężenie ścinające obliczone na ścianę aorty grzbietowej na początku krążenia płodu 9. Niezależnie od końcowego naprężenia ścinającego, które zostanie zastosowane, konieczne jest stopniowe zwiększanie w czasie, aby umożliwić ogniwom dostosowanie się do siły bez powodowania odłączania się komórek od chipa. Jeśli wybrany protokół stymulacji jest dłuższy niż 3 dni, cytokiny należy uzupełnić do systemu poprzez dodanie 1 ml SFM-34 zawierającego cytokiny Mix 4, które normalnie zostałyby dodane do 18 ml. W tym celu program pompowania jest szybko zatrzymywany, a do każdej z dwóch strzykawek w zestawie fluidycznym dodaje się 500 μl uzupełnionego podłoża.
- Zamontuj zestaw perfuzyjny w urządzeniu zgodnie z protokołem producenta.
- Pobieranie komórek do analizy
- Podgrzej bufor dysocjacyjny w łaźni wodnej.
- Wyjmij jednostkę fluidyczną z inkubatora i przenieś ją do okapu.
- Zaciśnij rurkę otaczającą chip po obu stronach i wyjmij rurkę ze zbiorników na chipie.
- Delikatnie wyjmij pożywkę z chipa i zastąp ją DPBS Ca2+ Mg2+, aby umyć ogniwa.
UWAGA: Ten etap mycia PBS można pominąć, jeśli komórki zaczną się odłączać. - Delikatnie dodać 150 μl buforu dysocjacyjnego i inkubować przez 3 minuty w temperaturze 37 °C.
UWAGA: Sprawdź pod mikroskopem, czy komórki są pojedyncze i odłączone; W przeciwnym razie inkubuj przez dodatkowe 2 minuty. Istotne jest, aby komórki zostały całkowicie odłączone od kanału przed zasysaniem pożywki, ponieważ chip nie pozwala na pomoc w odłączaniu komórek przez pipetowanie. Do odłączenia komórek można zastosować inne roztwory, takie jak trypsyna lub na bazie EDTA. - Zebrać bufor dysocjacyjny zawierający komórki z jednego zbiornika i przenieść do probówki wirówkowej o pojemności 15 ml i przemyć kanał raz DPBS, aby zebrać wszystkie oderwane komórki.
- Dodać 1 ml buforu płuczącego do probówki o pojemności 15 ml z komórkami i pobrać 10 μl, aby policzyć komórki.
- Podziel zawiesinę komórek w probówkach do cytometrii przepływowej, aby mieć10-5 komórek na probówkę.
- Wiruj probówki przez 5 minut w temperaturze 300 × g.
- Przygotuj roztwór barwiący tak, aby miał 50 μl na każdą probówkę do zabarwienia. Dodać CD34 PerCP-efluor710 lub CD34-PE w rozcieńczeniu odpowiednio 1:100 i 1:200.
- Zawiesić komórki w 50 μl roztworu barwiącego i inkubować przez 30 minut w temperaturze 4 °C.
- Umyj komórki, dodając 2 ml buforu płuczącego i wiruj przez 5 minut w temperaturze 300 × g.
- Zawiesić osady w 100 μl roztworu barwiącego i uzyskać dane za pomocą cytometru przepływowego.
UWAGA: Komórki mogą być również poddawane lizie bezpośrednio w chipie w celu ekstrakcji RNA przy użyciu 150 μl buforu do lizy RNA lub utrwalane do obrazowania przy użyciu 4% paraformaldehydu w DPBS przez 10 minut w temperaturze pokojowej.
- Analiza orientacji komórki
- Przeanalizuj obrazy, aby określić ilościowo zmiany w orientacji komórki za pomocą FIJI23 (Rysunek uzupełniający S3).
- Otwórz menedżera obszaru zainteresowania (ROI) z punktu menu Analiza | Narzędzia | Menu menedżera ROI.
- Narysuj kontury komórek ręcznie za pomocą narzędzia do zaznaczania wielokątów i dodaj je do menedżera ROI, klikając przycisk Dodaj lub używając skrótu CTRL+T.
- Zmierz orientację każdego zwrotu z inwestycji, wybierając miarę Dopasuj elipsę w oknie Analizuj | Ustaw menu Measurements (Ustawianie pomiarów).
- Zastosuj pomiar do wszystkich zwrotów z inwestycji za pomocą Więcej... Polecenie wielomiarowe w menedżerze ROI.
UWAGA: Ten krok dopasuje elipsę do każdego ROI i wygeneruje tabelę zawierającą długość osi elipsy głównej i pomocniczej, a także kąt. - Wyeksportuj tabelę do pliku CSV, który zostanie zaimportowany do innego oprogramowania w celu wydruku.
UWAGA: Skrypt używany do wykresów jest dostępny pod adresem https://gist.github.com/nicolaromano/708b3231d730ee7f70763a7cf885
0ddc.
- Przeanalizuj obrazy, aby określić ilościowo zmiany w orientacji komórki za pomocą FIJI23 (Rysunek uzupełniający S3).
Wyniki
Opisujemy tutaj protokół różnicowania i mechanostymulacji komórek śródbłonka pochodzących z hiPSC, który umożliwia badanie ich odpowiedzi na bodźce mechaniczne (Rysunek 1). Protokół ten prowadzi do wytworzenia funkcjonalnie mechanowrażliwych komórek śródbłonka. Przedstawiamy tutaj reprezentatywne wyniki i opisujemy oczekiwany fenotyp, aby ocenić, w jaki sposób komórki reagują na stymulację cytokinami podczas różnicowania.
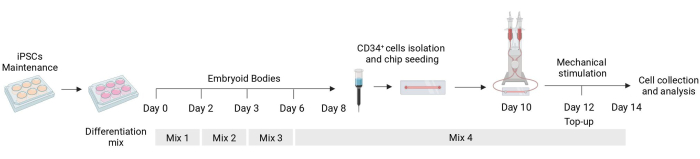
Rysunek 1: Schemat protokołu różnicowania i stymulacji mechanicznej. Schemat protokołu różnicowania przedstawiający harmonogram podawania poszczególnych mieszanin cytokin, izolację komórek CD34+, zasiewanie chipa mikrofluidycznego oraz końcową analizę komórek stymulowanych mechanicznie. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Hodowla hiPSC
Ważne jest, aby rozpocząć protokół od komórek hiPSC, które prawidłowo rosną w warunkach samoodnowienia. Dobrym wskaźnikiem jakości hodowli jest szybkość ich wzrostu. Po rozmrożeniu komórki mogą potrzebować 2-3 tygodni, aby osiągnąć odpowiednią fazę wzrostu, która zapewni prawidłową dyferencjację. Gdy komórki można pasażować dwa razy w tygodniu w stosunku 1:6, osiągając niemal pełną konfluencję, oznacza to, że są one gotowe do dyferencjacji w dniu, w którym powinny zostać poddane pasażowaniu.
Różnicowanie hiPSC w komórki śródbłonka
Pierwszy etap różnicowania, polegający na formowaniu ciał embrionalnych (EB), jest zależny od linii komórkowej i może wymagać optymalizacji dla konkretnej użytej linii. Dysocjację opisaną w krokach protokołu 1.3.2.2-1.3.2.4 można zmodyfikować poprzez skrócenie lub wydłużenie inkubacji z odczynnikiem dysocjującym oraz późniejszą dysocjację za pomocą pipety Pasteura. Ponadto, w tym kroku można zastosować inne odczynniki dysocjujące, uzupełniając je o fizyczną dysocjację kolonii za pomocą narzędzia tnącego lub końcówki pipety P100. Ciała embrionalne dobrej jakości wykazują wyraźną krawędź do 2. dnia różnicowania i wydają się przejrzyste oraz jasne podczas obserwacji pod mikroskopem; ciemniejsze obszary mogą wskazywać na obumieranie komórek wewnątrz EB (Rycina 2).
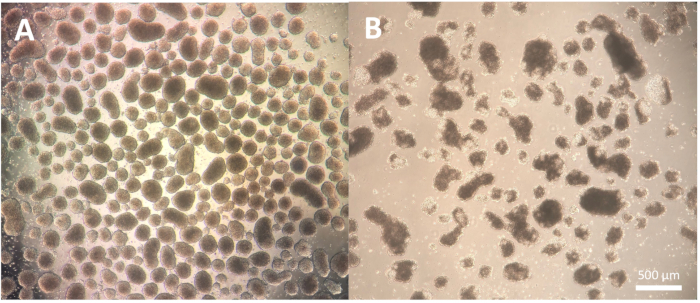
Rycina 2: Morfologia ciał embrionoidalnych. (A) Ciała embrionoidalne w 2. dniu, wykazujące wyraźnie zarysowane krawędzie zewnętrzne i jednolity rozmiar. (B) Ciała embrionoidalne w 2. dniu o niskiej jakości, wykazujące rozległą śmierć komórek prowadzącą do dezintegracji struktury. Pasek skali = 500 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W 2. dniu dodanie CHIR99021 do ciał embrionalnych (EB) hamuje białko GSK-3, co prowadzi do aktywacji szlaku Wnt. Różne linie komórkowe wykazują odmienne reakcje na traktowanie CHIR, co należy zweryfikować poprzez ilościowe oznaczenie liczby komórek CD34+ uzyskanych w 8. dniu przy zastosowaniu różnych stężeń (Rycina 3).
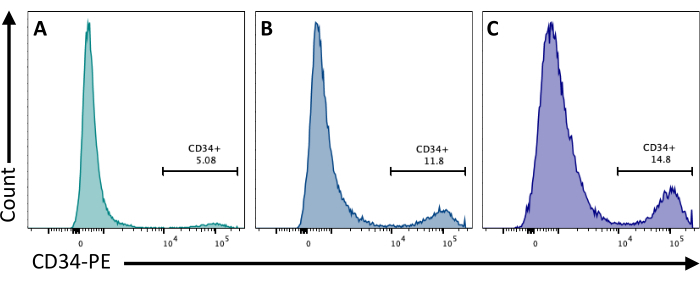
Rycina 3: Różnicowanie komórek śródbłonka przy różnych stężeniach CHIR. Ilościowe oznaczenie zaangażowania w linię komórek śródbłonka za pomocą cytometrii przepływowej w 8. dniu różnicowania na podstawie ekspresji błonowej CD34 po zastosowaniu CHIR w 2. dniu w stężeniach (A) 3 µM, (B) 5 µM oraz (C) 7 µM. Dane z cytometrii przepływowej uzyskano przy użyciu cytometrów pięciolaserowych i dedykowanego oprogramowania (patrz Tabela materiałów). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Izolacja komórek CD34+
Ważne jest potwierdzenie, że wzbogacenie w komórki CD34+ z użyciem kulek magnetycznych zapewnia co najmniej 80% CD34+ po elucji z kolumny. Aby zapewnić wystarczającą czystość, alikwot komórek uzyskanych w wyniku izolacji magnetycznej można poddać analizie cytometrią przepływową, pamiętając o zastosowaniu innego klonu przeciwciała niż ten użyty do wzbogacania magnetycznego. W tym przypadku zastosowano klon 4H11, uzyskując czystość na poziomie ~85% po wzbogaceniu (Rysunek 4).
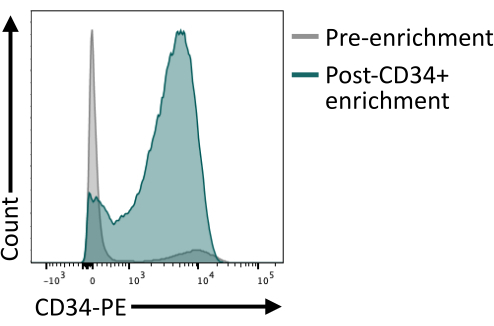
Rycina 4: Ekspresja błonowa CD34 przed i po wzbogaceniu metodą sortowania magnetycznego. Zdysocjowane ciała embrionalne w 8. dniu (szare) oraz komórki po wzbogaceniu magnetycznym (zielone) zostały zabarwione pod kątem ekspresji CD34 i przeanalizowane metodą cytometrii przepływowej, co wykazało skuteczne wzbogacenie po sortowaniu. Dane z cytometrii przepływowej uzyskano przy użyciu cytometrów pięciolaserowych i dedykowanego oprogramowania (patrz Tabela materiałów). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wysiewanie komórek do kanału mikroprzepływowego
Podczas wysiewania komórek do kanału mikroprzepływowego kluczowe jest monitorowanie adhezji i proliferacji komórek śródbłonka. Po wysiewaniu komórki potrzebują ok. 5 h na pełną adhezję do kanału (Rycina 5A). Na tym etapie w celu poprawy adhezji można przetestować alternatywny roztwór do powlekania. Aby potwierdzić, że badane komórki są mechanosensytywne, a tym samym zdolne do reagowania na stymulację mechaniczną, można badać orientację komórek w czasie. Przed stymulacją komórki wykazują losową orientację (Rycina 5A oraz Rycina 5C), a następnie orientują się równolegle do kierunku przepływu (Rycina 5B,C). Opisany tutaj protokół umożliwia odzyskanie komórek z kanału w celu przeprowadzenia dalszych analiz, np. cytometrii przepływowej, do badania immunofenotypu błonowego, co potwierdza tożsamość śródbłonkową stymulowanych komórek (Rycina 5D,E).

Rycina 5: Mechanoreaktywność komórek śródbłonka pochodzących z hiPSC. (A) Konfluenta warstwa wyizolowanych komórek CD34+ 48 h po wysianiu. (B) Przeorientowana warstwa komórek śródbłonka po 3 dniach hodowli dynamicznej. (C) Analiza orientacji komórek śródbłonka po 5 dniach hodowli dynamicznej. (D) Profil ekspresji CD34 komórek hodowanych w przepływie przez 5 dni. (E) Procent komórek CD34+ w populacji komórek pobranych z kanału płynowego. Obrazy wykonano przy użyciu odwróconego mikroskopu inkubatorowego; dane z cytometrii przepływowej uzyskano za pomocą cytometrów pięciolaserowych i dedykowanego oprogramowania (patrz Tabela materiałów). Paski skali = 100 µm (A,B). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Odczynniki | Stężenie zapasu | Dodana objętość | Stężenie końcowe |
| Modyfikowane pożywka Dulbecco Iscove’a (IMDM) | - | 333 mL | - |
| Pożywka Ham’s F-12 (F-12) | - | 167 ml | - |
| suplement N-2 (100x) | 100 x | 5 ml | 1x |
| suplement B-27 (50x) | 50 x | 10 ml | 1x |
| Kwas askorbinowy | 10 mg/ml | 1,25 ml | 25 µg/mL |
| $\alpha$-monotioglicerol (MTG) | 11,5 M | 19.5 µL | 448.5 µM |
| Ludzka albumina surowicy | 100 mg/ml | 2,5 ml | 0,5 mg/ml |
| Holo-transferyna | 100 mg/ml | 0,75 ml | 150 µg/mL |
Tabela 1: Skład i receptura na 500 mL pożywki do różnicowania bezsurowiczej (SFD).
| Dni różnicowania | Mieszanka cytokin | Cytokina | Stężenie końcowe |
| Dzień 0–2 | Mieszanina 1 | BMP4 | 20 ng/mL |
| Dzień 2 | Mieszanina 2 | CHIR99021 | 7 μM |
| Od trzeciego dnia włącznie | Wymieszać 3 i 4 | VEGF | 15 ng/mL |
| bFGF | 5 ng/mL | ||
| Od 6. dnia wzwyż | Mieszanina 4 | IL6 | 10 ng/mL |
| FLT3L | 10 ng/mL | ||
| IGF1 | 25 ng/mL | ||
| IL11 | 5 ng/mL | ||
| SCF | 50 ng/mL | ||
| EPO | 3 U/ml | ||
| TPO | 30 ng/ml | ||
| IL3 | 30 ng/mL |
Tabela 2: Mieszaniny cytokin stosowane do różnicowania komórek śródbłonka, dni ich dodawania do medium SFD oraz stężenie końcowe.
| Naprężenie ścinające (dyn/cm2)2) | Czas (h) |
| 0.5 | 1 |
| 1 | 1 |
| 1.5 | 1 |
| 2 | 1 |
| 2.5 | 1 |
| 3 | 1 |
| 3.5 | 1 |
| 4 | 1 |
| 4.5 | 1 |
| 5 | Do końca eksperymentu |
Tabela 3: Wartości naprężenia ścinającego dla hodowli dynamicznej oraz czas ich stosowania.
Rysunek uzupełniający S1: Geometria i wymiary chipa oraz rurek użytych w tym protokole. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca S2: Instrukcja krok po kroku dotycząca oprogramowania sterującego pompą powietrzną wraz z opisem każdego etapu. Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający S3: Instrukcja analizy orientacji z wykorzystaniem oprogramowania FIJI, przedstawiająca obrys kształtu komórki, dopasowanie elipsy oraz pomiar końcowy. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca S1: Wielkość jednostki, objętość resuspensji i stężenia roztworów zapasowych cytokin użytych w protokole różnicowania. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Protokół, który tutaj opisujemy, pozwala na generowanie mechanowrażliwych komórek śródbłonka z ludzkich pluripotencjalnych komórek macierzystych i badanie ich reakcji na stymulację mechaniczną, w której pośredniczy kontrolowane naprężenie ścinające. Protokół ten jest całkowicie oparty na cytokinach i w pełni kompatybilny z odczynnikami GMP w celu potencjalnej translacji na produkcję komórek do terapii komórkowej.
Wyprowadzenie hiPSC dostarcza naukowcom instrumentalnego modelu dla wczesnych etapów rozwoju embrionalnego, który umożliwia badanie procesów, które w innym przypadku byłyby trudne do zbadania in vivo24. W rzeczywistości ludzkie tkanki embrionalne dostępne do badań są pobierane z zarodków pozbawionych krążenia, co może mieć znaczący wpływ na sygnaturę molekularną kontrolowaną przez sygnały mechaniczne. Opisane tutaj podejście umożliwia obrazowanie na żywo i badanie w czasie rzeczywistym odpowiedzi komórek na naprężenia ścinające. Połączenie hiPSC z płynami zapewnia model badania, który przezwycięża ograniczoną dostępność i niedostępność rozwijających się tkanek płodu, gdy inicjacja krążenia przebudowuje i kontroluje tworzenie układu sercowo-naczyniowego i krwionośnego 3,9,10,25.
Ograniczeniem protokołu jest to, że komórki śródbłonka pochodzące z tego protokołu mogą nie odzwierciedlać różnych tożsamości różnych komórek śródbłonka obecnych w rozwijających się tkankach. Aby przezwyciężyć to ograniczenie, podczas procesu różnicowania poprzedzającego stymulację płynną może być potrzebna specyficzna kombinacja cytokin w celu uzyskania pożądanej tożsamości lub fenotypu specyficznego dla tkanki26. Izolację podzbiorów śródbłonka można uzyskać przy użyciu bardziej wyrafinowanego immunofenotypu na etapie izolacji. Protokół ten izoluje komórki śródbłonka wyłącznie na podstawie ekspresji CD34, umożliwiając w ten sposób izolację kolumn zamiast sortowania komórek aktywowanych fluorescencją (FACS); Zmniejsza to śmierć komórek i ryzyko zanieczyszczenia. Co więcej, protokół ten został specjalnie zaprojektowany do badania roli naprężeń ścinających, w których pośredniczy przepływ laminarny. Alternatywne podejścia fluidyczne będą musiały zostać zastosowane do zbadania wpływu innych sygnałów mechanicznych, takich jak rozciąganie lub kompresja, lub innych rodzajów przepływu, takich jak przepływ zaburzony lub zakłócony.
Wcześniej wykazaliśmy, że komórki śródbłonka pochodzące z iPSC naśladują heterogeniczne tożsamości komórkowe tętniczo-żylne27 podobne do obserwowanej w aorcie grzbietowej płodu 28,29,30. Ma to szczególne znaczenie w kontekście rozwoju naczyń krwionośnych i specyfikacji komórkowej, o której wiadomo, że jest kontrolowana przez krążenie krwi. Badania na różnych modelach wykazały, że brak krążenia powoduje zmienioną specyfikację tętniczo-żylną 11,14,31. Mechanizmy, które łączą sygnały mechaniczne ze specyfikacją komórki, są nadal nieznane, a opisana tutaj linia pozwala na wyrafinowane badania funkcjonalne, których nie można było przetestować in vivo.
Linia ta opisuje produkcję i stymulację komórek śródbłonka pochodzących z hiPSC przy użyciu dostępnych na rynku kanałów płynowych, unikając konieczności odlewania urządzeń, jak w przypadku szeroko stosowanych urządzeń z polidimetylosiloksanu (PDMS)12. Co więcej, zastosowanie chipów PDMS sprawia, że zbieranie stymulowanych komórek jest szczególnie trudne, podczas gdy dzięki temu protokołowi komórki można łatwo pobrać z kanału. To znacznie poprawia moc analityczną, umożliwiając późniejsze analizy, takie jak analizy proteomiczne i transkryptomiczne, cytometria przepływowa i testy funkcjonalne, które mogą wymagać dalszej hodowli lub testów in vivo .
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez Research Advanced Grant 2021 od Europejskiego Towarzystwa Hematologicznego, Global Research Award 2021 od American Society of Hematology oraz Fundusz Wsparcia Strategii Wewnętrznej ISSF3 finansowany przez Welcome Trust i Uniwersytet w Edynburgu. Dziękujemy Fionie Rossi z Zakładu Cytometrii Przepływowej za wsparcie w analizie cytometrii przepływowej. Na potrzeby otwartego dostępu autor zastosował licencję Creative Commons Attribution (CC BY) do każdej wersji manuskryptu zaakceptowanej przez autora powstałej w wyniku tego zgłoszenia.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,6 Niepowlekane szkiełko podstawowe | ibidi | IB-80186 | |
| 25% BSA | Life Technologies | A10008-01 | |
| Płytki 6-dołkowe | Greiner Bio-one | 657160 | |
| Accutase | Life Technologies | A1110501 | Podawany jako odczynnik dysocjacyjny |
| Kwas askorbinowy | Merck | A4544-100G | |
| Pipeta aspiracyjna | Sardtedt | 86.1252.011 | |
| B27 suplement | Life Technologies | 17504044 | cytowany jako suplement do hodowli komórek neuronalnych (50x) |
| BD FACS DIVA | BD Biosciences | wersja 8.0.1 | Cytowany jako oprogramowanie do cytometrii przepływowej |
| BD LSR Fortessa 5 Laser | BD Biosciences | ||
| bFGF | Life Technologies | PHG0021 | |
| CD34 Zestaw mikrokulek | Miltenyil Biotec | 30-046-702 | |
| CD34 PE klon 4H11 | Invitrogen | 12-0349-42 | |
| CD34 PerCP-eFluor 710 klon 4H11 | Invitrogen | 44-0349-42 | |
| Płytki 6-dołkowe Cellstar z powierzchnią odstraszającą komórki | Greiner Bio-one | 657970 | Cytowany jako płytka odstraszająca komórki |
| CHIR99021 | Cayman Chemicals | 13122-1mg-CAY | |
| Cryostor CS10 kriokonserwacja komórek | Merck | C2874-100ML | Cytowany jako roztwór do kriokonserwacji |
| Dimetylosulfotlenek VWR | 200-664-3 | Cytowany jako DMSO | |
| DMEM/F-12 | Life Technologies | 10565-018 | |
| DPB Ca2+ Mg2+ | Life Technologies | 14080055 | |
| DPBS | Life Technologies | 14200075 | |
| Filtr siatkowy EASY 40 μ m | Greiner Bio-one | 542040 | |
| EDTA | Life technologies | 15575020 | |
| Odczynnik blokujący FcR | Miltenyil Biotec | 130-059-901 | |
| Fidżi | Wersja 1.53c | ||
| Flow Jo | Wersja 10.7.1 | Cytowany jako analiza cytometrii przepływowej | |
| FLT3L | Peprotech | 300-19-10uG | |
| Jednostka fluidyczna | ibidi | 10903 | |
| GlutaMax | Life Technologies | 35050038 | Cytowana jako suplement L-glutaminy |
| Ham F-12 | Life Technologies | 11765054 | |
| Holo-transferyna | Merk | T0665-500MG | |
| Albumina ludzkiej surowicy | Fujifilm UK LTD | 9988 | |
| System pomp Ibidi | ibidi | 10902 | Cytowany jako system pomp |
| IMDM | Life Technologies | 12440053 | |
| Mikroskop odwrócony | ioLight/Thisle Scientific | IOL-IO-INVERT | Cytowany jako odwrócony mikroskop inkubatorowy |
| Liofilizowany BSA | Separator Merck | A2153-100G | |
| MiniMACS | Miltenyil Biotec | 130-042-102 | Cytowany jako separator magnetyczny |
| Kolumny MS | Miltenyil Biotec | 130-042-201 | Cytowany jako Kolumna magnetyczna |
| MTG | Merck | M6145-25ML | |
| N2 suplement | Life Technologies | 17502048 | |
| Notebook do systemu pompowego | ibidi | 10908 | |
| Paraformaldehyd 37-41% | Fisher Chemicals | F/1501/PB15 | |
| Pastette | Greiner Bio-one | 612398 | |
| długopis/paciorkowiec | Gibco | 15070063 | |
| Zestaw do perfuzji ŻÓŁTY/ZIELONY: 50 cm, ID 1,6 mm, zbiorniki 10 ml | Ibidi | IB-10964 | Cytowany jako zestaw perfuzyjny |
| Polistyrenowe rurki z okrągłym dnem | Falcon | 352008 | Cytowany jako Probówki do cytometrii przepływowej |
| Prism 9 | Verison 9.4.0 | ||
| Oprogramowanie sterujące pompą | ibidi | wersja 1.6.1 | Cytowane jako Oprogramowanie pompy |
| ReLeSR | Technologie komórek macierzystych | 5872 | Cytowane jako Rozwiązanie odłączające |
| rhBMP4 | R& D | 314-BP-010 | |
| rhEPO | R& D | 287-TC-500 | |
| rhIGF1 | Peprotech | 100-11-100uG | |
| rhIL11 | Peprotech | 200-11-10uG | |
| rhIL3 | Peprotech | 200-03-10uG | |
| rhIL6 | R& D | 206-IL-010 | |
| rhLaminin-521 | Life technologies | A29248 Cytowany | jako Laminin |
| rhSCF | Life Technologies | PHC2111 | |
| rhTPO | R& D | 288-TPN-025 | |
| rhVEGF | R& D | 293-VE-010 | |
| RLT Lysis Buffer | Qiagen | 79216 | |
| Złącze szeregowe do &mikro-szkiełek: Sterylne, sterylne | ibidi | IB-10830 | |
| StemPro-CD34 SFM | Media Life Technologies | 10639011 | cytowane jako pożywka bez surowicy dla komórek CD34+ (SFM-34) |
| StemPro-CD34 Suplement odżywczy | Life Technologies | 10641-025 | Cytowany jako 34 suplement odżywczy |
| StemPro hESC SFM | Life Technologies | A1000701 | cytowany jako pożywka hodowlana |
| Suplement StemPro | Life Technologies | A10006-01 | |
| Vitronectin (VTN-N) rekombinowane białko ludzkie, skrócone | Invitrogen | A31804 | |
| Y-27632 dichlorowodorek | Tocris | 1254 | Cytowany jako iRock |
| β-Merkaptoetanol | Gibco | 21985023 |
Bibliografia
- Copp, A. J. Death before birth: clues from gene knockouts and mutations. Trends in Genetics. 11 (3), 87-93 (1995).
- Ji, R. P., et al. Onset of cardiac function during early mouse embryogenesis coincides with entry of primitive erythroblasts into the embryo proper. Circulation Research. 92 (2), 133-135 (2003).
- Peacock, H. M., Daems, M., Jones, E. A. V. Hemodynamic control of endothelial cell fates in development. Cardiac and Vascular Biology. 8, 127-166 (2021).
- Chong, D. C., Koo, Y., Xu, K., Fu, S., Cleaver, O. Stepwise arteriovenous fate acquisition during mammalian vasculogenesis. Developmental Dynamics. 240 (9), 2153-2165 (2011).
- Jaffredo, T., Gautier, R., Eichmann, A., Dieterlen-Lièvre, F. Intraaortic hemopoietic cells are derived from endothelial cells during ontogeny. Development. 125 (22), 4575-4583 (1998).
- Zovein, A. C., et al. Fate Tracing reveals the endothelial origin of hematopoietic stem cells. Cell Stem Cell. 3 (6), 625-636 (2008).
- Bertrand, J. Y., et al. Haematopoietic stem cells derive directly from aortic endothelium during development. Nature. 464 (7285), 108-111 (2010).
- Boisset, J. C., et al. In vivo imaging of haematopoietic cells emerging from the mouse aortic endothelium. Nature. 464 (7285), 116-120 (2010).
- Adamo, L., et al. Biomechanical forces promote embryonic haematopoiesis. Nature. 459 (7250), 1131-1135 (2009).
- Diaz, M. F., et al. Biomechanical forces promote blood development through prostaglandin E2 and the cAMP-PKA signaling axis. Journal of Experimental Medicine. 212 (5), 665-680 (2015).
- North, T. E., et al. Hematopoietic stem cell development is dependent on blood flow. Cell. 137 (4), 736-748 (2009).
- Lundin, V., et al. YAP regulates hematopoietic stem cell formation in response to the biomechanical forces of blood flow. Developmental Cell. 52 (4), 446.e5-460.e5 (2020).
- Li, J., et al. Mimicry of embryonic circulation enhances the hoxa hemogenic niche and human blood development. Cell Reports. 40 (11), 111339(2022).
- Azzoni, E., et al. The onset of circulation triggers a metabolic switch required for endothelial to hematopoietic transition. Cell Reports. 37 (11), 110103(2021).
- Li, Y. S. J., Haga, J. H., Chien, S. Molecular basis of the effects of shear stress on vascular endothelial cells. Journal of Biomechanics. 38 (10), 1949-1971 (2005).
- Batsivari, A., et al. Understanding hematopoietic stem cell development through functional correlation of their proliferative status with the intra-aortic cluster architecture. Stem Cell Reports. 8 (6), 1549-1562 (2017).
- Canu, G., et al. Analysis of endothelial-to-haematopoietic transition at the single cell level identifies cell cycle regulation as a driver of differentiation. Genome Biology. 21 (1), 157(2020).
- Luo, W., et al. Arterialization requires the timely suppression of cell growth. Nature. 589 (7842), 437-441 (2020).
- Yang, C. -T., et al. Activation of KLF1 enhances the differentiation and maturation of red blood cells from human pluripotent stem cells. Stem Cells. 35 (4), 886-897 (2017).
- Lopez-Yrigoyen, M., et al. A human iPSC line capable of differentiating into functional macrophages expressing ZsGreen: A tool for the study and in vivo tracking of therapeutic cells. Philosophical Transactions of the Royal Society B: Biological Sciences. 373 (1750), 20170219(2018).
- Lopez-Yrigoyen, M., et al. Production and characterization of human macrophages from pluripotent stem cells. Journal of Visualized Experiments. 2020 (158), (2020).
- Fidanza, A., et al. Single cell analyses and machine learning define hematopoietic progenitor and HSC-like cells derived from human PSCs. Blood. 136 (25), 2893-2904 (2020).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Takahashi, K., et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 131 (5), 861-872 (2007).
- North, T. E., et al. Hematopoietic stem cell development is dependent on blood flow. Cell. 137 (4), 736-748 (2009).
- Nguyen, J., Lin, Y. Y., Gerecht, S. The next generation of endothelial differentiation: Tissue-specific ECs. Cell Stem Cell. 28 (7), 1188-1204 (2021).
- Petazzi, P., et al. Arterial cells support the development of human hematopoietic progenitors in vitro via secretion of IGFBP2. bioRxiv. , (2022).
- Crosse, E. I., et al. Multi-layered spatial transcriptomics identify secretory factors promoting human hematopoietic stem cell development. Cell Stem Cell. 27 (5), 822(2020).
- Calvanese, V., et al. Mapping human haematopoietic stem cells from haemogenic endothelium to birth. Nature. 604 (7906), 534-540 (2022).
- Zeng, Y., et al. Tracing the first hematopoietic stem cell generation in human embryo by single-cell RNA sequencing. Cell Research. 29 (11), 881-894 (2019).
- Hwa, J. J., et al. Abnormal arterial-venous fusions and fate specification in mouse embryos lacking blood flow. Scientific Reports. 7 (1), 11965(2017).
Przedruki i uprawnienia
