Tutaj przedstawiamy protokół użycia komplementarnych systemów układów mikroelektrod o wysokiej gęstości (CMOS-HD-MEAs) do rejestrowania aktywności podobnej do napadu z wycinków mózgu ex vivo.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Wysokiej jakości aktywność podobna do napadów padaczkowych z ostrych wycinków mózgu przy użyciu komplementarnego układu mikroelektrod o dużej gęstości z tlenkiem metalu i półprzewodnikiem
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Komplementarne układy mikroelektrod o wysokiej gęstości (CMOS-HD-MEA) mogą rejestrować aktywność neurofizjologiczną z kultur komórkowych i wycinków mózgu ex vivo z niespotykanymi dotąd szczegółami elektrofizjologicznymi. CMOS-HD-MEA zostały najpierw zoptymalizowane pod kątem rejestrowania wysokiej jakości aktywności jednostek neuronalnych z hodowli komórkowych, ale wykazano również, że dostarczają wysokiej jakości danych z ostrych wycinków siatkówki i móżdżku. Naukowcy wykorzystali ostatnio CMOS-HD-MEA do rejestrowania lokalnych potencjałów pola (LFP) z ostrych, korowych wycinków mózgu gryzoni. Jednym z interesujących LFP jest aktywność podobna do napadów. Podczas gdy wielu użytkowników wytwarzało krótkie, spontaniczne wyładowania padaczkowe za pomocą CMOS-HD-MEA, niewielu użytkowników niezawodnie wytwarza wysokiej jakości aktywność podobną do napadów. Wiele czynników może przyczyniać się do tej trudności, w tym szum elektryczny, niespójny charakter wytwarzania aktywności podobnej do napadów padaczkowych podczas korzystania z zanurzonych komór nagraniowych oraz ograniczenie, że chipy 2D CMOS-MEA nagrywają tylko z powierzchni wycinka mózgu. Techniki wyszczególnione w tym protokole powinny umożliwić użytkownikom konsekwentne wywoływanie i rejestrowanie wysokiej jakości aktywności podobnej do napadu padaczkowego z ostrych wycinków mózgu za pomocą systemu CMOS-HD-MEA. Ponadto protokół ten określa prawidłowe traktowanie chipów CMOS-HD-MEA, zarządzanie roztworami i wycinkami mózgu podczas eksperymentów oraz konserwację sprzętu.
Wprowadzenie
Komercyjnie dostępne systemy matryc mikroelektrod o wysokiej gęstości (HD-MEA), które zawierają układ MEA z tysiącami punktów zapisu1,2 oraz platforma MEA do wzmacniania i digitalizacji danych, są nowym narzędziem do badań elektrofizjologicznych. Te systemy HD-MEA wykorzystują komplementarną technologię półprzewodników metal-tlenek-półprzewodnik (CMOS) do rejestrowania danych elektrofizjologicznych z wysoką czułością z hodowli komórkowych i preparatów ex vivo wycinków mózgu. Te systemy MEA zapewniają bezprecedensową rozdzielczość przestrzenną i czasową dla badań neurofizjologicznych dzięki wysokiej gęstości elektrod i wysokiej jakości stosunkom sygnału do szumu3. Technologia ta była najczęściej wykorzystywana do badania zewnątrzkomórkowych potencjałów czynnościowych, ale może również wychwytywać wysokiej jakości lokalne potencjały pola (LFP) z różnych preparatów neuronalnych wycinków mózgu4,5,6,7,8,9,10,11,12,13,14,15. Dzięki wyżej wspomnianym możliwościom nagrywania w wysokiej rozdzielczości systemów CMOS-HD-MEA, użytkownicy mogą śledzić aktywność elektrofizjologiczną z dużą dokładnością przestrzenną16,17,18. Ta funkcja jest szczególnie istotna do śledzenia wzorców propagacji sieci LFPs5,12,15,19,20,21. W związku z tym systemy CMOS-HD-MEA mogą zapewnić bezprecedensowe zrozumienie wzorców propagacji aktywności fizjologicznej i patologicznej z różnych kultur komórkowych i preparatów do wycinków mózgu. Na szczególną uwagę zasługuje fakt, że możliwości systemów CMOS-HD-MEA mogą pozwolić naukowcom na jednoczesne porównywanie wzorców napadów padaczkowych w różnych regionach mózgu i badanie, w jaki sposób różne związki przeciwpadaczkowe wpływają na te wzorce. W ten sposób zapewnia innowacyjną metodę badania iktogenezy i propagacji ictal oraz zrozumienia, w jaki sposób farmakologia zakłóca patologiczną aktywność sieci7,10,14. W związku z tym te nowatorskie możliwości systemów CMOS-HD-MEA mogą znacząco przyczynić się do badań nad zaburzeniami neurologicznymi, a także pomóc w badaniach nad odkrywaniem leków5,7,11,22. Naszym celem jest dostarczenie szczegółowych informacji na temat wykorzystania systemów CMOS-HD-MEA do badania aktywności podobnej do napadów padaczkowych.
Podczas korzystania z systemów CMOS-HD-MEA do badania LFP, takich jak aktywność epileptiform w ostrych wycinkach mózgu, użytkownicy mogą napotkać wiele wyzwań, w tym paraliżujący szum elektryczny, utrzymanie wycinka w zdrowiu podczas eksperymentów i wykrywanie sygnału jakości z dwuwymiarowego (2D) CMOS-MEA chipa, który nagrywa tylko z powierzchni wycinka mózgu. Protokół ten opisuje podstawowe kroki prawidłowego uziemienia platformy MEA i innego sprzętu używanego w eksperymentach, kluczowy krok, który może wymagać indywidualnego dostosowania dla każdej konfiguracji laboratorium. Ponadto omawiamy kroki, które pomogą w utrzymaniu zdrowego wycinka mózgu podczas długich nagrań w zanurzonych komorach używanych z systemami CMOS-HD-MEA23,24,25. Dodatkowo, w przeciwieństwie do bardziej powszechnych metod zapisu elektrofizjologicznego, które nagrywają z głębi wycinka mózgu, większość systemów CMOS-HD-MEA wykorzystuje chipy 2D, które nie wnikają w wycinek. Dlatego systemy te wymagają zdrowej zewnętrznej warstwy neuronalnej do wytworzenia większości zarejestrowanych sygnałów LFP. Inne wyzwania obejmują wizualizację ogromnej ilości danych generowanych przez tysiące elektrod. Aby przezwyciężyć te wyzwania, zalecamy prosty, ale skuteczny protokół, który zwiększa prawdopodobieństwo osiągnięcia wysokiej jakości sieciowej aktywności padaczkowej, która rozprzestrzenia się w całym wycinku mózgu. Zamieszczamy również krótki opis publicznie dostępnego graficznego interfejsu użytkownika (GUI), który opracowaliśmy wraz z powiązanymi zasobami, aby pomóc w wizualizacji danych10.
Poprzednie publikacje zawierały powiązane protokoły do korzystania z systemów zapisu MEA26,27,28,29. Jednak praca ta ma na celu pomóc eksperymentatorom korzystającym z systemów CMOS-HD-MEA z chipami 2D, w szczególności tym, którzy chcą badać wysokiej jakości aktywność padaczkową z wycinków mózgu. Ponadto porównujemy dwie z najczęstszych manipulacji roztworami w celu indukcji aktywności podobnej do napadów, a mianowicie paradygmaty 0 Mg2+ i 4-AP, aby pomóc użytkownikom zidentyfikować najbardziej odpowiednie media drgawkowe dla ich konkretnego zastosowania. Chociaż protokół koncentruje się przede wszystkim na generowaniu aktywności podobnej do napadów, może być modyfikowany w celu zbadania innych zjawisk elektrofizjologicznych za pomocą wycinków mózgu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Procedury z udziałem myszy zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Korzystania ze Zwierząt (IACUC) na Uniwersytecie Brigham Young. W następujących eksperymentach wykorzystano samce i samice (n = 8) myszy C57BL/6 w wieku co najmniej P21.

Rycina 1: Schemat eksperymentu z użyciem CMOS-HD-MEA. (A) Przekrój mózgu jest przygotowywany przy użyciu preferowanej metody cięcia i poddawany dalszej sekcji, aby pasował do MEA. (B) Przygotowanie roztworów oraz chipa CMOS-HD-MEA. (C) Wysekcjonowany przekrój mózgu jest umieszczany na macierzy elektrod i kąpany w odpowiednich roztworach. (D) Z zebranych danych wybierane są istotne kanały. Następnie dane są przygotowywane do analizy w preferowanym przez użytkownika programie. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Nazwa | Stężenie (mM) | g/L | ||
| Chlorek sodu (NaCl) | 126 | 7.36 | ||
| chlorek potasu (KCl) | 3.5 | 0.261 | ||
| Wodorofosforan sodu (NaH2PO4) | 1.26 | 0.151 | ||
| Wodorowęglan sodu (NaHCO₃)3) | 26 | 2.18 | ||
| Glukoza (C6H12O6) | 10 | 1.80 | ||
| chlorek magnezu (MgCl2)2) | 1 (z roztworu zapasowego 1 M) | 1 mL | ||
| chlorek wapnia (CaCl2)2) | 2 (z roztworu stokowego 1 M) | 2 ml | ||
Tabela 1: roztwór aCSF.
1. Przygotowanie roztworów
- Przygotowanie roztworów eksperymentalnych.
- Przygotować 1 L sztucznego płynu mózgowo-rdzeniowego (aCSF) (szczegóły znajdują się w Tabeli 1).
- Przygotować 1 L roztworu prokonwulsyjnego.
UWAGA: Roztwory wykorzystywane do wywoływania aktywności przypominającej drgawki w niniejszym protokole opierały się na aCSF z dodatkiem 100 µM 4-aminopirydyny (4-AP) lub aCSF pozbawionym jonów magnezu. - Wszystkie roztwory nasycić karbogenem przez co najmniej 10 min przed użyciem, stosując kamienie napowietrzające.
- Przygotować zlew lub zlewkę do utylizacji roztworów.
- Umieścić 1 L aCSF, 1 L roztworu prokonwulsyjnego oraz zlewkę do utylizacji na powierzchni blisko systemu perfuzyjnego.
- Przygotowanie roztworów do komory do krojenia i komory przechowawczej
- Przygotować 0,5 L aCSF, pomijając CaCl2 i dodając 3 mM MgCl2 (zamiast 1 mM), aby stworzyć specjalny roztwór do krojenia. Roztwór ten zachować do przygotowania skrawków mózgu gryzonia, umieszczając go w pobliżu obszaru przygotowania świeżych skrawków mózgu.
- Przygotować 0,5 L aCSF i przelać go do komory przechowawczej, która będzie służyć do utrzymania skrawków przed eksperymentem. Wprowadzić kamienie napowietrzające do komory przechowawczej i nasycić roztwór karbogenem przez co najmniej 10 min przed umieszczeniem w niej wyciętych skrawków.
2. Przygotowywanie skrawków mózgu gryzonia
- Przygotować wszystkie roztwory zgodnie z powyższym opisem (patrz sekcja 1). Należy upewnić się, że wszystkie roztwory zostały odpowiednio nasycone karbogenem podczas procesu przygotowania.
UWAGA: Zaleca się stosowanie roztworu do cięcia (patrz sekcja 1.2), jednak w celu uzyskania wysokiej jakości skrawków mózgu można zastosować inne roztwory do cięcia, takie jak roztwór cukrowy do cięcia30. - Użyć wibrotomu do wykonania skrawków mózgu gryzonia o grubości 350 µm. Protokoły dotyczące obsługi tych urządzeń znajdują się w literaturze30,31,32,33.
- Przygotować skrawki mózgu gryzonia tak, aby pasowały do obszaru elektrod rejestrujących w chipie MEA (patrz Rysunek 2). Użyć skalpela o rozmiarze 10 do docięcia skrawków, jak pokazano na Rynku 1A i Rysunku 2A, delikatnie przesuwając ostrze skalpela w przód i w tył po skrawku mózgu. Docięcie należy przeprowadzić w komorze tnącej wibrotomu. Należy zachować ostrożność, aby nie uszkodzić dociętego skrawka mózgu.
- Umieścić docięte skrawki w komorze do przechowywania tkanek wypełnionej aCSF. Należy upewnić się, że komora była nasycana karbogenem przez co najmniej 10 min przed dodaniem dociętych skrawków.
3. Przygotowanie sprzętu
- Przygotowanie chipów MEA i systemu (Rycina 2 i Rycina 3)
UWAGA: Twarde materiały, takie jak tworzywa sztuczne i metale, mogą łatwo uszkodzić chip MEA, jeśli z siłą dotkną dna studni chipa. Podczas używania pipet do przenoszenia roztworu do chipów lub z nich, nie należy dotykać dna studni pipetą, a w szczególności elektrod referencyjnych na bokach studni oraz elektrod rejestrujących w centrum studni chipa (Rycina 2C). Zamiast tego należy dodawać roztwór, trzymając pipetę nad dnem studni lub dotykając bądź zbliżając ją do plastikowych krawędzi studni. Aby łatwo odessać cały roztwór, należy lekko przechylić chip, pozwalając roztworowi zebrać się po jednej stronie studni, i usunąć go z powierzchni zgromadzonego płynu, lub użyć ściereczki antystatycznej, aby delikatnie odsączyć miejsca, w których wciąż znajduje się roztwór. Nie należy transportować chipa, trzymając go za studnię lub piny chipa (Rycina 2C). Studnia chipa może pomieścić około 4 mL roztworu. W kolejnych krokach należy wypełnić studnię chipa około 2 mL roztworu, o ile nie określono inaczej.- Przed rozpoczęciem przygotowania chipa należy wyznaczyć pipety transferowe do poszczególnych zadań. Należy opisać jedną pipetę transferową jako do etanolu, jedną jako do odpadów, kolejną jako do aCSF, a pozostałe do innych roztworów, aby zapobiec przypadkowemu zmieszaniu.
- Wypełnić studnię chipa MEA etanolem 190-proof w taki sposób, aby dno studni było całkowicie zakryte (Rycina 3). Pozostawić etanol na 30-60 s, a następnie usunąć go pipetą do odpadów.
- Wypełnić studnię chipa MEA roztworem aCSF i usunąć go pipetą do odpadów, aby wypłukać resztki etanolu ze studni chipa. Dodać i usunąć aCSF ze studni chipa trzy razy, używając wcześniej wyznaczonych pipet do odpadów i aCSF. Po trzykrotnym przemyciu studni chipa, dodać aCSF i pozostawić go na co najmniej 30 s.
UWAGA: Elektrody rejestrujące wykazują najmniejszy poziom szumów wynikających z oddziaływań hydrofobowych, gdy aCSF pozostaje w komorze przez co najmniej 45 min po płukaniu etanolem i aCSF. - Przed osadzeniem chipa MEA, zwilżyć ściereczkę antystatyczną etanolem 190-proof i przetrzeć nią piny chipa (Rycina 2C).
- Delikatnie wsunąć chip MEA do platformy MEA i uruchomić mechanizm blokujący, aby utrwalić chip w miejscu.
- Sprawdzić, czy przy elektrodach rejestrujących i referencyjnych nie ma pęcherzyków powietrza (Rycina 2C). Jeśli pęcherzyki są obecne, należy użyć czystego pędzla i delikatnie przesunąć nim po elektrodach, aby je usunąć.
- Sprawdzić poziom szumów chipa za pomocą oprogramowania CMOS-HD-MEA34 i wizualnie przeanalizować mapę w fałszywych kolorach pod kątem pęcherzyków, oscylacji niebiologicznych lub skoków spowodowanych zakłóceniami elektrycznymi. Odpowiednio uziemić system MEA, aby zniwelować napotkane szumy.
UWAGA: Konfiguracja uziemienia zależy od środowiska rejestracji. W eksperymentach opisanych w niniejszym protokole uziemiono platformę MEA oraz system perfuzyjny.

Rysunek 2: Schematy konfiguracji i technologii. (A) Schemat wyboru ostrych plastrów mózgu myszy użytych w eksperymencie opisanym w niniejszym protokole. (1) Region hipokampa (2) Region neocortex. (B) Prawidłowe umieszczenie ostrego plastra mózgu myszy i harfy na matrycy mikroelektrod (MEA). (C) Budowa chipa 3Brain Accura CMOS-HD-MEA. (D) Prawidłowa konfiguracja wlotów i wylotów perfuzyjnych. Wlot powinien znajdować się głęboko w studzience chipa, natomiast wylot po przeciwnej stronie wlotu, na górze studzienki, aby zapewnić stały przepływ świeżego, natlenionego aCSF. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rycina 3: Schemat przygotowania i umieszczania chipa w eksperymentach ze skrawkami mózgu. (A) Dokładnie wypłucz chip raz etanolem, a następnie trzy razy roztworem aCSF. (B) Przetrzyj piny etanolem za pomocą ściereczki antystatycznej. (C) Zamocuj chip w gnieździe. (D) Umieść skrawek mózgu na elektrodach. (E) Umieść harpę na skrawku mózgu (wytyczne dotyczące prawidłowego rozmieszczenia znajdują się na Rycini 2). (F) Osusz róg otworu elektrod rejestrujących w pobliżu skrawka mózgu za pomocą skręconej ściereczki antystatycznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
4. Eksperymenty
- Umieszczanie skrawka mózgu
- Umieść platynową harfę w łódce ważnej (lub na innej czystej powierzchni) w pobliżu platformy MEA. Przykryj harfę około 3 mL aCSF, aby zmniejszyć jej tendencje do hydrofobowości.
- Za pomocą nożyczek usuń cienką końcówkę pipety transferowej. Odetnij jedną trzecią, około 1,5 cala, końcówki pipety.
UWAGA: Ta zmodyfikowana pipeta nie będzie uciskać ani uszkadzać skrawka mózgu podczas pobierania i transportu. - Pobierz skrawek mózgu z komory przechowawczej za pomocą zmodyfikowanej pipety. Delikatnie przelej skrawek mózgu wraz z roztworem z pipety do otworu chipa. Aby odpowiednio ustawić skrawek, delikatnie wpuść więcej aCSF z pipety transferowej, by zmanipulować pozycję skrawka mózgu lub użyj miękkiego pędzla, aby stworzyć w roztworze prąd, który przesunie skrawek mózgu na elektrody rejestrujące. Ogranicz kontakt z elektrodami rejestrującymi lub skrawkiem mózgu, aby zminimalizować uszkodzenia.
- Za pomocą pęsety delikatnie połóż harfę na skrawku mózgu nitkami skierowanymi w dół, aby docisnąć skrawek do elektrod rejestrujących. Unikaj kontaktu harfy z macierzą elektrod. Zorientuj harfę tak, aby strona bez ramki była skierowana w stronę igły wlotowej, a ramka harfy nie dotykała żadnej z elektrod rejestrujących (Rycyna 2C, D).
- Użyj pipety odprowadzającej i usuń nadmiar aCSF. Weź chusteczkę antystatyczną, skręć róg, aby stworzyć grot i użyj go do wchłonięcia pozostałego aCSF otaczającego elektrody rejestrujące, nie dotykając elektrod, skrawka mózgu ani harfy (Rycina 2).
- Używając wyznaczonej pipety do aCSF, szybko dodaj wystarczającą ilość nasyconego karbogenem aCSF, aby zakryć skrawek mózgu, około 2 mL.
- Powtórz kroki 4.1.5. i 4.1.6. jeszcze dwa razy.
- Wypełnij otwór nasyconym karbogenem aCSF, aż będzie on wypełniony mniej więcej w ¾, około 3 mL.
- Zrób zdjęcie skrawka mózgu na chipie MEA za pomocą mikroskopu lub kamery. Upewnij się, że zdjęcie ma wystarczającą rozdzielczość, aby widzieć krawędzie macierzy elektrod rejestrujących oraz anatomię skrawka mózgu.
- Przeprowadzenie eksperymentu
- Obsługa systemu perfuzyjnego
- Umieść rurki wlotową i wylotową w zlewce wypełnionej aCSF, a igły wlotową i wylotową w otworze chipa. Umieść igłę wlotową blisko dna otworu chipa, tuż poza elektrodami rejestrującymi. Umieść igłę wylotową blisko górnej części otworu chipa w stronę krawędzi, tak aby ciecz wzniosła się prawie do brzegu otworu, około 4 mL, a skrawek pozostał zanurzony przez cały eksperyment (Rycina 2D).
- Ustaw przepływ wlotowy perfuzji na 5 mL/min, a przepływ wylotowy na 7 mL/min.
UWAGA: Zaleca się, aby szybkość wylotu przekraczała szybkość wlotu, aby uniknąć przelania roztworu z otworu chipa i stworzyć prąd roztworu nad skrawkiem mózgu. - Włącz wlot i wylot. Wyjmij igłę wlotową z otworu chipa, aż igła zacznie wypuszczać roztwór zamiast powietrza. Następnie umieść igłę z powrotem w pozycji wewnątrz otworu chipa, zgodnie z opisem w kroku 4.2.1.1.
- Użyj podgrzewacza do roztworów, aby utrzymać roztwór w temperaturze fizjologicznej lub bliskiej niej, około 34-37 °C.
- Pozostaw aCSF do perfuzji nad skrawkiem mózgu przez 10 min. Pozwoli to skrawkowi przystosować się do środowiska rejestracji.
- Po upływie 10 min przenieś rurkę wylotową do zlewki odpadowej. Następnie przenieś rurkę wlotową do zlewki zawierającej roztwór prokonwulsyjny. Pozwól niekonwulsyjnemu aCSF zostać wypłukanym z systemu perfuzyjnego do zlewki odpadowej przez 10 min.
- Przenieś rurkę wylotową do zlewki zawierającej roztwór prokonwulsyjny.
- Pozostaw roztwór prokonwulsyjny w obiegu aż do zakończenia eksperymentu.
- Jeśli czas rejestracji skrawka przekrocza 2 h, rozważ przygotowanie kolejnej porcji roztworu prokonwulsyjnego, aby zrekompensować zużycie glukozy przez aktywny skrawek mózgu.
- Wymiana skrawków mózgu
- Wyłącz wlot. Wyłącz wylot 10-15 s później.
- Za pomocą pęsety usuń harfę i połóż ją na łódce ważnej lub innej powierzchni.
- Użyj zmodyfikowanej pipety, aby wyciągnąć i odrzucić skrawek mózgu. Nie dotykaj elektrod referencyjnych ani macierzy elektrod rejestrujących (Rycina 2C).
- Umieść rurkę wlotową w zlewce zawierającej niekonwulsyjny roztwór aCSF. Umieść rurkę wylotową w zlewce odpadowej. Pozostaw igły wlotową i wylotową w otworze chipa. Uruchom system perfuzyjny na 10 min, aby usunąć cały pozostały roztwór prokonwulsyjny z otworu chipa i systemu perfuzyjnego. Rozpocznij proces eksperymentalny ponownie z nowym skrawkiem mózgu (zaczynając od kroku 4.1).
- Obsługa systemu perfuzyjnego
- Zakończenie eksperymentu
- Czyszczenie aparatury
- Usuń kolejno z otworu harfę, skrawek mózgu i roztwór.
- Odłącz chip MEA, połóż go na czystej powierzchni i wypełnij otwór chipa wodą dejonizowaną.
- Wylej wodę dejonizowaną, aby usunąć wszelkie sole pozostałe po roztworach aCSF.
- Za pomocą pipety transferowej wypełnij otwór chipa roztworem detergentu. Trzymaj końcówkę pipety transferowej w otworze chipa i skieruj ją w stronę elektrod rejestrujących. Szybko i wielokrotnie naciskaj i puszczaj detergent do pipety transferowej, aby intensywnie płukać elektrody rejestrujące detergentem przez 1 min. Pozostaw detergent na 5-10 min.
- Usuń detergent, a następnie przepłucz otwór chipa 4-6 razy wodą dejonizowaną, aby usunąć roztwór detergentu i wszelkie pozostałe substancje rozpuszczone.
- Usuń całą wodę z otworu chipa, a następnie połóż chusteczkę antystatyczną na chipie MEA i pozostaw na noc, aby otwór chipa wyschł.
- Umieść łódkę ważną lub inną wodoodporną płytkę na platformie rejestrującej MEA, na której wcześniej spoczywał chip MEA. Połóż harfę na środku płytki, a igły wlotową i wylotową po obu stronach harfy.
- Oczyść system perfuzyjny i harfę, przepuszczając przez rurki do zlewki odpadowej kolejno 50 mL wody, 50 mL etanolu 140-proof oraz 200 mL wody.
UWAGA: W tym momencie można zwiększyć prędkości perfuzji, aby skrócić czas czyszczenia, ale prędkość wylotu musi zawsze przekraczać prędkość wlotu, aby uniknąć zalania. - Oczyść kamienie karbogenowe, umieszczając je w zlewce z wodą destylowaną i przepuszczając karbogen przez rurki przez 5 min. Odstaw je do wyschnięcia na suchej, czystej powierzchni na noc i przykryj, aby uniknąć gromadzenia się kurzu.
- Czyszczenie aparatury
5. Analiza danych
UWAGA: Do analizy danych elektrofizjologicznych generowanych przez CMOS-HD-MEAs stosuje się różne pakiety analityczne, w tym BrainWave firmy 3Brain, Yet Another Spike Sorter (YASS) oraz niestandardowe narzędzia w języku Python34,35,36,37. Dane wyekstrahowaliśmy z formatu plików BrainWave do platformy Xenon LFP Analysis w celu wygenerowania danych przedstawionych na Rysunku 4 i Rysunku 5. Do analizy danych na Rysunku 6 wykorzystano niestandardowy kod w języku Matlab. Protokoły dla platformy Xenon LFP Analysis są ogólnodostępne10. Poniższe kroki protokołu są specyficzne dla pomiarów wykonanych za pomocą Brainwave 438; w przypadku innych systemów należy zapoznać się z dokumentacją wspierającą te konkretne systemy34,35,36,37. Poniżej przedstawiono przegląd etapów analizy podjętych w celu uzyskania danych zgodnie z tym protokołem. Pełne szczegóły dotyczące eksportu, wizualizacji i analizy danych, w tym filmy instruktażowe i wszystkie istotne pliki kodu, znajdują się w39.
- Wyeksportuj plik z zapisem do analizy.
- Utwórz folder dla plików z zapisem danych, które zostaną poddane decymacji.
- Przytnij obraz wykonany w kroku 4.1.9 tak, aby obejmował on tylko macierz rejestracyjną z przekrojami mózgu.
- Otwórz plik ExportToHDF5-ChannelSelection.py (plik ten jest dostępny na GitHubie w lokalizacji xenon-lfp-analysis/code-files/3Brain-processing40), skopiuj i wklej adres URL podany na górze okna do przeglądarki internetowej.
- Wprowadź ścieżkę do pliku z zapisem danych i prześlij przycięty obraz macierzy powiązanej z zapisem.
- W sekcji Select Channels for Export użyj narzędzia zaznaczania lasso, aby wybrać obszary hipokampa i neocortex widoczne na przyciętym obrazie macierzy.
- Ustaw liczbę pomijanych wierszy oraz liczbę pomijanych kolumn na 2.
UWAGA: Pliki z zapisem są często duże; jeśli jest to odpowiednie dla planowanej analizy, wyeksportowane dane można poddać decymacji. Istnieją opcje decymacji przestrzennej (poprzez pomijanie wierszy i kolumn elektrod rejestrujących) oraz czasowej (poprzez obniżenie częstotliwości próbkowania). W analizie pomijane są co 2 wiersze i 2 kolumny; pozwala to na przestrzenną decymację danych bez wprowadzania obciążenia konkretnymi kanałami. Poszczególne kanały są od siebie wystarczająco oddalone, że różnice w aktywności między nimi mogą być istotne; dlatego nie przeprowadza się uśredniania kanałów. Podczas pomijania wierszy i kolumn elektrod dane z niewybranych kanałów nie są uwzględniane podczas eksportu pliku wyjściowego. - Ustaw częstotliwość decymacji na 300 Hz.
- Kliknij przycisk Export Channels, aby wygenerować plik wyboru kanałów.
UWAGA: Oprogramowanie automatycznie zapisze plik wyboru kanałów w folderze, w którym znajduje się plik z zapisem danych. - Otwórz plik ExportToHDF5-ExtractDownsample.py (również dostępny na GitHubie w lokalizacji xenon-lfp-analysis/code-files/3brain-processing40), wklej ścieżkę do folderu zawierającego pliki wyboru kanałów oraz pliki z zapisem danych i naciśnij klawisz enter, aby wygenerować zdecymowaną wersję pliku z zapisem danych.
- Korzystanie z platformy analitycznej
- W wierszu poleceń komputera wpisz run_lfp_analysis i naciśnij enter, aby otworzyć platformę analityczną.
- Wprowadź ścieżki do obrazu i zdecymowanego pliku z zapisem, a następnie kliknij submit.
- W sekcji Select a Time Range for Analysis zaznacz cały zapis.
- W sekcji Select Channels for Plots zaznacz hipokamp jako Grupę-1 oraz neocortex jako Grupę-2.
- W sekcji Channel Raster ustaw Threshold na 0,06 mV oraz Time Duration na 0,02 s.
- Kliknij Apply Settings and Generate Raster.
- Użyj wykresu rastrowego, aby zbadać różne kanały wykazujące interesujące wzorce aktywności.
UWAGA: Przykłady wysokiej jakości aktywności przypominającej napady (Rysunek 4A-D) w zestawieniu z aktywnością suboptimalną (Rysunek 4E-F) znajdują się na Rysunku 4).
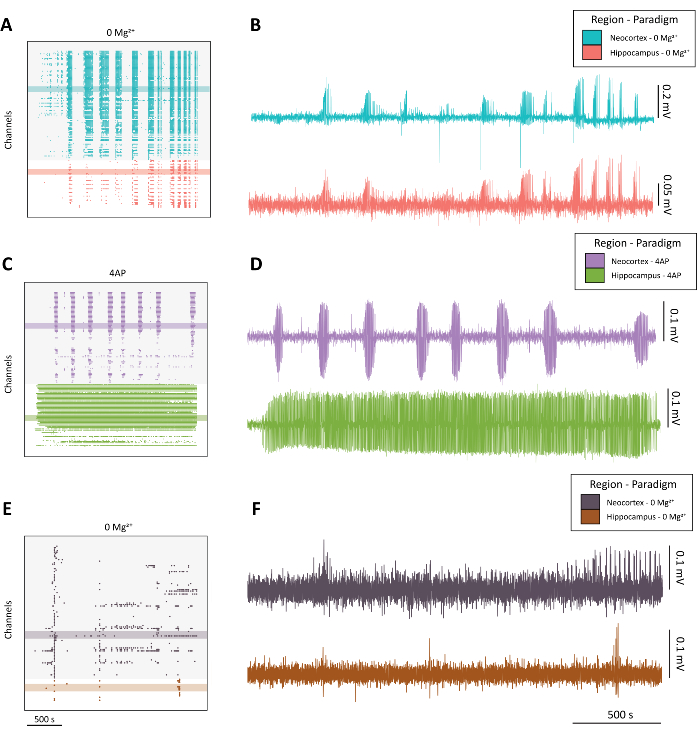
Rycina 4: Przykład rozwijającej się aktywności epileptiformnej w paradygmatach 0 Mg2+ oraz 4-AP. (A) Przykładowy wykres rastrowy po aplikacji aCSF z 0 Mg2+ w czasie około 40 min. (B) Przykładowe zapisy elektrofizjologiczne z neocortex (niebieski) i hipokampa (czerwony), wykazujące aktywność epileptiformną w paradygmacie 0 Mg2+. (C) Przykładowy wykres rastrowy po aplikacji 100 mM 4-AP w czasie około 40 min. (D) Przykładowe zapisy elektrofizjologiczne z neocortex (fioletowy) i hipokampa (zielony), wykazujące aktywność epileptiformną po aplikacji 4-AP. (E) Przykładowy wykres rastrowy po aplikacji aCSF z 0 Mg2+ w czasie około 40 minut, wykazujący aktywność seryjną (bursting) w przeciwieństwie do aktywności przypominającej napady drgawkowe widocznej w innych reprezentatywnych zapisach. (F) Przykładowe zapisy elektrofizjologiczne z neocortex (ciemnofioletowy) i hipokampa (rdzawy), wykazujące suboptymalną aktywność w paradygmacie 0 Mg2+, przeznaczone do porównania z wysokiej jakości aktywnością przypominającą napady drgawkowe widoczną w B i D. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 5: Reprezentatywne wyniki wyładowań epileptyformnych dla paradygmatów 0 Mg2+ oraz 4-AP. (A) Przykładowe wykresy typowego zdarzenia przypominającego napad w neocortex wywołanego paradygmatem 0 Mg2+, zawierające (Ai) spektrogram zdarzenia przypominającego napad, (Aii) powiązaną ścieżkę elektrofizjologiczną, (Aiii) filtr górnoprzepustowy 80 Hz zastosowany do ścieżki z Aii oraz (Aiiii) powiększony fragment ścieżki z Aii. (B) Przykładowe wykresy typowego epileptyformnego wybuchu w hipokampie wywołanego paradygmatem 0 Mg2+, zawierające (Bi) spektrogram wybuchu epileptyformnego, (Bii) powiązaną ścieżkę elektrofizjologiczną, (Biii) filtr górnoprzepustowy 80 Hz zastosowany do ścieżki z Bii oraz (Biiii) powiększony fragment ścieżki z Bii. (C) Przykładowe wykresy typowego zdarzenia przypominającego napad w neocortex wywołanego paradygmatem 4-AP, zawierające (Ci) spektrogram aktywności epileptyformnej, (Cii) powiązaną ścieżkę elektrofizjologiczną, (Ciii) filtr górnoprzepustowy 80 Hz zastosowany do ścieżki z Cii oraz (Ciiii) powiększony fragment ścieżki z Cii. (D) Przykładowe wykresy epileptyformnego wybuchu w hipokampie w paradygmacie 4-AP, zawierające (Di) spektrogram aktywności epileptyformnej, (Dii) powiązaną ścieżkę elektrofizjologiczną, (Diii) filtr górnoprzepustowy 80 Hz zastosowany do ścieżki z Dii oraz (Diiii) powiększony fragment ścieżki z Dii. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 6: Porównanie procentu mocy bazowej w poszczególnych pasmach w zależności od paradygmatu i regionu mózgu podczas stereotypowych wyładowań epileptiformnych. (A) Moc podczas wyładowań epileptiformnych różniła się istotnie pomiędzy paradygmatami i regionami mózgu dla większości pasm częstotliwości (ANOVA 2-czynnikowa z testem Tukeya, *P < 0.05, **P < 0.001, ***P < 0.0001). Środkowa linia każdego pudełka reprezentuje średnią, krawędzie pudełka ±1 błąd standardowy średniej (SEM), a linie zewnętrzne ±2 SEM. (B) W obu paradygmatach i regionach mózgu stwierdzono ograniczoną moc w pasmach związanych z aktywnością wysokoczęstotliwościową powyżej 150 Hz. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Jak to jest standardem przy wizualizacji aktywności z wielu kanałów1,4,5,10, uważamy, że korzystne jest najpierw wygenerowanie wykresu rastrowego danych, które pozyskujemy za pomocą CMOS-HD-MEA (Rysunek 4A,C,E). Ten wykres może stworzyć widok z lotu ptaka na aktywność we wszystkich kanałach rejestrujących w każdym wycinku mózgu, wy...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Protokół ten zawiera szczegółowe wytyczne związane z leczeniem ostrych wycinków mózgu, które dotyczą typowych problemów, z jakimi borykają się użytkownicy CMOS-HD-MEA, a mianowicie powstawania hałasu pod wycinkiem mózgu i utrzymywania zdrowego środowiska dla wycinka mózgu. Powstawanie szumu pod wycinkiem występuje, gdy wycinek nie jest prawidłowo przylegający do tablicy; Jeśli wycinek mózgu nie jest odpowiednio przylegający, pod wycinkiem mogą tworzyć się kieszenie powietrzne, co powoduje hałas. Spowoduje to brak możliwo...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie ma konfliktu interesów związanego z tym badaniem.
Podziękowania
Autorzy dziękują byłym i obecnym członkom laboratorium Parrish za ich zmiany w tym manuskrypcie. Chcielibyśmy również podziękować Alessandro Maccione z 3Brain za jego opinie na temat tej pracy. Praca ta została sfinansowana ze środków AES/EF Junior Investigator Award oraz przez Kolegium Nauk Przyrodniczych oraz Nauk Fizycznych i Matematycznych Uniwersytetu Brighama Younga.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Stół warsztatowy 2D | Cloudray | LM04CLLD26B | |
| 4-aminopirydyna | Sigma-Aldrich | 275875 | |
| Accura Chip | 3Brain | Układ Accura HD-MEA | CMOS-HD-MEA |
| Agaroza | Thermo Fisher Scientific | BP160-100 | |
| Stół wibroizolacyjny | Kinetic Systems | 91010124 | |
| Zlewka do komora na plastry, 270 ml | VWR | 10754-772 | |
| Platforma BioCam | 3Brain | BioCAM DupleX | CMOS-HD-MEA |
| Oprogramowanie Brainwave | 3Brain | Wersja 4 | Oprogramowanie CMOS-HD-MEA |
| Chlorek wapnia | Thermo Fisher Scientific | BP510-500 | |
| Carbogen | Airgas | X02OX95C2003102 | |
| Carbogen | Airgas | 12005 | |
| Carbogen Stones | Supelco | 59277 | |
| Precyzyjna | kompresja | VF-300-0Z | |
| Komputer | Dell | Precission3650 | |
| uziemiające z zaciskiem krokodylkowym | JWQIDI | B06WGZG17W | |
| Detergent | Metrex | 10-4100-0000 | |
| D-Glucose | Macron Fine Chemicals | 4912-12 | |
| Diwodór Fosforan sodu | Thermo Fisher Scientific | BP329-500 | |
| DinoCam | Dino-Lite | AM73915MZTL | |
| Etanol | Thermo Fisher Scientific | A407P-4 | |
| Kleszcze | Fine Science Tools | 11980-13 | |
| Płyta grzejna | Thermo Fisher Scientific | SP88857200 | |
| Maszyna do lodu | Hoshizaki | F801MWH | |
| Igły doprowadzające i odpływowe | Jensen Global | JG 18-3.0X | |
| Podgrzewacz roztworu liniowego | Warner Instruments | SH-27B | |
| Izofluor | Dechra | 08PB-STE22002-0122 | |
| Kim Wipes | Thermo Fisher Scientific | 06-666 | |
| Magnez Mikropipety Chloride | Thermo Fisher Scientific | FLM33500 | |
| Gilson | F144069 | ||
| Mili-Q Filtr do wody | Mili-Q | ZR0Q008WW | |
| Pędzel | Daler Rowney | AF85 Okrągły: 0 | |
| Filtr papierowy | Whatman | EW-06648-24 | |
| Parafilm | American National Puszka | PM996 | |
| System perfuzyjny | System wielokanałowy | Pipetor PPS2 | |
| Thermo Fisher Scientific | FB14955202 | ||
| Platinum Harp | 3Brain | 3Brain | |
| Chlorek potasu | Thermo Fisher Scientific | P330-3 | |
| Żyletka | Personna | BP9020 | |
| Waga | Metter Toledo | AB204 | |
| Nożyczki | Solingen | 92008 | |
| Komora do przechowywania plastrów | Niestandardowy | niestandardowy projekt drukarki 3D, dostępny na żądanie | |
| Wodorowęglan sodu | Macron Fine Chemicals | 7412-06 | |
| Chlorek sodu | Thermo Fisher Scientific | S271-3 | |
| Skrzynka kontrolna temperatury | Warner Instruments | TC344B | |
| Pipety transferowe | Genesee Scientific | 30-200 | |
| Rurka | Tygon | B-44-3 | |
| VZ-300 | Precyzyjna | VF-00-VM-NC | |
| Łódź do ważenia | Mikroskopia elektronowa Sciences | 70040 |
Bibliografia
- Obien, M. E. J., Frey, U. Large-scale, high-resolution microelectrode arrays for interrogation of neurons and networks. Adv Neurobiol. 22, 83-123 (2019).
- Schroter, M., et al. Functional imaging of brain organoids using high-density microelectrode arrays. MRS Bull. 47 (6), 530-544 (2022).
- Miccoli, B., et al. High-density electrical recording and impedance imaging with a multi-modal CMOS multi-electrode array chip. Front Neurosci. 13, 641(2019).
- Emery, B. A., Hu, X., Khanzada, S., Kempermann, G., Amin, H. High-resolution CMOS-based biosensor for assessing hippocampal circuit dynamics in experience-dependent plasticity. Biosens Bioelectron. 237, 115471(2023).
- Ferrea, E., et al. high-resolution electrophysiological imaging of field potentials in brain slices with microelectronic multielectrode arrays. Front Neural Circuits. 6, 80(2012).
- Gagliano, G., et al. Non-linear frequency dependence of neurovascular coupling in the cerebellar cortex implies vasodilation-vasoconstriction competition. Cells. 11 (6), 1047(2022).
- Goodchild, S. J., et al. Molecular pharmacology of selective Na(V)1.6 and dual Na(V)1.6/Na(V)1.2 channel inhibitors that suppress excitatory neuronal activity ex vivo. ACS Chem Neurosci. 15 (6), 1169-1184 (2024).
- Hu, X., Khanzada, S., Klutsch, D., Calegari, F., Amin, H. Implementation of biohybrid olfactory bulb on a high-density CMOS-chip to reveal large-scale spatiotemporal circuit information. Biosens Bioelectron. 198, 113834(2022).
- Kim, S., et al. Alteration of neural network and hippocampal slice activation through exosomes derived from 5XFAD nasal lavage fluid. Int J Mol Sci. 24 (18), 14064(2023).
- Mahadevan, A., Codadu, N. K., Parrish, R. R. Xenon LFP analysis platform is a novel graphical user interface for analysis of local field potential from large-scale MEA recordings. Front Neurosci. 16, 904931(2022).
- Medrihan, L., Ferrea, E., Greco, B., Baldelli, P., Benfenati, F. Asynchronous GABA release is a key determinant of tonic inhibition and controls neuronal excitability: A study in the synapsin II-/- mouse. Cereb Cortex. 25 (10), 3356-3368 (2015).
- Monteverdi, A., Di Domenico, D., D'Angelo, E., Mapelli, L. Anisotropy and frequency dependence of signal propagation in the cerebellar circuit revealed by high-density multielectrode array recordings. Biomedicines. 11 (5), 1475(2023).
- Obien, M. E. J., Hierlemann, A., Frey, U. Accurate signal-source localization in brain slices by means of high-density microelectrode arrays. Sci Rep. 9 (1), 788(2019).
- Thouta, S., et al. Pharmacological determination of the fractional block of Nav channels required to impair neuronal excitability and ex vivo seizures. Front Cell Neurosci. 16, 964691(2022).
- Tognolina, M., Monteverdi, A., D'Angelo, E. Discovering microcircuit secrets with multi-spot imaging and electrophysiological recordings: The example of cerebellar network dynamics. Front Cell Neurosci. 16, 805670(2022).
- Hierlemann, A., Frey, U., Hafizovic, S., Heer, F. Growing cells atop microelectronic chips: Interfacing electrogenic cells in vitro with CMOS-based microelectrode arrays. Proceedings of the IEEE. 99 (2), 252-284 (2011).
- Maccione, A., et al. Experimental investigation on spontaneously active hippocampal cultures recorded by means of high-density MEAs: Analysis of the spatial resolution effects. Front Neuroeng. 3, 4(2010).
- van Vliet, E., et al. Electrophysiological recording of re-aggregating brain cell cultures on multi-electrode arrays to detect acute neurotoxic effects. Neurotoxicology. 28 (6), 1136-1146 (2007).
- Emery, B. A., et al. Large-scale multimodal recordings on a high-density neurochip: Olfactory bulb and hippocampal networks. Annu Int Conf IEEE Eng Med Biol Soc. 2022, 3111-3114 (2022).
- Veleanu, M., et al. Modified climbing fiber/Purkinje cell synaptic connectivity in the cerebellum of the neonatal phencyclidine model of schizophrenia. Proc Natl Acad Sci U S A. 119 (21), e2122544119(2022).
- Giansante, G., et al. Neuronal network activity and connectivity are impaired in a conditional knockout mouse model with PCDH19 mosaic expression. Mol Psychiatry. , (2023).
- Dossi, E., Blauwblomme, T., Nabbout, R., Huberfeld, G., Rouach, N. Multi-electrode array recordings of human epileptic postoperative cortical tissue. J Vis Exp. (92), e51870(2014).
- Hajos, N., et al. Maintaining network activity in submerged hippocampal slices: importance of oxygen supply. Eur J Neurosci. 29 (2), 319-327 (2009).
- Hill, M. R., Greenfield, S. A. The membrane chamber: a new type of in vitro recording chamber. J Neurosci Methods. 195 (1), 15-23 (2011).
- Raimondo, J. V., et al. Methodological standards for in vitro models of epilepsy and epileptic seizures. A TASK1-WG4 report of the AES/ILAE Translational Task Force of the ILAE. Epilepsia. 58 (Suppl 4), 40-52 (2017).
- Hales, C. M., Rolston, J. D., Potter, S. M. How to culture, record and stimulate neuronal networks on micro-electrode arrays (MEAs). J Vis Exp. (39), 2056(2010).
- Lin, C. H., Lee, J. K., LaBarge, M. A. Fabrication and use of microenvironment microarrays (MEArrays). J Vis Exp. (68), 4152(2012).
- Panuccio, G., Colombi, I., Chiappalone, M. Recording and modulation of epileptiform activity in rodent brain slices coupled to microelectrode arrays. J Vis Exp. 135, 57548(2018).
- Patel, C., Muthuswamy, J. High efficiency, site-specific transfection of adherent cells with siRNA using microelectrode arrays (MEA). J Vis Exp. 67, e4415(2012).
- Ting, J. T., Daigle, T. L., Chen, Q., Feng, G. Acute brain slice methods for adult and aging animals: application of targeted patch clamp analysis and optogenetics. Methods Mol Biol. 1183, 221-242 (2014).
- Papouin, T., Haydon, P. G. Obtaining acute brain slices. Bio Protoc. 8 (2), e2699(2018).
- Ting, J. T., et al. Preparation of acute brain slices using an optimized N-Methyl-D-glucamine protective recovery method. J Vis Exp. 132, 53825(2018).
- Van Hoeymissen, E., Philippaert, K., Vennekens, R., Vriens, J., Held, K. Horizontal hippocampal slices of the mouse brain. J Vis Exp. (163), 61753(2020).
- 3Brain. , Available from: https://www.3brain.com/ (2022).
- Bridges, D. C., Tovar, K. R., Wu, B., Hansma, P. K., Kosik, K. S. MEA Viewer: A high-performance interactive application for visualizing electrophysiological data. PLoS One. 13 (2), e0192477(2018).
- Hawrylycz, M., et al. Inferring cortical function in the mouse visual system through large-scale systems neuroscience. Proc Natl Acad Sci U S A. 113 (27), 7337-7344 (2016).
- Maccione, A., et al. Microelectronics, bioinformatics and neurocomputation for massive neuronal recordings in brain circuits with large scale multielectrode array probes. Brain Res Bull. 119 (Pt B), 118-126 (2015).
- 3Brain. , BrainWave 4 https://www.3brain.com/products/software/brainwave4 (2022).
- Mahadevan, A. Xenon LFP Analysis. , https://xenon-lfp-analysis.readthedocs.io/en/latest/Installation.html (2022).
- Mahadevan, A. xenon-lfp-analysis github. , https://github.com/MicroBrew09/xenon-lfp-analysis (2022).
- Codadu, N. K., et al. Divergent paths to seizure-like events. Physiol Rep. 7 (19), e14226(2019).
- Kirsch, G. E., Drewe, J. A. Gating-dependent mechanism of 4-aminopyridine block in two related potassium channels. J Gen Physiol. 102 (5), 797-816 (1993).
- Levesque, M., Salami, P., Behr, C., Avoli, M. Temporal lobe epileptiform activity following systemic administration of 4-aminopyridine in rats. Epilepsia. 54 (4), 596-604 (2013).
- Myers, T. L., Gonzalez, O. C., Stein, J. B., Bazhenov, M. Characterizing concentration-dependent neural dynamics of 4-Aminopyridine-induced epileptiform activity. Epilepsy J. 4 (2), 128(2018).
- Perreault, P., Avoli, M. Physiology and pharmacology of epileptiform activity induced by 4-aminopyridine in rat hippocampal slices. J Neurophysiol. 65 (4), 771-785 (1991).
- Rutecki, P. A., Lebeda, F. J., Johnston, D. 4-Aminopyridine produces epileptiform activity in hippocampus and enhances synaptic excitation and inhibition. J Neurophysiol. 57 (6), 1911-1924 (1987).
- Chen, Y., Chad, J. E., Cannon, R. C., Wheal, H. V. Reduced Mg2+ blockade of synaptically activated N-methyl-D-aspartate receptor-channels in CA1 pyramidal neurons in kainic acid-lesioned rat hippocampus. Neuroscience. 88 (3), 727-739 (1999).
- Fujiwara-Tsukamoto, Y., Isomura, Y., Takada, M. Comparable GABAergic mechanisms of hippocampal seizure-like activity in posttetanic and low-Mg2+ conditions. J Neurophysiol. 95 (3), 2013-2019 (2006).
- Swartzwelder, H. S., Anderson, W. W., Wilson, W. A. Mechanism of electrographic seizure generation in the hippocampal slice in Mg2+-free medium: the role of GABAa inhibition. Epilepsy Res. 2 (4), 239-245 (1988).
- Trevelyan, A. J., Graham, R. T., Parrish, R. R., Codadu, N. K. Synergistic positive feedback mechanisms underlying seizure initiation. Epilepsy Curr. 23 (1), 38-43 (2023).
- Croning, M. D., Haddad, G. G. Comparison of brain slice chamber designs for investigations of oxygen deprivation in vitro. J Neurosci Methods. 81 (1-2), 103-111 (1998).
- Hajos, N., Mody, I. Establishing a physiological environment for visualized in vitro brain slice recordings by increasing oxygen supply and modifying aCSF content. J Neurosci Methods. 183 (2), 107-113 (2009).
- Huang, Y., Williams, J. C., Johnson, S. M. Brain slice on a chip: opportunities and challenges of applying microfluidic technology to intact tissues. Lab Chip. 12 (12), 2103-2117 (2012).
- Andrew, R. D., et al. The critical role of spreading depolarizations in early brain injury: Consensus and contention. Neurocrit Care. 37 (Suppl 1), 83-101 (2022).
- Devonshire, I. M., Dommett, E. J., Grandy, T. H., Halliday, A. C., Greenfield, S. A. Environmental enrichment differentially modifies specific components of sensory-evoked activity in rat barrel cortex as revealed by simultaneous electrophysiological recordings and optical imaging in vivo. Neuroscience. 170 (2), 662-669 (2010).
- Parrish, R. R., Codadu, N. K., Mackenzie-Gray Scott, C., Trevelyan, A. J. Feedforward inhibition ahead of ictal wavefronts is provided by both parvalbumin- and somatostatin-expressing interneurons. J Physiol. 597 (8), 2297-2314 (2019).
- Wang, H., Jing, M., Li, Y. Lighting up the brain: genetically encoded fluorescent sensors for imaging neurotransmitters and neuromodulators. Curr Opin Neurobiol. 50, 171-178 (2018).
- Yaksi, E., Jamali, A., Diaz Verdugo, C., Jurisch-Yaksi, N. Past, present and future of zebrafish in epilepsy research. FEBS J. 288 (24), 7243-7255 (2021).
- He, M. F., et al. Ex vivo calcium imaging for drosophila model of epilepsy. J Vis Exp. 200, 65825(2023).
- Driscoll, N., et al. Multimodal in vivo recording using transparent graphene microelectrodes illuminates spatiotemporal seizure dynamics at the microscale. Commun Biol. 4 (1), 136(2021).
- Parrish, R. R., Grady, J., Codadu, N. K., Trevelyan, A. J., Racca, C. Simultaneous profiling of activity patterns in multiple neuronal subclasses. J Neurosci Methods. 303, 16-29 (2018).
- Valderhaug, V. D., et al. Criticality as a measure of developing proteinopathy in engineered human neural networks. bioRxiv. , (2020).
- Multi-electrode array (MEASs) to investigate pathogenetic disease mechanisms and pharmacological properties in iPSC-derived neurons modelling neuropsychiatric diseases. Carleo, G., Lee, Y. -S., Secondo, A., Miceli, F., Taglialatela, M. 2022 IEEE International Conference on Metrology for Extended Reality, Artificial Intelligence and Neural Engineering (MetroXRAINE), , Rome, Italy. 667-672 (2022).
- Ruz, I. D., Schultz, S. R. Localising and classifying neurons from high density MEA recordings. J Neurosci Methods. 233, 115-128 (2014).
- Franke, F., Natora, M., Boucsein, C., Munk, M. H. J., Obermayer, K. An online spike detection and spike classification algorithm capable of instantaneous resolution of overlapping spikes. J Comput Neurosci. 29 (1-2), 127-148 (2010).
- Vollgraf, R., Obermayer, K. Improved optimal linear filters for the discrimination of multichannel waveform templates for spike-sorting applications. IEEE Signal Processing Letters. 13 (3), 121-124 (2006).
- Muller, J., et al. High-resolution CMOS MEA platform to study neurons at subcellular, cellular, and network levels. Lab Chip. 15 (13), 2767-2780 (2015).
- Mapelli, L., et al. implementation, and functional validation of a new generation of microneedle 3D high-density CMOS multi-electrode array for brain tissue and spheroids. bioRxiv. , (2022).
- Reddy, D. S., Kuruba, R. Experimental models of status epilepticus and neuronal injury for evaluation of therapeutic interventions. Int J Mol Sci. 14 (9), 18284-18318 (2013).
- Parrish, R. R., Trevelyan, A. J. Stress-testing the brain to understand its breaking points. J Physiol. 596 (11), 2033-2034 (2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
