Tutaj pokazujemy, że komora 0,5 ml do respirometrii o wysokiej rozdzielczości pokazuje wyniki, które są zgodne z komorą 2,0 ml, jeśli zastosuje się odpowiednią instrumentalną korekcję tłaO2. Wymaga mniejszej próbki, co jest korzystne w przypadku badań o ograniczonej dostępności lub niskiej wydolności oddechowej.
Artykuł metodologiczny
Respirometria o wysokiej rozdzielczości w komorze o małej objętości
W tym artykule
Podsumowanie
Streszczenie
Badanie strumieni oddechowych ma decydujące znaczenie dla zrozumienia złożonych zależności między procesami metabolicznymi. Badania komórek i tkanek o ograniczonej dostępności próbek i niskiej częstości oddechów mogą przynieść korzyści z małych objętości eksperymentalnych. Sprawdziliśmy, czy komora o pojemności 0,5 ml daje wyniki zgodne z komorą o pojemności 2,0 ml przy identycznych stężeniach próbki stosowanych w respirometrii o wysokiej rozdzielczości z użyciem Oroboros. Strumień tłaO2 był 4-krotnie wyższy w komorach o pojemności 0,5 ml niż w komorach o pojemności 2,0 ml przy nasyceniu powietrzem, ale był powtarzalny, co pozwalało na dokładną korekcję tła. Optymalna prędkość mieszania wynosiła od 550 obrotów na minutę (rpm) do 750 obr./min w komorze 0,5 ml. Strumienie oddechowe w żywych komórkach, komórkach przepuszczalnych i izolowanych mitochondriach mierzono równolegle w komorach 0,5 ml i 2,0 ml, przy użyciu protokołów miareczkowania substrat-rozprzęgacz-inhibitor z 14 do 20 miareczkowaniami. Strumienie Ø2 w różnych typach komór były identyczne w granicach wykrywalności. Komora o pojemności 0,5 ml, wymagająca blisko czterokrotnie mniejszej próbki niż komora o pojemności 2,0 ml, stanowi istotną zaletę w badaniach z ograniczoną ilością próbki lub niską pojemnością oddechową.
Wprowadzenie
Badanie mitochondrialnych szlaków oddechowych jest kluczem do rzucenia światła na mechanizmy metaboliczne leżące u podstaw różnych chorób, starzenia się lub reakcji na stres, dostarczając tym samym potencjalnych celów dla interwencji terapeutycznych i poprawiając możliwości diagnostyczne1,2,3. Respirometria o wysokiej rozdzielczości (HRR) pozwala na szczegółową analizę kontroli szlaku mitochondrialnego i sprzężenia w fosforylacji oksydacyjnej (OXPHOS) w różnych typach próbek i preparatach4. Objętość komory doświadczalnej jest podstawową cechą konstrukcyjną przyrządów respirometrycznych. Poprzednio ustalona objętość komory wynosi 2,0 ml w Oroboros. Objętość ta została zoptymalizowana tak, aby zapewnić niski strumień tła O2 i zapewnić jednorodność mieszanego medium. Są to jedne z kluczowych kryteriów jakości dla dokładnego pomiaru oddychania w warunkach niskiej zawartości tlenu i hiperoksyki, wymaganych odpowiednio dla kinetyki tlenu mitochondrialnego i przepuszczalnych włókien mięśniowych5,6,7,8,9. Ponadto kilka wstawek wielosensorowych 10 wymaga przestrzeni w komorze o pojemności 2,0 ml (tabela 1).
W obecnym badaniu zbadaliśmy możliwość zmniejszenia objętości komory dla HRR z 2,0 ml do 0,5 ml. Czy w testach respirometrycznych można zastosować mniejszą liczbę komórek lub ilość tkanki w mniejszych testach bez uszczerbku dla dokładności? Wyjaśnienie tego pytania jest ważne dla badania ludzkich biopsji tkanek i płynów, komórek pierwotnych i wolno rosnących kultur komórkowych1. Podobnie, zmniejszenie objętości komory jest potencjalnie korzystne w badaniach próbek o niskiej aktywności oddechowej w wadliwych mitochondriach11 i szlakach mitochondrialnych o z natury niskich pojemnościach, takich jak utlenianie kwasów tłuszczowych w mózgu12. Jednak rozdzielczość może być zmniejszona przy małym rozmiarze komory z powodu nieproporcjonalnie rosnących artefaktów dyfuzji wstecznejO2 i niedokładnej kalibracji objętości13,14. Dlatego przeanalizowaliśmy instrumentalną wydajność Oroborosa z komorą o małej objętości (sV) skalibrowaną na minimalną eksperymentalną objętość 0,5 ml, w porównaniu z klasyczną komorą objętościową (cV) skalibrowaną na 2,0 ml. W szczególności przeanalizowaliśmy instrumentalny strumień tła O2 i optymalną prędkość mieszania.
Protokoły miareczkowania substrat-rozprzęgacz-inhibitor (SUIT) są używane do oceny częstości oddechów i stanów w analizie OXPHOS. Protokoły SUIT obejmowały od 14 do 20 miareczkowania na test respirometryczny i obejmowały strumienie oddechowe O2 w zakresie od kilku pmol∙s-1∙mL-1 do setek pmol∙s-1∙mL-1. Stany sprzężenia-kontroli obejmują szybkość nieszczelności L, tj. rozpraszający składnik oddychania, który nie jest dostępny do fosforylacji adenozyno-5'-difosforanu (ADP) do adenozyno-5'-trifosforanu (ATP) i wynika z wycieku protonów, poślizgu protonów, cykli kationów i wycieku elektronów. Pojemność P OXPHOS odpowiada za oddychanie mitochondriów, gdy transfer elektronów mierzony jako zużycieO2 (utlenianie) jest sprzężony z syntezą ATP (fosforylacją) w obecności ADP. Zdolność przenoszenia elektronów E w stanie rozprzężonym określa się ilościowo przez miareczkowanie protonoforu w obecności substratów mitochondrialnych15. Zużycie tlenu resztkowego rox określa się po dodaniu inhibitorów kompleksu I i kompleksu III: rotenonu i antymycyny A.
Zmierzyliśmy oddychanie komórek i preparatów mitochondrialnych w komorach sV i cV. Płytki krwi są bezjądrzastymi fragmentami cytoplazmatycznym megakariocytów i stanowią łatwo dostępne źródło ludzkich mitochondriów. W związku z tym płytki krwi zastosowano jako model dla żywych komórek (lub cząstek komórkowych) z nienaruszonymi błonami plazmatycznymi. Oddychanie komórek krwi służy jako biomarker ogólnoustrojowych chorób mitochondrialnych i koreluje ze sprawnością bioenergetyczną metabolicznie aktywnych narządów16,17,18,19, chociaż tych wyników nie można uogólnić20,21,22. Ludzkie fibroblasty zostały wybrane do ich zastosowania jako model komórkowy dysfunkcji mitochondriów1,23,24,25. Nienaruszona zawartość błon plazmatycznych jest niezbędna do żywotności komórki, ale jej selektywna przepuszczalność pozwala na wymianę cząsteczek między cytozolem a otaczającym go podłożem. W związku z tym badano fibroblasty z chemicznie przepuszczalnymi błonami plazmatycznymi jako przykład przepuszczalnych komórek, w porównaniu z izolowanymi mitochondriami używanymi do oceny funkcji mitochondriów i wymaganymi do oddzielenia subpopulacji mitochondrialnych26,27.
Protokół
W badaniu nad ludzkimi płytkami krwi ośmioro ochotników wyraziło pisemną zgodę na udział w badaniu, które zostało zatwierdzone przez Szwedzki Urząd Przeglądu Etycznego (Nr 2013/181). Dwie linie komórek fibroblastów skóry ludzkiej pochodzące od noworodków płci męskiej zostały zakupione z ATCC i wykorzystane zgodnie z zatwierdzeniem etycznym Ministerstwa Zdrowia Republiki Czeskiej (projekt: AZV MZ CR NU22-07-00474). Procedury z udziałem myszy przeprowadzono zgodnie z Austriacką ustawą o eksperymentach na zwierzętach oraz zgodnie z Europejską konwencją dotyczącą ochrony zwierząt kręgowców wykorzystywanych do celów naukowych i innych celów eksperymentalnych (Tierversuchsgesetz 2012; Dyrektywa 2010/63/EU; BMWFM-66.011/0128-WF/V/3b/2016). Zastosowano zasadę 3R w celu zminimalizowania liczby zwierząt doświadczalnych.
1. Kalibracja objętości
- Zamontuj komory o małej objętości (sV) lub komory o klasycznej objętości (cV) w urządzeniu Oroboros (Rysunek 1A,B; Tabela 1).
- Włącz urządzenie Oroboros i połącz je z programem DatLab.
- Osusz komory.
- Pipetuj 0,54 mL H2O do sV (0,50 mL efektywnej objętości eksperymentalnej oraz 0,04 mL objętości martwej kapilary) lub 2,07 mL H2O do cV (2,00 mL objętości efektywnej oraz 0,07 mL objętości martwej kapilary).
UWAGA: Aby uniknąć utraty cieczy między górną częścią szklanego cylindra a uchwytem komory wykonanym z polioksymetylenu (POM), wprowadź końcówkę pipety wystarczająco głęboko, aby dotknęła ścianki szklanej komory. - Włącz mieszadła.
- Przed zamknięciem komory nawilż pierścienie O-ringowe korków, dbając o to, aby ich kapilary pozostały suche. Poluzuj pierścienie do kalibracji objętości i wsuwaj korki w dół, aż ciecz wypełni kapilarę korka i mała kropla pojawi się w zbiorniczku na górnym końcu kapilary (Tabela 1).
- Dokręć pierścienie do kalibracji objętości, aby ustalić ich pozycję w taki sposób, by przy kolejnych wkładaniach korków uzyskiwana była skalibrowana objętość.
2. Ogólne ustawienia Oroboros
- Uruchom oprogramowanie DatLab.
- Ustaw temperaturę eksperymentalną (37 °C) oraz prędkość obrotową mieszania na 550 rpm (9,2 Hz lub obrotów na s) w komorze sV lub 750 rpm (12,5 Hz) w komorze cV. Ustaw interwał próbkowania danych na 2 s z wygładzaniem w zakresie 80 s (40 punktów danych) podczas testów tła instrumentalnego O2 lub 40 s (20 punktów danych) w przypadku respirometrii.
UWAGA: Magnetyczne mieszadła (AlNiCo powlekane polifluorkiem winylidenu [PVDF]; Tabela 1) są wprawiane w ruch przez pulsacyjne obrotowe pole magnetyczne o natężeniu 3,5 mT na poziomie mieszadła w komorze. - Wykonaj kalibrację powietrzną28 w MiR05 lub w tym samym medium inkubacyjnym, które będzie stosowane w kolejnych eksperymentach.
- Okazjonalnie wykonuj kalibracje zerowe tlenu, jednak nigdy bezpośrednio przed rozpoczęciem eksperymentów.
- Przygotuj świeży roztwór stokowy ditionianu sodu, rozpuszczając proszek O2-Zero w 50 mM buforze fosforanowym (pH 8.0) do stężenia 2,5 mM dla komór sV lub 10 mM dla komór cV.
- Miarej ditionian sodu z nadmiarem, aby uzyskać surowy sygnał R0 lub prąd zerowy [µA] przy stężeniu O2 wynoszącym 0 µM14,28.
3. Test tła aparatowego O2
- Komora sV
- Po kalibracji powietrzem zamknąć komorę. Monitorować sygnał tlenu przez około 60 min, aż stężenie O2 spadnie z nasycenia powietrzem do około 150 µM. Wyznaczyć cztery punkty J°1 do J°4 na wykresie „O2 slope negative”.
UWAGA: Ten instrumentalny test tła O2 należy przeprowadzać każdego dnia przed rozpoczęciem eksperymentu. - OPCJONALNIE: Za pomocą strzykawki Hamiltona miareczkować dodawaniem Na-ditionitu przygotowanego zgodnie z krokiem 2.4.1, aby osiągnąć stężenie O2 wynoszące 100 µM (Rysunek 1C).
UWAGA: W innym protokole Na-ditionit jest miareczkowany do komory przy użyciu mikropompy miareczkująco-wtryskującej (TIP2k; Rycina uzupełniająca 1 oraz Rycina uzupełniająca 2) w celu porównania ze standardową metodą wyznaczania instrumentalnego tła strumienia O2 28.
- Po kalibracji powietrzem zamknąć komorę. Monitorować sygnał tlenu przez około 60 min, aż stężenie O2 spadnie z nasycenia powietrzem do około 150 µM. Wyznaczyć cztery punkty J°1 do J°4 na wykresie „O2 slope negative”.
- Komora cV
- Po kalibracji powietrzem zamknąć komorę, odczekać do stabilizacji nachylenia krzywej O2 i wyznaczyć punkt J°1 na wykresie „O2 slope neg.”28. Za pomocą strzykawki Hamiltona miareczkować Na-ditionit przygotowany zgodnie z krokiem 2.4.1 w krokach 0,7 µL, aby dostosować reżim tlenowy do komory sV i obniżyć stężenie O2 do 150 µM.
- Wykonać kolejny krok miareczkowania Na-ditionitem (ok. 7 µL), aby obniżyć stężenie O2 do 100 µM (Rysunek 1D).
- Analiza danych instrumentalnego tła O2
- Obliczyć nachylenie instrumentalnego tła O2 w programie DatLab28. Z górnego menu wybrać Flux/Slope.
- Otworzyć okno O2 background correction. Jako źródło tła O2 wybrać Active File i wskazać punkty J°, które mają zostać użyte do obliczenia regresji liniowej. Zastosować korekcję tła O2 (Apply).
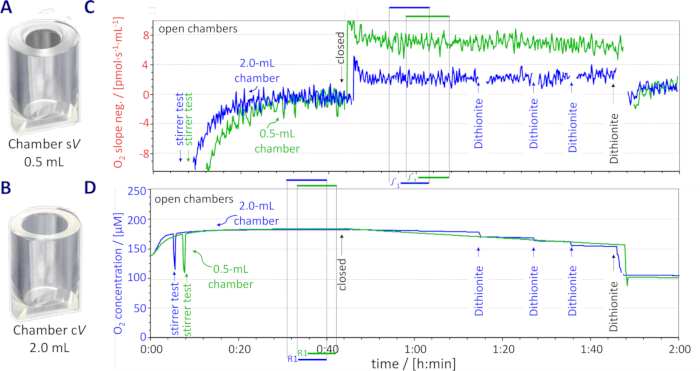
Rycina 1Mała objętość (sV) i klasycznej objętości (cVkomory i aparatura O2 test tła (A) Komora sV. (B) Komora cV. (C) Reprezentatywne zapisy nachylenie ujemne i J°1 znacznik, sV (0,5 ml; zielony) oraz cV (2,0 ml; niebieski). (D) Odpowiednie stężenie tlenu i oznaczenia R1. Trzy manualne dodaniaDitlenku sodu miareczkowania (ok. 0.7 µL, roztwór zapasowy 10 mM; cV) oraz końcowy 7.0 µL miareczkowanie 2,5 mM i 10 mM zapas w sV oraz cV odpowiednio komory. Wyeliminowano piki spowodowane mianowaniem. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
4. Dodawanie próbek do komór Oroboros
UWAGA: Próbkę można wprowadzić do komory dwiema metodami: poprzez częściową wymianę objętości (płytki krwi i fibroblasty w niniejszym badaniu) lub całkowitą wymianę objętości (izolowane mitochondria w niniejszym badaniu).
- Częściowa wymiana objętości
- Wyjmij całkowicie włożony korek. Odpipetuj i odrzuć objętość Vout medium MiR05. Vout wynosi 60-70 µL dla płytek krwi i 80-150 µL dla fibroblastów, obliczając ją zgodnie z koncentracjami komórek w zawiesinie komórkowej zapasie.
- Wprowadź do komory objętość VJ.i zawiesiny komórkowej zapasie (o znanej koncentracji komórek) równą objętości Vout (Rycina 2).
- Oblicz eksperymentalną koncentrację komórek w rzeczywistej objętości V' (0,54 mL i 2,07 mL), która jest większa od efektywnej objętości eksperymentalnej V (0,5 mL i 2,0 mL).
UWAGA: Koncentracje zawiesiny komórkowej zapasie oraz eksperymentalna koncentracja komórek powinny być zaplanowane tak, aby uzyskać objętości VJ.i = Vout kompatybilne z niewielkim błędem miareczkowania. W eksperymentach z płytkami krwi do komory sV użyto prototypowego korka z martwą objętością kapilary wynoszącą 0,05 mL.
- Całkowita wymiana objętości
- Odsyj całe medium z komory i zastąp je co najmniej 0,54 mL lub 2,07 mL roztworu zapasu izolowanych mitochondriów o eksperymentalnym stężeniu próbki w komorach sV lub cV odpowiednio.
- Zamknij komorę i odsysz nadmiar roztworu zapasu mitochondriów z gniazda korka.
UWAGA: Całkowita wymiana objętości eliminuje zmienność stężenia mitochondriów, która może wystąpić podczas miareczkowania do zamkniętej komory przez kapilarę korka za pomocą strzykawki Hamiltona. Ta druga metoda jest możliwa do zastosowania w przypadku próbek o małej średnicy przygotowanych w stężonych zawiesinach zapasowych (np. izolowane mitochondria); jednak naraża ona delikatne komórki na potencjalne uszkodzenie błon plazmatycznych przez siły ścinające występujące w igle strzykawki Hamiltona o długości 51 mm (średnica wewnętrzna 0,41 mm). Unika się tego poprzez wyjęcie korka i wprowadzanie próbki do komory metodą częściowej lub całkowitej wymiany objętości. Badano trzy rodzaje preparatów mitochondrialnych. Przygotowanie próbek opisano w Pliku uzupełniającym 11,26,29,30.
- Żywe komórki: ludzkie płytki krwi
- Włóż probówki kriogeniczne zawierające płytki krwi do łaźni wodnej o temperaturze 37 °C i odmrażaj zawartość, aż pozostanie niewielka ilość lodu.
- Otwórz probówki kriogeniczne i powoli, kroplami, dodaj 1 mL uprzednio ogrzanego medium (DPBS + 10 mM EGTA, 37 °C).
- Delikatnie wymieszaj płytki krwi i przenieś je do probówki wirówkowej o pojemności 50 mL z całkowitą objętością 10 mL uprzednio ogrzanego medium (DPBS + 10 mM EGTA, 37 °C). Wirować przy 1000 g przez 10 min w temperaturze pokojowej (RT) przy użyciu rotora z kątowym wyjściem gondoli (przyspieszenie 6, hamowanie 2).
- Resuspenduj płytki krwi w 0,25 mL DPBS + 10 mM EGTA (RT) i wprowadź je do komór metodą częściowej wymiany objętości do początkowej eksperymentalnej koncentracji komórek w zakresie od 157 · 106 do 210 · 106 x·mL-1 w komorze 0,5-mL oraz od 164 · 106 do 220 · 106 x·mL-1 w komorze 2,0-mL (szczegóły dotyczące jednostki elementarnej x patrz w31).
UWAGA: Jedno urządzenie Oroboros wyposażono w komory sV i cV w pozycjach A i B odpowiednio, używając go równolegle z innym urządzeniem Oroboros wyposażonym w komory sV i cV w pozycjach B i A odpowiednio.
- Komórki permeabilizowane: ludzkie fibroblasty
- Wprowadź komórki do komór Oroboros metodą częściowej wymiany objętości do nominalnej koncentracji komórek 0,75 · 106 x·mL-1 w obu typach komór i oblicz rzeczywistą koncentrację (krok 4.1.3).
UWAGA: Równolegle używano różnych instrumentów Oroboros , z których każdy był wyposażony albo w komory sV, albo cV.
- Wprowadź komórki do komór Oroboros metodą częściowej wymiany objętości do nominalnej koncentracji komórek 0,75 · 106 x·mL-1 w obu typach komór i oblicz rzeczywistą koncentrację (krok 4.1.3).
- Izolowane mitochondria: serce myszy
- Dodaj 15 µL zawiesiny mitochondrialnej do 5985 µL medium do respiracji mitochondrialnej (MiR05), co daje stężenie białka mitochondrialnego w zapasie w zakresie 0,013-0,026 mg∙mL-1.
- Wprowadź zawiesinę mitochondrialną do komór Oroboros metodą całkowitej wymiany objętości.
UWAGA: Jedno urządzenie Oroboros wyposażono w komory sV i cV w pozycjach A i B odpowiednio, używając go równolegle z innym urządzeniem Oroboros wyposażonym w komory sV i cV w pozycjach B i A odpowiednio.
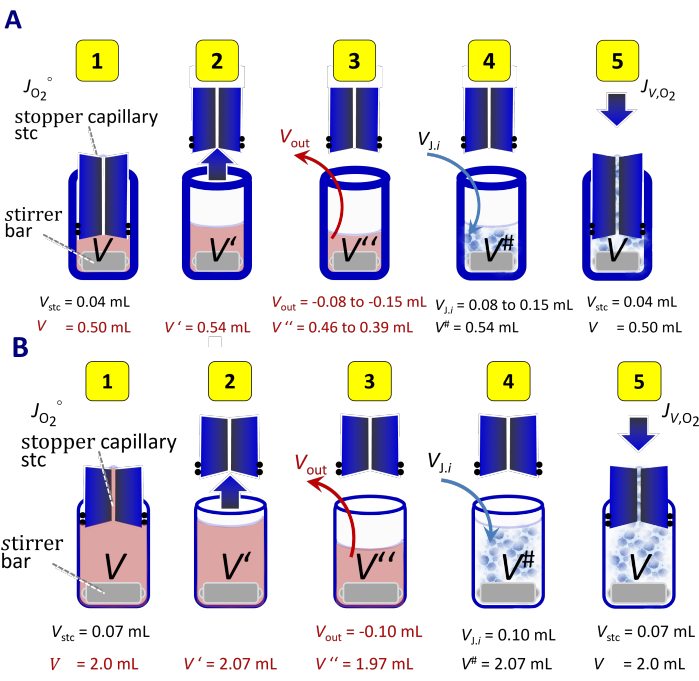
Rysunek 2Dodanie zawiesiny komórkowej poprzez częściową wymianę objętości. (A) Dodawanie do komory 0,5 mlV i (B) komora o pojemności 2,0 ml cV. (1) Zamknięta komora z objętościami medium oddechowego V i wypełniona kapilara z korkiem Vstc, do pomiaru tła instrumentalnego O2 strumień JO2°. (2) Usunięto korek, Vstc odprowadzono do komory, co doprowadziło do uzyskania objętości całkowitej V'= V+Vstc. (3) Częściowe usunięcie medium Vna zewnątrz = -VJ.i. Objętość V''= V'+Vna zewnątrz pozostaje w komorze. (4) Pipetowanie podpróbki o objętości VJ.i zawiesiny komórek do pomiaru respirometrycznego do komory, co daje objętość całkowitą V# = V+Vstc rozcieńczonej zawiesiny komórek. (5) Zamknięta komora z wypełnioną kapilarą z korkiem (objętość martwa Vstc) do pomiaru swoistego dla objętości O2 strumień JV,O2 w objętości doświadczalnej VRysunek ten został zmodyfikowany na podstawie Rycina 2A Liczba komórek i normalizacja w HRR41. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
5. Protokoły SUIT
- Przenieść roztwory zapasowe substancji chemicznych wymienionych w Tabeli uzupełniającej 1 do komór za pomocą mikrostrzykawek Hamiltona, dostosowując objętości miareczkowania w celu uzyskania tych samych stężeń eksperymentalnych w komorach sV oraz cV (patrz legendy do ryc. 6, 8, 10).
- Wybrać protokół SUIT-003_D01832,33 (dla płytek krwi w niniejszym badaniu).
- Wybrać protokoły SUIT-001_D0044,15,34,35 oraz SUIT-002_D0074,15,35,36 (dla fibroblastów w niniejszym badaniu).
- Wybrać protokół SUIT-002_D0054,15,35,37 (dla izolowanych mitochondriów w niniejszym badaniu).
6. Analiza danych SUIT
- W programie DatLab ustaw znaczniki w celu zdefiniowania sekcji wybranych działek.
- Wybierz Strumień/Nachylenie w górnym menu. Otwórz Strumień/Nachylenie okno. Nanieść korekta objętości miareczkowania do rozcieńczania zawiesin próbek przed każdym miareczkowaniem w protokole SUIT.
- Wybierz Znaczniki z górnego menu. Otwórz Statystyki ocen aby przedstawić medianę zaznaczonych punktów danych po korekcie linii bazowej poprzez odjęcie resztkowego zużycia tlenu (rox).
- Oblicz punkt przecięcia i nachylenie między parami wyników uzyskanych w sV oraz cV komory za pomocą analizy regresji odwróconej25,28 przy użyciu arkusza kalkulacyjnego.
- Porównaj częstotliwość oddychania w rox stan (minimum O2 strumienie) w sV i cV komory za pomocą testu t Studenta dla prób zależnych z wykorzystaniem oprogramowania jamovi 2.3.1338.
UWAGA: Ponieważ dwie komory w urządzeniu Oroboros instrumenty są funkcjonalnie niezależne (z wyjątkiem temperatury i odstępów czasu rejestracji w programie DatLab), pomiary w każdym komorę można rozważać oddzielnie, podobnie jak w przypadku stosowania różnych przyrządów. Wyniki końcowe mogą być przedstawione jako mediany lub średnie z wielu komór wraz z informacją o ich zmienności.
Wyniki
Sygnały surowe R1 [µA] czujników tlenu (POS) powinny być niezależne od objętości fazy wodnej w równowadze z fazą gazową powietrza w komorze „otwartej”, jak potwierdzono w Tabela dodatkowa 2. W zamkniętej komorze natomiast tło instrumentalne O2 przepływ bliski nasyceniu powietrzem J°1 [pmol∙s-1∙mL-1] zależy od objętości V (Tabela dodatkowa 2). O2 zużycie czujnika [pmol]∙s-1] można przewidzieć na podstawie przepływu elektronów mierzonego jako sygnał surowy skorygowany do zera R1-R0 [µA], liczba ładunków 4 e-/2 i stała Faradaya F = 96 485,33 C∙mol-1. 1 µA jest równoważny przepływowi elektronów (e-) 10,36 pmol∙s-1. Podzielenie przez liczbę ładunkową daje O2 przepływ15,39 2,591 pmol∙s-1·µA-1. Zarejestrowana mediana R1-R0 wyniosła 2.09 µA i 1.98 µA w komorach o pojemności 0,5 mL i 2,0 mL odpowiednio (Tabela uzupełniająca 2; R0 = 0,006 ± 0.007 µA w sV i R0 = 0,004 ± 0.003 µA w cV komory), odpowiadające teoretycznie O2 stopy zużycia 5,41 pmol∙s-1i 5,13 pmol∙s-1. O2 przepływ czujnika jest przeliczany na oczekiwany strumień właściwy objętościowo przy nasyceniu powietrzemJ°R1) jako 5,41 pmol∙s-1/0,5 mL = 10,82 pmol∙s-1∙mL-1 i 5,13 pmol∙s-1/2,0 mL = 2,56 pmol∙s-1∙mL-1 w sV i cV komorze. Przy użyciu tego samego typu czujników tlenowych polaryzacyjnych w komorze 2,0 mL i 0,5 mL, objętościowy tło O₂2 przepływ – obliczony z aktualnego R1-R0J°R1) – teoretycznie wzrasta 4-krotnie w odwrotnej proporcji do objętości komory. J°powietrze (przy nasyceniu powietrzem, gdy dyfuzja wsteczna wynosi zero; porównaj Table 2 i Tabela dodatkowa 3) został obliczony dla O2 stężenie przy nasyceniu powietrzem uzyskane z regresji liniowej testu tła eksperymentalnego (Rysunek 3). J°powietrze zbliżyły się do wartości teoretycznie oczekiwanych J°R1 dla obu komór (Table 2). The J°powietrze / J°R1 stosunek wyniósł 0,85 ± 0,04 i 0,92 ± 0,12 w sV i cV komorze, odpowiednio, zgodnie z niezależną serią 52 pomiarów w komorze 2,0 mL, w której ten stosunek wynosił 0,95 ± 0.12 (Tabela dodatkowa 4). J°powietrze była 3,9 razy wyższa w komorze o objętości 0,5 mL niż w komorze o objętości 2,0 mL. Nettto O2 dyfuzja wsteczna J°50, obliczone w 50 µM O2 z regresji liniowej testu tła eksperymentalnego była tylko trzykrotnie wyższa w komorze o pojemności 0,5 mL (Table 2). Zmienność sygnału tła instrumentalnego O2 strumienie były niemal identyczne w obu różnych objętościach komory, z odchyleniem standardowym (SD) 0,5 i 0,3 pmol∙s-1∙mL-1 dla J°powietrze i 0,9 oraz 0,8 pmol∙s-1∙mL-1 dla J°50 w sV i cV komorze, odpowiednio (Table 2). Mimo wyższego sygnału tła instrumentalnego O2 pochylenia w komorze o pojemności 0,5 mL, zależność tła O2 przepływy na cO2 był wysoce odtwarzalny w obu typach komór (Rycina 3D). To prowadzi do niskich wartości reszt <±1 pmol∙s-1∙mL-1dla obu komór (Tabela dodatkowa 5), zgodnie z granicą wykrywalności aparatu Oroboros28.
Zmierzono wpływ prędkości mieszania na surowy sygnał kalibracyjny R1 POS w zakresie od 350 rpm (5,8 Hz) do 950 rpm (15,8 Hz) z krokiem 100 rpm (1,7 Hz), przy komorze w konfiguracji „otwartej”. W tej konfiguracji, O2 rozpuszczony w medium jest w równowadze z fazą gazową; dlatego zmiany w sygnale surowym (mikroamper [µA]) w funkcji prędkości mieszania nie odzwierciedlają rzeczywistych różnic w cO2. Czujniki tlenu zareagowały na zmianę prędkości mieszania niewielkim odchyleniem od wartości R1 przy domyślnej prędkości 750 obr./min, niezależnie od objętości komoryRycina 4). W konfiguracji „otwartej”, szum O2 współczynnik nachylenia, zdefiniowany jako odchylenie standardowe (SD) dla każdego kroku po ustabilizowaniu sygnału, był najniższy przy 850 obr./min w obu typach komór i wzrastał, gdy prędkość mieszania odchylała się od tej wartości w dowolnym kierunku (Rycina 5A). Poniżej 550 obr/min poziom hałasu O2 nachylenie przekroczyło próg ±4 pmol∙s-1∙mL-1, określając minimalną praktyczną prędkość mieszania. Z powodu ograniczeń technicznych nie osiągnięto granicy górnej, wskutek czego maksymalną praktyczną prędkością mieszania była wartość 950 rpmRycina 5A). W tym zakresie odchylenie wartości O2 sygnał z R1 był <2,5 %. Zamknięcie komór nie zmieniło zależności między poziomem hałasu a prędkością mieszania (Rycina 5B). Stała czasowa wykładnicza τ, wynosił 2,53 ± 0,05 s przy 550 rpm i 2,50 ± 0,05 s przy 750 rpm dla komory o pojemności 0,5 mL (Dodatkowe Ryc. 3).
Protokół SUIT-003_D018 zastosowany do płytek krwi obejmuje do 14 etapów miareczkowania. Zaprojektowano go w celu badania kontroli sprzęgania żywych komórek, ce oraz przepuszczalności błony komórkowej jako wskaźnika żywotności komórek32. Przepływ tlenu mierzony w dwóch typach komórRysunek 6) był ściśle dopasowany we wszystkich stanach oddechowych (Rycina 7). Aby uniknąć hipoksji funkcjonalnej lub ograniczyć stężenie tlenu w doświadczeniu, konieczne są okresowe ponowne utlenienia2 stężenie do określonego zakresu. Przeprowadzono ponowne natlenienie, otwierając komorę w pozycji „otwartej” po dozowaniu Rot. Po zamknięciu komory, O2 przepływ ustabilizował się w ciągu 4 min w komorze o pojemności 2,0 mL, ale w komorze o pojemności 0,5 mL wymagane było około 10 min, zanim nastąpiła stabilizacja i ustawienie nowej wartościRycina 6 i Dodatkowy rysunek 4). Ponowna oxygenacja w rox stan, w którym O2 niskie strumienie zapobiegają spadkowi O2 stężenie przez czas wymagany do ustabilizowania. Inhibicja rotanonem rox był równy 0,9 ± 0,6 i 2,0 ± 0,6 pmol∙s-1∙mL-1 98 ± 17 i 94 ± 17 µM O2 średnia ± SD) w sV i cV komora, odpowiednio. Rox zwiększony o 3,1 ± 0,9 i 0,9 ± 0,4 pmol∙s-1∙mL-1 po ponownym natlenieniu do 159 ± 8 i 147 ± 11 µM O2 w sV i cV komora, odpowiednio. Zależność tlenowa rox obserwowane w płytkach krwi jest zgodne z wynikami uzyskanymi na ludzkich fibroblastach i komórkach śródbłonka żyły pępowinowej40.
W celu analizy OXPHOS w permeabilizowanych fibroblastach wykorzystano dwa protokoły SUIT z maksymalnie 17 i 20 krokami tytracji (SUIT-001 i SUIT-002, odpowiednio)35; Rycina 8); dlatego korekta objętości titranta jest szczególnie ważna, ponieważ na końcu protokołu SUIT-002 rozcieńczenie osiągnęło maksymalnie 14% oraz 10,5% w sV i cV komora, odpowiednio. Liczba fibroblastów wyniosła 0,35·106 x i 1,44·106 x w komorach o pojemności 0,5 mL i 2,0 mL odpowiednio dał takie samo stężenie komórek równe 0,75·106 x∙mL-1Połączenie SUIT-001 i SUIT-002 obejmowało 20 stanów oddechowych, z których wszystkie wykazywały silną zgodność w obu typach komór dwukomorowych (r2= 0,950 dla SUIT-001 i r2= 0,959 dla SUIT-002). W obu protokołach kompleks IV wykazywał stosunkowo dużą rozbieżnośćRysunek 9). Ponowne natlenienie nie było wymagane w SUIT-001 rozpoczynającym się przy niskiej objętościowej zawartości O2 strumień 18,7 ± 7,0 pmol∙s-1∙mL-1 w rutynie stan (średnia ± SD), umożliwiając O2 stężenie spada do 56 µM do sekcji protokołu powiązanej z CIVRycina 8A; 8Ama). Jednak w SUIT-002 ponowne natlenienie przeprowadzono przed滴owaniem rozprzęgaczem, zwiększając O2 stężenie z 100 µM do 180 µM (Rycina 8BZe względu na długi czas wymagany na ustabilizowanie się strumienia po ponownym natlenieniu, należy unikać ponownego natleniania podczas miareczkowania rozprzęgaczy.
Zastosowano skrócony protokół SUIT dla izolowanych mitochondriów (Rycina 10). Stężenie białka mitochondrialnego oznaczono po zakończeniu oznaczenia oddychania, co uniemożliwiło dokładne ustalenie stężenia próbki w komorze przed pomiarem. Objętościowy strumień oddechowy zmienia się w zależności od stężenia mitochondriów. Dlatego dane przedstawiono jako strumień objętościowy oraz strumień odniesiony do masy białka (Rycina 11). Oba sposoby prezentacji wykazują silną korelację między pomiarami uzyskanymi w komorach o pojemności 0,5 mL i 2,0 mL (Rycina 11).
Pozostałe zużycie tlenu rox, mierzone po zahamowaniu kompleksu III przez antymycynę A, może służyć jako wskaźnik wydajności aparatury przy bardzo niskich szybkościach oddychania. We wszystkich seriach eksperymentalnych wartość rox była porównywalna pomiędzy komorami o pojemności 0,5 mL i 2,0 mL (płytki krwi: t(5) = -0,34, p = 0,74; fibroblasty: SUIT-001: t(10) = 20,00, p = 0,06; SUIT-002: t(10) = 11,00, p = 0,96; mitochondria izolowane: t(4) = -1,18, p = 0,27). Rozproszenie danych odpowiadało w dużej mierze niepewności instrumentalnej na poziomie ±1 pmol∙s-1∙mL-1 13,28, co przedstawiono na Rysunku 12. Oryginalne pliki są dostępne w otwartym dostępie w repozytorium Zenodo: 10.5281/zenodo.11634408.

Rycina 3: Tłumienie instrumentalne strumienia O2 dla komory sV (0,5 mL; zielona i czarna) oraz komory cV (2,0 mL; niebieska). O2 zakres stężenia od nasycenia powietrzem (ok. 180 μM) do ok. 50 µM. Puste symbole: stężenia O2 uzyskane bez ditionianu sodu. Wypełnione symbole: stężenia O2 kontrolowane ręcznym dozowaniem ditionianu sodu. Czarne okręgi: stężenia O2 kontrolowane dozowaniem ditionianu sodu przy użyciu TIP2k w komorze 0,5-mL (N = 8). Wyniki testów tła instrumentalnego pochodzą z (A) Serii 1 (sV: N = 2; cV: N = 2) przed użyciem żywych komórek (ce); (B) Serii 2 (sV: N = 38; cV: N = 50) przed użyciem permeabilizowanych komórek (pce); (C) Serii 3 (sV: N = 10; cV: N = 10) przed użyciem izolowanych mitochondriów (imt). (D) Nałożone dane z paneli A–C. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
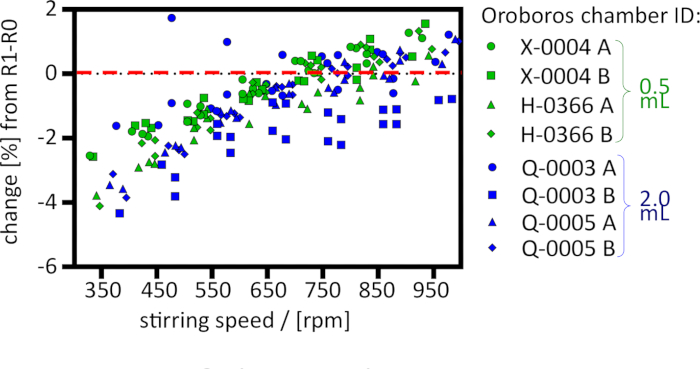
Rycina 4: Wpływ prędkości obrotowej mieszadła na sygnał POS przy nasyceniu powietrzem (komora „otwarta”) w komorze o pojemności 0,5 mL (kolor zielony) i w komorze o pojemności 2,0 mL (kolor niebieski). Odpowiedź [%] względem poprawionych sygnałów kalibracyjnych w powietrzu R1-R0 [µA] przy 750 rpm (sV: N = 4; cV: N = 4). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
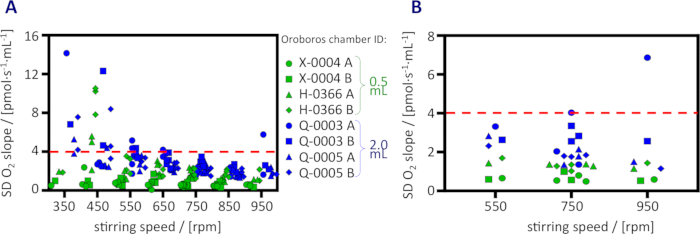
Rycina 5: Hałas nachylenia O2 w funkcji prędkości obrotowej mieszadła. Hałas wyrażony jako odchylenie standardowe w (A) komorze otwartej; (B) komorze zamkniętej (0,5 mL, zielony; 2,0 mL, niebieski). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
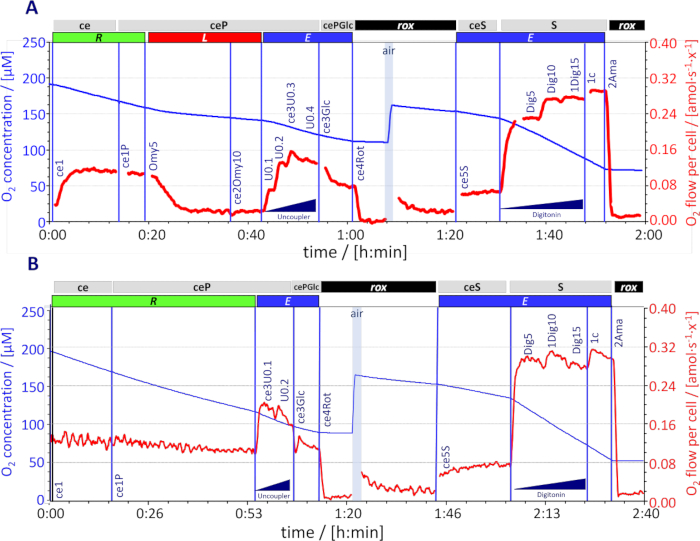
Ryc. 6: O2 zużycie zamrożonych ludzkich płytek krwi w komorze o pojemności 0,5 ml Reprezentatywne przebiegi O2 stężenie [µM] (linie niebieskie) i O2 przepływ na komórkę [amol∙s-1∙x-1] obliczone jako O2 strumień [pmol∙s-1∙mL-1] podzielone przez stężenie komórek wynoszące 157∙106 x∙mL-1 (czerwone linie, skorygowane ze względu na instrumentalne tło O2 przepływ; wywołane przez skoki tytracje zostały wyeliminowane). O2 stężenie utrzymywano powyżej 50 µM przez przerywane reoxygenacje (powietrze, komora „otwarta”, odcień niebieski). Sekwencja stanów oddechowych (titracje) i stężenia; protokół SUIT-003_D018): ce1, rutynowy oddychanie R żywych komórek ce1P, piran 5 mM jako substrat zewnętrzny ce2Omy10 (panel A), Omy tytracje w krokach 5 nM; wyciek oddychanie L. ce3U0.3 (panel A) oraz ce3U0.1 (panel B), tytracje rozprzęgacza w celu optymalne stężenie CCCP wynoszące 0,3 i 0.1 µModpowiednio; pojemność ET E. ce3Glc, glukoza 11 mM; E stopniowo hamowane przez rozprzęgacz ce4Rotacja, rotenona 0.5 µM hamowanie CI; pozostałe zużycie tlenu rox. ce5S, sjanian 10 mM; stymulujące E w komórki przepuszczalne dla błony komórkowej 1Wykopywanie15 (panel A) oraz 1Wykopywanie10 (panel B), digitonina miareczkowania w 5 µg·mL-1kroki do optymalnych stężeń 15 i 10 µg·mL-1odpowiednio w celu pełnej permeabilizacji błony komórkowej; pojemność łańcucha oddechowego dla bursztynianu SE. 1c, cytochrom c 10 µM; test integralności zewnętrznej błony mitochondrialnej. 2Amaantymycyna A 2.5 µM hamowanie CIII; rox. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
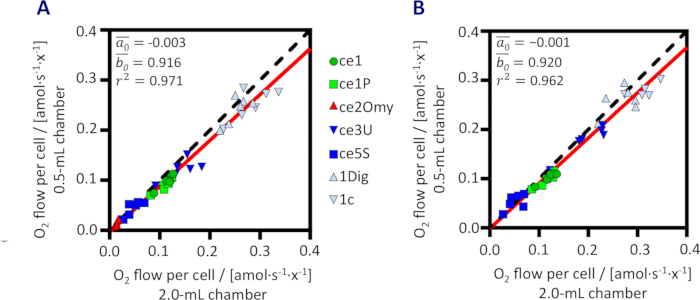
Rycina 7: Korelacja oddychania zamrożonych ludzkich płytek krwi mierzona w komorze o pojemności 0,5 mL i 2,0 mL. Poprawiony wynik Rox przepływu tlenu O2 został oszacowany w protokole SUIT-003_D018 (Rycina 6); N = 6. (A) Z oligomycyną Omy; (B) bez Omy. Średnie nachylenia  i punkty przecięcia
 odwróconej regresji najmniejszych kwadratów oraz współczynniki determinacji r2 obliczone na podstawie wszystkich danych. Przerywane czarne linie oznaczają linie identyczności. Czerwone linie reprezentują obliczone linie regresji. Przepływy O2 w stanie po dodaniu glukozy zostały wykluczone (zobacz Rycina 6). Protokoły z i bez oligomycyny zostały oddzielone na panelach A i B, aby uniknąć nakładania się punktów danych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
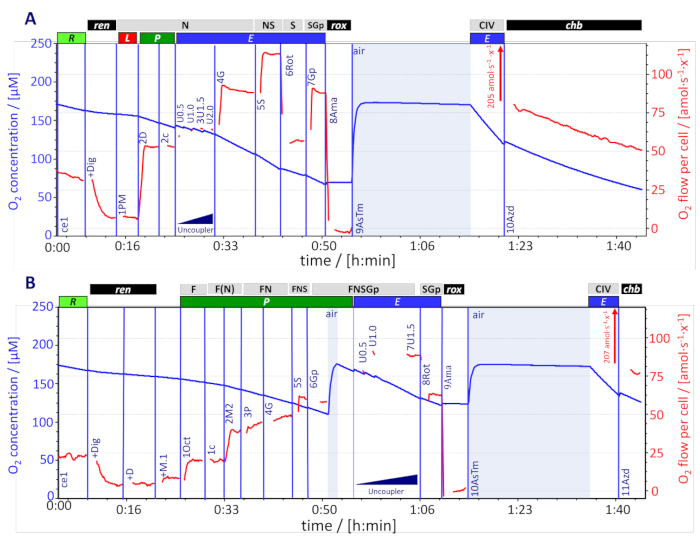
Rycina 8: O2 zużycie fibroblastów w komorze o pojemności 0,5 mL Reprezentatywne przebiegi cO2 (niebieskie linie [μM]) oraz O2 przepływ na komórkę obliczany jako O2 strumień [pmol∙s-1∙mL-1] podzielone przez stężenie komórek (0,75·106 x∙mL-1), skorygowane ze względu na tło instrumentalne O2 strumień (czerwone linie, szpilki spowodowane miareczkowaniem zostały usunięte). O2 stężenie utrzymywano powyżej 50 μM przez okresowe ponowne natlenienia (powietrze, komora „otwarta”, odcień niebieski). Sekwencja stanów oddechowych (toryzacje i szybkości).AProtokół SUIT-001_D004: ce1, rutynowy oddychanie R. +Dig, digitonina 10 μg·mL-1 (ce do pce), oddech resztkowy endogenny ren. 1 PM, pirogronian 5 mM & mleczan 2 mM; wyciek ścieżki N oddychanie NL. 2D, ADP 2,5 mM; pojemność OXPHOS szlaku NP. 2c, cytochrom c 10 μM; test integralności zewnętrznej błony mitochondrialnej. 3U1.5, tytracje rozprzęgacza w celu osiągnięcia optymalnego stężenia CCCP 1.5 μM; pojemność łańcucha oddechowego powiązanego z NADHE. 4G, glutaminian 10 mM; N(PGM)E. 5S, sukrynian 10 mM; pojemność łańcucha oddechowego NS – ścieżka ETE. 6Rot, rotanon 0.5 μM; pojemność ET szlaku bursztynianowego SE. 7Gp, glicero fosforan 10 mM; SGpE. 8Ama, antymycyna A 2.5 μM; rox. 9AsTm, askorbinian 2 mM & TMPD 0,5 mM; substraty do stymulacji CIV; komorę utrzymywano w stanie otwartym przez 20 min, aby umożliwić równowagę redoks bez wyczerpania tlenu4; O2 przepływ poza skalą po zamknięciu komory (205 amol·s-1·x-1). 10Azd, azotek 100 mM; tlenozależny chemiczny strumień tła chb. (BProtokół SUIT-002_D007: ce1, R. +Dig, ren. +D, stymulujące ren. +M.1, szczawian 0,1 mM i 1 paź, octanoylocarnityna 0,5 mM; pojemność OXPHOS szlaku FP = J(1 paźdz.)J(+M.1) 1c. 2M2, malan 2 mM wspierający anaplerotyczną ścieżkę N; F(N)P. 3P i 4G, postępujące aktywowanie do FNP. 5S, FNSP. 6Gp, FNSGpP. 7U1.5, FNSGpE. 8Rot, SGpE. 9Ama, rox. 10AsTm O2 przepływ poza skalą 207 amol·s-1·x-1. 11Azd, chb. Ogólnie rzecz biorąc, aktywność kompleksu IV to różnica szybkości, J(AsTm)-J(Azd) w blisko dopasowanych O2 stężenia. Zobacz Rycina 6 szczegółowe informacje znajdują się w dalszej części Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
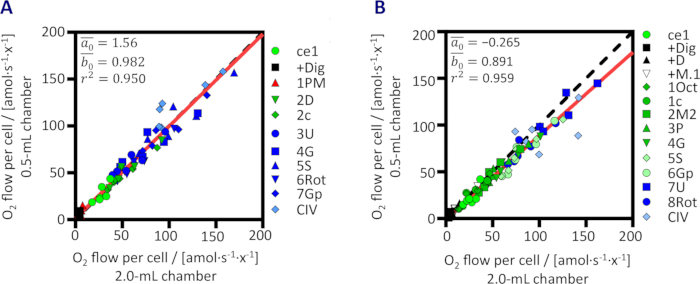
Rycina 9: Korelacja oddychania permeabilizowanych fibroblastów w komorze o pojemności 0,5 mL i 2,0 mL. Skorygowany pod względem Rox strumień O2 w (A) SUIT-001_D004 oraz (B) SUIT-002_D007 (N = 6). Średnia nachylenie oraz punkt przecięcia z osią rzędnych uzyskane metodą odwróconej regresji najmniejszych kwadratów oraz współczynnik determinacji r2 obliczone na podstawie wszystkich danych. Przerywana czarna linia oznacza linię identyczności. Czerwone linie reprezentują obliczone linie regresji. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
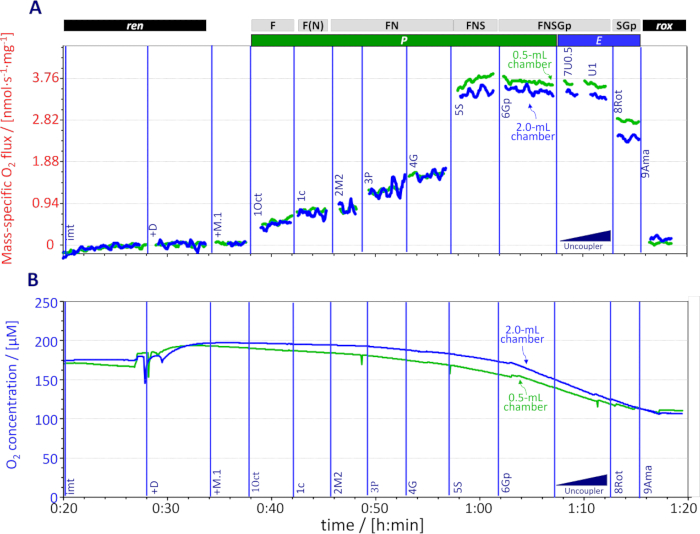
Rycina 10: Zużycie O2 izolowanych mitochondriów serca myszy w komorach o pojemności 0,5 mL (zielona linia) i 2,0 mL (niebieska linia). Przedstawicielskie krzywe (A) strumienia O2 skorygowanego względem masy białka mitochondrialnego przy stężeniu białka 0,023 mg∙mL-1 (skorygowane pod kątem tła aparaturowego strumienia O2, szpilki spowodowane tytracjami zostały usunięte) oraz (B) stężenia O2 [μM]. Sekwencja stanów oddechowych (tytracje i szybkości) zgodnie z protokołem SUIT-002_D005: imt, resztkowa oddychanie endogenne ren. +D, ADP 2,5 mM; stymulacja ren. +M.1, malonian 0,1 mM oraz 1Oct, oktanoylocarnityna 0,5 mM; pojemność F-scieżki fosforylacji oksydacyjnej FP = J(1Oct)-J(+M.1). 1c, cytochrom c 10 μM; test integralności zewnętrznej błony mitochondrialnej. 2M2, wysokie stężenie malonianu 2 mM wspomagające anaplerotyczną ścieżkę N; F(N)P. 3P, pirogronian 5 mM; FNP. 4G, glutaminian 10 mM; FNP. 5S, bursztynian 10 mM; FNSP. 6Gp, glicerofosforan 10 mM; FNSGpP. 7U0,5, tytracja rozprzęgacza do optymalnego stężenia CCCP 0,5 μM; FNSGpE. 8Rot, rotanon 0,5 μM hamujący CI; SGpE. 9Ama, antymycyna A 2,5 μM hamująca CIII; resztkowe zużycie tlenu rox. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
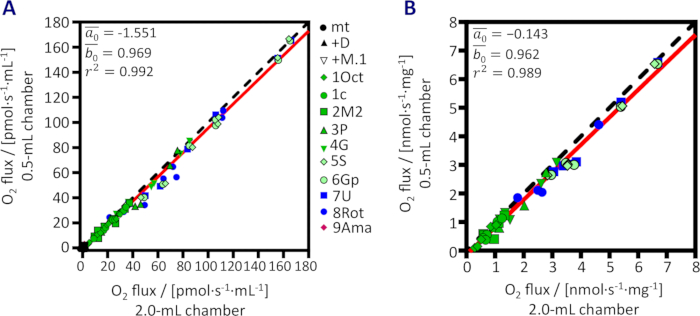
Rycina 11: Korelacja oddychania izolowanych mitochondrialnych komórek serca myszy mierzona w komorach o pojemności 0,5 mL i 2,0 mL. Strumień O2 w protokole pokazanym na Rycina 10 (N = 4). (A) Objętościowy strumień O2. (B) Skorygowany o Rox strumień O2 podzielony przez stężenie białka mitochondrialnego (0,013 – 0,026 mg∙mL-1). Średnie nachylenie oraz punkt przecięcia odwróconej regresji najmniejszych kwadratów oraz współczynnik determinacji r2 obliczony na podstawie wszystkich danych. Przerywane czarne linie oznaczają linię tożsamości. Czerwone linie przedstawiają obliczoną linię regresji. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
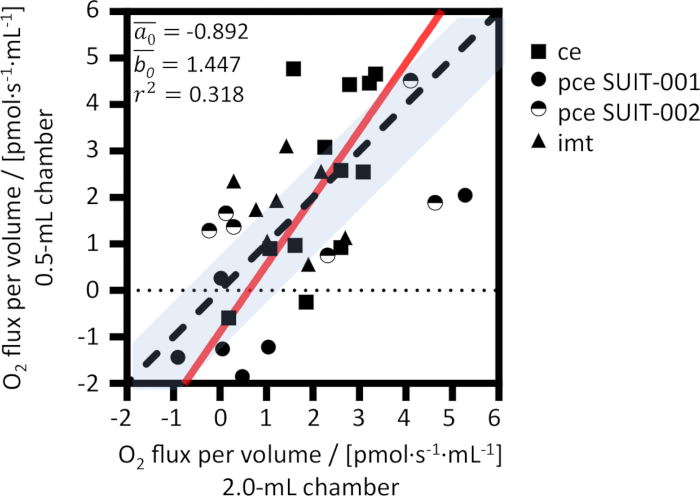
Rycina 12: Pozostałe zużycie tlenu rox w komorach o pojemności 0,5 mL i 2,0 mL. Strumień przypadający na objętość zmierzono po dodaniu antymycyny A, łącząc dane z eksperymentów z żywymi komórkami (ce, kwadraty), permeabilizowanymi komórkami (pce, kółka) oraz izolowanymi mitochondriami (imt, trójkąty). Średnie wartości nachylenia i punktu przecięcia odwróconej regresji najmniejszych kwadratów. Linia przerywana: linia tożsamości. Linia czerwona: obliczona linia regresji. Cienie: zakres rozdzielczości aparaturowej. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
| Moduł | sV | cV |
| Objętość komory eksperymentalnej V | 0.5 mL | 2.0 mL |
| Średnica wewnętrzna cylindra szklanego | 12.0 mm | 16.0 mm |
| Średnica zewnętrzna cylindra szklanego | 24.0 mm | 24.0 mm |
| Grubość ścianki szklanej | 6.0 mm | 4.0 mm |
| Pręt magnetyczny powlekany PVDF | 11.5 x 6.2 mm | 15.0 x 6.0 mm |
| Średnica kapilary w zatyczce | 1.00 mm | 1.30 mm |
| Powierzchnia przekroju poprzecznego kapilary w zatyczce | 0.79 mm2 | 1.33 mm2 |
| Długość kapilary w zatyczce | 50.64 mm | 48.86 mm |
| Objętość kapilary w zatyczce | 39.8 µL | 64.9 µL |
| Objętość martwa Vstc kapilary w zatyczce, wraz z małą kropląa | 0.04 mL | 0.07 mL |
| Objętość V´ do kalibracji objętości | 0.54 mL | 2.07 mL |
aKropla powinna odpowiadać 5 µL dla komory cV i blisko 0 µL dla komory sV.
Tabela 1: Wymiary modułów małej objętości (sV) i klasycznej objętości (cV) z wkładkami z polietero-etero-ketonu (PEEK).
| J°air / [pmol∙s-1∙mL-1] | J°50 / [pmol∙s-1∙mL-1] | |||
| Objętość komory eksperymentalnej V | 0.5 mL | 2.0 mL | 0.5 mL | 2.0 mL |
| Średnia | 9.22 | 2.37 | -3.17 | -1.17 |
| Mediana | 9.25 | 2.36 | -3.08 | -1.04 |
| Odchylenie standardowe | 0.49 | 0.34 | 0.93 | 0.83 |
| Minimum | 8.20 | 1.79 | -5.11 | -3.72 |
| Maksimum | 10.41 | 3.42 | -0.82 | 0.67 |
Tabela 2: J°air ekstrapolowane do nasycenia powietrzem oraz J°50 obliczone przy stężeniu O2 wynoszącym 50 μM. Dane pochodzące z testów tła instrumentalnego w serii 2 (pce) i 3 (imt) oraz przed tytracjami TIP2k (0,5 mL: N = 48; TIP2k: N = 8; 2,0 mL: N = 60).
Plik uzupełniający 1: Przygotowanie próbek. Płytki krwi ludzkiej, fibroblasty ludzkie oraz mitochondria wyizolowane z serc myszy. Kliknij tutaj, aby pobrać ten plik.
Rysunek dodatkowy 1: Test instrumentalnego tła O2 przy użyciu TIP2k. Przedstawiciele ślady testu przeprowadzonego za pomocą TIP2k w celu miareczkowania ditlenku sodu (2,5 mM) w komorze o pojemności 0,5 mL. Ośrodek: MiR05, temperatura: 37 °C, prędkość mieszania: 750 rpm. Szpilki spowodowane miareczkowaniem zostały usunięte. Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 2: Strumień tła aparaturowego O2 J°1 w funkcji stężenia O2. Komora sV (0,5 mL; zielona, N = 48) oraz komora cV (2,0 mL; niebieska, N = 60) w Serii 2 (pce, okręgi) i Serii 3 (imt, trójkąty), oraz przed miareczkowaniem TIP2k w komorze 0,5-mL (czarne okręgi, N = 8). Czerwone linie: mediana ± SD. Kliknij tutaj, aby pobrać ten plik.
Dodatkowy rysunek 3: Stała czasowa eksponencjalna τ w zależności od prędkości obrotowej mieszania Osobnik τ wartości dla komory o pojemności 0,5 mL przy 37 °C (N = 2). W komorze o pojemności 0,5 mL τ był równy 2,53 ± 0,05 s przy 550 rpm, 2,50 ± 0,05 s przy 750 rpm oraz 2,47 ± 0,04 s przy 850 rpm. Kliknij tutaj, aby pobrać ten plik.
Dodatkowy rysunek 4: O2 zużycie zamrożonych ludzkich płytek krwi w komorze o pojemności 2,0 mL Reprezentatywny przebieg protokołu SUIT-003_D018, w tym tytracje oligomycyny (Omy). Strumień [pmol∙s-1∙mL-1] został skorygowany pod kątem tła instrumentalnego2 strumień i podzielony przez stężenie komórek (164∙106 x∙mL-1). Wyeliminowano szpilki spowodowane miareczkowaniem. cO2 zostało utrzymane powyżej 60 µM przez okresowe ponowne natlenienia (powietrze, komora „otwarta”, odcień niebieski). Sekwencja stanów oddechowych (titracje i szybkości): ce1, rutynowe oddychanie R żywych komórek ce1P, pirogronian jako podłoże zewnętrzne. ce2Omy10, tytracje Omy w krokach 5 nM; wyciek oddychanie L. ce3U2.0, tytracje rozprzęgacza do optymalnych stężeń 2 µM; pojemność ET E. ce3Glc, glukoza 11 mM; E stopniowo hamowane przez rozprzęgacz ce4Rot, rotenon 0.5 µM hamowanie CI; pozostałe zużycie tlenu rox. ce5S, sjanian 10 mM; stymulujące E w komórkach przepuszczalnych dla błony komórkowej 1Dig20, tytracje cyfoniem do optymalnych stężeń 20 µg·mL-1, w celu pełnej permeabilizacji błony komórkowej; pojemność łańcucha transportu elektronów z użyciem bursztynianu SE. 1c, cytochrom c 10 µM; test integralności zewnętrznej błony mitochondrialnej. 2Ama, antymycyna A 2.5 µM hamowanie CIII; rox. Kliknij tutaj, aby pobrać ten plik.
Tabela dodatkowa 1: Odczynniki używane w protokołach tycjonowania substrat-inhibitor-rozprzęgacz (SUIT). Skróty i stężenia roztworów magazynowych dla komór sV i cV. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Porównanie R1-R0 i J°1 w komorach o pojemności 0,5 mL i 2,0 mL. Zestawione dane z testów tła aparaturowego w Serii 2 (pce) i 3 (imt) oraz przed miareczkowaniem TIP2k (0,5 mL: N = 48; TIP2k: N = 8; 2,0 mL: N = 60). Dane uśredniono wyłącznie z eksperymentalnych Serii 2 (pce) i 3 (imt), które przeprowadzono przy średnim ciśnieniu barometrycznym 94,9 kPa (Innsbruck, Austria), wykluczając dane z Serii 1 (ce) uzyskane na poziomie morza. W komorach o pojemności 0,5 mL i 2,0 mL użyto tego samego typu, ale różnych indywidualnych czujników POS. Dlatego przy porównywaniu komór sV i cV należy wziąć pod uwagę zmienność między czujnikami. Chociaż wartość J°1 = 2,26 ± 0,41 pmol∙s-1∙mL-1 uzyskana eksperymentalnie dla komory 2,0 mL była zbliżona do wartości obliczonej, to eksperymentalna wartość J°1 = 8,48 ± 0,53 pmol∙s-1∙mL-1 dla komory 0,5 mL była niższa niż oczekiwano. Można to wyjaśnić następującymi obserwacjami. Po zamknięciu komory wyższy strumień tła O2 w komorze 0,5 mL obniża stężenia O2 w punktach oznaczonych jako J°1 ustalonych w porównywalnych odstępach czasu (Rysunek 1). Stężenie tlenu przy J°1 było średnio o 4,06% i 1,72% poniżej nasycenia powietrzem w komorze 0,5 mL i 2,0 mL, odpowiednio (Rysunek uzupełniający 2, Tabela uzupełniająca 2). Przy niższym cO2 zmniejszone zużycie O2 przez czujnik oraz częściowa dyfuzja O2 wstecz zmniejszają eksperymentalnie wyznaczoną wartość J°1. Kliknij tutaj, aby pobrać ten plik.
Tabela dodatkowa 3: Stężenie tlenu [µM], przy którym uzyskano kalibrację (R1) i J°1, oraz ich różnice procentowe. Dane z testów tła instrumentalnego pochodzące z Serii 2 (pce) i 3 (imt), przeprowadzonych przed miareczkowaniem TIP2k (0,5 mL: N = 48; TIP2k: N = 8; 2,0 mL: N = 60). Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 4: Zmierzone i oczekiwane J°1 w komorze o pojemności 2,0 mL. Niezależne serie testów tła aparaturowego z użyciem serii O2k A (z zatyczkami tytanowymi13), V = 2,0 mL (37 °C, roztwór NaCl z czynnikiem rozpuszczalności O2 równym 0,92; N = 52). nO2/Qe = 106/(96485,33·4) = 2,591 pmol∙µC-1 = 2,591 pmol∙s-1∙µA-1. Obliczenia oparte na założeniu, że dyfuzja wsteczna O2 jest pomijalna przy cO2,1, co jest prawdziwe wyłącznie przy cO2,1 ~ cO2*. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 5: Reszty regresji liniowej (wartości bezwzględne [pmol O2∙s-1∙mL-1]) obliczone dla każdego testu instrumentalnego tła O2. Dane połączone z testów tła instrumentalnego w Serii 2 (pce) i 3 (imt) oraz przed miareczkowaniem TIP2k. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Ilość próbki dostępnej do respirometrii jest często ograniczona, np. w badaniach biopsji, komórek pierwotnych lub wolno rosnących kultur komórkowych o niskiej liczbie komórek1. Co więcej, aktywność układu oddechowego jest obniżona z powodu urazów mitochondrialnych11 lub podczas badania szlaków mitochondrialnych o niskiej wydajności, takich jak utlenianie kwasów tłuszczowych12. W takich przypadkach niska objętość komory respirometrycznej zapewnia korzyści w zakresie rozdzielczości strumieniaO2. Jednak instrumentalne strumienie tłaO2 zwiększają się przy niższych objętościach komory i wywołują błędy, gdy nie są mierzone wiarygodnie i nie są odpowiednio korygowane w funkcji stężeniaO2. Powtarzalność instrumentalnych testów tłaO2 i korekcji tła są szczególnie ważne w przypadku małych objętości komory. Prawie identyczne wartości teoretycznego (J°R1) i eksperymentalnego (J°air) strumieniaO2 dostarczają dowodów na dokładność pomiaru polarograficznego z 4 e-/O2 w reakcji katodowej POS. Różnica między J°R1 i J°air wynosiła 1,64 ± 0,43 i 0,22 ± 0,31 pmol∙s-1∙mL-1 odpowiednio w komorze sV i cV, co wskazuje na precyzję pomiarów, która mieści się w granicy wykrywalności komory 2,0 ml (±1 pmol∙s-1∙mL-1)28. Przy tym samym typie polarograficznych czujników tlenu w komorze 2,0 ml i 0,5 ml, strumień tła o objętości O2 wzrósł 4-krotnie odwrotnie proporcjonalnie do objętości komory, a zmienność była prawie identyczna w dwóch objętościach komory, z SD wynoszącym 0,5 i 0,3 pmol∙s-1∙mL-1 dla J°air oraz 0,9 i 0,8 pmol∙s-1∙mL-1 dla J°50 odpowiednio w komorze sV i cV (tabela 2). Przy minimalnych czynnościach oddechowych - do których zaprojektowano komorę o małej objętości - nawet niewielkie efekty tła stają się znaczące (tabela uzupełniająca 3; Rysunek uzupełniający 2). W związku z tym wymagana jest rutynowa ocena strumienia O2 w tle instrumentalnym (rysunek 1) w celu zastosowania właściwej korekcji28.
Wysokie i ciągłe mieszanie pożywki jest wymagane do utrzymania jednorodnego systemu i zagwarantowania stabilnego sygnału tlenowego. Prędkość mieszania 750 obr./min ustalono dla komory o pojemności 2,0 ml, ale optymalna prędkość nie była znana w komorze o pojemności 0,5 ml. Różne geometrie szklanej komory i mieszadła (tabela 2) wymagają niezależnej oceny optymalnej prędkości mieszania. Czujniki tlenu reagowały na zmiany prędkości mieszania w zakresie od 550 obr./min do 950 obr./min, z niewielkim odchyleniem od sygnału O2 R1 przy 750 obr./min, niezależnie od objętości komory. Wykładnicza stała czasowa τ obliczona dla komorys V była zgodna z τ zgłoszoną dla komory 2,0 ml przy tej samej prędkości mieszania13. Wyniki te sugerują, że mieszanie jest równie skuteczne w obu geometriach komory i że domyślna prędkość mieszania 750 obr./min (komora 2,0 ml) może być zastosowana do komory 0,5 ml. Zarówno w konfiguracji komory "otwartej", jak i "zamkniętej", komora o pojemności 0,5 ml miała wyższy stosunek sygnału do szumu, co sugeruje wyższą dokładność jako zaletę komory o pojemności 0,5 ml (ilustracja 5), chociaż nie można wykluczyć wpływu zmienności poszczególnych punktów sprzedaży. Ponieważ hałas nie wzrastał przy zmniejszaniu prędkości mieszania z 750 obr./min do 550 obr./min, zmniejszenie prędkości mieszania do 550 obr./min w komorze 0,5 ml może być korzystne dla zminimalizowania naprężeń ścinających bez uszczerbku dla stosunku sygnału do szumu.
Prawie identyczne wskaźniki zużyciaO2 mierzono w komorach 0,5 ml i 2,0 ml w trzech modelach eksperymentalnych, gdy zastosowano odpowiednią korekcję tła. Wyniki uzyskane z małymi płytkami krwi o średnicy 2 μm42, żywymi i przepuszczalnymi fibroblastami oraz izolowanymi mitochondriami sugerują, że można oczekiwać uzyskania stałej częstości oddechów w komorach 0,5 ml i 2,0 ml w szerokim zakresie typów komórek i preparatów mitochondrialnych. Przepuszczalne włókna mięśniowe nie zostały jednak przetestowane w niniejszym badaniu. Dokładny pomiar rox wymaga kontroli poziomu tlenu40 i wysokiej rozdzielczości instrumentalnej1. Specyficzny objętościowo strumień O2 rox może być tak niski, jak granica wykrywalności. Reoksygenacja nie jest konieczna, gdy w eksperymencie używa się małej liczby komórek lub ogólnie niewielkich ilości próbek. W razie potrzeby zaleca się jednak wykonanie reoksygenacji w stanach oddechowych o niskim strumieniuO2, aby uniknąć gwałtownego spadku stężeniaO2 w okresie wymaganym do stabilizacji strumieniaO2. Stabilizacja strumieniaO2 po ponownym natlenieniu trwa dłużej w komorze 0,5 ml.
W celu zapewnienia kontroli jakości należy zwrócić szczególną uwagę na rozcieńczenie próbki w zawiesinie podczas częściowej wymiany objętości. Po wyjęciu całkowicie włożonego korka, całkowita objętość V' medium oddechowego w komorze jest podawana przez eksperymentalną objętość V i objętość kapilary V stc zatyczki (tabela 2). W związku z tym objętość materiału wyjściowego V J.i rozcieńcza się w rzeczywistej objętości V', która jest większa niż V, co daje współczynnik rozcieńczenia V/V' wynoszący 0,5/0,54 = 0,926 i 2,0/2,07 = 0,966 odpowiednio w komorach 0,5 ml i 2,0 ml (rysunek 2). W eksperymentach z płytkami krwi zastosowano prototypowy korek do komory V o martwej objętości kapilarnej 0,05 ml, co odpowiada współczynnikowi rozcieńczenia 0,909.
W komorze 0,5 ml wymagana jest prawie czterokrotnie mniejsza ilość żywych komórek, komórek przepuszczalnych i izolowanych mitochondriów niż w komorze 2,0 ml przy identycznych stężeniach próbki (ilość na objętość), co daje ilościowo porównywalne wyniki zużycia O2 w oddychaniu znormalizowane dla liczby komórek lub masy białka. Wskazuje to, że komora V jest cennym narzędziem do badań, w których ilość dostępnych próbek jest ograniczona. Z drugiej strony, zastosowanie identycznej ilości próbki w komorzes V zwiększa objętościowy strumieńO2, a tym samym zmniejsza niepewność pomiarów, gdy aktywność oddechowa jest niska.
Reżim tlenowy w niniejszym badaniu był ograniczony do zakresu nasycenia powietrzaO2 do 30 μM. Zastosowanie przy poziomach tlenu poza tym zakresem wymaga dalszej oceny w celu zbadania funkcji mitochondriów w normoksji tkankowej lub hipoksji43 i przepuszczalnych tkanek w hiperoksji9. Kilka konfiguracji wielosensorowych modułów NADH i Q firmy Oroboros; Elektrody pH, NO i TPP+ 10,44 - nie mogą być umieszczone w komorzeV i wymagają komory 2,0 ml.
Oświadczenia
EL jest pracownikiem firmy Oroboros Instruments. EG jest założycielem i dyrektorem generalnym Oroboros Instruments.
W trakcie realizacji projektu LFGS został zatrudniony przez firmę Oroboros Instruments. EÅF i EE są pracownikami firmy Abliva AB z siedzibą w Lund w Szwecji, która zawarła umowę handlową z Oroboros Instruments.
LR deklaruje, że nie występuje w konflikcie interesów.
Podziękowania
Dziękujemy Manueli Passrugger za zebranie danych na temat izolowanych mitochondriów, Patrizii Guerth za wsparcie techniczne przy testowaniu prędkości obrotowej mieszania oraz Mateusowi Gringsowi za analizę stałej czasowej z testów mieszadeł. Dziękujemy naszemu partnerowi, firmie WGT Elektronik GmbH & Co KG, Kolsass, Austria, za informacje na temat danych technicznych szklanych komór, korków i natężenia pola magnetycznego. Dziękujemy Luizie HD Cardoso, Alejandrze Romero-Martinez, Ondrejowi Sobotce, Albie Timon-Gomez i Jaime Willisowi za komentarze. Praca ta została częściowo sfinansowana przez program Unii Europejskiej w zakresie badań naukowych i innowacji Horyzont 2020 na podstawie umowy o grant nr 859770, projekt NextGen-O2k. Wkład w działanie COST CA15203 MitoEAGLE przy wsparciu finansowym Krótkoterminowych Misji Naukowych (LFGS, LR).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Anaconda3 | Anaconda Software Distribution | https://www.anaconda.com/ | software |
| ADP | Merck, Niemcy | 117105 | |
| Antybiotyki-leki przeciwgrzybicze 100x | Biosera, Francja | XC-A4110 | UWAGA H317 Może powodować reakcję alergiczną skóry |
| Antymycyna A | Sigma-Aldrich, USA | A8674 | UWAGA H300 Połknięcie grozi śmiercią, H400 krótkotrwałe (ostre) zagrożenie dla środowiska wodnego |
| Askorbinian | Sigma-Aldrich, Stany Zjednoczone | A7631 | |
| ATP | Sigma-Aldrich, Stany Zjednoczone& | nbsp; A 2383 | |
| BSA bez kwasów tłuszczowych | Sigma-Aldrich, USA | A 6003 | albumina surowicy bydlęcej |
| CaCO3 | Sigma-Aldrich, USA | C 4830 | |
| CCCP | Sigma-Aldrich, USA | C2759 | cyjanek karbonylu m-chlorofenylohydrazon UWAGA H301 + H311 + H331 Działa toksycznie po połknięciu, w kontakcie ze skórą lub w następstwie wdychania |
| Hrabina Automatyczny licznik komórek | Thermo Fisher Scientific, Stany Zjednoczone | AMQAX100 | |
| Cytochrom c | Sigma-Aldrich, Stany Zjednoczone | C7752 | |
| DatLab | Oroboros Instruments, Austria | Wersja 7.4 Oprogramowanie | do akwizycji i analizy danych |
| DatLab | Oroboros Instruments, Austria | Wersja 8.1 Oprogramowanie | do pozyskiwania i analizy danych |
| Test białka DC | Bio-Rad, USA | 5000112 | Zestaw do oznaczania białek; UWAGA H314 Powoduje poważne oparzenia skóry i uszkodzenia oczu |
| Digitonina | Sigma-Aldrich, USA | D5628 | UWAGA H301 Działa toksycznie po połknięciu |
| Ditiothreitol | Sigma-Aldrich, USA | D 0632 | UWAGA H318 Powoduje poważne uszkodzenie oczu |
| DMEM | Pan Biotech, Niemcy | P04-05551 | Dulbecco' s zmodyfikowany Orzeł" s medium |
| DMSO | Sigma-Aldrich, USA | D2650 | dimetylosulfotlenek |
| DPBS | Lonza Bioscience, Szwajcaria | LONBE17-512F | Bez wapnia Dulbecco' s sól fizjologiczna buforowana fosforanami |
| EGTA | Sigma-Aldrich, USA | E 4378 | |
| FBS | Thermo Fisher Scientific, USA | A5256701 | płodowa surowica bydlęca |
| Glukoza | Sigma-Aldrich, USA& | nbsp; G7528 | |
| Glutaminian | Sigma-Aldrich, USA | G1626 | |
| Glicerofosforan | Santa Cruz Biotechnology | sc-215789 | |
| Heraeus Multifuge 3s Large | Thermo Fisher Scientific, USA | Wirówka | HM3S |
| Hettich Rotina 380R | Andreas Hettich GmbH & Co. KG, Niemcy | 1701 | wirówka |
| Imidazol | Honeywell Fluka, Austria | 56750 | UWAGA H302 Działa szkodliwie po połknięciu, H314 Powoduje poważne oparzenia skóry i uszkodzenia oczu, H360D Może uszkodzić nienarodzone dziecko |
| jamovi | Projekt jamovi | Wersja 2.3.13 | oprogramowanie |
| K+-MES | Sigma-Aldrich, USA | M 8250 | |
| Rurka Leucosep | Greiner Bio-One GmbH, Austria | Z642843-300EA | probówka wirówkowa z barierą polietylenową |
| Malate | Sigma-Aldrich, USA | M1000 | UWAGA H319 Działa drażniąco na oczy. |
| Mannitol | Sigma-Aldrich, Stany Zjednoczone | M 4125 | |
| MgCl2 | Scharlau, Hiszpania | MA 0036 | |
| MiR05-Kit | Oroboros Instruments, Austria | 60101-01 | mitochondrialne podłoże oddechowe |
| Mikser | Swelab Instruments, Szwecja | Stół bujany | 440S |
| Mr. Frosty Pojemnik do zamrażania | Thermo Fisher Scientific, USA | 5100-0001 | pojemnik do zamrażania |
| Oroboros | Oroboros Instruments, Austria | NextGen-O2k i O2k są określane zbiorczo terminem " Oroborosa | |
| Komora Oroboros cV | Oroboros Instruments, Austria | 23100-01 | klasyczna komora objętościowa |
| Komora Oroboros sV | Oroboros Instruments, Austria | 33100-01 | komora o małej objętości |
| Oroboros TIP2k-Module | Oroboros Instruments, Austria | 11100-03 | Mikropompa miareczkowo-wtryskowa |
| O2-Zero Powder | Oroboros Instruments, Austria | 26600-02 | Na-ditionit UWAGA H251 Samonagrzewanie się: może się zapalić, H302 Działa szkodliwie po połknięciu, H319 Działa drażniąco na oczy |
| oktanoilokarnityna | Biotrend - APExBIO Technology, Niemcy | B6371 | |
| Oligomycyna | Sigma-Aldrich, USA | O4876 | |
| Fosfokreatyna | Sigma-Aldrich, USA | P 7936 | |
| Pirogronian | Sigma-Aldrich, USA | P2256 | UWAGA H317 Może powodować reakcję alergiczną skóry |
| Rotenon | Sigma-Aldrich, USA | R8875 | UWAGA H300 Połknięcie grozi śmiercią |
| Linie komórkowe fibroblastów skóry | ATCC, Stany Zjednoczone | ||
| Azydek sodu | Sigma-Aldrich, USA | S2002 | UWAGA H300 + H310 + H330 Śmiertelne w przypadku połknięcia, kontaktu ze skórą lub wdychania |
| Subtylizyna A | Sigma-Aldrich, USA | P 5380 | UWAGA H318 - Powoduje poważne uszkodzenie oczu, H334 - Może powodować objawy alergii lub astmy lub trudności w oddychaniu w następstwie wdychania |
| Bursztynian | Sigma-Aldrich, USA | S2378 | |
| Sacharoza | Sigma-Aldrich, USA | S 7903 | |
| Licznik komórek krwi Swelab Alfa | Boule Diagnostics AB, Szwecja | 1420041 | |
| Tauryna | Sigma-Aldrich, Stany Zjednoczone | T 0625 | |
| Tecan Infinite TM F200 | Tecan, Szwajcaria | spektrofotometr | |
| TMPD | Sigma-Aldrich, USA | T3134 | Dichlorowodorek N,N,N',N'-tetrametylo-p-fenylenodiaminy UWAGA H315 Działa drażniąco na skórę, H319 Działa drażniąco na oczy |
| Trypsyna | Sigma-Aldrich, USA | T4799 | UWAGA H334 Wdychanie może powodować objawy alergii lub astmy lub trudności w oddychaniu |
| Vacuette | Greiner Bio-One GmbH, Austria | 15452520 |
Bibliografia
- Zdrazilova, L., Hansikova, H., Gnaiger, E. Comparable respiratory activity in attached and suspended human fibroblasts. PLoS ONE. 17 (3), e0264496(2022).
- Schöpf, B., et al. OXPHOS remodeling in high-grade prostate cancer involves mtDNA mutations and increased succinate oxidation. Nat Commun. 11 (1), 1487(2020).
- Meszaros, A. T., et al. The predictive value of graft viability and bioenergetics testing towards the outcome in liver transplantation. Transplant International. 37, 12380(2024).
- Doerrier, C., Garcia-Souza, L. F., Krumschnabel, G., Wohlfarter, Y., Mészáros, A. T., Gnaiger, E. High-resolution fluorespirometry and OXPHOS protocols for human cells, permeabilized fibers from small biopsies of muscle, and isolated mitochondria. Methods Mol Biol. 1782, 31-70 (2018).
- Gnaiger, E., Steinlechner-Maran, R., Méndez, G., Eberl, T., Margreiter, R. Control of mitochondrial and cellular respiration by oxygen. J Bioenerg Biomembr. 27 (6), 583-596 (1995).
- Gnaiger, E., Méndez, G., Hand, S. C. High phosphorylation efficiency and depression of uncoupled respiration in mitochondria under hypoxia. Proc Natl Acad Sci. 97 (20), 11080-11085 (2000).
- Gnaiger, E. Oxygen Conformance of Cellular Respiration. Hypoxia. Advances in Experimental Medicine and Biology. Roach, R. C., Wagner, P. D., Hackett, P. H. , Springer. Springer, Boston, MA. (2003).
- Harrison, D. K., Fasching, M., Fontana-Ayoub, M., Gnaiger, E. Cytochrome redox states and respiratory control in mouse and beef heart mitochondria at steady-state levels of hypoxia. J Appl Physiol. 119 (10), 1210-1218 (2015).
- Pesta, D., Gnaiger, E. High-resolution respirometry: OXPHOS protocols for human cells and permeabilized fibers from small biopsies of human muscle. Methods Mol Biol. 810, 25-58 (2012).
- Komlódi, T., Cardoso, L. H. D., Doerrier, C., Moore, A. L., Rich, P. R., Gnaiger, E. Coupling and pathway control of coenzyme Q redox state and respiration in isolated mitochondria. Bioenerg Commun. 2021.3, (2021).
- Suomalainen, A., Nunnari, J. Mitochondria at the crossroads of health and disease. Cell. 187 (11), 2601-2627 (2024).
- Cardoso, L. H. D., et al. Fatty acid β-oxidation in brain mitochondria: Insights from high-resolution respirometry in mouse, rat and Drosophila brain, ischemia and aging models. Biochim Biophys Acta Mol Basis Dis. 1871, 167544(2025).
- Gnaiger, E. Bioenergetics at low oxygen: dependence of respiration and phosphorylation on oxygen and adenosine diphosphate supply. Respir Physiol. 128 (3), 277-297 (2001).
- Gnaiger, E. Polarographic Oxygen Sensors, the Oxygraph and High-Resolution Respirometry to Assess Mitochondrial Function. Mitochondrial dysfunction in drug-induced toxicity. Dykens, J. A., Will, Y. , John Wiley & Sons, Inc. Hoboken, NJ. 327-352 (2008).
- Gnaiger, E. Mitochondrial pathways and respiratory control. An Introduction to OXPHOS analysis. Bioenerg Commun. 2020.2, (2020).
- Diaz, E. C., Adams, S. H., Weber, J. L., Cotter, M., Børsheim, E. Elevated LDL-C, high blood pressure, and low peak VO₂ associate with platelet mitochondria function in children-The Arkansas Active Kids Study. Front Mol Biosci. 10, 1136975(2023).
- Ehinger, J. K., Morota, S., Hansson, M. J., Paul, G., Elmér, E. Mitochondrial dysfunction in blood cells from amyotrophic lateral sclerosis patients. J Neurol. 262 (6), 1493-1503 (2015).
- Heimler, S., et al. Platelet bioenergetics are associated with resting metabolic rate and exercise capacity in older adult women. Bioenerg Commun. 2022.2, (2022).
- Palacka, P., et al. Platelet mitochondrial bioenergetics reprogramming in patients with urothelial carcinoma. Int J Mol Sci. 23 (1), 388(2021).
- Fischer, C., et al. Mitochondrial respiration in response to iron deficiency anemia: Comparison of peripheral blood mononuclear cells and liver. Metabolites. 12 (3), 270(2022).
- JedIicka, J., et al. Impact of aging on mitochondrial respiration in various organs. Physiol Res. 71 (Suppl. 2), S227-S236 (2022).
- Westerlund, E., et al. Correlation of mitochondrial respiration in platelets, peripheral blood mononuclear cells and muscle fibers. Heliyon. 10 (5), e26745(2024).
- Hütter, E., Renner, K., Pfister, G., Stöckl, P., Jansen-Dürr, P., Gnaiger, E. Senescence-associated changes in respiration and oxidative phosphorylation in primary human fibroblasts. Biochem J. 380 (3), 919-928 (2004).
- Yépez, V. A., et al. OCR-Stats: Robust estimation and statistical testing of mitochondrial respiration activities using Seahorse XF Analyzer. PLoS One. 13 (7), e0199938(2018).
- Gnaiger, E. Bioenergetic cluster analysis - mitochondrial respiratory control in human fibroblasts. MitoFit Preprints. 2021.8, (2021).
- Palmer, J., Tandler, B., Hoppel, C. Biochemical properties of subsarcolemmal and interfibrillar mitochondria isolated from rat cardiac muscle. J Biol Chem. 252, 8731-8739 (1977).
- Lai, N. M., Kummitha, C., Rosca, M. G., Fujioka, H., Tandler, B., Hoppel, C. L. Isolation of mitochondrial subpopulations from skeletal muscle: Optimizing recovery and preserving integrity. Acta Physiol. 225 (2), e13182(2019).
- Baglivo, E., Cardoso, L. H., Cecatto, C., Gnaiger, E. Statistical analysis of instrumental reproducibility as internal quality control in high-resolution respirometry. Bioenerg Commun. 2022.8, (2022).
- Mela, L., Seitz, S. Isolation of mitochondria with emphasis on heart mitochondria from small amounts of tissue. Methods Enzymol. 55, 39-46 (1979).
- Cardoso, L. H. D., Doerrier, C., Gnaiger, E. Magnesium Green for fluorometric measurement of ATP production does not interfere with mitochondrial respiration. Bioenerg Commun. 2021.1, (2021).
- Gnaiger, E. The elementary unit — count and numbers in the International System of Units. BEC preprints. , (2025).
- Vernerova, A., et al. Mitochondrial respiration of platelets: Comparison of isolation methods. Biomedicines. 9 (12), 1859(2021).
- Oroboros Instruments SUIT-003 O2 ce-pce D018. , https://wiki.oroboros.at/index.php/SUIT-003_O2_ce-pce_D018 (2024).
- Oroboros Instruments SUIT-001 O2 ce-pce D004. , https://wiki.oroboros.at/index.php/SUIT-001_O2_ce-pce_D004 (2024).
- Timón-Gómez, A., et al. Bioenergetic profiles and respiratory control in mitochondrial physiology: Precision analysis of oxidative phosphorylation. Exp Physiol. , 1-33 (2025).
- Oroboros Instruments SUIT-002 O2 ce-pce D007. , https://wiki.oroboros.at/index.php/SUIT-002_O2_ce-pce_D007 (2024).
- Oroboros Instruments SUIT-002 O2 mt D005. , https://wiki.oroboros.at/index.php/SUIT-002_O2_mt_D005 (2024).
- The Jamovi Project jamovi (Version 2.3.13). , https://www.jamovi.org/ (2024).
- Gnaiger, E. Preface: A biologist´s view. Polarographic Oxygen Sensors. Aquatic and Physiological Applications. Gnaiger, E., Forstner, H. , Berlin, Heidelberg, New York. Springer. V-VII (1983).
- Hütter, E., Renner, K., Jansen-Dürr, P., Gnaiger, E. Biphasic oxygen kinetics of cellular respiration and linear oxygen dependence of antimycin A inhibited oxygen consumption. Mol Biol Rep. 29 (1/2), 83-87 (2002).
- Oroboros Instruments Cell count and normalization in HRR. , https://wiki.oroboros.at/index.php/Cell_count_and_normalization_in_HRR (2020).
- Williams, O., Sergent, S. R. Histology Platelets. , StatPearls Pubs. Treasure Island, FL. (2022).
- Donnelly, C., et al. The ABC of hypoxia - what is the norm. Bioenerg Commun. 2022.12.V2, (2022).
- Aguirre, E., Rodríguez-Juárez, F., Bellelli, A., Gnaiger, E., Cadenas, S. Kinetic model of the inhibition of respiration by endogenous nitric oxide in intact cells. Biochim Biophys Acta. 1797 (5), 557-565 (2010).
Przedruki i uprawnienia
