W niniejszym materiale przedstawiono protokół wypreparowania jelita środkowego, jajników i gruczołów ślinowych z Aedes albopictus, a następnie ekstrakcji całkowitego RNA w celu charakterystyki molekularnej tkanek wektora w badaniach nad transmisją wirusów przenoszonych przez komary.
Artykuł metodologiczny
Disekcja Aedes albopictus i ekstrakcja całkowitego RNA z tkanek po dysekcji
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
W lipcu 2025 roku w Foshan, w prowincji Guangdong w Chinach, wystąpiła epidemia dengi i chikungunya. Ae. albopictus jest głównym wektorem tych wirusów. Niniejszy protokół opisuje prostą, zestandaryzowaną metodę preparowania jelita środkowego, gruczołów ślinowych i jajników Ae. albopictus oraz izolacji całkowitego RNA z wypreparowanych tkanek. Samice komarów w wieku trzech dni, które nie pobrały krwi, znieczulono poprzez zamrożenie w temperaturze −20 °C przez 2 min, po czym wypreparowano docelowe tkanki. Całkowite RNA wyizolowano za pomocą zestawu do ekstrakcji RNA z tkanek, oznaczono ilościowo za pomocą mikroobjętościowego spektrofotometru i wykorzystano do analizy ilościowej polimerazy łańcuchowej w czasie rzeczywistym (RT-qPCR). Wyniki wskazują, że metoda preparowania pozwala na szybkie i całkowite oddzielenie tkanek, a RNA z wyizolowanych tkanek może osiągnąć stosunkowo wysoką czystość. Analiza RT-qPCR wykazała wzorce ekspresji i względną stabilność trzech genów referencyjnych (GAPDH, β-actin oraz RPS6). Metoda jest prosta, zwalidowana i zapewnia zestandaryzowane wsparcie techniczne dla badań związanych z Ae. albopictus.
Wprowadzenie
Aedes albopictus (Ae. albopictus) jest wektorem wielu patogenów, w tym wirusa dengi (DENV) oraz wirusa chikungunya (CHIKV)1,2,3. Gatunek ten występuje w szerokim zasięgu geograficznym i wywołał ogniska chorób przenoszonych przez komary w wielu regionach4,5. Zdolność Ae. albopictus do przenoszenia patogenów, znana jako kompetencja wektora, różni się w zależności od populacji i jest powiązana ze specyficzną ekspresją genów w jelitach środkowych, jajnikach oraz gruczołach ślinowych6. Zrozumienie struktury tych tkanek oraz izolacja wysokiej jakości RNA są kluczowe dla poznania mechanizmów replikacji, rozprzestrzeniania się i transmisji wirusów przenoszonych przez wektory7.
Wykrywanie względnej ekspresji genów za pomocą ilościowej reakcji PCR w czasie rzeczywistym (RT-qPCR) zależy od precyzyjnej dyssekcji tkanek Ae. albopictus oraz ekstrakcji wysokiej jakości RNA8,9. Do tej pory opublikowane protokoły wideo dotyczące dyssekcji jelita środkowego, jajników i gruczołów ślinowych koncentrowały się głównie na Aedes aegypti10. Niniejszy protokół przedstawia zatem dyssekcję jelita środkowego, jajników i gruczołów ślinowych Ae. albopictus, w której wypreparowane tkanki umieszcza się bezpośrednio w probówkach do homogenizacji zawierających roztwór do stabilizacji RNA, co pozwala uniknąć etapów przenoszenia tkanek i minimalizuje straty podczas tego procesu. Całkowite RNA jest ekstrahowane z dyssekowanych tkanek przy użyciu metody kolumienkowej, która wymaga mniej etapów manipulacyjnych i mniej czasu niż konwencjonalna metoda TRIzol11. Ekstrakcja ta zazwyczaj daje 0,1–0,3 µg całkowitego RNA z gruczołów ślinowych pięciu osobników Ae. albopictus, przy stosunkach A260/A280 na poziomie 1,8–2,0, co spełnia wymagania dotyczące czystości dla późniejszych analiz RT-qPCR. RT-qPCR jest przeprowadzana w celu pomiaru ekspresji trzech genów referencyjnych w tkankach Ae. albopictus, co pozwala na ocenę jakości RNA wyekstrahowanego z każdej tkanki.
Należy zaznaczyć, że niniejszy protokół został zwalidowany wyłącznie dla jelita środkowego, jajników i gruczołów ślinowych 3-dniowych, niekarmionych krwią samic Ae. albopictus i nie nadaje się do ekstrakcji RNA z ciała tłuszczowego. Uzyskanie nienaruszonych, pojedynczych tkanek jest podstawą dla dalszych analiz. Poprzez systematyczną sekcję tkanek Ae. albopictus oraz wysokiej jakości ekstrakcję RNA, protokół ten zapewnia wsparcie techniczne dla późniejszej detekcji ekspresji genów, oceny kompetencji wektora na poziomie populacyjnym oraz kontroli transmisji arbowirusów.
Protokół
W badaniu tym wykorzystano wyłącznie komary Ae. albopictus hodowane w warunkach laboratoryjnych. W związku z tym badanie nie wymagało uzyskania instytucjonalnej zgody komisji etycznej. Szczep Ae. albopictus użyty w tym eksperymencie został udostępniony przez Key Laboratory for Parasitic Disease Control and Prevention of the National Health Commission of China (Jiangsu). Kolonia ta została pierwotnie zebrana w mieście Wuxi w latach 80. XX wieku i utrzymywana w insekterium w Jiangsu Institute of Parasitic Diseases w standardowych warunkach. Kolonię komarów utrzymywano w komorze klimatycznej w temperaturze 25 °C ± 1 °C, przy wilgotności względnej 75% ± 5% i fotoperiodzie 10 h światła oraz 14 h ciemności. Larwy hodowano w wodzie ultrapurej i karmiono mieszanką sproszkowanej wątroby wieprzowej oraz ekstraktu drożdżowego (Shanghai Brewery) w stosunku 2:1. Dorosłe komary utrzymywano na 5% roztworze glukozy. Wykorzystane odczynniki i sprzęt wymieniono w Tabeli materiałów.
1. Przygotowanie materiałów
- Przygotowanie roztworów
- Przygotowanie buforu 1x PBS: Odważyć 8,0 g NaCl, 0,2 g KCl, 1,44 g Na2HPO4 oraz 0,24 g KH2PO4. Rozpuścić w 800 mL wody ultrapurej przy mieszaniu. Dostosować pH do 7,4. Dopełnić objętość końcową do 1 L. Sterylizować w autoklawie w temperaturze 121 °C przez 20 min.
- Przygotowanie roztworu DEPC: Dodać 1 mL roztworu stokowego DEPC do 1 L wody ultrapurej. Mieszać intensywnie na mieszadle magnetycznym przez 12–16 h. Sterylizować w autoklawie w temperaturze 121 °C przez 20 min.
OSTRZEŻENIE: DEPC jest silnie toksyczne i rakotwórcze. Należy stosować rękawiczki oraz okulary ochronne i pracować pod wyciągiem.
UWAGA: Podczas intensywnego mieszania przykryć zlewkę folią aluminiową. Rozdzielić roztwór DEPC na alikwoty i przechowywać w temperaturze -20 °C do 6 miesięcy.
- Przygotowanie materiałów eksploatacyjnych
- Sterylizacja narzędzi do sekcji: Umieścić igły sekcyjne 1 mm oraz pęsety z cienkim końcem w pojemniku aluminiowym i sterylizować w autoklawie w temperaturze 121 °C przez 20 min.
- Przygotować probówki do homogenizacji o pojemności 2 mL zawierające kulek kwarcu o średnicy 0,5–1,0 mm. Umieścić w pojemniku aluminiowym i sterylizować w autoklawie w temperaturze 121 °C przez 20 min.
- Do każdej probówki do homogenizacji dodać 200 µL dołączonego do zestawu roztworu do stabilizacji RNA.
UWAGA: Jakość RNA w tkankach ulega znacznemu pogorszeniu w ciągu 1 min od momentu pobrania z organizmu. Probówki do homogenizacji z roztworem stabilizującym należy przygotować wcześniej.
2. Zbieranie Ae. albopictus
UWAGA: Należy nosić białe fartuchy laboratoryjne i rękawiczki. Prosimy nie nosić ciemnych ubrań, ponieważ ciemne kolory przyciągają komary.
- Zamknąć wszystkie drzwi, okna i systemy wentylacyjne w pomieszczeniu, w którym znajduje się klatka z komarami, aby zapobiec ucieczce Ae. albopictus.
- Włączyć aspirator elektryczny i wprowadzić go do klatki z komarami. Skierować aspirator w stronę osobników Ae. albopictus spoczywających na wewnętrznych ściankach klatki i zebrać komary.
- Pozostawić aspirator włączony podczas powolnego wycofywania go z klatki. Natychmiast uszczelnić klatkę i zamknąć pokrywę aspiratora.
- Wyjąć komorę zbiorczą i umieścić ją w temperaturze -20 °C na 2 min w celu unieruchomienia Ae. albopictus za pomocą zimna.
- Umieścić szklaną szalkę o średnicy 10 cm na lodzie w celu wstępnego schłodzenia. Przenieść unieruchomione osobniki Ae. albopictus z komory zbiorczej do szklanej szalki.
UWAGA: Ściśle kontrolować czas unieruchamiania zimnem, aby zapobiec uszkodzeniu tkanek.
3. Identyfikacja samic Ae. albopictus przed sekcją
- Wybierz morfologicznie nieuszkodzone, znieczulone zimnem osobniki Ae. albopictus ze szalki szklanej i przenieś je na szkiełko przedmiotowe. Obejrzy je pod stereomikroskopem przy powiększeniu 80x.
- Zidentyfikuj biały podłużny pas na mezonotum.
- Potwierdź obecność białych prążków u podstawy segmentów tarsalnych oraz u podstawy tergitów odwłoka II-VI12.
- Obejrzy czułki przy powiększeniu 80x. Odróżnij czułki nitkowate (samica) od czułków pierzastych (samiec), aby zidentyfikować samice.
4. Disekcja odwłoka Ae. albopictus
- Nanieś trzy krople sterylnego 1x PBS od lewej do prawej strony na wysterylizowany szkiełko przedmiotowe, tak aby każda kropla miała objętość około 20 µL i była oddalona od pozostałych o około 5 mm.
UWAGA: Krople PBS powinny być wystarczająco duże, aby całkowicie zanurzyć Ae. albopictus. - Za pomocą precyzyjnej pęsety chwyć skrzydła Ae. albopictus i umieść komara w lewej kropli PBS.
- Uorientuj Ae. albopictus stroną brzuszną do góry. Trzymając w lewej ręce igłę sekcyjną, naciśnij drugi segment odwłoka, aby unieruchomić Ae. albopictus.
- Prawą ręką wprowadź 1 mm igłę sekcyjną w połowie szóstego segmentu odwłoka. Wykonaj poprzeczne, półkoliste nacięcie, aby otworzyć jamę odwłoka.
- Przesuń igłę sekcyjną trzymaną w prawej ręce o około 2 mm w kierunku tylnym i naciśnij środkową część segmentów odwłoka VI–VIII, aby zabezpieczyć odwłok.
UWAGA: Jajniki znajdują się grzbietowo w obrębie segmentów odwłoka II-VI. Podczas naciskania segmentów VI-VIII nie poruszaj igłą chaotycznie, aby uniknąć uszkodzenia nienaruszonej morfologii jajników. - Lewą ręką chwyć drugi segment odwłoka igłą sekcyjną i delikatnie pociągnij na zewnątrz, aby rozdzielić odwłok na wysokości szóstego segmentu. Podczas rozdzielania całkowicie odsłonięte zostaną jelito przednie, jelito środkowe oraz cewki Malpighiego.
UWAGA: Cewki Malpighiego są białe i cienkie. Jelito środkowe jest półprzezroczyste i wrzecionowate. - Oddziel jelito środkowe od jelita przedniego i tylnego. Przepłucz jelito środkowe dwukrotnie w środkowej kropli PBS.
- Przenieś je do probówki do homogenizacji zawierającej 200 µL roztworu do stabilizacji RNA dołączonego do komercyjnego zestawu do ekstrakcji RNA.
- Naciśnij środek ósmego segmentu odwłoka igłą sekcyjną, aby odsłonić sparowane jajniki po obu stronach. Usuń jajniki, przepłucz je dwukrotnie w środkowej kropli PBS i przenieś do probówki do homogenizacji zawierającej 200 µL roztworu do stabilizacji RNA.
UWAGA: Sparowane jajniki są symetryczne, mają kształt ziarna ryżu i są mlecznobiałe. Należy z nimi obchodzić się ostrożnie, aby zapewnić integralność strukturalną jajników podczas ich usuwania.
5. Disekcja gruczołów ślinowych Ae. albopictus
- Zwiększyć powiększenie mikroskopu do 400x. Przenieść wypreparowany odwłok Ae. albopictus do najbardziej wysuniętej na prawo kropli PBS.
- Przyłożenie delikatnego nacisku na mezotoraks za pomocą lewej igły sekcyjnej, aż do lekkiego uniesienia głowy.
- Za pomocą prawej ręki unieś głowę w okolicy szyi, używając igły sekcyjnej, i powoli pociągnij ją na zewnątrz. Obserwuj gruczoły ślinowe (struktura trójpłatowa) podczas ich oddzielania się od klatki piersiowej wraz z głową.
UWAGA: Gruczoły ślinowe znajdują się w przedniej części klatki piersiowej i łączą się z głową poprzez przewód ślinowy. Wywieranie stałego nacisku na klatkę piersiową zapobiega przerwaniu przewodu ślinowego i pozwala na oddzielenie gruczołów ślinowych w całości wraz z głową od klatki piersiowej. Kontrola siły nacisku na tym etapie wymaga wielokrotnych ćwiczeń. - Oddziel ślinianki od głowy. Przepłucz je dwukrotnie w centralnej kropli PBS, a następnie przenieś do przygotowanej probówki do rozcierania.
UWAGA: Gruczoły ślinowe mają wielkość około 1 mm. Przenieść je do probówki do homogenizacji zawierającej 200 µL roztwór do konserwacji RNA i obserwować pod białym źródłem światła, aby potwierdzić obecność małych białych drobinek unoszących się w roztworze.
6. Izolacja RNA z Ae. albopictus oraz z jego gruczołów ślinowych, jajników i jelita środkowego
UWAGA: Wszystkie etapy ekstrakcji RNA zostały przeprowadzone zgodnie z instrukcjami producenta komercyjnego zestawu do ekstrakcji RNA z tkanek, bez żadnych modyfikacji.
- Wstępnie schłodzić homogenizator do 4 °C. Ustawić parametry na 30 Hz, czas mielenia 30 s, 10 cykli oraz czas przerwy 8 s.
- Umieścić probówki do mielenia zawierające próbki tkanek w homogenizatorze i uruchomić program.
UWAGA: Po mieleniu sprawdzić, czy tkanka jest całkowicie rozproszona w roztworze do stabilizacji RNA. Jeśli mielenie jest niepełne, przeprowadzić dodatkowe 5 cykli. - Przenieść homogenat do sterylnej probówki wirówkowej o pojemności 1.5 mL. Wirować przy 12,000 x g w temperaturze 4 °C przez 5 min.
- Przenieść nadsącz do nowej sterylnej probówki wirówkowej o pojemności 1.5 mL. Dodać 30 µL chloroformu.
OSTROŻNIE: Chloroform jest toksyczny i rakotwórczy. Należy używać rękawiczek oraz okularów ochronnych i pracować pod dygestorium. - Intensywnie mieszać na wirówce typu vortex przez 20 s. Inkubować w temperaturze pokojowej przez 15 min, a następnie wirować przy 12,000 x g w temperaturze 4 °C przez 15 min.
UWAGA: Ostrożnie odessać górną fazę wodną, unikając białej warstwy środkowej, aby zapobiec kontaminacji białkami. - Przenieść górną fazę wodną do nowej sterylnej probówki wirówkowej o pojemności 1.5 mL. Dodać 75 µL izopropanolu.
- Wymieszać metodą odwracania probówki i przenieść całą mieszaninę do kolumny spinowej z krzemionką. Wirować przy 12,000 x g przez 1 min.
- Dodać 600 µL buforu do płukania do kolumny. Wirować przy 12,000 x g przez 30 s. Odrzucić filtrat.
- Dodać 600 µL 80% etanolu do kolumny. Wirować przy 12,000 x g przez 30 s. Odrzucić filtrat. Powtórzyć ten etap płukania raz, tak aby łącznie przeprowadzić dwa płukania.
- Dodać 30 µL wody z DEPC na środek membrany kolumny. Inkubować w temperaturze pokojowej przez 1 min.
- Umieścić kolumnę w sterylnej probówce wirówkowej o pojemności 1.5 mL. Wirować przy 12,000 x g przez 1 min w celu elucji RNA.
- Pobrać 1 µL eluirowanego RNA i zmierzyć stężenie oraz czystość za pomocą mikroobjętościowego spektrofotometru.
7. Odwrotna transkrypcja RNA
- Przygotowanie układu reakcyjnego
- Rozmrozić na lodzie 4x master mix do odwrotnej transkrypcji, wodę wolną od nukleaz oraz matrycę RNA.
- W probówce PCR o pojemności 200 µL przygotować 20 µL układu reakcyjnego, dodając 5 µL 4x master mix do odwrotnej transkrypcji, 10 µL całkowitego RNA matrycowego oraz 5 µL wody wolnej od nukleaz.
- Krótko wirować przy 1,000 x g przez 1 min, aby zebrać mieszaninę reakcyjną na dnie probówki.
- Umieścić probówkę PCR w termocyklerze i uruchomić program odwrotnej transkrypcji: 50 °C przez 5 min; 85 °C przez 5 s.
UWAGA: Przed użyciem rozcieńczyć produkt odwrotnej transkrypcji 20-krotnie, aby zmniejszyć wpływ potencjalnych inhibitorów na RT-qPCR.
8. Ilościowa PCR w czasie rzeczywistym (RT-qPCR)
- Przygotowanie układu reakcyjnego RT-qPCR
- rozmrozić 2x SYBR Green qPCR master mix, matrycę cDNA oraz startery forward i reverse o stężeniu 10 µM na lodzie, przez cały czas chroniąc je przed światłem.
- W 96-dołkowej płytce PCR przygotować układ reakcyjny o objętości 20 µL na dołek, dodając 10 µL 2x SYBR Green qPCR master mix, po 0,8 µL starterów forward i reverse o stężeniu 10 µM (stężenie końcowe 400 nM), 2 µL 20-krotnie rozcieńczonej matrycy cDNA oraz 6,4 µL wody wolnej od nukleaz.
- Uszczelnić 96-dołkową płytkę optyczną folią klejącą, upewniając się, że wszystkie dołki są całkowicie zamknięte.
- Wirować przy 1 000 x g przez 1 min, aby zebrać mieszaninę reakcyjną na dnie dołków.
- Umieścić płytkę PCR w systemie detekcji PCR w czasie rzeczywistym i uruchomić program cykli termicznych.
UWAGA: Program cykli termicznych: przeddenaturacja w 95 °C przez 30 s (1 cykl); amplifikacja: 95 °C przez 30 s, 60 °C przez 30 s (40 cykli); analiza krzywej topnienia: 95 °C przez 15 s, 60 °C przez 1 min, wzrost temperatury do 95 °C w tempie 0,15 °C/s. Każda próbka RNA z tkanek jest poddawana qPCR w czterech technicznych powtórzeniach. Każda próbka tkanki składa się z połączonych tkanek od 5 osobników Ae. albopictus. Sekwencje starterów użytych do RT-qPCR wymieniono w Tabeli 1.
- Analiza danych
- Sprawdzić krzywą topnienia dla każdej pary starterów, aby potwierdzić obecność pojedynczego, dobrze zdefiniowanego piku dysocjacji.
- Wyeksportować wartości Ct z oprogramowania urządzenia. Wykreślanie i analiza danych są wykonywane przy użyciu oprogramowania statystycznego i graficznego.
| Nazwy starterów | Sekwencje starterów (5'-3') |
| Ae. albopictus βstarter forward do $\beta$-aktyny | GGAGAAGATCTGGCATCACA |
| Ae. albopictus βodwrócony starter do $\beta$-aktyny | TGTCATCTTCTCGCGGTTAG |
| *Ae. albopictus* starter forward GAPDH | CTGCCAAGGCTGTCGGTAA |
| Ae. albopictus Starter odwrotny GAPDH | TCATAGGAGGCAGGCTTGGA |
| Ae. albopictus Starter forward RPS6 | ACAAGCTGCGTCACTTCTACGACA |
| Ae. albopictus starter odwrotny RPS6 | CTTGTCGTTTCCACCGGCAATCTT |
Tabela 1: Sekwencje starterów dla Ae. albopictus użyte w RT-qPCR.
Wyniki
Niniejsze badanie składa się z dwóch części: sekcji Ae. albopictus oraz ekstrakcji RNA z tkanek po sekcji. Cały przebieg procesu przedstawiono na Rysunku 1, gdzie Rysunek 1A ilustruje sekcję Ae. albopictus, a Rysunek 1B przedstawia ekstrakcję RNA i późniejsze oznaczanie poziomów ekspresji genów referencyjnych.
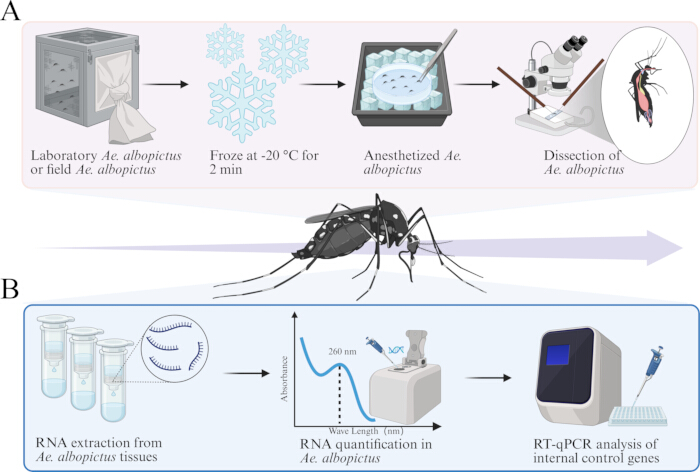
Rysunek 1: Schemat sekcji Ae. albopictus oraz ekstrakcji całkowitego RNA z tkanek po sekcji. (A) Zbieranie, znieczulenie i sekcja Ae. albopictus. (B) Ekstrakcja RNA z tkanek po sekcji, ocena czystości oraz oznaczenie poziomów ekspresji genów referencyjnych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Pięć osobników Ae. albopictus hodowanych laboratoryjnie poddano sekcji w celu wyizolowania jelita środkowego, gruczołów ślinowych oraz jajników. Przy powiększeniu 80× przezroczyste jelito przednie, jelito środkowe i jelito tylne Ae. albopictus były wyraźnie widoczne, z ziarnistymi jajnikami rozmieszczonymi po obu stronach i przykrytymi białymi cewkami Malpighiego (Ryc. 2A). Po zmianie powiększenia na 400× półprzezroczyste gruczoły ślinowe Ae. albopictus stały się wyraźnie widoczne (Ryc. 2B). Rysunek 2C,D przedstawia wyizolowane tkanki jelita środkowego i jajników. Wyniki wskazały, że tkanki wyizolowane tą metodą sekcji zachowały swoją integralność strukturalną, co jest niezbędne do późniejszej ekstrakcji całkowitego RNA z preparatów po sekcji.
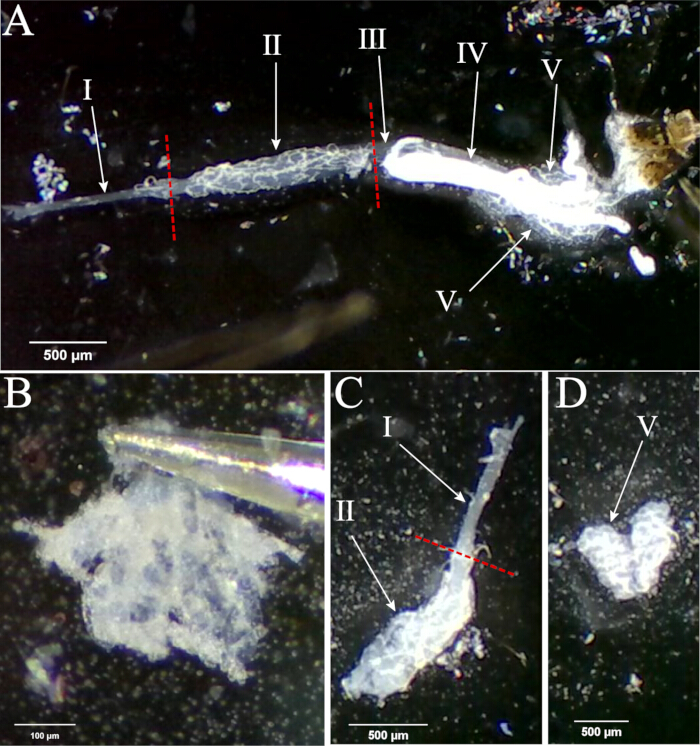
Rycina 2: Analiza tkanek Ae. albopictus po sekcji. (A) Izolacja tkanek z odwłoka Ae. albopictus. (B) Przezroczyste, trylobowe gruczoły ślinowe Ae. albopictus. (C) Przedjelito i jelito środkowe Ae. albopictus. (D) Parzyste jajniki Ae. albopictus w kształcie ziaren ryżu. I: przedjelito; II: jelito środkowe; III: jelito tylne; IV: cewki Malpighiego; V: jajniki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Całkowite RNA wyekstrahowano z wypreparowanych tkanek Ae. albopictus. Próbki tkanek (gruczoły ślinowe, jelito środkowe i jajniki) przed ekstrakcją całkowicie rozcierano. Stężenia RNA różniły się w zależności od rodzaju tkanki: w gruczołach ślinowych wynosiły one 7,8 ng/µL, natomiast w jelicie środkowym, jajnikach i homogenatach całych ciał samic Ae. albopictus odpowiednio 55,3, 45,7 i 42,7 ng/µL. Wszystkie próbki wykazały wysoką czystość, z wartościami stosunku A260/A280 w zakresie 1,87–2,10 oraz stosunku A260/A230 w zakresie 1,73–2,13 (Tabela 2). Poziomy ekspresji trzech kandydujących genów referencyjnych (GAPDH, β-actin oraz RPS6) oceniono za pomocą RT-qPCR we wszystkich tkankach. Chociaż ich ekspresja nieco różniła się w zależności od stężenia RNA, wszystkie trzy geny pozostały stosunkowo stabilne w różnych typach tkanek (Rycina 3). GAPDH, β-actin oraz RPS6 nadają się jako stabilne geny referencyjne do normalizacji ekspresji genów w różnych tkankach Ae. albopictus.
| Tkanka | Liczba próbek | Konc. RNA (ng/μL) | A260/A280 | A260/A230 |
| Gruczoł ślinowy | 5 | 7.8 | 1.87 | 1.73 |
| Jelito środkowe | 5 | 55.3 | 1.94 | 1.98 |
| Jajnik | 5 | 45.7 | 2.10 | 2.13 |
| Samica | 1 | 42.7 | 2.04 | 1.92 |
Tabela 2: Stężenie i czystość RNA wyekstrahowanego z tkanki Ae. albopictus.
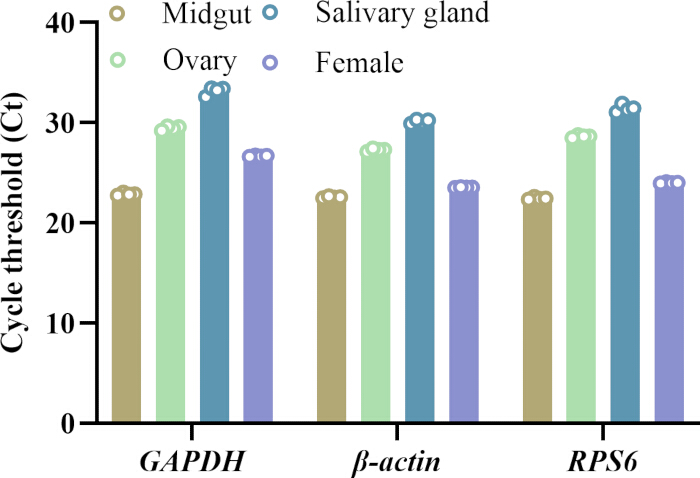
Rysunek 3: Wartości Ct genów referencyjnych (GAPDH, β-actin oraz RPS6) wykrytych za pomocą RT-qPCR. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Ae. albopictus występuje powszechnie w regionach umiarkowanych, subtropikalnych i tropikalnych na wszystkich kontynentach z wyjątkiem Antarktydy13,14. Jako istotny wektor arbowirusów, takich jak wirus dengue (DENV), wirus Zika (ZIKV) i wirus chikungunya (CHIKV), wielokrotnie wywoływał epidemie chorób przenoszonych przez komary w prowincji Guangdong w Chinach15.
Aby wspomóc badania nad wirusami związanymi z Ae. albopictus oraz ich transmisją, opracowaliśmy prostą metodę sekcji tkanek Ae. albopictus. W konwencjonalnych protokołach sekcji, podczas oddzielania głowy od klatki piersiowej w trakcie izolacji gruczołów ślinowych, gruczoły te mogą pozostać przytwierdzone albo do klatki piersiowej, albo do głowy, w zależności od zastosowanej siły; ponieważ gruczoły ślinowe mają wielkość zaledwie około 1 mm, ich lokalizacja w obrębie klatki piersiowej staje się trudna16. Niniejsza metoda opiera się na standardowych protokołach izolacji organów komarów i optymalizuje separację gruczołów ślinowych znajdujących się pod sternitami prosternalnymi i mezosternalnymi, co powinno być obserwowane przy powiększeniu 400×17. Aby przeprowadzić sekcję, należy delikatnie nacisnąć mezotoraks jedną igłą, jednocześnie używając drugiej do wywarcia nacisku oddzielającego głowę, co pozwala na nienaruszone oddzielenie się gruczołów ślinowych. Takie podejście eliminuje konieczność poszukiwania gruczołów ślinowych w klatce piersiowej, zapobiega zanieczyszczeniu i uszkodzeniu gruczołów oraz skraca całkowity czas sekcji. Jajniki znajdują się w pobliżu segmentów brzusznych VI–VIII i są zachowane dzięki rozpoczęciu sekcji od szóstego segmentu brzusznego oraz ostrożnemu wyjęciu jelita środkowego, cewek Malpighiego i jajników z odwłoka18. Metoda ta pozwala uzyskać nienaruszone gruczoły ślinowe, typowy kształt jajników bez zrostów oraz nieprzerwane jelito środkowe (Ryc. 2). Ta technika sekcji stanowi cenną wskazówkę dla badań nad Ae. albopictus oraz replikacją, rozpowszechnianiem i transmisją wirusów przenoszonych przez wektory.
Ekstrakcja RNA z tkanek Ae. albopictus jest kluczowa dla wykrywania wirusów przenoszonych przez komary. Konwencjonalna metoda TRIzol jest czasochłonna i wymagająca technicznie, ale zazwyczaj zapewnia wysoką wydajność RNA i może dostarczyć RNA wysokiej jakości, jeśli zostanie przeprowadzona prawidłowo. W przeciwieństwie do niej, metoda kolumnowa oferuje lepszą powtarzalność i jest łatwiejsza w wykonaniu, lecz może skutkować niższym odzyskiem RNA i wykazuje niską wydajność w przypadku ciał tłuszczowych19,20. W niniejszym badaniu wypreparowane tkanki zostały niezwłocznie zabezpieczone w stabilizatorze kwasów nukleinowych, dokładnie rozcierane i przetwarzane metodą kolumn spinowych w celu ekstrakcji RNA do syntezy cDNA21. Aby zapewnić dokładną normalizację danych RT-qPCR w obliczu różnic w jakości cDNA, niezbędne są stabilne geny referencyjne22. Chociaż geny referencyjne zostały określone dla różnych stadiów rozwojowych Ae. albopictus, geny referencyjne specyficzne dla tkanek wymagają dalszej walidacji23,24. Analiza RT-qPCR odwrotnie transkrybowanego RNA ze wszystkich wypreparowanych tkanek wykazała spójną amplifikację GAPDH, β-actin oraz RPS6, co potwierdza, że jakość RNA uzyskana dzięki temu protokołowi preparatyki tkanek jest wystarczająca do prowadzenia dalszych badań nad tkankowo specyficzną ekspresją genów u Ae. albopictus.
Podczas sekcji tkanek Ae. albopictus zgodnie z tym protokołem może sporadycznie dojść do sytuacji, w której gruczoły ślinowe nie oddzielą się wraz z głową. Zazwyczaj wynika to z niewystarczającego nacisku wywartego na klatkę piersiową w połączeniu ze zbyt szybkim oddzieleniem głowy. Aby rozwiązać ten problem, należy wywrzeć jednostajny nacisk na mezotoraks i powoli wyciągnąć głowę na zewnątrz, umożliwiając nienaruszone oddzielenie się gruczołów ślinowych wraz z głową. Podczas przenoszenia gruczołów ślinowych do probówki do homogenizacji zawierającej roztwór do konserwacji RNA, należy uważnie obejrzeć roztwór pod źródłem światła w poszukiwaniu małych, pływających białych drobinek. Jeśli gruczołów ślinowych nie można zlokalizować w probówce, należy natychmiast sprawdzić, czy nie pozostały one przyczepione do igły sekcyjnej. Podczas ekstrakcji RNA należy ściśle przestrzegać protokołu producenta zestawu. Jeśli uzyskane stężenie RNA jest niskie, można przeprowadzić drugą elucję przy użyciu buforu do elucji. W badaniu RT-qPCR w krzywej topnienia mogą wystąpić liczne piki; w takim przypadku należy w pierwszej kolejności zweryfikować specyficzność starterów. Jeśli wartości Ct są wysokie, należy dostosować temperaturę przyłączania w programie do temperatury topnienia starterów. Generalnie temperatura przyłączania w programie powinna być ustawiona o 1–2 °C poniżej temperatury topnienia starterów25.
Niniejsze badanie posiada pewne ograniczenia. Zakres próbek jest stosunkowo wąski, ponieważ skupiono się jedynie na jelicie środkowym, gruczołach ślinowych i tkankach jajników, bez badania innych tkanek, takich jak cewki Malpighiego i ciało tłuszczowe26. Ponadto analiza była ograniczona do 3-dniowych samic komarów hodowanych laboratoryjnie, z wyłączeniem osobników po pobraniu krwi oraz zainfekowanych wirusem27. Przyszłe ulepszenia powinny obejmować rozszerzenie zakresu próbek o tkanki takie jak cewki Malpighiego oraz uwzględnienie osobników Ae. albopictus w różnych stanach fizjologicznych.
Podsumowując, wypreparowanie jelita środkowego, jajników i gruczołów ślinowych z Ae. albopictus, a następnie ekstrakcja całkowitego RNA, stanowią podstawę techniczną dla późniejszych ocen kompetencji wektora oraz badań nad transmisją arbowirusów.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| pipeta Pasteura 3 ml, ekstra długa | WHB | WHB-S4 | 3 ml |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme | Q711-02 | 500 reakcji |
| zestaw HiScript IV All-in-One Ultra RT SuperMix for qPCR | Vazyme | R433-01 | 100 reakcji |
| Zestaw do mikroekstrakcji całkowitego RNA | Technologie medyczne | MDT-CFR07 | 100 szt./opak. |
| Mikropipety 0,5-10μL | Eppendorf | 4043444 | |
| Lamelki do mikroskopu | CITOTEST | 80302-2104 | 75 mm×25 mm |
| Mikrospektrofotometr | KAIAO | K5600C | |
| Bufor do ekstrakcji kwasów nukleinowych | Technologie medyczne | MDT-TP01 | 100 ml |
| PBS fosforanowy bufor solny (sterylny) | Servicebio | G4202 | 500 ml |
| Termocykler do PCR | Eppendorf | Mastercycler X50s | |
| System do Real-Time PCR QuantStudioTM 7 Pro | Applied Biosystems | EN61326-1 | |
| Zestaw mikroskopu laboratoryjnego Stemi 305 | ZEISS | 435063-9010-000 |
Bibliografia
- Hafsia S et al. Vector competence of Aedes albopictus and Aedes aegypti from the islands of the Southwestern Indian Ocean for epidemic Zika, dengue, and chikungunya viruses. Parasit Vectors. 2025;19(1):34.
- Zhang W, Wang J, Liu Q, Gong Z. A review of pathogens transmitted by the container-inhabiting mosquitoes, Aedes albopictus, a global public health threat. China CDC Wkly. 2023;5(44):984-990.
- Kraemer MUG et al. Past and future spread of the arbovirus vectors Aedes aegypti and Aedes albopictus. Nat Microbiol. 2019;4(5):854-863.
- Zhang M et al. Epidemiological characteristics and transmission dynamics of the early stage Chikungunya fever outbreak in Foshan City, Guangdong Province, China in 2025. Infect Dis Poverty. 2025;14(1):93.
- Meyer AD, Guerrero SM, Dean NE, Anderson KB, Stoddard ST, Perkins TA. Predictability of infectious disease outbreak severity: Chikungunya as a case study. Sci Adv. 2025;11(40):eadt5419.
- Wu Y et al. The making of a dangerous vector: factors shaping the vector competence of Aedes mosquitoes. Front Cell Infect Microbiol. 2025;15:1718737.
- Zhu C et al. Transcriptome analysis of Aedes aegypti midgut and salivary gland post-Zika virus infection. Curr Res Parasitol Vector Borne Dis. 2025;7:100251.
- Liu X, Yang S, Yao Y, Wu S, Wu P, Zhai Z. Opsin1 regulates light-evoked avoidance behavior in Aedes albopictus. BMC Biol. 2022;20(1):110.
- Zhang Y et al. Rapid differential detection of Japanese encephalitis virus and Getah virus in pigs or mosquitos by a duplex TaqMan real-time RT-PCR assay. Front Vet Sci. 2022;9:839443.
- Coleman J, Juhn J, James AA. Dissection of midgut and salivary glands from Ae. aegypti mosquitoes. J Vis Exp. 2007;4(5):228.
- Tesena P, Korchunjit W, Taylor J, Wongtawan T. Comparison of commercial RNA extraction kits and qPCR master mixes for studying gene expression in small biopsy tissue samples from the equine gastric epithelium. J Equine Sci. 2017;28(4):135-141.
- Ramdini C et al. First report of Aedes albopictus in Saint Barthélemy (French West Indies) confirmed by morphological, molecular and MALDI-TOF mass spectrometry approaches. Parasit Vectors. 2025;18(1):258.
- Battaglia V et al. The worldwide spread of Aedes albopictus: new insights from mitogenomes. Front Genet. 2022;13:931163.
- Laporta GZ, Potter AM, Oliveira JFA, Bourke BP, Pecor DB, Linton YM. Global distribution of Aedes aegypti and Aedes albopictus in a climate change scenario of regional rivalry. Insects. 2023;14(1):49.
- Yip SSW, Charm CYC, Ng KS, Lam SC. Chikungunya fever: a re-emerging mosquito-borne threat demanding proactive prevention strategies in Asia. Front Public Health. 2026;14:1745145.
- Tutagata J, Pocquet N, Trouche B, Reveillaud J. Dissection of mosquito ovaries, midgut, and salivary glands for microbiome analyses at the organ level. J Vis Exp. 2024;(212):67128.
- Schmid MA, Kauffman E, Payne A, Harris E, Kramer LD. Preparation of mosquito salivary gland extract and intradermal inoculation of mice. Bio Protoc. 2017;7(14):e2407.
- Airs PM, Nazarchyk MJ, Tucker BJ, Bartholomay LC. Characterizing oogenesis and programmed cell death in the eastern tree hole mosquito Aedes (Protomacleaya) triseriatus. Front Insect Sci. 2022;2:1073308.
- Chomczynski P, Sacchi N. The single-step method of RNA isolation by acid guanidinium thiocyanate-phenol-chloroform extraction: twenty-something years on. Nat Protoc. 2006;1(2):581-585.
- De Azevedo N, Lozano A, Parsons RE, Martin TC. Optimized protocols to extract total transcripts and proteins from lipid-rich tissues. Methods Protoc. 2026;9(2):65.
- García-Longoria L, Ahrén D, Berthomieu A, Kalbskopf V, Rivero A, Hellgren O. Immune gene expression in the mosquito vector Culex quinquefasciatus during an avian malaria infection. Mol Ecol. 2023;32(4):904-919.
- Lü J, Yang C, Zhang Y, Pan H. Selection of reference genes for the normalization of RT-qPCR data in gene expression studies in insects: a systematic review. Front Physiol. 2018;9:1560.
- Dzaki N, Azzam G. Assessment of Aedes albopictus reference genes for quantitative PCR at different stages of development. PLoS One. 2018;13(3):e0194664.
- Vedururu RK et al. RNASeq analysis of Aedes albopictus mosquito midguts after chikungunya virus infection. Viruses. 2019;11(6):513.
- Bustin SA et al. MIQE 2.0: revision of the Minimum Information for Publication of Quantitative Real-Time PCR Experiments guidelines. Clin Chem. 2025;71(6):634-651.
- Skowronek P, Wójcik Ł, Strachecka A. Fat body-multifunctional insect tissue. Insects. 2021;12(6):547.
- Goldman OV et al. A single-nucleus transcriptomic atlas of the adult Aedes aegypti mosquito. Cell. 2025;188(25):7267-90.e26.
Przedruki i uprawnienia
