Este vídeo demonstra a geração de vírus da raiva recombinantes utilizando lipossomos para entregar plasmídeos que codificam o antígenoma viral e proteínas auxiliares essenciais em células produtoras. O RNA transcrito e replicado leva à formação de partículas virais que expressam proteínas imunoestimuladoras e proteínas repórter fluorescentes. A microscopia de fluorescência é então utilizada para visualizar a formação de sincícia, confirmando a produção bem-sucedida do vírus recombinante.
Artigo de método
Geração de um Vírus do Sarampo Recombinante Codificador de Proteína Imunoestimuladora
22 visualizações
⸱
30 de setembro de 2026
Neste artigo
Resumo
Protocolo
NOTA: [O], [P] e [M] indicam subseções aplicáveis a: vírus oncolíticos (VOs) em geral, (a maioria dos) paramixovírus ou ao vírus do sarampo (VS), respectivamente. [B] indica seções específicas para transgenes de ligantes biespecíficos de células T (LBCT).
1 Clonagem de Transgenes que Codificam Imunomoduladores em Vetores de Vírus da Raiva
- [O] Projetar a sequência do inserto.
- [O] Escolha um imunomodulador de interesse com base em pesquisa bibliográfica ou em dados exploratórios, como telas genéticas, e obtenha a sequência de DNA complementar (cDNA) relevante a partir de bancos de dados apropriados, como GenBank, European Nucleotide Archive ou sistema internacional de informações ImMunoGeneTics (IMGT).
- [O] Adicione características adicionais à sequência do transgene (Figura 1). Uma sequência de Kozak precedente e a otimização de códons específica da espécie podem aumentar a expressão. Sequências sinal são necessárias para a secreção. Inclua sequências que codifiquem marcadores proteicos N- e/ou C-terminais para detecção e purificação. Inclua sítios de restrição para inserção no vetor.
NOTA: [M] Unidades de transcrição adicionais (ATUs) que contenham os sinais de início e término do gene da polimerase do MV são necessárias para a expressão do transgene a partir de genomas recombinantes de MV. Vetores de cDNA anti-genômicos adequados, controlados por promotores do citomegalovírus (CMV) e contendo ATUs com sítios de restrição únicos para introdução de transgenes de sentido positivo em posições definidas, já foram desenvolvidos anteriormente. [P] O posicionamento adequado do transgene é crucial, pois afeta a replicação viral e a expressão do transgene devido ao gradiente de expressão típico dos paramixovírus. A introdução em uma ATU próxima à extremidade 3' do anti-genoma (isto é, na posição líder ou a jusante do gene P) geralmente resulta em alta expressão do transgene, com o custo de uma replicação viral reduzida. Pode-se esperar maior replicação e níveis mais baixos de expressão do transgene ao utilizar a ATU a jusante do gene H. O empacotamento do genoma de vários paramixovírus, incluindo o vírus do sarampo, requer a ligação de seis nucleotídeos por cada proteína do nucleocapsídeo. Para inserção de transgenes nesses vírus, certifique-se de que o número total de nucleotídeos do genoma completo seja divisível por seis. Isso é conhecido como "regra dos seis". Se necessário, inclua nucleotídeos adicionais no inserto (a montante da sequência de Kozak ou a jusante do códon de parada), sem introduzir quadros de leitura incorretos ou códons de parada prematuros. [M] Evite sequências específicas no transgene que sejam semelhantes aos sinais de início (AGGRNCMARGW) e término (RTTAWANAAAA) do gene do MV e sequências de edição de RNA (AAAAAGGG). - [O] Adquira oligonucleotídeos com a sequência desejada ou monte-os a partir de sequências disponíveis utilizando técnicas padrão de clonagem molecular.
NOTA: [O] Para amplificação por reação em cadeia da polimerase (PCR) do transgene, projete uma ponta direta contendo o sítio de restrição a montante e os primeiros 15-20 nucleotídeos do inserto, e uma ponta reversa contendo os últimos 15-20 nucleotídeos do inserto seguidos pelo sítio de restrição a jusante.
- [O] Clonar o inserto no DNA que codifica o (anti-)genoma viral.
- [O] Clone o inserto em vetores de DNA ou anti-genomas de vírus de RNA utilizando técnicas padrão de clonagem molecular (isto é, restrição enzimática seguida de ligação de DNA).
- [O] Evite a religação do vetor utilizando sítios de restrição incompatíveis ou realizando desfosforilação antes da ligação.
- [O] Isole o produto da ligação por eletroforese em gel de agarose e subsequente purificação do gel utilizando kits comercialmente disponíveis. Em geral, a eficiência ideal de ligação é alcançada numa razão molar de 3:1 (inserto:veter).
- [O] Transforme o produto da ligação em bactérias competentes adequadas para recuperação eficiente de plasmídeos grandes (isto é, realize choque térmico em E. coli) e identifique clones bacterianos que contenham o DNA correto por meio de PCR de colônia.
- [O] Isole o DNA amplificado de um único clone bacteriano utilizando kits comerciais de preparação de DNA. Confirme a integridade genômica por digestão controle com enzimas de restrição apropriadas (por exemplo, HindIII para genomas de MV [M]). Confirme a inserção correta e a integridade do transgene por sequenciamento.
NOTA: [M] Para transgenes inseridos na ATU H do MV, realize sequenciamento Sanger com os seguintes iniciadores: H-9018 [iniciador direto, liga-se à posição 9018 do genoma do MV na região codificadora aberta (ORF) H]: 5' GTGTGCTTGCGGACTCAGAATC 3'; L-9249+ (iniciador reverso, liga-se à posição 9249 do genoma do MV na ORF L): 5' CAGATAGCGAGTCCATAACGG 3'.
- [O] Clone o inserto em vetores de DNA ou anti-genomas de vírus de RNA utilizando técnicas padrão de clonagem molecular (isto é, restrição enzimática seguida de ligação de DNA).
2. Recuperação de Partículas de Vírus da Raiva Recombinantes que Codificam Imunomoduladores
- [O] Gere partículas de vírus recombinantes a partir de DNA (anti-)genômico por meio da transfeção de células produtoras de vírus conforme o protocolo padrão para o respectivo vírus. Siga as orientações para trabalhar em condições estéreis. Realize o cultivo celular em capelas, em especial todos os passos envolvendo vírus em gabinetes de segurança biológica classe II.
- [M] Para o resgate de vírus da raiva a partir de cDNA, plaque células produtoras de MV (células renais de macaco verde-africano derivadas de Vero) uniformemente em uma placa de 6 poços 24 h antes da transfeção. Semee 2 x 10⁵ células em 2 mL de meio de Eagle modificado por Dulbecco (DMEM) contendo 10% de soro bovino fetal (FBS) por poço para alcançar 65–75% de confluência no momento da transfeção.
NOTA: [P] Reduza o número de células se elas apresentarem crescimento excessivo antes da formação de sincícia induzida pelo vírus. - [P] Transfete as células com DNA que codifica o antigenoma viral, plasmídeos auxiliares necessários e, se desejado, um plasmídeo que codifica uma proteína repórter fluorescente para avaliar a eficiência de transfeção.
- [M] Misture 5 µg de DNA recombinante que codifica o antigenoma do vírus da raiva, 500 ng de cada plasmídeo de expressão mamífera que codifica as proteínas N e L do vírus da raiva e 100 ng de cada plasmídeo que codifica a proteína P em um volume total de 200 µL de DMEM. Se desejado para avaliar a eficiência de transfeção (e se ainda não estiver presente na construção do antigenoma viral), inclua 100 ng de um plasmídeo repórter fluorescente.
- Adicione 18,6 µL de reagente lipossomal de transfeção, misture imediatamente batendo levemente no tubo e incube por 25 min à temperatura ambiente (RT).
- [P] Substitua o meio por 1,8 mL de DMEM, 2% FBS, 50 µg/mL de canamicina (ou outro antibiótico para prevenir contaminação) por poço, depois adicione a mistura de transfeção gota a gota no poço e agite suavemente. Incube as células durante a noite a 37 °C, 5% CO2. Substitua o meio por 2 mL de DMEM fresco, 2% FBS e 50 µg/mL de canamicina no dia seguinte; repita isso quando o meio ficar ácido.
ATENÇÃO: [O] Manipule células e materiais conforme as regulamentações de biossegurança, pois o vírus pode estar presente desde a transfeção até as etapas seguintes. Descarte adequadamente os resíduos (potencialmente) infecciosos.
- [M] Para o resgate de vírus da raiva a partir de cDNA, plaque células produtoras de MV (células renais de macaco verde-africano derivadas de Vero) uniformemente em uma placa de 6 poços 24 h antes da transfeção. Semee 2 x 10⁵ células em 2 mL de meio de Eagle modificado por Dulbecco (DMEM) contendo 10% de soro bovino fetal (FBS) por poço para alcançar 65–75% de confluência no momento da transfeção.
Resultados
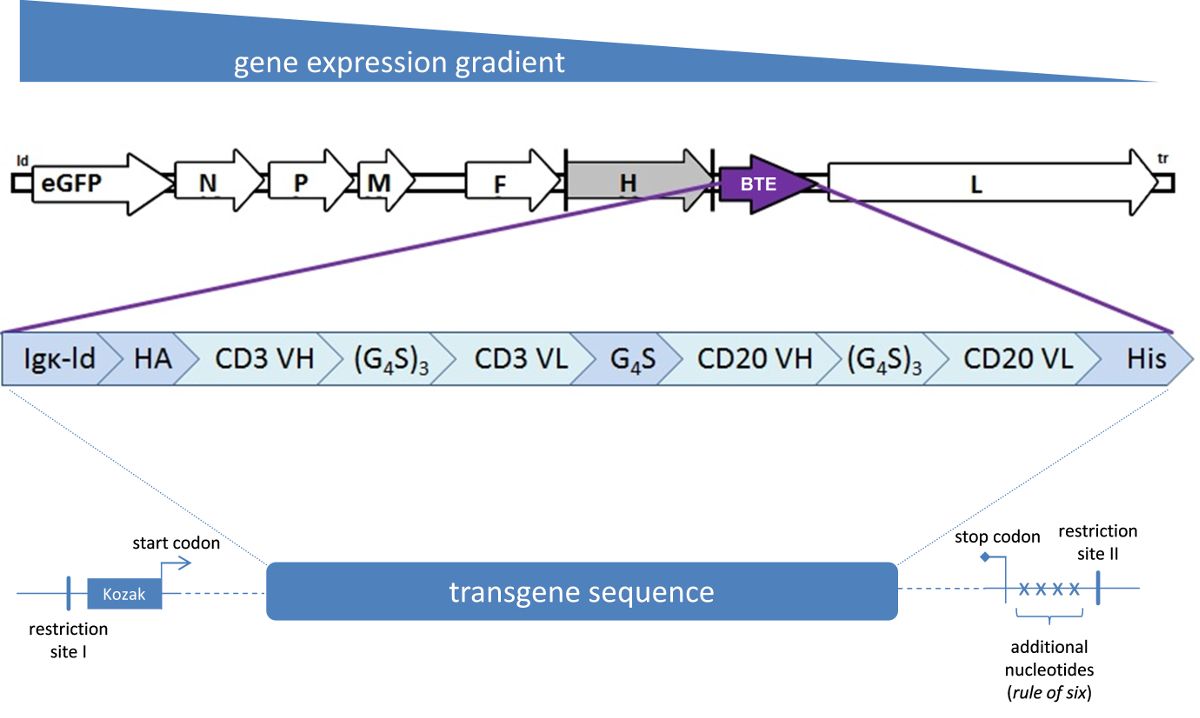
Figura 1: Representação esquemática do genoma de um vírus do sarampo. A proteína verde fluorescente melhorada (eGFP) é codificada em uma unidade de transcrição adicional a jusante da sequência líder (ld). N, P, M, F, H e L designam genes que codificam as proteínas estruturais do vírus do sarampo — nucleoproteína, proteína P, proteína matriz, proteína de fusão, proteína hemaglutinina e proteína grande (polimerase), respectivamente —, cuja expressão diferencial é visualizada acima. Um transgene de engajador biespecífico de células T (BTE) é inserido em uma unidade de transcrição adicional (ATU) a jusante da leitura aberta de H. O transgene codifica um peptídeo líder de imunoglobulina kappa (Igκ) para secreção eficiente, bem como marcadores proteicos de hemaglutinina da influenza (HA) e hexa-histidina (His) para detecção e purificação. Genes que codificam domínios variáveis da cadeia pesada (VH) e da cadeia leve (VL) de anticorpos direcionados contra CD3 e CD20, respectivamente, são conectados por meio de sequências de ligadores peptídicos contendo resíduos de glicina (G) e serina (S). A sequência do transgene é precedida por uma sequência de Kozak. A jusante da região codificadora, nucleotídeos adicionais foram incluídos como exemplo para cumprir a regra dos seis. O cassete de inserção é delimitado por dois sítios de restrição que permitem a inserção na ATU correspondente.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Kit de Desfosforilação e Ligação Rápida de DNA | Roche Life Science, Mannheim, Alemanha | 4898117001 | |
| Kit CloneJET de Clonagem PCR | Thermo Fisher Scientific, St. Leon-Rot | K1231 | |
| Agarose | Sigma-Aldrich, Taufkirchen, Alemanha | A9539-500G | |
| Kit QIAquick de Extração em Gel | QIAGEN, Hilden, Alemanha | 28704 | |
| E. coli Competente NEB 10-beta | New England Biolabs (NEB), Frankfurt/Main, Alemanha | C3019I | |
| Kit QIAquick Miniprep | QIAGEN, Hilden, Alemanha | 27104 | |
| Enzima de restrição HindIII-HF | New England Biolabs (NEB), Frankfurt/Main, Alemanha | R3104S | |
| Meio de Eagle Modificado por Dulbecco (DMEM) | Invitrogen, Darmstadt, Alemanha | 31966-021 | |
| Soro bovino fetal (FBS) | Biosera, Boussens, França | FB-1280/500 | |
| FugeneHD | Promega, Mannheim, Alemanha | E2311 | pode ser substituído por reagente de transfeção de escolha |
| Kanamicina | Sigma-Aldrich, Taufkirchen, Alemanha | K0129 | |
| Células Vero | ATCC, Manassas, VA, EUA | CCL81 | |
| Placas de 6 poços | Neolab, Heidelberg, Alemanha | 353046 |
