A pintura cromossômica é um método útil para estudar a organização do núcleo celular e a evolução do karyótipo. Aqui, demonstramos uma abordagem para isolar e amplificar regiões específicas de interesse de cromossomos de politenso único que são posteriormente usados para fluorescentes bi e tridimensionais em hibridização in situ (FISH).
Artigo de método
Pintura de cromossomo 2D e 3D em mosquitos da malária
Neste artigo
Resumo
Resumo
A hibridização fluorescente in situ (FISH) de sondas cromossômicas de braço inteiro é uma técnica robusta para mapear regiões genômicas de interesse, detectar rearranjos cromossômicos e estudar a organização tridimensional (3D) de cromossomos no núcleo celular. O advento da microdissecção de captura a laser (LCM) e da amplificação do genoma inteiro (WGA) permite obter grandes quantidades de DNA a partir de células únicas. O aumento da sensibilidade dos kits WGA nos levou a desenvolver tintas cromossômicas e usá-las para explorar a organização cromossômica e a evolução em organismos não-modelo. Aqui, apresentamos um método simples para isolar e amplificar os segmentos eucromáticos de braços cromossomos de politento único de células enfermeiras ovarianas do mosquito africano da malária Anopheles gambiae. Este procedimento fornece uma plataforma eficiente para a obtenção de tintas cromossômicas, ao mesmo tempo em que reduz o risco global de introdução de DNA estranho à amostra. O uso de WGA permite várias rodadas de re-amplificação, resultando em altas quantidades de DNA que podem ser utilizadas para múltiplos experimentos, incluindo 2D e 3D FISH. Demonstramos que as tintas cromossômicas desenvolvidas podem ser usadas com sucesso para estabelecer a correspondência entre porções eucromáticas de braços de politeno e cromossomo mitomático em An. gambiae. No geral, a união de LCM e WGA de cromossomo único fornece uma ferramenta eficiente para criar quantidades significativas de DNA alvo para futuros estudos citogenéticos e genômicos.
Introdução
A pintura cromossômica é uma técnica útil para estudar a evolução dos karyótipos 1-5 e para visualizar anormalidades citogenéticas por meio da hibridização do DNA cromossômico fluorescentemente rotulado 1,6-8. Este método também é aplicado ao estudo da dinâmica 3D dos territórios cromossomos no desenvolvimento 9 e patologia 10. As tintas cromossômicas rotuladas diferencialmente são utilizadas para a visualização de mitos individuais 11,12, meiotic 13,14, ou interfase não-politeno 15,16 e politeno 9,11,17 cromossomos. Um protocolo simples e robusto para obter tintas cromossômicas seria muito útil na expansão dessa técnica para organismos não modelo, como mosquitos. O complexo anopheles gambiae é um grupo de sete mosquitos morfologicamente indistinguíveis que variam de comportamento e adaptação, incluindo a capacidade de transmitir malária. Esses mosquitos servem como um excelente modelo para entender melhor a evolução de espécies intimamente relacionadas que diferem muito em sua capacidade vetorial. A maioria dos estudos citogenéticos em mosquitos da malária tem sido feita utilizando cromossomos altamente politenizados (revisados em 18,19). Os padrões legíveis de banda de cromossomos de politenso permitiram aos pesquisadores demonstrar a associação entre inversões polimórficas e adaptações ecológicas em Anopheles gambiae 20. Além disso, 21 características específicas do tecido e específicas das espécies 22 da organização do cromossomo de politenso 3D foram caracterizadas no complexo an. macullipennis. No entanto, estudar cromossomos mitos poderia fornecer informações importantes adicionais. Por exemplo, um nível mais alto de polimorfismo de heterocromatina observado em cromossomos mitóticos foi correlacionado com a redução da atividade de acasalamento e fertilidade em An. gambiae 23. A correspondência entre segmentos eucromáticos de braços de politeno e cromossomo mitotísticos pode ser difícil de estabelecer apenas comparando seus comprimentos relativos. Isso porque a heterocromatina compõe uma porção significativa de cromossomos mitóticos, mas é sub-representada nos cromossomos politenes 24. A disponibilidade de tintas cromossômicas para mosquitos da malária permitiria aos pesquisadores expandir significativamente os estudos citogenéticos, incluindo espécies adicionais, reduzindo substancialmente o custo e o tempo nas análises da evolução cariotípica e da dinâmica 3D de cromossomos neste grupo de insetos epidemiologicamente importantes.
A fim de obter grandes trechos de cromossomos, a microdissecção tornou-se uma técnica integral para manipular e isolar regiões específicas de interesse do complemento cromossômico. Quando juntamente com a amplificação completa do genoma (WGA), a microdisseção resulta em poderosas aplicações a jusante, incluindo o sequenciamento do genoma de 11,12 e de próxima geração 25-27. Anteriormente, a técnica exigia o uso de agulhas especializadas de microdisseção que tinham que ser controladas manualmente por um usuário experiente 28. O avanço da microdissecção de captura a laser (LCM) resultou em uma ferramenta simplificada mais adequada para isolar células únicas 29,30 ou cromossomos individuais 31-33 com um risco diminuído de contaminação. Essa abordagem permite que o usuário estude as heterogeneidades genéticas e anormalidades cromossômicas que ocorrem em células únicas, em vez de um cenário de consenso que resulta da junção de múltiplas células 34-36. Vários métodos foram usados para amplificar o DNA produzido a partir da microdisseção. O DOP-PCR, uma técnica útil para a amplificação de sequências altamente repetitivas, tem sido usado para amplificar cromossomos microdissectados de espécies como o gafanhoto 37,a enguia espinhosa 38e a tilápia do Nilo 39. Mais recentemente, o kit GenomePlex WGA4 Single Cell baseado em PCR e o kit de células únicas baseados em múltiplos deslocamentos (MDA) tornaram-se ferramentas valiosas para experimentos envolvendo análise genética de células humanas únicas, bem como cromossomos40-42, incluindo os sistemas de cromossomo B em gafanhotos 37 e gafanhotos 43. Esses dois kits têm vantagens e desvantagens, mas sua aparente superioridade acima de outros sistemas de amplificação disponíveis foi demonstrada 44.
A quantidade de DNA que pode ser obtida a partir de um único cromossomo ou um segmento cromossomo é significativamente menor do que a de um núcleo inteiro. Portanto, microdisseção, amplificação e análise subsequente de um único cromossomo são muito mais desafiadores, especialmente em organismos com genomas pequenos como em Drosophila ou Anopheles. Embora as tintas tenham sido desenvolvidas a partir de cromossomos microdissectados únicos de um humano 33 e uma vespa 45,um experimento de peixe bem sucedido exigiu cromossomos mitotísticos microdissectados múltiplos (pelo menos 10-15) microdissectados de uma mosca-das-frutas 11. No entanto, a capacidade de microdissistlar e amplificar um único cromossomo seria importante para (i) reduzir a chance de contaminação com material de um cromossomo diferente, (ii) minimizar o número de preparações cromossômicas necessárias para microdisseção, (iii) redução do nucleotídeo e polimorfismo estrutural da amostra microdissectada tanto em aplicações de PEM quanto de seque. Cromossomos de politenso encontrados em muitas espécies dipteranas oferecem uma oportunidade única de adquirir uma quantidade inicial muito maior de DNA. Eles também fornecem uma estrutura de resolução e cromossomos mais elevada que não pode ser alcançada através do uso de cromossomos mitóticos. Essa resolução adicional pode ser fundamental na visualização de rearranjos cromossômicos, estrutura cromatina e segmentos cromossômicos a serem microdissectados 28,46.
Aqui apresentamos um procedimento para isolar eficientemente um segmento eucromático de um único braço cromossomo de politeno, amplificar o DNA e usá-lo em aplicações de PEIXEs a jusante em mosquitos da malária. Primeiro, aplicamos LCM para isolar e extrair um único braço cromossomo de lâminas de membrana especialmente preparadas. Segundo, a WGA é usada para amplificar o DNA do material microdisstado. Em terceiro lugar, hibridizamos o DNA amplificado em experimentos de PEIXE para preparações de esmagamento de politenso 47, lâminas de cromossomo metafase e interfase 48,bem como amostras de montagem inteiras de ovário 3D. Este procedimento foi feito para pintar com sucesso a maioria da eucromatina em braços cromossômicos de An. gambiae.
Protocolo
1) Preparação de slides cromossômicos de politeno para microdissecção de captura a laser
- Disseque fêmeas anofeeles semi-gravid às 25 horas após a alimentação sanguínea. Fixar ovários de aproximadamente cinco fêmeas em 500 μl de solução de Carnoy modificada fresca (100% metanol: ácido acético glacial, 3:1) à temperatura ambiente por 24 horas. Transfira os ovários para -20 °C para um armazenamento a longo prazo.
- Prepare a solução de Carnoy (100% etanol: ácido acético glacial, 3:1) e 50% de ácido propínico pouco antes de fazer slides de cromossomo.
- Coloque um par de ovários em uma gota da solução de Carnoy em um slide de membrana PET Zeiss 1.0. Dependendo do tamanho, divida os ovários em aproximadamente 2-4 seções com agulhas dissecando e coloque-os em uma gota de 50% de ácido propínico em lâminas limpas sob um microscópio de dissecção.
- Separe os folículos e remova o tecido restante usando papel toalha sob um estereóscópio de dissecção. Adicione uma nova gota de 50% de ácido propiônico aos folículos e deixe-os sentar por 3-5 minutos à temperatura ambiente.
- Coloque uma mancha de cobertura siliconada em cima da gota. Deixe o slide ficar por aproximadamente 1 min.
- Cubra o slide com um material absorvente (o papel filtro é usado para este método), e ao usar o lado borracha de um lápis, aplique uma quantidade generosa de pressão ao deslizamento de tampa tocando nele repetidamente com a borracha.
- Aqueça o slide a 60 °C em um sistema de desnaturação/hibridização por 15-20 minutos para ajudar no achatamento dos cromossomos de politenso. Coloque slides em uma câmara úmida a 4 °C durante a noite para permitir que o ácido achate ainda mais os cromossomos.
- Coloque lâminas no frio 50% de etanol por 10 minutos. Retire suavemente a tampa e substitua no frio 50% de etanol por mais 10 minutos.
- Desidrata em 70%, 90%, 100% etanol por 5 min cada. Deslizamentos secos de ar.
- Prepare uma solução de solução tampão GURR adicionando um único tablet tampão a 1 L de água destilada. autoclave.
- Prepare a solução Giemsa adicionando 1 ml de solução de coloração Giemsa a 50 ml de tampão GURR.
- Coloque lâminas secas a ar na solução Giemsa por 10 minutos e lave três vezes em 1X PBS. As lâminas secas de ar novamente em um clima controlado estéril para evitar contaminação.
2) Microdisseção de captura a laser de um único braço cromossomo politeno
Esta seção detalha o uso do software PALMRobo, que vem com o sistema de microdisseção a laser PALM MicroBeam.
- Limpe o microscópio com 100% de etanol. Esterilize luvas e tubos com uma luz UV em um UV-crosslinker.
- Ligue o microscópio de microdisseção a laser PALM MicroBeam e ligue o laser. Abra a suíte de dissecção a laser, PALMRobo, e configure as configurações "Power" e "Focus" conforme necessário.
- Procure por braço cromossomo de politenso de interesse.
- Usando a ferramenta "Lápis", delineie a região selecionada.
- Abra a "janela Elementos" da barra de menu.
- Selecione o "elemento desenhado", certifique-se de que você selecionou "Cortar".
- Instale o tubo de tampa adesiva no suporte e coloque acima do slide, deixando uma pequena lacuna <1 mm de tamanho e inicie o corte a laser.
- Coloque a "seleção da catapulta" dentro do local do corte, deixando espaço entre a borda e o cromossomo.
- Selecione "LPC" na opção drop down e comece a catapultar.
- Verifique se a amostra foi catapultada para a tampa pressionando o ícone "Olho".
3) Purificação de DNA de um único braço cromossomo de politensecção microdissectada
Siga as instruções do QIAamp DNA Micro Kit para liberar e purificar o DNA coletado. O passo 3.1 foi modificado para acomodar o tubo invertido.
- Adicione 15 μl de ATL tampão e 10 μl proteinase K ao tubo invertido (dentro da tampa) e incubar a 56 °C por 3 horas.
- Adicionar 25 μl de buffer ATL, 50 μl tampão AL e RNA portador de 1 μl; mix. Adicionar 50 μl 100% EtOH; misturar.
- Transferência para coluna QIAamp; centrifuga. Lave adicionando 500 μl tampão AW1; centrifuga. Coloque a coluna em novo tubo de coleta, adicione 500 μl de buffer AW2; centrifuga. Coloque a coluna em um novo tubo; centrífuga para remover o excesso de líquido.
- Coloque a coluna em um tubo de microcentrifus de 1,5 μl e adicione 20 μl de água ao elute; centrifuga.
- Evaporar DNA recém-elucido até um volume final de 9 μl usando um aspirador de vácuo.
4) Amplificação do DNA de um único braço cromossomo de politensecção microdissectada
Dois protocolos diferentes foram usados para a WGA de um único braço cromossomo.
- Amplificação de DNA e preparação da sonda via GenomePlex WGA
- Siga o protocolo do Kit WGA4 de célula única do GenomePlex para produzir o primeiro lote de DNA amplificado:
- Adicione a solução Proteinase K recém-preparada à amostra de 9 μl; misturar. Incubar DNA a 50 °C por 1 hora e, em seguida, aquecer a 99 °C por 4 min. Mantenha-se no gelo.
- Adicionar 2 μl 1X Single Cell Library Preparation Buffer e 1 μl de Solução de Estabilização da Biblioteca; mix. Aqueça a amostra a 95 °C por 2 min. Esfrie no gelo e centrífuga.
- Adicionar 1 μl de enzima de preparação da biblioteca; mistura e centrífuga. Incubar da seguinte forma:
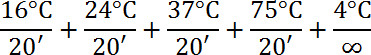
- Adicione 7,5 μl 10X Amplificação Master Mix, 48,5 μl de água. 5,0 μl WGA DNA Polymerase; mistura e centrífuga.
- Termociclo da seguinte forma:
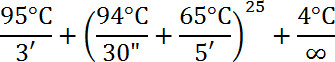
- Purificar o DNA usando o Kit De DNA Genômico Limpo & Concentrador. O protocolo é o seguinte:
- Adicionar 5:1 buffer de ligação de DNA:amostra de DNA (especificamente para DNA genômico de menos de 2 kb. Se o DNA da amostra for superior a 2 kb, use uma razão de 2:1) e transfira para a coluna de spin fornecida. centrifuga.
- Adicione 200 μl de buffer de lavagem de DNA e centrífuga. Repita o passo de lavagem. Em seguida, adicione 50 μl de água e elute o DNA em um novo tubo de 1,5 ml.
- Ressulifique o DNA da amostra usando o Kit de Reamplificação GenomePlex WGA3 da seguinte forma:
- Adicione 10 μl de DNA ao tubo PCR (o kit recomenda 10 ng total de DNA) com 49,5 μl de água, 7,5 μl 10x Amplificação Master Mix, 3,0 μl 10 mM DNTP mix e 5,0 μl WGA DNA Polymerase. Misture e centrífugue.
- Use o seguinte perfil para a reação:
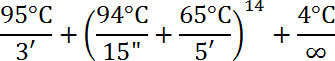
- Armazenar DNA a -20 °C.
- Rotule DNA para PEIXEs usando o Kit de Reamplificação GenomePlex WGA3 como a seguir:
- Crie uma mistura mestre a partir do Kit de Reamplificação GenomePlex WGA3 adicionando 10 μl de DNA ao tubo PCR com 49,5 μl de água, 7,5 μl 10X Amplificação Master Mix, 3,0 μl 1 mM dNTP mix (1 mM de dATP, dCTP, dGTP, 0,3 μl 1 mM dTTP - se usar dUTP rotulado), 1 μl de 25 nM rotulado dUTP , e 5,0 μl WGA DNA Polymerase.
- Use o seguinte perfil para a reação:
- O etanol precipita a sonda rotulada adicionando 1/10 o volume de reação final (7,5 μl para reação de 75 μl) de 3 M de acetato de sódio pH 5,2 e 2-3 volumes de 100% etanol. Fria amostra de DNA a -80 °C por pelo menos 30 min.
- Amostra de centrífugas a 4 °C por 10 minutos para criar pelotas rotuladas e remover pelotas supernascedoras e secas a ar.
- Criar buffer de hibridização da seguinte forma:
0,2 g Dextran Sulfato
1200 μl Formamide Deionizado
580 μl H2O
120 μl 20X SSC - Adicione 40 μl de tampão de hibridização à pelota seca a ar.
- Siga o protocolo do Kit WGA4 de célula única do GenomePlex para produzir o primeiro lote de DNA amplificado:
- Amplificação de DNA e preparação da sonda via REPLI-G Single Cell WGA seguido por nick-tradução
- Siga o protocolo REPLI-g Single Cell WGA Kit para produzir o DNA amplificado:
- Prepare buffer D2 (3 μl de 1 M DTT + 33 μl Buffer DLB).
- Misture 4 μl de material microdissectado purificado com 3 μl buffer D2. Tubo de movimento para misturar. Incubar por 10 min a 65 °C. Adicionar 3 μl de solução Stop; misturar.
- Adicione 9 μl H2O, 29 μl RELI-g Reaction Buffer e 2 μl de POLImerase de DNA REPLI-g à amostra. Incubar a 30 °C por 8 horas. Inativar polimerase de DNA aquecendo a 65 °C por 3 min. Armazenar DNA a -20 °C.
- Siga o protocolo de tradução nick para rotular o DNA amplificado REPLI-g:
- Prepare a seguinte mistura de rotulagem:
1 μg de DNA amplificado
5 μl 10X Buffer de polimerase de DNA
5 μl 10X dNTP
5 μl 1X BSA
1 μl 1 mM Rotulado dNTP
4 μl 1 U/μl DNase I
1 μl 10 U/μl DNA Polymerase I
H2O a 50 μl - Incubar a 15 °C por 2 horas. Adicione 2 μl de 0,5 M EDTA para parar a reação. Verifique o tamanho do fragmento de DNA rodando em gel.
- Siga os passos de 4.1.4.3-4.1.4.6 para precipitar e solubilizar pelotas.
- Prepare a seguinte mistura de rotulagem:
- Siga o protocolo REPLI-g Single Cell WGA Kit para produzir o DNA amplificado:
5) PEIXE 2D em preparações de abóbora de politene e cromossomo mitotmático
Consulte protocolos detalhados para PEIXEs sobre os preparos de abóboras de politenso 47 e slides de cromossomo mitotísticos 48. Aqui fornecemos protocolos breves.
- PEIXEs em preparações de cromossomo de politenso
- Mergulhe slides em 1X PBS por 20 min no RT. Corrija slides em 4% paraformaldeído em 1X PBS por 1 min.
- Desidratar slides através de lavagens de etanol: 50%, 70%, 90%, 100% para 5 min cada na RT. Lâminas secas.
- Pré-aquecimento da sonda em tampão de hibridização a 37 °C. Adicione 10-20 μl de sonda para deslizar. Cubra com tampa de 22 X 22 mm. Pressione todas as bolhas de ar usando uma ponta de pipeta.
- Cromossomos de desnaturação e sonda a 90 °C por 10 min. Veda as bordas da tampa com cimento de borracha. Transfira o deslizamento para a câmara úmida e incubar a 39 °C durante a noite.
- Lave os slides com 1X SSC a 39 °C por 20 min. Lave os slides com 1X SSC na RT por 20 minutos. Enxágüe slides em 1X PBS e adicione prolongar anti-fade com DAPI. Cubra com tampas e armazene na caixa de slides a 4 °C por pelo menos uma hora antes da visualização.
- Peixes em preparações de abóbora cromossômica mitótica
- Extrair cromossomos mitóticos de discos imagináveis de4ª larva instar de An. gambiae.
- Prepare lâminas de cromossomo adequadas para PEIXES.
- Adicione 2-3 μl de sonda de DNA rotulada ao tampão de hibridização em um tubo e misture suavemente por pipetação.
- Aplique 10 μl da mistura da sonda no slide e cubra com uma tampa de 22 X 22 mm. Pressione todas as bolhas de ar usando uma ponta de pipeta.
- Para contra-manter e detecção, aplique prolongar anti-fade com DAPI na preparação e mantenha-se no escuro por pelo menos uma hora antes da visualização.
6) PEIXE 3D em tecido ovariano de montagem inteira
- Prepare a seguinte mistura buffer A:
60 mM KCl
15 mM NaCl
0,5 mM Spermidina
0,15 mM Spermine
2 mM EDTA
0,5 mM EGTA
TUBOS DE 15 mM - Prepare slides para visualização nuclear adicionando uma camada de esmalte em um padrão quadrado para combinar com o tamanho das tampas. Isso cria uma superfície elevada para evitar a esmagamento de núcleos ao colocar em deslizamento de tampa no futuro.
- Disseca os ovários frescos das fêmeas estágio 3 de Christopher e mantenha-se em uma solução de 150-250 μl Buffer A com 0,5% de digitonina. Execute agulha de dissecção maior sobre folículos (em tubo com buffer A com 0,5% de digitonina) para destruir a membrana folicular.
- Vórtice por 5-10 minutos para perturbar ainda mais os folículos. Raspe quaisquer grandes pedaços foliculares e tubo de centrífuga por 30 segundos na configuração mais baixa de ~500 revoluções por minuto (RPM). Transfira supernante para um novo tubo Eppendorf de 2 ml e adicione 100 μl de Buffer A. Repita o passo 6.3 entre 5-7 vezes, até que o tecido visível seja quebrado em pequenas partículas.
- Gire os dois tubos por 10 min a 2.000 RPM. Descarte o supernaspe de supernasal em ambos os tubos. Nota: Ambos os tubos serão usados para fazer slides de visualização nuclear finais. O tubo com supernanato coletado deve conter núcleos extraídos principalmente, enquanto o tubo original com tecido conterá uma mistura de tecido e núcleos embutidos em células enfermeiras. Adicione 200 μl de Buffer A – Tritão 0,1% e incubar durante a noite a 4 °C. Centrifugar 5 min a 10.000 RPM (10.621 x G) e remover supernaspe.
- Adicione 200 μl 4% paraformaldeído em PBS. Incubar em termomixer por 30 min, misturando a 450 RPM. Centrifugar 5 min a 5.000 RPM (2.655 x G) e remover supernaspe. Lave com buffer A com Triton de 0,1% por 5 min, misturando a 450 RPM em termomixer. Centrifugar 5 min a 5.000 RPM (2.655 G) e remover supernaspe.
- Adicione a sonda pré-aquecida a 37 °C à sonda. Denatura a 95 °C em termomixer, misturando a 450 RPM, por 10 min. Continue a desnaturação a 80 °C por 15 min com mistura contínua. Incubar a 37 °C em termomixer, com 450 RPM misturando durante a noite. Centrifugar 5 min a 5.000 RPM (2.655 x G). Remova o supernatante.
- Lave com buffer A com Triton de 0,1% por 5 min. Centrifugar 5 min a 5.000 RPM (2.655 x G). Repita duas vezes. Aplique gota de Prolong Anti-fade com DAPI.
- Pipet nuclei/DAPI solução cuidadosamente (evitando bolhas), aplique para deslizar e cubra com tampa.
Resultados
A Figura 1 descreve o fluxo global do protocolo descrito neste artigo. O usuário começa inicialmente por amostras de DNA de cromossomo microdissectante de lâminas de membrana. O material microdissectado é extraído e purificado. O DNA purificado é então amplificado, re amplificado, rotulado e, em seguida, usado para fish para rotular spreads cromossomos.
O protocolo LCM pode ser dividido em três etapas gerais: 1) Encontrar cromossomos de interesse e preparar a região para corte(Figura 2A), 2) Cortar e catapultar a região cromossômica de interesse via laser(Figura 2B) e 3) Verificar se a amostra é realmente catapultada em tampa adesiva(Figura 2C). O processo de LCM usado nos cromossomos de politeno de an. gambiae Sua é mostrado no Vídeo 1. O vídeo detalha todo o processo desde o início do programa, incluindo importantes funções e dicas de software.
Os kits WGA de célula única GenomePlex e REPLI-g usados neste protocolo diferem muito no tamanho do produto resultante, bem como no rendimento geral. A Figura 3 mostra os resultados da eletroforese de gel para os kits GenomePlex e REPLI-g, bem como a quantificação das amostras por Nanodrop.
O material microdissectado tem sido usado para criar sondas FISH que visam regiões eucromáticas de um cromossomo. Figura 4 demonstra PEIXE de cinco sondas geradas a partir de material microdisstado em cromossomos de politenso de An. gambiae. Quatro braços autossômicos foram rotulados com três fluoroforos usando o kit WGA3: o cromossomo 3R é rotulado em verde (fluoresceína), o cromossomo 3L está em uma mistura de vermelho (Cy-3) e amarelo (Cy-5), o cromossomo 2R está em amarelo (Cy-5), e o cromossomo 2L está em vermelho (Cy-3). O cromossomo X foi rotulado em laranja (Cy-3) usando nick-tradução do material REPLI-g em um experimento separado. Para estabelecer a correspondência entre porções eucromáticas de braços cromossomos politenso e mitotísticos, as tintas cromossômicas foram hibridizadas para interfase, prophase, prometaphase e cromossomos metafase de An. gambiae (Figura 5). Para visualizar a organização 3D de um único braço cromossomo de politenso no núcleo celular, o monte peixinho inteiro foi realizado em an. gâmbiae Suas strain ovarian nurse cell (Vídeo 2). Territórios de braço cromossomo distintos são claramente vistos em núcleos com cromossomos interfase(Figura 5D) e politentos (Vídeo 2).
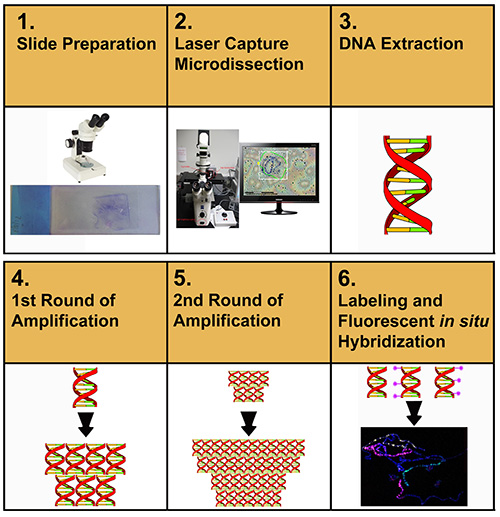
Figura 1. Representação esquemática dos procedimentos experimentais para a preparação de tintas cromossômicas. Clique aqui para ver imagem maior.

Figura 2. Os principais passos na microdisseção do cromossomo. A) Corte assistido a laser da região cromossômica de interesse através da membrana. B) A membrana com um orifício após a catapultação é realizada. C) A visão da peça catapultada da membrana com um segmento cromossômico nele preso à tampa adesiva. A seta indica a heterocromatina do cromossomo X que permaneceu no slide. O asterisco mostra um pedaço de outro cromossomo que permaneceu no escorregador. Clique aqui para ver imagem maior.
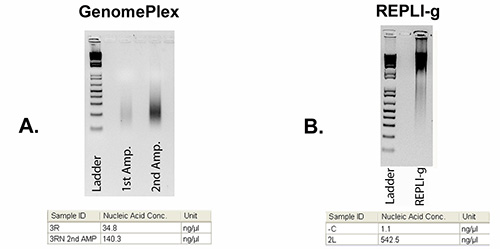
Figura 3. Imagens de gel de Agarose mostrando DNA após a WGA. A) BAIXO peso molecular (200-500 bp) DNA do braço 3R após o uso dos kits WGA4 e WGA3 GenomaPlex. B) DNA de alto peso molecular (10-20 kb) do braço 2L após amplificação REPLI-g. A escada de 100 bp é mostrada nas faixas da esquerda. As tabelas abaixo das imagens em gel mostram concentrações de DNA medidas por Nanodrop. Clique aqui para ver imagem maior.
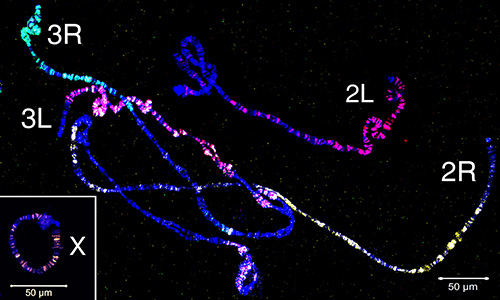
Figura 4. Pintura de cromossomos de politenso de células enfermeiras ovarianas de An. gambiae usando quatro sondas geradas a partir de material microdisstado. O cromossomo X é rotulado em laranja (Cy-3) por tradução de nick do material REPLI-g. O braço 2R é rotulado em amarelo (Cy-5); o braço 2L está em vermelho (Cy-3); o braço 3R é rotulado em verde (fluoresceína); o braço 3L é rotulado em uma mistura de vermelho (Cy-3) e amarelo (Cy-5). Os autossómos são rotulados com o kit de amplificação WGA3. Chromatina está manchada em azul (DAPI). Nomes de cromossomos são colocados perto de regiões teloméricas. Clique aqui para ver imagem maior.
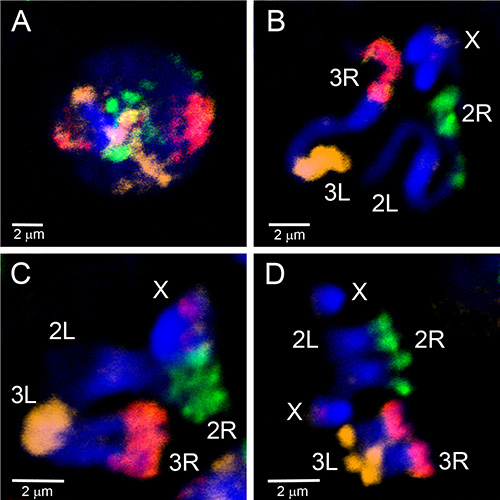
Figura 5. Pintura de cromossomos interfase (A), prophase (B), prometaphase (C) e metafase (D) de discos imagináveis larvais da cepa An. gambiae Mopti usando três sondas geradas a partir de material microdissectado rotulado por WGA3. O braço 2R é rotulado em verde (fluoresceína); o braço 2L está sem rótulo; o braço 3R está em rosa, uma mistura de vermelho (Cy-3) e laranja (Cy-5); o braço 3L é rotulado em laranja (Cy-5). O cromossomo X tem uma etiqueta vermelha correspondente à sonda rDNA 18S. Chromatina está manchada em azul (DAPI). Regiões manchadas de cromossomos correspondem à heterocromatina. Clique aqui para ver imagem maior.
Vídeo 1. O processo de LCM dos cromossomos de politeno an. gambiae. Clique aqui para ver o vídeo 1.
Vídeo 2. Montagem inteira 3D FISH realizado em células enfermeiras ovarianas an. gambiae. A sonda é rotulada em Cy-3 (retratada em azul) e foi feita a partir de um braço cromossomo 2R microdissectado. Chromatina foi manchada com DAPI e é representada por pseudo-coloração ciano (azul claro). Clique aqui para ver o vídeo 2.
Discussão
Existem vários passos críticos para amplificar com sucesso o DNA a partir de amostras de cromossomo de politensecção microdissectada. O protocolo emprega o uso de LCM, um método que tanto aumenta a eficiência geral quanto reduz a exposição ao DNA estranho, removendo a interação de ferramentas físicas com a amostra. No entanto, a amplificação do DNA estranho ainda é a maior armadilha potencial deste experimento. Assim, durante todo o processo, é essencial manter as amostras protegidas contra contaminação. Ao longo das fases de preparação e microdisseção do slide, é essencial que as agulhas de dissecção de lavagem de etanol, lâminas, deslizamentos de cobertura, bem como o espaço de trabalho. Também é aconselhável tratar todos os equipamentos aplicáveis (agulhas, lâminas, tampas) antes de serem utilizados.
A membrana nos slides de dissecção torna a propagação dos cromossomos muito difícil. É importante usar mais do ovário (metade a um par completo de ovários) ao fazer esses slides, para proporcionar uma maior chance de encontrar um núcleo bem espalhado. Também é recomendado o uso de tecido fresco ao fazer slides, pois as taxas de amplificação parecem cair à medida que os tecidos com 49 anos e a propagação do cromossomo se tornam mais desafiadoras. A preparação de slides para microdisseção é o passo mais demorado neste protocolo. Os cromossomos devem estar bem espalhados para evitar a aquisição acidental de material indesejado. A coloração de Giemsa permite que o usuário verifique a qualidade do spread com um microscópio de contraste de fase antes de usar o sistema de microdisseção.
A combinação de microdisseção e amplificação proporciona a oportunidade de extrair e analisar fragmentos cromossômicos que variam em tamanho desde pequenas regiões de interesse até a maioria dos braços. Este protocolo permite ao usuário obter DNA de regiões morfologicamente distintas, como inversões, bandas eucromáticas específicas e bandas interbandas, telomeric, centromeric e intercalar heterocromatina. O usuário pode aplicar as sondas de pintura geradas para examinar cromossomos aberrantes, estudar a hosmologia entre espécies em loci particular, ou caracterizar a organização espacial de cromossomos em um núcleo 3D intacto. Para o desenvolvimento de tintas cromossômicas, selecionamos segmentos eucromáticos para evitar a hibridização do DNA repetitivo com múltiplas regiões cromossômicas. Como resultado, obtivemos pintura específica do braço sem usar um concorrente, como DNA genômico total ou fração de DNA C0t-1.
Optamos por usar os kits GenomePlex WGA e REPLI-G com base em avaliações que comparassem a eficiência e a taxa de abandono de vários kits de amplificação 40,44. Ambos os kits tiveram o melhor desempenho entre os métodos disponíveis em ambas as taxas de abandono (o GenomePlex apresentou uma taxa de 12,5% em comparação com os 37,5% do REPLI-g. e percentual de marcadores amplificados (GenomePlex teve uma taxa de amplificação de 45,24% versus 30,0% do REPLI-g) 40. O kit GenomePlex também forneceu uma maior quantidade de DNA, e assim tornou-o um melhor candidato para múltiplas técnicas a jusante. Um kit de ream amplificação para o sistema GenomePlex também está disponível, permitindo uma maior amplificação do DNA. No entanto, é importante notar que a amplificação não é perfeita. A possibilidade é que a amplificação bem sucedida possa introduzir erros ou ter um viés em relação a locis específicos no DNA alvo. É importante considerar o tamanho final do fragmento dos métodos de amplificação do genoma disponíveis. A fragmentação do GenomePlex resulta em uma biblioteca com fragmentos que variam de 200 a 500 bp, enquanto o kit REPLI-g produz fragmentos de aproximadamente 10-20 kb de tamanho. A aplicação a jusante pretendida deste protocolo é o FISH, tornando assim o kit GenomePlex uma opção mais viável, pois forneceu o tamanho do fragmento desejado e a capacidade de rotular fragmentos de DNA diretamente através da WGA. Moléculas longas de DNA produzidas pela amplificação REPLI-g devem ser fragmentadas na reação de rotulagem de tradução a jusante.
Este protocolo foi adaptado para amplificar com sucesso o DNA de um único braço cromossomo de politeno. Outros protocolos exigem a junção de muitos fragmentos de cromossomo (tipicamente 10-30) a fim de amplificar com sucesso a amostra 7,11,28,40. Embora a junção de cromossomos múltiplos seja possível usando nosso método, a maior probabilidade de contaminação da amostra enfatiza a importância de iniciar o experimento com o menor número possível de cromossomos. Se cromossomos de politenso não estiverem disponíveis, nosso protocolo pode ser adaptado para uso em cromossomos mitóticos. Pode ser necessário, no entanto, reunir cromossomos mitotísticos 10-15 antes da amplificação para o bem sucedido FISH 11. O viés de amplificação é menor com altas quantidades de DNA de modelo inicial 50. Cromossomos de politenso fornecem aproximadamente 512 cópias de uma única sequência de DNA e 1024 cópias de duas sequências de DNA homólogos. Assim, a junção de cromossomos mitóticos ajudará a aumentar a qualidade geral do produto de DNA após a amplificação.
Este procedimento tem muitos usos potenciais em estudos citogenéticos e genômicos. Aqui, usamos tintas cromossômicas para estabelecer a correspondência entre segmentos eucromáticos de braços de politeno e cromossomo mitotístico em An. gambiae. As mesmas sondas de pintura podem ser aplicadas à caracterização citogenética das linhas celulares An. gambiae. Rearranjos genômicos extensos e alterações nos números de cromossomos são características comuns das linhas celulares 51,52. Foram detectados rearranjos aneuploides, poliploides e cromossômicos, como translocações, inversões, supressões e cromossomos de anel nas diferentes linhas de células do mosquito 53,54. Observações citogenéticas clássicas 55 e mapeamento físico 56 demonstraram a ocorrência de translocações cromossômicas de braço inteiro na evolução dos mosquitos da malária. Portanto, o material microdissectado pode ser usado em conjunto com experimentos fish para comparar a homologia de regiões cromossômicas entre espécies. Realizamos com sucesso peixes 3D com a sonda de pintura 2R em cromossomos de politeno em células enfermeiras ovarianas de montagem inteira. Este método facilitará o rastreamento de trajetórias cromossômicas e o estudo da arquitetura nuclear em Anopheles. Técnicas como genotipagem de DNA 57,58, sequenciamento de genoma de última geração 26,27, desenvolvimento de mapas físicos e de ligação, e geração de sondas para pintura cromossômica 33,59 todos podem se beneficiar de microdisseção específica do braço e região. Combinando a tecnologia LCM e avançando wga unicelular, demonstramos um método eficiente e prático para produzir quantidades razoáveis de DNA a partir de um único braço cromossomo de politeno.
Divulgações
Os autores não têm nada a revelar.
Agradecimentos
Este trabalho foi apoiado pela subvenção dos Institutos Nacionais de Saúde 1R21AI094289 a Igor V. Sharakhov
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Ácido acético | Fisher Scientific | A491-212 | |
| Metanol | Fisher Scientific | A412-4 | |
| Ácido propiônico | Sigma-Aldrich | 402907 | |
| Membrana slides 1.0 PET | Zeiss | 415190-9051-000 | |
| Comprimidos tampão " GURR" | Life Technologies | 10582-013 | |
| KaryoMAX Giemsa Stain | Life Technologies | 10092-013 | |
| ThermoBrite Sistema de Desnaturação/Hibridização de Slides | Abbott Molecular | 30-144110 | |
| Concentrador de vácuo Vacufuge | Eppendorf | 22820001 | |
| Spectroline Reticulador UV Controlado por Microprocessador XL-1000 | Fisher Scientific | 11-992-89 | |
| Thermo Scientific NanoDrop | Fisher Scientific | ND-2000 | |
| REPLI-g Kit de Célula Única | Qiagen | 150343 | |
| GenomePlex Kit de Célula Única (WGA4) | Sigma-Aldrich | WGA4-10RXN | |
| GenomePlex WGA Kit de Reamplificação (WGA3) | Sigma-Aldrich | WGA3-50RXN | |
| MZ6 Estereomicroscópio | Leica Leica | VA-OM-E194-354 | Um estereomicroscópio diferente pode ser usado |
| Microscópio de Fase Olympus CX41 | Olympus | CX41RF-5 | Um microscópio de fase diferente pode ser usado |
| Microscópio de Microdissecção a Laser PALM MicroBeam | Zeiss | ||
| Thermomixer | Eppendorf | 22670000 | |
| 10x PBS | Invitrogen | P5493 | |
| 50x Denhardt& rsquo; s solução | Sigma-Aldrich | D2532 | |
| 99% Formamida | Fisher Scientific | BP227500 | |
| Sal de sódio sulfato de dextrano | Sigma | D8906 | |
| 20x SSC tampão | Invitrogen | AM9765 | |
| ProLong Gold reagente antifade com DAPI | Invitrogen | P-36931 | |
| dATP, dCTP, dGTP, dTTP | Fermentas | R0141, R0151, R0161, R0171 | |
| Cy3-dUTP, Cy5-dUTP | GE Healthcare | PA53022, PA55022 | |
| BSA | Sigma-Aldrich | A3294 | |
| DNA polimerase I | Fermentas | EP0041 | |
| DNase I | Fermentas | EN0521 | |
| Espermina | Sigma-Aldrich | S3256-1G | |
| Espermidina | Sigma-Aldrich | S0266-1G | |
| Cloreto de Potássio (KCl) | Fisher Scientific | BP366-500 | |
| Cloreto de Sódio (NaCl) | Fisher Scientific | BP3581 | |
| EGTA | Sigma-Aldrich | E0396-25G | |
| TUBOS | Sigma-Aldrich | P6757-25G | |
| EDTA | Fisher Scientific | S311-500 | |
| Digitonin | Sigma-Aldrich | D141-100MG | |
| Triton-X100 | Fisher Scientific | BP151-100 | |
| AdhesiveCap 500 transparente | Zeiss | 415190-9211-000 | |
| QIAamp DNA Micro Kit (50) | Qiagen | 56304 | |
| Jogo de limpeza e concentrador de DNA genômico | Zymo Research | D4010 | |
| 37% Paraformaldeído | Fisher Scientific | F79-500 |
Referências
- Ried, T., Schrock, E., Ning, Y., Wienberg, J. Chromosome painting: a useful art. Human molecular genetics 7. , 1619-1626 (1998).
- Yang, F., et al. Reciprocal chromosome painting illuminates the history of genome evolution of the domestic cat, dog and human. Chromosome Res. 8, 393-404 (2000).
- Badenhorst, D., Dobigny, G., Robinson, T. J. Karyotypic evolution of hapalomys inferred from chromosome painting: a detailed characterization contributing new insights into the ancestral murinae karyotype. Cytogenet Genome Res 136. , 83-88 (2012).
- Trifonov, V. A., et al. Chromosomal evolution in Gekkonidae. I. Chromosome painting between Gekko and Hemidactylus species reveals phylogenetic relationships within the group. Chromosome Res. 19, 843-855 (2011).
- Nie, W., et al. Chromosomal rearrangements and karyotype evolution in carnivores revealed by chromosome painting. Heredity (Edinb. , 108-1017 (2012).
- Guan, X. Y., et al. Detection of chromosome 6 abnormalities in melanoma cell lines by chromosome arm painting probes). Cancer Genet Cytogenet. 107, 89-92 (1998).
- Guan, X. Y., et al. Characterization of a complex chromosome rearrangement involving 6q in a melanoma cell line by chromosome microdissection. Cancer genetics and cytogenetics 134. , 65-70 (2002).
- Breen, M., et al. Detection of equine X chromosome abnormalities in equids using a horse X whole chromosome paint probe (WCPP). Vet J. 153, 235-238 (1997).
- Kokhanenko, A. A., Anan'ina, T. V., Stegniy, V. N. The changes in chromosome 6 spatial organization during chromatin polytenization in the Calliphora erythrocephala Mg. (Diptera: Calliphoridae) nurse cells. Protoplasma 250. , 141-149 (2013).
- Timme, S., et al. Nuclear position and shape deformation of chromosome 8 territories in pancreatic ductal adenocarcinoma. Anal Cell Pathol (Amst. 34, 21-33 (2011).
- Drosopoulou, E., et al. Sex chromosomes and associated rDNA form a heterochromatic network in the polytene nuclei of Bactrocera oleae (Diptera: Tephritidae). Genetica. 140, 169-180 (2012).
- Pazian, M. F., Shimabukuro-Dias, C. K., Pansonato-Alves, J. C., Oliveira, C., Foresti, F. Chromosome painting of Z and W sex chromosomes in Characidium (Characiformes). Crenuchidae). Genetica. 141, 1-9 (2013).
- Howe, E. S., Murphy, S. P., Bass, H. W. Three-dimensional acrylamide fluorescence in situ hybridization for plant cells. Methods Mol Biol 990. , 53-66 (2013).
- Lysak, M. A., Mandakova, T. Analysis of plant meiotic chromosomes by chromosome painting. Methods Mol Biol 990. , 13-24 (2013).
- Ji, Z., Zhang, L. Chromosomics: detection of numerical and structural alterations in all 24 human chromosomes simultaneously using a novel OctoChrome FISH assay. J Vis Exp. 10, (2012).
- Idziak, D., et al. Painting the chromosomes of Brachypodium: current status and future prospects. Chromosoma. 120, 469-479 (2011).
- Fuchs, J., Kuhfittig, S., Reuter, G., Schubert, I. Chromosome painting in Drosophila. Chromosome Res. 6, 335-336 (1998).
- Zhimulev, I. F. Morphology and structure of polytene chromosomes. 34, Academic Press. 1-490 (1996).
- Sharakhov, I. V., Sharakhova, M. V. in Chromosome Mapping Research Developments eds. J.F. Verrity & L.E. Abbington) (Nova Science. , Publishers, Inc. (2008).
- Coluzzi, M., Sabatini, A., Torre, della, Di Deco, A., A, M., Petrarca, V. A polytene chromosome analysis of the Anopheles gambiae species complex). Science. 298, 1415-1418 (2002).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malaria mosquitoes. Genetika. 23, 821-827 (1987).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malarial mosquitoes. II. Species specificity in the pattern of chromosome relations with the nuclear envelope of nutrient ovarian cells. Genetika. 23, 1194-1199 (1987).
- Bonaccorsi, S., Santini, G., Gatti, M., Pimpinelli, S., Colluzzi, M. Intraspecific polymorphism of sex chromosome heterochromatin in two species of the Anopheles gambiae complex. Chromosoma. 76, 57-64 (1980).
- Zhimulev, I. F. Polytene chromosomes, heterochromatin, and position effect variegation. Adv Genet. 37, 1-566 (1998).
- Seifertova, E., et al. Efficient high-throughput sequencing of a laser microdissected chromosome arm. BMC Genomics. 14, 1471-2164 (2013).
- Weise, A., et al. High-throughput sequencing of microdissected chromosomal regions. European journal of human genetics. EJHG. 18, 457-462 (2010).
- Murphy, S. J., et al. Mate pair sequencing of whole-genome-amplified DNA following laser capture microdissection of prostate cancer. DNA research : an international journal for rapid publication of reports on genes and genomes 19. , 395-406 (2012).
- Moshkin, Y. M., et al. Microdissection and sequence analysis of pericentric heterochromatin from the Drosophila melanogastermutant Suppressor of Underreplication. Chromosoma. 111, 114-125 (2002).
- Decarlo, K., Emley, A., Dadzie, O. E., Laser Mahalingam, M. capture microdissection: methods and applications. Methods Mol Biol 755. , 1-15 (2011).
- Iyer, E. P., Cox, D. N. Laser capture microdissection of Drosophila peripheral neurons. J Vis Exp. 10, (2010).
- Kubickova, S., Cernohorska, H., Musilova, P., Rubes, J. The use of laser microdissection for the preparation of chromosome-specific painting probes in farm animals. Chromosome Res. 10, 571-577 (2002).
- Fukova, I., et al. Probing the W chromosome of the codling moth, Cydia pomonella, with sequences from microdissected sex chromatin. Chromosoma. 116, 135-145 (2007).
- Thalhammer, S., Langer, S., Speicher, M. R., Heckl, W. M., Geigl, J. B. Generation of chromosome painting probes from single chromosomes by laser microdissection and linker-adaptor PCR. Chromosome Res. 12, 337-343 (2004).
- Sims, C. E., Allbritton, N. L. Analysis of single mammalian cells on-chip. Lab on a chip 7. , 423-440 (2007).
- Hutchison, C. A., 3rd,, Venter, J. C. Single-cell genomics. Nature biotechnology. 24, 657-658 (2006).
- Lasken, R. S., Egholm, M. Whole genome amplification: abundant supplies of DNA from precious samples or clinical specimens. Trends in biotechnology 21. , 531-535 (1016).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in the grasshopper Eyprepocnemis plorans. Cytogenet Genome Res. 125, 286-291 (2009).
- Liu, J. D., et al. Sex chromosomes in the spiny eel (Mastacembelus aculeatus) revealed by mitotic and meiotic analysis. Cytogenet Genome Res. 98, 291-297 (2002).
- Harvey, S. C., et al. Molecular-cytogenetic analysis reveals sequence differences between the sex chromosomes of Oreochromis niloticus: evidence for an early stage of sex-chromosome differentiation. Cytogenet Genome Res. 97, 76-80 (2002).
- Hockner, M., Erdel, M., Spreiz, A., Utermann, G., Kotzot, D. Whole genome amplification from microdissected chromosomes. Cytogenet Genome Res. 125, 98-102 (2009).
- Kitada, K., Taima, A., Ogasawara, K., Metsugi, S., Aikawa, S. Chromosome-specific segmentation revealed by structural analysis of individually isolated chromosomes. Genes Chromosomes Cancer. 50, 217-227 (2011).
- Ma, L., et al. Direct determination of molecular haplotypes by chromosome microdissection. Nature methods. 7, 299-301 (2010).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in Locusta migratoria. Chromosome Res. 17, 11-18 (2009).
- Treff, N. R., Su, J., Tao, X., Northrop, L. E., Scott, R. T. Single-cell whole-genome amplification technique impacts the accuracy of SNP microarray-based genotyping and copy number analyses. Molecular human reproduction 17. , 335-343 (2011).
- Rutten, K. B., et al. Chromosomal anchoring of linkage groups and identification of wing size QTL using markers and FISH probes derived from microdissected chromosomes. in Nasonia(Pteromalidae : Hymenoptera). Cytogenetic and Genome Research 105. , 126-133 (2004).
- Post, R. J., Kruger, A., Somiari, S. B. Laser-assisted microdissection of polytene chromosomes from Diptera for the development of molecular markers. Molecular Ecology Notes. 6, 634-637 (2006).
- George, P., Sharakhova, M. V., Sharakhov, I. V. High-throughput physical mapping of chromosomes using automated in situ hybridization. Journal of visualized experiments : JoVE. 10, (2012).
- Timoshevskiy, V. A., Sharma, A., Sharakhov, I. V., Sharakhova, M. V. Fluorescent in situ Hybridization on Mitotic Chromosomes of Mosquitoes. J Vis Exp. 10, (2012).
- Frumkin, D., et al. Amplification of multiple genomic loci from single cells isolated by laser micro-dissection of tissues. BMC biotechnology. 8, 10-1186 (2008).
- Raghunathan, A., et al. Genomic DNA amplification from a single bacterium. Applied and environmental microbiology 71. , 3342-3347 (2005).
- Cassio, D. Long term culture of MDCK strains alters chromosome content. BMC Res Notes. 6, 162-1610 (2013).
- Landry, J. J., et al. The Genomic and Transcriptomic Landscape of a HeLa Cell Line. G3. , Bethesda. (1534).
- Steiniger, G. E., Mukherjee, A. B. Insect chromosome banding: technique for G- and Q-banding pattern in the mosquito Aedes albopictus. Can J Genet Cytol. 17, 241-244 (1975).
- Brown, S. E., et al. Toward a physical map of Aedes aegypti. Insect Mol Biol. 4, 161-167 (1995).
- Green, C., Hunt, R. Interpretation of variation in ovarian polytene chromosomes of Anopheles funestus Giles. A. parensis Gillies, and A. aruni? Genetica. 51, 187-195 (1980).
- Sharakhova, M. V., Xia, A., Leman, S. C., Sharakhov, I. V. Arm-specific dynamics of chromosome evolution in malaria mosquitoes. BMC evolutionary biology. 11, 10-1186 (2011).
- Gu, L. H., et al. DNA genotyping of oral epithelial cells by laser capture microdissection]. Fa yi xue za zhi 22. , 196-197 (2006).
- Rook, M. S., Delach, S. M., Deyneko, G., Worlock, A., Wolfe, J. L. Whole genome amplification of DNA from laser capture-microdissected tissue for high-throughput single nucleotide polymorphism and short tandem repeat genotyping. The American journal of pathology 164. , 23-33 (2004).
- Houen, A., Field, B. L., Saunders, V. A. Microdissection and chromosome painting of plant B chromosomes. Methods in cell science : an official journal of the Society for In. Vitro Biology. 23, 115-124 (2001).
Reimpressões e permissões
