Xenoenxertos tumorais humanos são vascularizado e infiltrada por células de origem em ratinho durante a fase de crescimento in vivo. Para contornar a erros causados por essas células contaminantes durante a análise a jusante, foi desenvolvido um método para permitir que o esgotamento completo de todas as células de ratinho por separação de células magnético.
Artigo de método
Depleção de células do rato de xenoenxertos de tumor humano Melhora Significativamente Análise Downstream de células alvo
Neste artigo
Resumo
Resumo
O uso de modelos em linha de células in vitro para a pesquisa do câncer tem sido uma ferramenta útil. No entanto, demonstrou-se que esses modelos não imitam de forma fiável tumores de doentes em diferentes ensaios 1. Xenoenxertos de tumores humanos representam o padrão ouro em relação à biologia do tumor, descoberta de drogas e pesquisa de metástases 2-4. Xenoenxertos de tumor podem ser derivadas de diferentes tipos de materiais, como linhas de células de tumor, tecido de tumor a partir de tumores primários do paciente 4 ou tumores transplantados em série. Quando propagado in vivo, o tecido xenoenxertado é infiltrado e vascularizado por células de origem em ratinho. Vários factores, tais como a entidade de tumor, a origem de material xenoenxertado, taxa de crescimento e a região de transplante de influenciar a composição e a quantidade de células de ratinho presentes em xenoenxertos de tumor. No entanto, mesmo quando estes factores são mantidas constantes, o grau de contaminação de células do rato é altamente variável.
cocélulas de rato ntaminating prejudicar significativamente análises a jusante de xenoenxertos de tumores humanos. Como fibroblastos de ratinho mostram eficácias alta revestimento e taxas de proliferação, eles tendem a crescer demais culturas de células de tumores humanos, especialmente em proliferação lentamente subpopulações. Célula do rato derivado DNA, mRNA, e componentes proteicos podem influenciar análise de expressão gênica jusante, sequenciamento de última geração, bem como a análise do proteoma 5. Para superar estas limitações, temos desenvolvido um método fácil e rápido para isolar células tumorais humanas intactas a partir de tecido de tumor xenoenxertado. Este procedimento baseia-se no esgotamento completo de células de origem em ratinho por combinação de dissociação de tecido automático com o Dissociator tecido de bancada e separação de células magnético. Aqui, demonstramos que as células alvo humanas pode ser pode ser obtido com pureza superior a 96% em menos de 20 minutos, independentemente do tipo de tumor.
Introdução
tumores humanos sólidos consistem de múltiplas fisiológico, bem como tipos de células neoplásicas. Eles formam tecidos heterogêneos com estruturas biológicas complexas. Os processos biológicos como o tumor formação, progressão e respostas no sentido de terapias ainda não são totalmente compreendidos. Modelos in vitro de cultura de células representam uma ferramenta útil para estudar e compreender a biologia do tumor. No entanto, eles só podem, em parte, espelhar as estruturas e processos encontrados em tecidos tumorais. Modelos de tumores pré-clínicos humanos fiáveis e estáveis são um pré-requisito para o desenvolvimento de drogas anti-tumorais e terapias de 4,6, bem como para compreender a biologia do tumor e a interacção das células tumorais e o seu ambiente.
Modelos de xenotransplante tumoral humanas derivadas de tumores primários de pacientes apresentam altos relações com o tecido de origem sobre arquitetura histológica, interações com estruturas micro-ambiental, potencial metastático e respostas a drogas 7 . Mesmo quando xenoenxertos de tumor são derivados a partir de células em cultura ou linhas celulares que mais de perto simulam tumores de pacientes, por conseguinte, mostrando maior validade na maioria dos ensaios de comparação com modelos de cultura celular in vitro. Estas características tornam o padrão ouro de modelos pré-clínicos 4. Além de sua aplicação na pesquisa do câncer, o xenotransplante de células humanas em ratos também é frequentemente utilizado em pesquisas com células-tronco para determinar o potencial stemness e diferenciação de uma população-alvo 8.
Tem sido demonstrado que microvasculatura humana e células imunitárias humanas são substituídas sobre a propagação in vivo de tumores humanos 2,9. Factores tais como o subtipo de tumor, taxa de crescimento, e a região do transplante tem um grande impacto sobre o nível mundial de infiltração, bem como a composição dos tipos de células do rato encontrado. No entanto, mesmo quando estes factores são mantidas constantes, a quantidade e composição de células de ratinho são altamente variáveis.
análises a jusante de tecidos xenoenxerto muitas vezes são desafiados por células de origem murina. As culturas primárias de células de tumor humano a partir de xenoenxertos são frequentemente coberto por fibroblastos. Além de dificultar a geração de linhagens de células tumorais in vitro, ensaios a jusante tais como testes de citotoxicidade de drogas ou farmacocinética são tendenciosos, uma vez na correção silico para efeitos originários de contaminar células de rato é impossível na maioria dos casos. Além disso, o cross-talk apenas parcialmente elucidado entre fibroblastos de rato e células tumorais humanas tem um impacto direto sobre os resultados experimentais de estudos 10. Além disso, a variação mais amplamente imprevisível de se infiltrar em células de camundongo agrava análises a jusante moleculares precisos. Em NGS ou proteoma analisa cada sinal medido derivadas de ratinho, em vez de um sinal de tumor humano diminui a sensibilidade directamente sequenciação. Também análises de expressão microarray baseado são desafiados por nuc murinoácidos trans- linoleicos hibridação cruzada possivelmente para sondas humanos.
A fim de contornar os obstáculos de contaminar células de rato em análises a jusante de células tumorais humanas a partir de modelos de xenotransplante foram propostas diferentes abordagens. Em muitos estudos células alvo desejadas para análise a jusante são isolados através da utilização de marcadores ou combinações de marcadores expressos exclusivamente em células de tumores humanos. No entanto, a falta de marcadores de confiança para a identificação positiva de células de tumor humano representa frequentemente um grande obstáculo. Marcadores Mesmo amplamente expressas, como EpCAM em carcinomas humanos, freqüentemente mostram diferenças tumor expressão intrínseca 11. Isto aumenta o risco de que as subpopulações de baixa que expressam, por exemplo, células de tumor epitelial sofrido-a-mesenquimais transição, são perdidas durante o isolamento. Além disso, a ligação directa de um agente de selecção para a célula alvo pode influenciar os resultados da análise posteriores. As tentativas de esgotar células de camundongo porutilizando uma combinação de anticorpos específicos para CD45 de murideo e de classe I de MHC também epitopos foram feitas 12. No entanto, esta combinação de marcador detecta apenas um subconjunto de células de ratinho. Outra abordagem é para melhorar os processos de análise por software. No entanto, todas estas abordagens não são ou adequado para qualquer tipo de configuração experimental ou para qualquer entidade do tumor e método de transplante.
Neste estudo apresentamos um método novo e rápido para abrangente que destroem células de rato a partir de tecidos xenoenxerto independentes da estirpe do mouse e tecido de origem. Em rastreios em vários órgãos e tecidos alvo para transplantação de xenoenxertos (incluindo a pele, pulmão, cérebro, rim e no músculo esquelético), fomos capazes de identificar uma combinação de anticorpos que permitam a detecção de células de ratinho de forma abrangente. Estes anticorpos foram acoplados a partículas superparamagnéticas, titulada e optimizado para a depleção utilizando separação de células magnético. Como apenas de mouse específicoOs anticorpos são usados, as células alvo humanas ficar "intacto" e o método não está limitado a tecido tumoral xenotransplantadas. Nós demonstramos que as células de ratinho de forma abrangente a remoção de amostras de tumores xenoenxertados padroniza e facilita a culturas de células de tumores humanos. Além disso, mostramos que a análise de xenoenxertos de tumor humano por sequenciação próxima geração é significativamente melhorada. Como este efeito foi observado embora uma selecção específica de sequência humana tem sido levada a cabo durante o enriquecimento exome, a influência sobre o genoma inteiro e toda a sequenciação transcriptoma se espera que sejam ainda mais proeminente. Tomados em conjunto, a remoção de células de ratinho, usando este novo método facilita o cultivo de células de tumores humanos e melhora significativamente as análises a jusante de xenoenxertos de tumores humanos.
Protocolo
Todos os experimentos com animais foram realizados de acordo com as diretrizes éticas e legais locais de Regierungspräsidium Freiburg Referat 35.
1. Preparação de Reagentes
NOTA: Antes de iniciar o experimento, preparar os seguintes reagentes do kit de dissociação:
- Para preparar a enzima H dissolver cada frasco do pó liofilizado em 3 ml de meio RPMI 1640 do Roswell Park Memorial Institute 1640 (RPMI 1640) ou meio de Eagle modificado por Dulbecco (DMEM). A fim de evitar ciclos repetidos de congelamento e descongelamento preparar aliquotas adequadas (por exemplo, 200 ul) e armazená-los, a - 20 ° C durante até 6 meses.
- Para preparar enzima R dissolve-se o frasco do pó liofilizado em 2,7 ml de meio RPMI ou DMEM. A fim de evitar ciclos repetidos de congelamento e descongelamento preparar aliquotas adequadas (por exemplo, 100 ul) e armazená-los, a - 20 ° C durante até 6 meses.
- Para preparar enzima Uma dissolver o vial do pó liofilizado, em 1 ml de tampão A fornecido com o kit sem vórtex. A fim de evitar a congelação e descongelação repetidas preparar aliquotas adequadas e armazená-los em (por exemplo, 25 ul.) - 20 ° C durante até 6 meses. Certifique-se de misturar bem esta suspensão imediatamente antes de retirar o volume de reacção necessário.
- Preparar 250 ml de tampão (PBS 1x com 0,5% de BSA) para o procedimento de separação de células e coloração com anticorpo.
NOTA: Quando a cultura de células após remoção das células de ratinho filtrar todos os tampões e soluções de enzima através de um filtro de 0,22 um.
2. Tumor dissociação Protocolo
Nota: Neste estudo xenotransplantes derivados de pacientes de cancro do pulmão de células não pequenas (NSCLC), foram usadas cancro renal e da bexiga. Os tumores foram gerados através da implantação de xenoenxertos de cancro de pulmão de células não pequenas (NSCLC) e cancro renal na bexiga 4 - fêmea NMRI nu / nu ratos 6 semanas de idade como descrito anteriormente 13 .
Observação: Uma vez que este protocolo é completamente independente do tipo de tumor, pode ser usada para qualquer tipo de paciente ou tumor derivado da linha de células, bem como outros tipos de tecido humano xenotransplantadas sem modificação do protocolo.
- Prepare 5 ml de mistura de digestão por amostra de tecido (até 1 g) recém adicionando 4,7 ml de meio RPMI 1640 ou DMEM, 200 ul de enzima H, 100 ul de enzima r, e 25 ul de enzima A para um tubo de dissociação celular ( C Tube). Certifique-se de misturar completamente suspensão de enzima R antes de retirar o volume necessário.
- Sacrificar os animais por deslocamento cervical, sob anestesia. Desinfectar rato por pulverização com uma pequena quantidade de 80% v / v de etanol.
- tumor subcutâneo colheita desde o seu flanco rato usando uma pinça e tesouras em uma capa de cultura de tecidos. Cortar a pele aberta em lugar do tumor com uma tesoura e, em seguida, separar o tumor do tecido saudável adjacente utilizando fórceps e tesouras.
NOTA: Dependendo da finalidade deo experimento executar esta e seguintes etapas sob condições assépticas. Neste estudo, todos os passos foram realizados em um capuz de cultura de células sob condições assépticas, a fim de ser capaz de cultivar as células. - Preparar a amostra de tumor para digestões por remoção de gordura (como isso fará com que a bóia de amostra) e áreas de necrose (como isso irá resultar em viabilidade diminuída), cortando-lo usando uma pinça e um bisturi. Picar o tecido em pedaços de 2 - 4 milímetros usando bisturi e pinça.
- Transferir os pedaços de tecido no tubo C que contém a mistura de digestão.
- Fechar o tubo C e verifique se ele está bem fechado. Encaixe de cabeça para baixo sobre a manga da Dissociator tecido de bancada e certificar-se de que os pedaços de tecido estão localizados na área do rotor / estator.
- Escolha o modo "h_tumor_01" premindo o botão "up" ou o botão "down" até que o modo aparece no visor e, em seguida, pressionando o botão "start".
- Se vocêcantar a função de aquecimento do Dissociator tecido de bancada, certifique-se também anexar o aquecedor. Em seguida, executar o modo 37C_h_TDK_1 (para tumores macios), 37C_h_TDK_2 (para tumores médio) ou 37C_h_TDK_3 (para tumores rígidos), clicando no símbolo da pasta na tela de toque até que a pasta "Miltenyi" aparece.
- Para escolher o modo, clique na seta acima ou abaixo até que o modo de dissociação 37C_h_TDK_2 é realçado. As mangas de tecido de bancada a Dissociator são descritos como posições no visor do dispositivo. Escolha as posições amostras são executados em, clicando-los na tela de toque. Pressione o botão "start" para executar o modo e continue com o passo 2.16.
NOTA: Dependendo do tipo de tumor outro programa de dissociação pode ser adequado (veja o passo 2.7.1).
- Observe uma janela mostrando "Rescisão do programa" na tela. Após o término do programa, retire C de metro da Dissociator tecido de bancada.
- Incubar amostra durante 30 min a 37° C sob rotação contínua, por exemplo, usando um rotor tubo.
- Após a incubação anexar C Tubo de cabeça para baixo sobre a manga da Dissociator tecido de bancada. Mais uma vez se certificar de que o material da amostra está localizado na área do rotor / estator.
- Executar o h_tumor_02 programa de dissociação (por tumores macio e médio) ou h_tumor_01 (para tumores rígidos), tal como descrito no passo 2.7.1.
- Após o término do programa, retire C de metro da Dissociator tecido de bancada.
- Incubar amostra durante 30 min a 37 ° C sob rotação constante.
- Anexar C Tubo de cabeça para baixo sobre a manga da bancada Dissociator tecido após a incubação. Mais uma vez se certificar de que o material da amostra está localizado na área do rotor / estator.
- Executar o programa h_tumor_03 dissociação (para os tumores moles), h_tumor_02 (para os tumores de tamanho médio) ou h_tumor_01 (para tumores rígidos), tal como descrito na etapa 2.7.
- Para recolher o material de amostra na parte inferior do tubo executar uma shoRT passo de centrifugação (100 xg de durante 10 seg).
- Ressuspender as células e aplicam-se a um filtro de células com 70 um tamanho nesh colocado em um tubo de 50 ml. Lavar o filtro de células com 20 ml de meio RPMI 1640 ou DMEM.
- suspensão de células centrifugar a 300 xg durante 7 minutos. Aspirar o sobrenadante completamente.
- Ressuspender as células em 5 ml de tampão para contagem. Proceda com mouse celular Esgotamento por separação magnética de células (seção 3).
3. Rato celular Esgotamento pela Cell Technology separação magnética
NOTA: Os volumes de rotulagem magnética abaixo indicados são para até 2 x 10 6 células tumorais ou 10 7 células totais, incluindo as células vermelhas do sangue. Dependendo do tamanho do tumor ou menor número de células mais elevadas serão obtidos. No caso de um número de células, usar os mesmos volumes como indicado. Ao usar o número de células maiores, a escala de todos os volumes de reagentes e volumes totais em conformidade (por exemplo, por 4 x 10 6 células tumorais ou 2 x 10 7 células totais, utilizar duas vezes o volume de todos os volumes de reagentes indicados e volumes totais).
- Determinar o número de células de uma aliquota de suspensão de células no passo de 2,21 usando um microscópio e a câmara adequada para contagem.
NOTA: neste ponto a suspensão de células é constituída por uma mistura heterogénea de células tumorais humanas, bem como as células estromais do rato e do sangue, incluindo glóbulos vermelhos. A composição das células depende fortemente do tipo de tumor e a região para o transplante. - Ao realizar a análise de citometria de fluxo após a remoção das células de rato retirar 100 mL alíquotas para tubos adequados para um para análise de citometria de fluxo de duas única cor controle da coloração imaculada e. Armazená-los no frigorífico a 2-8 ° C até que novas medidas de coloração (Seção 4).
- suspensão de células centrifugar a 300 xg durante 10 min. Descartar o sobrenadante.
- Ressuspender o sedimento celular em 80 ul de tampão por 2 x 10 6 células tumorais ou 10 7células totais Adicionar 20 ul de reagente de marcação magnética para células de ratinho.
- Misturar bem e incubar durante 15 min no refrigerador (2-8 ° C). Durante a etiquetagem magnética, preparar colunas de grande escala (LS colunas) para a separação magnética, colocando-o no campo magnético de um íman apropriado (ver Tabela de materiais e equipamento) de acordo com o protocolo do fabricante. Lavar a coluna com 3 ml de tampão.
- Ajustar o volume da amostra a 500 ul usando tampão durante até 2 x 10 células de tumor ou 6 até 10 7 células totais. (Até 1 x 10 7 células tumorais ou até 5 x 10 7 células totais podem ser processados em uma coluna LS. Ao trabalhar com mais células dividir a amostra em múltiplas LS Colunas).
- Ao realizar a análise de citometria de fluxo, análise molecular ou comparar frações em culturas, retirar uma alíquota de 50 ul de amostra indiferenciados. Armazená-lo no frigorífico a 2 - 8 ° C até ao respectivo processamento.
- Aplicar 500 ul da suspensão de células sobre a coluna previamente preparada. Recolhe-fluxo através contendo células alvo não marcadas, representando as células tumorais humanos enriquecidos.
NOTA: Ao trabalhar com números mais elevados de células-se a 2,5 ml de suspensão de células que foi preparado de acordo com o passo 3.5 pode ser aplicada a uma coluna. - Lavagem da coluna com 2 x 1 ml de tampão. Recolher as células que passam através de e combinar com o fluxo de passagem a partir do passo 3.6. Executar passos de lavagem por adição de alíquotas de tampão 1 ml, logo que o reservatório está vazio da coluna.
NOTA: O efluente contém células tumorais humanas purificadas. - Para recolher também as células de rato retidos na coluna, remover a coluna do separador e colocá-lo em um tubo adequado. Pipeta de 3 ml de tampão para a coluna e imediatamente usar o êmbolo para expulsar as células de rato, empurrando-o firmemente na coluna.
- Girar as frações e amostras de controlo a 300 xg durante 10 min. Aspirar supernatant completamente e Ressuspender as células em tampão, meio de cultura ou congelar sedimento em azoto líquido, dependendo da aplicação desejada a jusante.
4. As análises a jusante
- A coloração para análise de citometria de fluxo
NOTA: Antes de se proceder a mais análises a jusante, uma parte das células obtidas a partir de procedimento de depleção de células do rato podem ser analisadas (por exemplo, avaliar a pureza e rendimento) em citometria de fluxo.- Para as análises de citometria de fluxo, girar, pelo menos, 10% da fracção negativa e positiva obtida a partir de procedimento de separação magnética de células (secção 3), bem como as amostras de controlo de passo de 3,2 e 3,5 a 300 xg durante 10 min.
- Descartar o sobrenadante. Ressuspender o sedimento de células das amostras de controlo de coloração do passo 3.2 em 90 mL de tampão. Ressuspender as fracções obtidas a partir de procedimento de separação magnética de células em 80 ul de tampão.
- Adicionar 10 ml de rato FcR reagente de bloqueio a todosamostras. Misturar bem e incubar durante 5 min a 2-8 ° C num frigorífico.
- Adicionar 10 ul de anti-EpCAM humana com PE (anticorpo é igual a diluição de 1:10) e 25 ul de rato-anti-cocktail APC (igual a diluição de anticorpo de 1: 4) para as amostras de secção 3. Adicionar 10 ul de anti -sangue humano EpCAM-PE para uma amostra de controlo de cor única (corresponde a diluição do anticorpo de 1:10) e 10 ul de anti-EpCAM humana-APC para o outro (é igual a diluição de anticorpo de 1:10). Misture todas as amostras e incuba-se durante 10 min a 2-8 ° C num frigorífico.
NOTA: EpCAM não é adequado como marcador de células tumorais de qualquer tipo de tumor. No caso dos tumores usadas neste estudo de expressão de EpCAM era conhecido. - Para lavar as amostras, adicionar 1 ml de tampão de cada um e de rotação a 300 xg durante 5 min.
- Descartar o sobrenadante e ressuspender o sedimento de células a uma concentração para a análise de citometria de fluxo. Para excluir as células mortas adiciona-se iodeto de propídio (1 ug / ml).
- Realizar análise de citometria de fluxo utilizando um f adequadobaixo citómetro de acordo com os protocolos do fabricante.
- Cultivo de células tumorais humanas
NOTA: Para além da citometria de fluxo, as células obtidas a partir do processo de separação pode ser cultivado e utilizados para mais ensaios in vitro.- Ressuspender a fracção classificados da secção 3 em meio de cultura a uma concentração de 5 x 10 5 culas / ml.
NOTA: Dependendo do revestimento tipo de tumor, densidade de semeadura adequada e condições de cultivo podem diferir. - Adicionar 500 ul de suspensão de células nas cavidades de uma placa de 24 poços revestidas com 0,1% de gelatina.
- Incubar as células numa incubadora de cultura de células a 37 ° C e 5%.
NOTA: As condições de cultura óptimas dependem do tipo de tumor utilizado. Portanto, aplicar condições de cultura adequadas para o tipo de tumor utilizado.
- Ressuspender a fracção classificados da secção 3 em meio de cultura a uma concentração de 5 x 10 5 culas / ml.
- Coloração por imunofluorescência de células cultivadas
- Preparar solução de bloqueio através da adição de 10% de FCS e 0,1%Triton X-100 a PBS 1x.
- meio de cultura de descarte. Adicionar 500 ul de 1x PBS por poço para lavar as células. Incubar durante 2 min à temperatura ambiente (TA), depois descartá 1x PBS completamente.
- Fixar as células por adição de 300 ul de uma solução a 4% de PFA. Incubar à temperatura ambiente durante 15 min.
- Eliminar a solução PFA. Lavar as células fixadas 3 vezes como indicado no passo 4.3.2.
- Realizar permeabilização e bloqueio por adição de 300 ul de bloqueio por poço. Incubar à temperatura ambiente durante 30 min.
- Eliminar a solução de bloqueio. Lavar as células, tal como indicado no passo 4.3.2.
- Adicionar 300 uL de anticorpo primário diluído em solução de bloqueio para as células. Anticorpo humano anti-EpCAM é diluída 1:40, vimentina anticorpo é diluído 1: 200. Incubar durante a noite a 2-8 ° C.
Nota: Os anticorpos utilizados não são adequados para qualquer tipo de tumor como EpCAM não pode ser expresso em células tumorais e / ou vimentina também é expresso pelas células do tumor. Certifique-se os anticorpos utilizados são adequados para o mo xenotransplantedel. - Eliminar a solução de anticorpo primário. Lavar as células 3 vezes, conforme indicado no passo 4.3.2.
- Adicionar 300 uL de anticorpo secundário diluído em solução de bloqueio para as células. Ambos os anticorpos anti-IgG de coelho-Alexe594 e anti-IgG de ratinho-Alexa488 são diluídos 1: 400. Incubar durante 1 h no escuro a temperatura ambiente.
- Eliminar a solução de anticorpo secundário. Lave as células 2 vezes, como indicado no passo 4.3.2.
- Adicionar 300 ul de solução DAPI (0,1 ug / ml) a cada poço. Incubar durante 10 min no escuro à temperatura ambiente.
- Eliminar a solução DAPI. Lavar as células 3 vezes, conforme indicado no passo 4.3.2.
- Adicionar 500 ul de 1x PBS a cada poço. Realizar a microscopia de fluorescência utilizando um microscópio adequado.
- Sequencing exome toda
- Para exome sequenciamento (WES) pelotas congelar inteiras a partir do passo 3.9 em nitrogênio líquido. Loja e recolher amostras a -80 ° C.
- Depois de recolher as células, execute captura exome e toda seq exomeuencing de acordo com as instruções do fabricante do respectivo kit (ver Tabela de Materiais e Equipamentos).
Resultados
Diferentes abordagens têm sido propostas para identificar ou empobrecem células de ratinho a partir de tumores humanos xenoenxertados, por exemplo, uma combinação de anticorpos específicos de ratinho contra CD45 e MHC de classe I. No entanto, apenas a sub-populações de células de ratinho foram detectados utilizando essas combinações passo que a combinação proposta de CD45 detectado e MHC classe I expressando células de ratinho, bem como o resto das células de rato foram encontrados em tecidos-alvo para o transplante (Figura 1). Utilizando esta nova combinação de anticorpos para separação de células magnético, as células tumorais humanas pode ser isolado independente do tipo de tumor (Figura 2).
As células obtidas a partir de células de remoção magnético de separação de células baseado no procedimento de rato poderia ser cultivadas, levando a culturas puras de células de tumores humanos (Figura 4). Além disso, as células viáveis de ratinho pode ser obtido e cultivado a partir damesma amostra. Além disso a remoção de células de ratinho, também detritos foram removidos após a depleção de células de ratinho (MCD) (Figura 3).
O esgotamento completo de células de rato, bem como levar remoção de detritos para a melhoria das análises a jusante moleculares. Isto foi demonstrado por comparação dos resultados obtidos a partir de toda exome sequenciação (WES) levadas a cabo em peças tumorais a granel e amostras de células esgotadas de ratinho a partir de três diferentes modelos de xenoenxerto de tumor derivadas de doentes (Figuras 5 - 9). Os nossos dados indicam que a remoção de células de ratinho antes de realizar WES em amostras de tumor de xenoenxerto aumenta não só significativamente a quantidade total de lê-se (Figura 5), mas também reduz consideravelmente o número de série derivada lê mapeado para o genoma humano de referência (Figura 6B). Como estes rato erroneamente mapeados lê frequentemente interferir com SNP vocação, observou-se uma forte redução da falsamente previstoSNPs após MCD (Figuras 7-8). Finalmente, mostrámos que a remoção in silico de derivados de rato lê através de métodos de bioinformática não pode substituir totalmente o procedimento experimental, tal como uma atribuição não ambígua à base de sequência para a espécie de origem não foi possível para todas as leituras. Além disso, o procedimento em silício não podia correcta para a qualidade melhorada e maior cobertura concomitante de leitura in vitro empobrecido amostras (Figura 9).
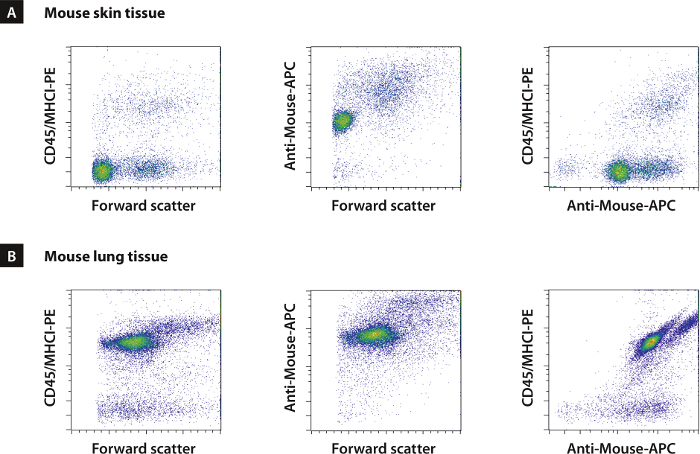
Figura 1. Estabelecimento de um cocktail de anticorpos Reconhecendo Todas as células de rato através de múltiplos órgãos 14. Screenings em vários órgãos, incluindo a pele, pulmão, cérebro, rins e músculo esquelético, foram realizados. Estes órgãos representam os principais tecidos alvo para xenotransplante. Combinações tais como aqueles mou reconhecendose CD45 e classe I epítopos MHC já foram utilizados, a fim de destruir as células do rato após xenotransplante. No entanto, estas combinações reconhecido marcador apenas um subconjunto de células de ratinho em todos os tecidos analisados. Em rastreios anteriores uma combinação de cinco anticorpos foi identificado permitindo a detecção completa de todas as células de origem em ratinho. Este painel inclui as células vermelhas do sangue e é independente do tecido de origem (A, B, e dados não mostrados). Modificado de 14. Por favor clique aqui para ver uma versão maior desta figura.
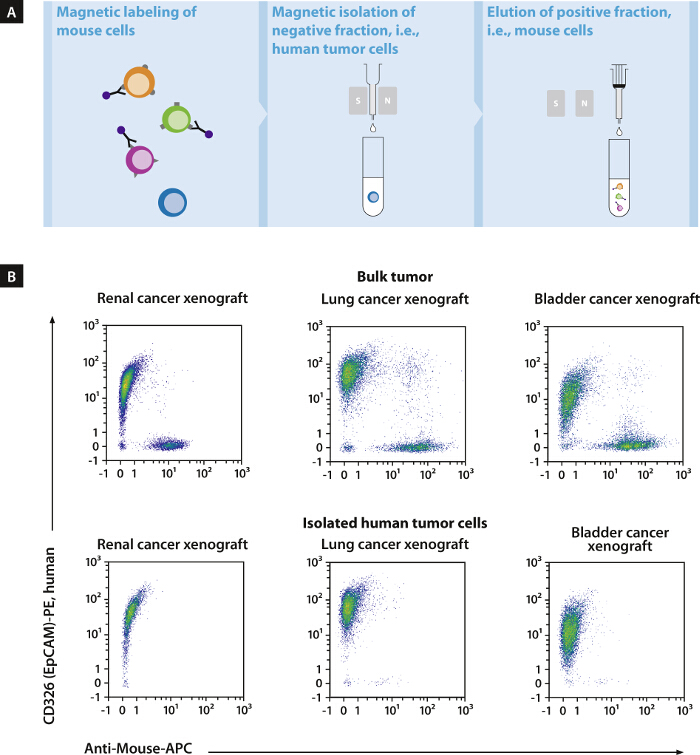
Figura 2. Esgotamento confiável e rápida de células de rato 15. Os conjugados da combinação anticorpo com superparamagnético nanoparticles foram usados para desenvolver um protocolo optimizado para a depleção de células de ratinho a partir de xenoenxertos de tumor humano por célula magnética triagem (separação magnética de células) (A). Este protocolo de novo permitido para a eliminação de> 99% de contaminação de células de ratinho, em menos de 20 minutos, independentemente do tipo de tumor. Fracções de células obtidas a partir de procedimento de separação magnética de células foram marcadas com o cocktail de pan-ratinho e o anticorpo um anticorpo específico contra CD326 humana (EpCAM) (B). Modificado de 15. Por favor clique aqui para ver uma versão maior desta figura.
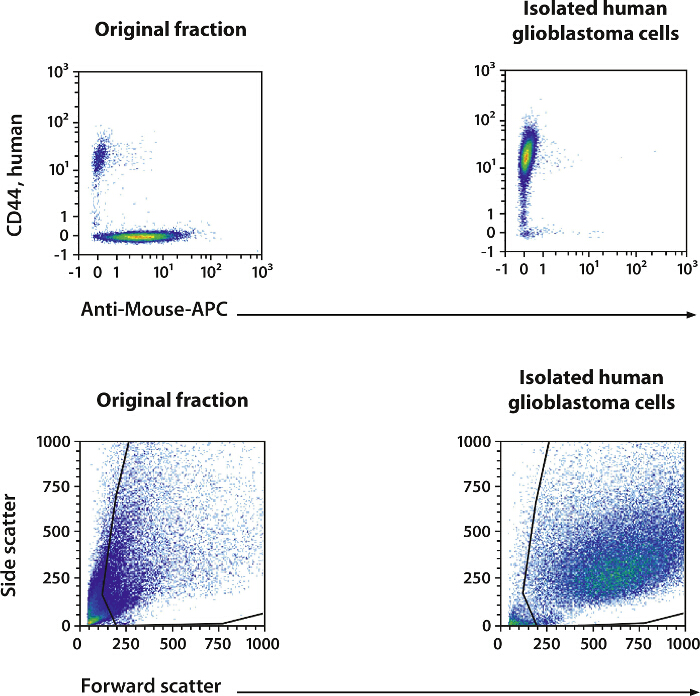
Figura 3. Isolamento de células de glioblastoma humano. Mouse Kit celular depleção foi usada para isolar as células de glioblastoma humano adulto de compue cérebro. Durante a dissociação de tecidos neurais grandes quantidades de detritos é normalmente gerado. MCDK eficiente esgota as células mortas e detritos como pode ser visto pelo gráfico que mostra o tamanho de células versus granularidade celular. Com este cocktail conjugado, foi possível eliminar> 99% das células de rato contaminantes e> 60% dos detritos. Por favor clique aqui para ver uma versão maior desta figura.
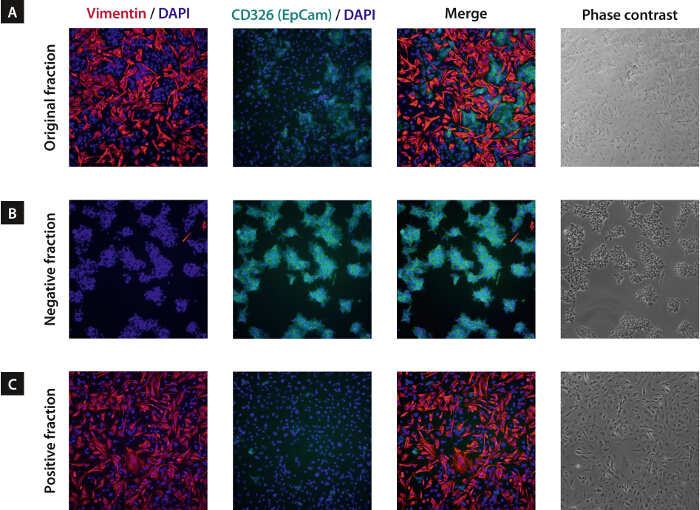
Figura 4. A depleção de células de ratinho Facilita a jusante culturas de células tumorais humanas 14. Fibroblastos de ratinho frequentemente dificultar o cultivo de células tumorais humanas após a dissociação de tecidos transplantados ou para levar culturas heterogéneas. Fibroblastos anexar e expandir de forma mais eficiente, overgrowing, assim, alvo c ells. Isto perturba em ensaios de cultura de células in vitro (por exemplo, drogas testes de citotoxicidade), uma vez que a correção matemática para efeitos decorrentes da contaminação de células de rato é impossível na maioria dos casos. O negativo (B) e as fracções positivas (C) após a depleção de células de rato foram cultivadas durante três dias, fixadas e coradas para um marcador específico da de fibroblastos de rato (vimentina) e o marcador de tumores específicos de CD326 humana (EpCAM). Como um controlo, a fracção original contendo células não separadas (A) foi cultivada e coradas bem. Mesmo após três dias de cultura, observou-se uma população praticamente puro de células de tumores humanos na fracção negativa (B), enquanto que a fracção não triados (A) era quase coberto por fibroblastos. Apenas uma pequena porção de células alvo foi perdido para a fracção positiva (C). Modificado de 14.ge.jpg "target =" _ blank "> Clique aqui para ver uma versão maior desta figura.
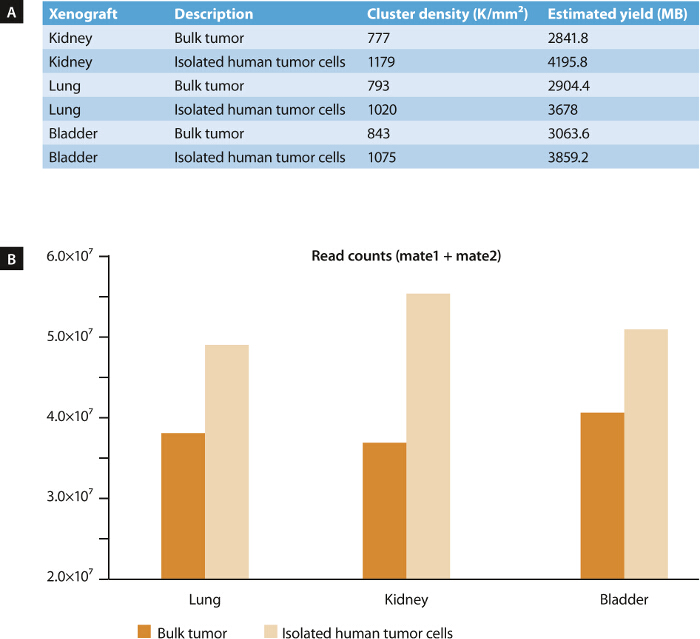
Figura 5. Whole exome Sequencing (WES) de amostras de tumor Antes e depois mouse depleção de células (MCD) 15. Realizamos WES em três modelos de xenotransplante de diferentes derivadas de rim humano, pulmão e cancro da bexiga, a fim de avaliar o impacto da MCD em a qualidade dos dados sequenciamento de última geração. ADN a partir de grandes quantidades de tumor e de células tumorais isoladas após a depleção de células de ratinho foi utilizado para gerar bibliotecas de sequenciação capturado-exome aplicando um kit de captura de exome. Para a sequenciação num sequenciador instrumento área de trabalho, um kit de reagentes sequenciador de mesa 150 ciclos, foi utilizado para gerar 75-bp-emparelhado final lê. Um aumento significante (p <0,05) na densidade do aglomerado (A), bem como uma averaiva aumento nas contagens de leitura de 33% (B) foi observada para as amostras depletados de células de ratinho, indicando a melhoria da qualidade da amostra. Correspondentemente, uma forte redução de resíduos e células mortas após MCD também pode ser demonstrada por análise de citometria de fluxo (ver Figura 3). Modificado de 15. Por favor clique aqui para ver uma versão maior desta figura.
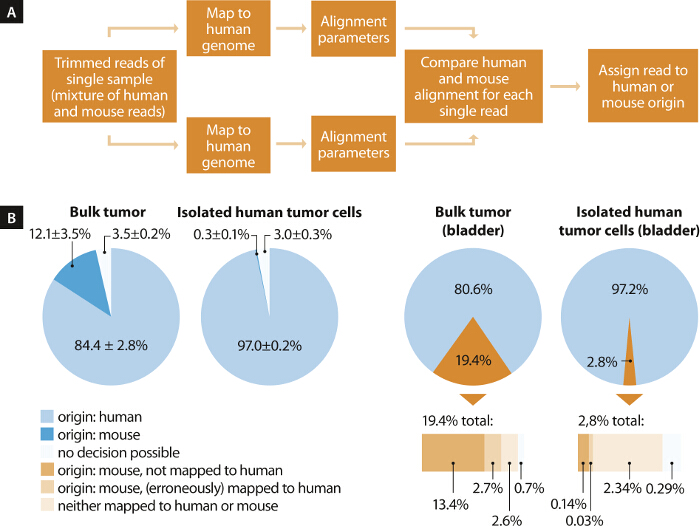
Figura 6. Rato celular Esgotamento (MCD) reduz fortemente o Número de rato Erroneamente mapeada Lê após Whole exome Sequencing (WES) 15. Como oligonucleotídeos captura utilizadas para o enriquecimento alvo de sequências codificantes de proteínas foram projetados com base no genoma humano, um pré-inicial enriquecimento de fragmentos de ADN de origem humana FRom a mistura de células de ratinho e humanas era esperado. A fim de avaliar o número de oligonucleotídeos de captura que pode cruzar-hibridizam com o DNA genómico de ratinho, realizamos pesquisas BLAST de cada única sonda de captura exome rápida contra o genoma do rato. Os parâmetros de alinhamento resultantes foram utilizados para determinar a possível hibridação cruzada. (.. Comprimento do alinhamento, não de desemparelhamentos, nenhuma das lacunas) Dependendo dos limiares de selecção, previmos uma reactividade cruzada de 5 - 10% de sondas de captura com transcritos de rato (dados não apresentados). Depois recorte adaptador (v0.32 trimmomatic 16), mapeamos as leituras de todas as amostras contra genomas humano e do rato (BWA v0.7.12 17) e determinou sua origem putativa com base nos respectivos parâmetros de alinhamento (shell LINUX, de linha de comando Perl) (A). Uma média de 12% de leituras derivada a partir de amostras tumorais em massa foi atribuído a células de ratinho. Este valor pode ser reduzido para 0,3% por depleção antes de células de ratinho (B ). Como, em média, 15% das leituras mapeado erroneamente para o genoma humano, o que corresponde a 1,9% do total lê nas amostras de tumores grandes quantidades e derivados de rato 0,04% nas células de tumor isolados, uma forte influência positiva de depleção de células do rato em análises a jusante pode ser esperada. a Figura 6B ilustra a atribuição de leitura detalhada para grandes quantidades de tumor e células de tumor humanas isoladas derivadas do xenoenxerto de cancro da bexiga. Modificado de 15. Por favor clique aqui para ver uma versão maior desta figura.
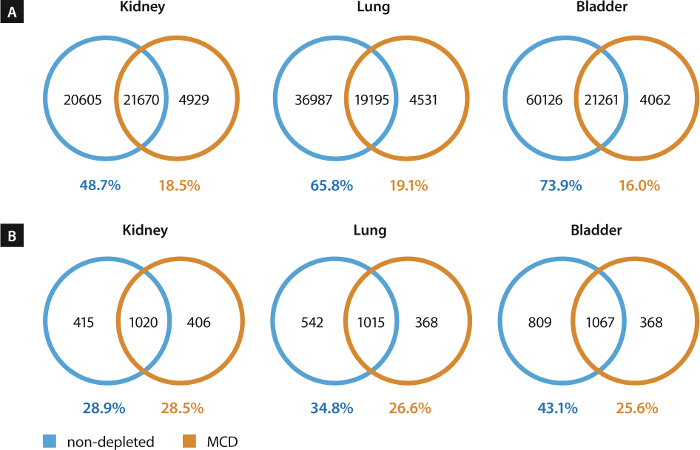
Figura 7. MCD reduz fortemente o do Número de SNPs Falsamente Previsto 15. De modo a determinar o impacto de rato lê mapeado para o genoma humano, determinou-se o número de predicteSNPs d para as amostras de xenotransplante antes e depois MCD. Como nenhum tecido saudável estava disponível para comparação, um SNP foi definida como a diferença entre a amostra e sequenciado o genoma de referência (hg19). Após a remoção do duplicado lê, SNP e INDEL chamada foi realizada 18 e era restrita às regiões abrangidas por um kit de captura exome. 63 ± 10% de todos os SNPs previsto para as amostras de tumor a granel não foram detectados após a depleção de células de rato, de 18 ± 1% eram específicos para as células de tumores humanos isolados (A). Enquanto o primeiro foi causada principalmente pelo rato erroneamente mapeados lê o último parecia ser detectado devido a contagens de leitura mais altas e cobertura proporcionalmente mais elevados dentro das amostras de células tumorais humanas isoladas. Este efeito também foi visível durante Indels previstos (B). Modificado de 15. Por favor clique aqui para ver uma versão maior destafigura.
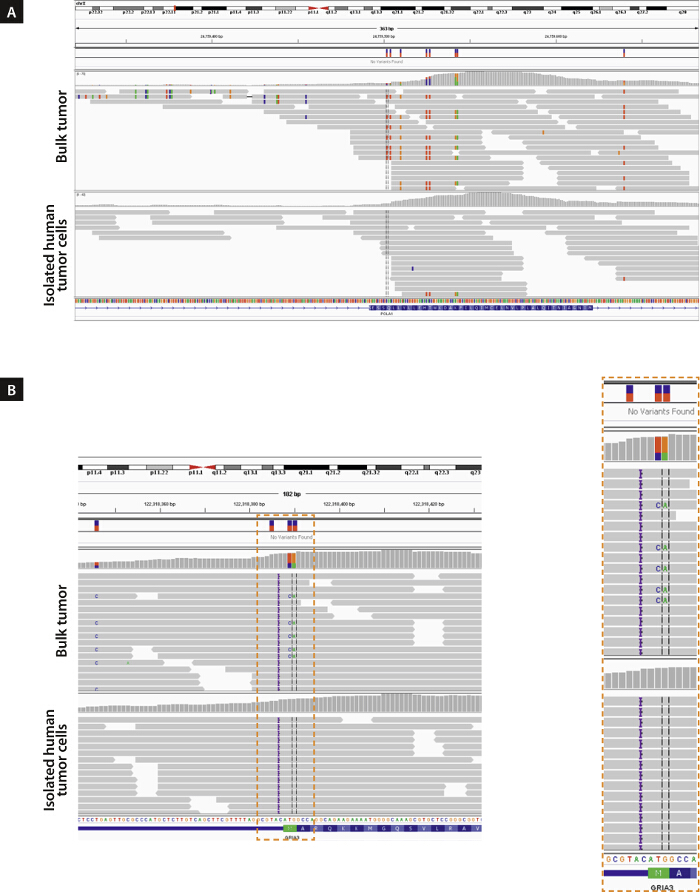
Figura 8. MCD Melhora a predição de alto impacto SNPs 15. (A) Impacto da MCD na previsão SNP dentro de um exão de codificação da proteína do gene Pola1 19 é exemplificada. Enquanto rato erroneamente mapeados lê causou um número de SNPs falsamente previstos no xenoenxerto de câncer de rim em massa, estes SNPs estão desaparecidos depois MCD. Além disso, MCD também melhorou a predição de alto impacto SNPs. Por exemplo, rato lê mapeado para o genoma humano de referência na amostra de tumor em massa resultou na destruição erradamente prevista do codão de iniciação do gene GRIA3 (B). Modificado de 15. Por favor clique aqui para ver uma versão maior desta figura.
s = "jove_content" fo: manter-together.within-page = "1"> 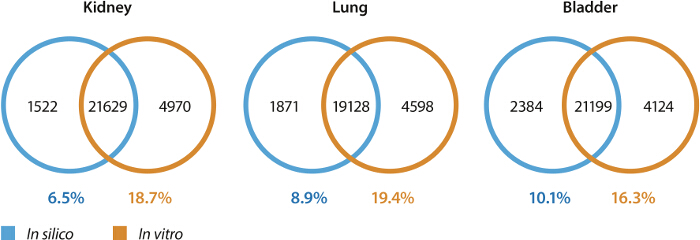
Figura 9. In Silico Esgotamento de Mouse-derivado Lê não pode inteiramente Substituir I n Vitro MCD 15. A lê previsto para ser de origem de rato foram computacionalmente removido a partir dos dados de sequenciação e SNP chamada foi repetida. Por esta abordagem, o número de SNPs previsto para as amostras de tumor a granel foi consideravelmente reduzido de 63% para 8,5% do número total de SNPs (comparar com a Figura 8). No entanto, esta abordagem em silício não pode substituir completamente em MCD vitro, especialmente, se a qualidade da amostra melhorada e o aumento concomitante nas contagens de leitura e de cobertura são considerados. Modificado de 15."_blank"> Por favor clique aqui para ver uma versão maior desta figura.
Discussão
Nós desenvolvemos um método fácil e rápido para isolar células tumorais humanas intactas a partir de tecido de tumor xenoenxertado. Este procedimento baseia-se no esgotamento completo de células de origem em ratinho por combinação de dissociação de tecido automatizada e separação de células magnético. Além da depleção de todas as células de ratinho também a quantidade de células mortas e detritos é significativamente reduzida na fracção de células alvo. Tomados em conjunto, este método melhora significativamente a jusante análises moleculares e cultivo de células de tumores humanos.
Em contraste com métodos alternativos, não há necessidade do conhecimento dos marcadores específicos de células tumorais, ajuste a diferentes composições de células de ratinho ou criação de algoritmos. O método apresentado é independente da estirpe de rato e do tipo de tumor. Portanto, uma polarização através do isolamento de subpopulações de tumores humanos, com base em marcadores específicos humanos individuais, que podem variar na expressão, como mostrado para o EpCAM 11, é evitarEd. Além disso, não se limita ao material de tumor, mas pode ser utilizado para qualquer tipo de tecido xenotransplantadas como células de ratinho são segmentados, em vez de sub-populações específicas de tumores humanos (dados não mostrados).
remoção completa de células de rato é facilitada pela segmentação epítopos de superfície expressas exclusivamente em células de origem mouse. Para além do método bem estabelecido para a dissociação do tumor, tal como apresentado no presente estudo, existem muitos procedimentos que utilizam diferentes tipos de enzimas. A preservação de epitopos de superfície de células é um pré-requisito para este novo método, mas também para análises precisas de populações de células tumorais humanas. Portanto, é essencial que as enzimas suaves são utilizadas para a digestão do tecido tumoral. Assim, a depleção de células do rato apenas pode ser utilizado em combinação com processos de digestão enzimática que, evidentemente, não afectam os epítopos alvejados durante o procedimento de depleção de células do rato. Em caso de dúvida, esta só pode ser verificada por meio do respectivo fabricante.
Este método também funciona para células tumorais circulantes (CTCs) humanos. No entanto, como as frequências das células alvo são geralmente <0,1% de remoção de células de ratinho, adicionalmente, requer a lise das células vermelhas do sangue e graus de pureza de mais de 50% não se pode esperar. Neste caso, a depleção de células de rato pode ser utilizado como pré-enriquecimento dos CTC seguido por um enriquecimento utilizando marcadores positivos (dados não mostrados).A remoção de células de ratinho, melhora significativamente a cultura de células de tumores humanos, evitando overgrow cultura de fibroblastos de rato. Além disso, a análise de xenoenxertos de tumor humano por sequenciação de última geração é significativamente melhorada e padronizada. Como este efeito foi observado embora uma selecção específica de sequência humana alvo foi realizada durante o enriquecimento exome, a influência sobre o genoma inteiro e toda a sequenciação transcriptoma se espera que sejam ainda mais proeminente.
Além disso, o método apresentado facilita accuraEstudos moleculares te de subpopulações tumorais dentro de tumores humanos xenotransplantadas. A remoção de células de ratinho a partir de uma amostra respectiva no primeiro passo e, subsequentemente, a triagem de células tumorais humanas em duas subpopulações diferentes permite a comparação directa molecular da sub-população de tumor de interesse para células de tumor humano em massa 20. Expressão diferencial de genes entre os subtipos de células de tumor pode ser avaliada de forma mais fiável, uma vez que não é afectada por hibridação cruzada de moléculas derivadas de rato.
Divulgações
David Agorku, Stefan Tomiuk, Stefan Wild, Silvia Rüberg, Lisa Zatrieb, Andreas Bosio e Olaf Hardt são ou foram funcionários da Miltenyi Biotec GmbH, Alemanha. Kerstin Klingner e Julia Schüler são funcionárias da Oncotest GmbH, Alemanha.
Agradecimentos
Agradecemos a Janina Kuhl, Nadine Chelius, Petra Kussmann, Lena Willnow e Dorothee Lenhard pela excelente assistência técnica.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Kit de dissociação tumoral, humano | Miltenyi Biotec | 130-095-929 | contém enzimas H, R e A; consulte a folha de dados para obter instruções de reconstituição |
| RPMI 1640 | Biowest | L0501-500 | |
| gentleMACS C-Tubes | Miltenyi Biotec | 130-096-334 | |
| gentleMACS Octo Dissociator com aquecedores | Miltenyi Biotec | 130-096-427 | |
| MACS SmartStrainer (70 µ m) | Miltenyi Biotec | 130-098-462 | |
| Placa de Petri 100 mm | Bisturi | ||
| Kit de Depleção de Células de Camundongo | Miltenyi Biotec | 130-104-694 | |
| PBS | Vários | usos 1x PBS para tampão | |
| PEB EDTA | Sigma-Aldrich | 3610 | uso concentração final de 2 mM em tampão PEB |
| BSA | Miltenyi Biotec | 130-091-376 | ou use 5 mg/L BSA em buffer PEB |
| MACS LS colunas | Miltenyi Biotec | 130-042-401 | |
| Separador QuadroMACS | Miltenyi Biotec | 130-090-976 | |
| MACS MultiStand | Miltenyi Biotec | 130-042-303 | |
| Filtros PreSep (70 µ m) | Miltenyi Biotec | 130-095-823 | |
| MACSmix Rotador de Tubo | Miltenyi Biotec | 130-090-753 | |
| CD326-FITC, humano | Miltenyi Biotec | 130-080-301 | use 1:40 para coloração de imunofluorescência |
| anticorpo anti-Vimentina | abcam | ab92547 | |
| cabra-anti-rato IgG-Alexa488 | Life Technologies | A11029 | |
| cabra-anti-coelho IgG-Alexa594 | Life Technologies | A11012 | |
| DAPI | Sigma-Aldrich | D9542 | diluir a uma concentração final de 0,1 µ g/ml em bicarbonato de sódio 0,1 M |
| Kit de Coloração Interna | Miltenyi Biotec | 130-090-477 | InsideFix deste kit pode ser usado para etapa de fixação durante a coloração de imunofluorescência |
| FBS | Vários | ||
| Triton X-100 | Reagente de Bloqueio Sigma-Aldrich | 93418 | |
| FcR, mouse | Miltenyi Biotec | 130-092-575 | |
| Gelatina | Sigma-Aldrich | G2500-100g | |
| Nextera Kit de Enriquecimento de Captura Rápida | Illumina | FC-140-1000 | |
| Kit de Reagente MiSeq v3 | Illumina | MS-102-3001 |
Referências
- Daniel, V. C., et al. A primary xenograft model of small-cell lung cancer reveals irreversible changes in gene expression imposed by culture in vitro. Cancer Res. 69 (8), 3364-3373 (2009).
- Tentler, J. J., et al. Patient-derived tumour xenografts as models for oncology drug development. Nat Rev Clin Oncol. 9 (6), 338-350 (2012).
- DeRose, Y. S., et al. Tumor grafts derived from women with breast cancer authentically reflect tumor pathology, growth, metastasis and disease outcomes. Nat Med. 17 (11), 1514-1520 (2011).
- Siolas, D., Hannon, G. J. Patient-derived tumor xenografts: transforming clinical samples into mouse models. Cancer Res. 73 (17), 5315-5319 (2013).
- Wong, S. Q., et al. Targeted-capture massively-parallel sequencing enables robust detection of clinically informative mutations from formalin-fixed tumours. Sci Rep. 3, 3494(2013).
- Sausville, E. A., Burger, A. M. Contributions of human tumor xenografts to anticancer drug development. Cancer Res. 66 (7), 3351-3354 (2006).
- Rubio-Viqueira, B., Hidalgo, M. Direct in vivo xenograft tumor model for predicting chemotherapeutic drug response in cancer patients. Clin Pharmacol Ther. 85 (2), 217-221 (2009).
- Reubinoff, B. E., Pera, M. F., Fong, C. Y., Trounson, A., Bongso, A. Embryonic stem cell lines from human blastocysts: somatic differentiation in vitro. Nat Biotechnol. 18 (4), 399-404 (2000).
- Merk, J., Rolff, J., Becker, M., Leschber, G., Fichtner, I. Patient-derived xenografts of non-small-cell lung cancer: a pre-clinical model to evaluate adjuvant chemotherapy. Eur J Cardiothorac Surg. 36 (3), 454-459 (2009).
- Baiocchi, M., Biffoni, M., Ricci-Vitiani, L., Pilozzi, E., De Maria, R. New models for cancer research: human cancer stem cell xenografts. Curr Opin Pharmacol. 10 (4), 380-384 (2010).
- Gires, O., Stoecklein, N. H. Dynamic EpCAM expression on circulating and disseminating tumor cells: causes and consequences. Cell Mol Life Sci. 71 (22), 4393-4402 (2014).
- Zhang, C. C., et al. Synergistic effect of the gamma-secretase inhibitor PF-03084014 and docetaxel in breast cancer models. Stem Cells Transl Med. 2 (3), 233-242 (2013).
- Boven, E., et al. Phase II preclinical drug screening in human tumor xenografts: a first European multicenter collaborative study. Cancer Res. 52 (21), 5940-5947 (1992).
- Agorku, D., Hardt, O., Bosio, A. Depletion of mouse cells from human tumor xenografts significantly reduces bias in molecular analysis and improves culture of target cells. Abstract 95. , AACR. (2014).
- Agorku, D., et al. Next-generation sequencing of human tumor xenografts is significantly improved by prior depletion of mouse cells. Abstract 1455. , AACR. (2015).
- Bolger, A. M., Lohse, M., Usadel, B. Trimmomatic: a flexible trimmer for Illumina sequence data. Bioinformatics. 30 (15), 2114-2120 (2014).
- Li, H., Durbin, R. Fast and accurate short read alignment with Burrows-Wheeler transform. Bioinformatics. 25 (14), 1754-1760 (2009).
- Koboldt, D. C., Larson, D. E., Wilson, R. K. Using VarScan 2 for Germline Variant Calling and Somatic Mutation Detection. Curr Protoc Bioinformatics. 44, (2013).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Aloia, A., et al. The sialyl-glycolipid stage-specific embryonic antigen 4 marks a subpopulation of chemotherapy-resistant breast cancer cells with mesenchymal features. Breast Cancer Res. 17 (1), 146(2015).
Reimpressões e permissões
