A ativação do Ser/Thr kinase multifuncional AURKA é marcada por sua autofosforilação em Thr288. Sondas fluorescentes que dependem de FRET podem discriminar entre seus estados inativos e ativados. Aqui, ilustramos algumas estratégias para a engenharia de sondas, juntamente com um protocolo RÁPIDO DE FRET para acompanhar a ativação da quinase ao longo da mitose.
Artigo de método
Monitoramento em tempo real da aurora quinase Uma ativação usando biosensores de FRET conformacional em células vivas
Neste artigo
Resumo
Resumo
Os cânceres epiteliais são frequentemente marcados pela superexpressão da Aurora A/AURKA ser/thr quinase. AURKA é uma proteína multifuncional que se ativa em sua autofosforilação em Thr288. AURKA abundância picos em mitose, onde controla a estabilidade e a fidelidade do fuso mitotístico, e a eficiência geral da mitose. Embora bem caracterizado no nível estrutural, falta um monitoramento consistente da ativação da AURKA ao longo do ciclo celular. Uma possível solução consiste em usar biosensores de transferência de energia de ressonância (FRET) geneticamente codificados para obter insights sobre a autofosforilação da AURKA com resolução espostetemporal suficiente. Aqui, descrevemos um protocolo para projetar biosensores FRET detectando a autofosforilação de Thr288, e como seguir essa modificação durante a mitose. Primeiro, fornecemos uma visão geral dos possíveis pares FRET doadores/aceitadores, e mostramos possíveis métodos de clonagem e inserção de biosensores AURKA FRET em células de mamíferos. Em seguida, fornecemos uma análise passo-a-passo para medições rápidas de FRET por microscopia de imagem de vida fluorescência (FLIM) em uma configuração personalizada. No entanto, este protocolo também é aplicável a soluções comerciais alternativas disponíveis. Concluímos considerando os controles FRET mais adequados para um biosensor baseado em AURKA e destacando possíveis melhorias futuras para aumentar ainda mais a sensibilidade desta ferramenta.
Introdução
Aurora quinase A/AURKA é uma quinase serina/threonina multifuncional, ativa em todo o ciclo celular e em diferentes compartimentos subcelulares1. Compreender sua ampla ativação esposteral é particularmente importante no câncer, uma vez que a AURKA é frequentemente superexpressa em malignidades epiteliais e hematológicas, com pacientes mostrando baixa receptividade às terapias atualmente disponíveis2.
Estudos estruturais revelaram que a AURKA passa por duas etapas para converter de uma quinase inativa para uma quinase ativa. Primeiro, a autofosforilação de Thr288 altera a conformação do bolso cinético da quinase e a ativa3,4,5,6. Esta etapa aumenta a atividade catalítica da AURKA em células humanas e em Xenopus laevis3,6,7, escorraçando a quinase para a atividade completa. Uma vez ativada, a interação da AURKA com a proteína de alvo para Xklp2 (TPX2) induz uma segunda alteração conformacional5. Esta nova modificação permite que a AURKA atinja atividade enzimática completa em direção aos seus substratos na célula5,8,9,10.
Durante quase duas décadas, insights sobre a ativação e atividade da AURKA foram obtidos principalmente através de uma combinação de abordagens bioquímicas. Estes incluem a detecção de Thr288 fosforilado em células ou in vivo como uma marca registrada da ativação aURKA, análises cristalográficas e ensaios in vitro ou em celulose quinase para sondar a atividade de AURKA1. No entanto, a resolução espesso dessas abordagens é ruim ou ausente, e novas soluções foram necessárias para ampliar o conhecimento da dinâmica desses dois eventos.
O desenvolvimento de sondas fluorescentes nos últimos anos facilitou o monitoramento da AURKA em células vivas, permitindo o seguinte de sua ativação com maior resolução espacial. Os sensores mais específicos para a AURKA desenvolvidos até agora contam com o princípio FRET (Förster's Resonance Energy Transfer)11 para discriminar entre a AURKA inativa e ativa. O primeiro sensor desenvolvido foi um biosensor baseado em substrato de atividade de quinase AURKA. Os biosensores à base de substrato são constituídos por uma sequência aminoádica curta, alvo de uma dada quinase para fosforilação, e inseridos dentro de um par FRET doador/acceptnte e um domínio de ligação reconhecendo o resíduo fosforilado, que ajuda a dobrar o biosensor para um processo TRAT12 eficiente. No caso da AURKA, um fragmento de 14 aminoácidos de KIF2C alvo de fosforilação foi inserido entre um par de doadores/aceitadores CFP-YFP13. No entanto, este sensor tem algumas grandes desvantagens. Primeiro, a sequência KIF2C usada nesta sonda pode ser direcionada tanto pela AURKA quanto pela Quinase AURKB intimamente relacionada, diminuindo assim a especificidade deste biosensor. Em segundo lugar, o sensor conta com a quinase endógena para fosforilação. Portanto, a eficiência do FRET pode ser indetectável ou não significativa se as quantidades da quinase forem limitantes (por exemplo, em compartimentos subcelulares ou fases de ciclo celular). Para superar essas limitações, uma nova classe de sensor AURKA foi criada conhecida como "sensores conformacionais". Nestas sondas, a sequência completa de AURKA foi inserida dentro de um fluoróforo doador no N-terminus, e um fluoróforo aceitor no C-terminus. A AURKA inativa apresenta uma conformação "aberta", que afasta o N e c-termini da quinase um do outro. Com tal distância entre os dois termini (> 10 nm), o par doador/aceitor está em uma configuração não permissiva para FRET. Pelo contrário, a AURKA autofosforilada adota uma conformação "fechada", com as duas proteínas termini e as duas fluoroforos próximas. Isso foi demonstrado para permitir o FRET entre o doador e o aceitor, que pode ser medido utilizando-se as variações na vida do doador14,15. Tais sondas apresentam várias vantagens. Primeiro, eles são geneticamente codificados, e eles podem ser usados para substituir a quinase endógena na célula. Em segundo lugar, eles resgatam os fenótipos induzidos pelo knockdown da AURKA, indicando que eles são funcionais na célula. Em terceiro lugar, permitem acompanhar a ativação da quinase em diferentes compartimentos subcelulares e ao longo do ciclo celular. As sondas detectaram a ativação da AURKA em locais onde a quinase é conhecida por ser ativada (ou seja, centrosos e o fuso mitotístico), e também participaram na descoberta da ativação da AURKA nas mitocôndrias16. Por último, esses sensores permitiram triagens de alto teor baseados em FRET/FLIM, onde as alterações conformais da AURKA foram usadas para identificar novos inibidores farmacológicos17.
No presente trabalho, descrevemos um procedimento para visualizar a ativação da AURKA em células cultivadas. Primeiro, vamos fazer uma visão sobre potenciais pares fluoróforos para fret. A escolha do par de doadores/aceitadores mais adequados será feita de acordo com a configuração disponível do microscópio, ou uma aplicação particular a jusante como multiplex FRET18,19. Em seguida, propomos um pipeline para explorar o comportamento do biosensor(s) escolhido em uma rápida configuração de microscópio FRET/FLIM. Este gasoduto se estenderá desde procedimentos de cultura celular e sincronização até aquisição e análise de dados da FLIM. Por último, discutiremos as vantagens potenciais deste protocolo, pois uma estratégia análoga para o design de biosensor poderia ser aplicada a outros quinases, e também pode ser usada com outros sistemas de imagem baseados em FRET.
Protocolo
NOTA: As células U2OS utilizadas neste protocolo foram adquiridas da American Type Culture Collection (ATCC, HTB-96), e foram testadas gratuitamente do mycoplasma. O passo 2.1 a 2.7 deve ser realizado sob uma coifa de fluxo laminar para manter as células e reagentes estéreis.
1. Escolher o par FRET doador/aceitor
- Consulte a literatura para a escolha dos pares FRET de doador/aceitador mais adequados. Exemplos úteis podem ser encontrados em 20,21,22,23,24, embora a escolha final deva ser feita de acordo com as características da configuração FRET/FLIM (linhas laser disponíveis, filtros, etc.). A seguir, algumas considerações sobre como selecionar um par doador/aceitor.
- Escolha do doador: consulte a base FP (https://www.fpbase.org/) para obter um conjunto completo de informações sobre as proteínas fluorescentes disponíveis. Este banco de dados é constantemente atualizado com todos os fluoroforos recém-desenvolvidos.
- Consulte o Banco de Dados Biosensor Fluorescente (https://biosensordb.ucsd.edu/index.php) para obter mais informações sobre os biosensores já disponíveis na literatura, juntamente com as respectivas proteínas fluorescentes utilizadas.
- Como ponto de partida geral, escolha um fluoróforo doador brilhante. Bons candidatos são proteínas fluorescentes de ciano como mTFP1 ou ECFP, ou variantes GFP como EGFP ou mEGFP.
- Os oligômeros podem afetar a localização da proteína e/ou funcionar25. Considere usar mutantes monoméicos de CFP como mTurquoise226, ou Aquamarine27,28. Essas variantes também têm bom rendimento quântico e coeficientes de extinção, o que os torna bons candidatos como doadores de FRET.
- Dê preferência às proteínas fluorescentes (tanto como doador ou aceitadores) insensível a mudanças ambientais como pH23 intracelular, ou ao fotobleaching25, pois a eficiência do FRET pode ser fortemente afetada por esses parâmetros29. Atualmente, fluoroforos como mTurquoise2 ou mTFP1 são amplamente utilizados como doadores, graças à sua boa fotoestabilidade22,25,26.
- Escolhendo o aceitador: doadores de ciano são frequentemente emparelhados com variantes de Proteína Fluorescente Amarela (YFP), como mVenus, Citrine e YPet20,21,22,30. No entanto, deve-se notar que essas proteínas têm uma sensibilidade muito maior ao pH, e globalmente apresentam uma baixa fotoestabilidade.
- Considere usar variantes amarelas recém-desenvolvidas e insensíveis de YFP como pH-Lemon31, fluoroforos verdes como mNeonGreen23 ou fluoroforos vermelhos como mScarlet-I23,32 como aceitadores fluorescentes previamente validados para mTurquoise2.
- Alternativamente, considere o uso de derivados não fluorescentes/escuros de YFP como ShadowG33 ou ShadowY34, que se mostraram como bons aceitadores para doadores fluorescentes de ciano em experimentos FRET/FLIM.
- Se usar mEGFP como doador, considere usar aceitadores vermelhos monomédicos como mCherry.
- Verifique as propriedades espectrais do par doador/aceitor escolhido usando as ferramentas disponíveis no site base da FP. Consulte a Figura 1 para um exemplo do par mEGFP/mCherry.
- No site base fp, selecione o menu suspenso do Tools e selecione o visualizador Spectra.
- Nos menus suspensos, digite o nome do par fluorforeiro para visualizar (por exemplo, mEGFP e mCherry).
- Simule as propriedades do par doador/usuário com uma fonte de luz específica selecionando um determinado laser no menu suspenso. Alternativamente, digite um comprimento de onda laser específico selecionando Adicionar laser. Clique na emissão Normalizar para esta opção para ajustar o espectro fluorforeiro ao comprimento de onda desejado. Aqui, o comprimento de onda usado para excitar gfp está em 480 ± 10 nm.
- Clone o par de doadores/aceitadores selecionados adicionando um fluoróforo no n-terminus da sequência completa de AURKA, e um no C-terminus. Siga as diretrizes do método de clonagem preferido para inserir este construto em um vetor de expressão de mamíferos de escolha.
2. Cultura celular, transfecção e sincronização
- DIA 1º. Prepare o meio de cultura para células U2OS: use o Meio Águia Modificada (DMEM) de Dulbecco complementado com 10% de Soro Bovino Fetal (FBS), 1% penicilina-estreptomicina e 1% L-Glutamina (a partir de agora, mídia de crescimento completo). Alternativamente, o DMEM com L-Glutamina pré-suplementada também pode ser usado.
- Se as células estiverem congeladas, descongele um frasco pelo menos 8 dias antes dos experimentos (ou seja, do ponto 2.5 em diante).
- Cultivar células em uma incubadora dedicada às culturas de células mamíferas a 37 °C e com 5% de CO2. Limpe e esterilize a incubadora regularmente para evitar contaminações.
- Quando as células atingem ~80% de confluência:
- Lave-os brevemente com soro fisiológico tampão de fosfato de 1x estéril (PBS) sem Ca2+ e Mg2+.
- Células trypsinize com estéril 0,05% Trypsin-EDTA de acordo com o protocolo do fabricante e colocando células na incubadora por 1-3 min.
- Inativar trippsina adicionando o dobro do volume de mídia de crescimento completo; misturar bem.
- Centrifugar a suspensão da célula a 800 x g por 3-5 min.
- Conte as células usando um hemócito e calcule a diluição apropriada para que elas estejam em ~70-80% de confluência em lâminas de câmara no dia seguinte. Alternativamente, suportes semelhantes para imagens de células vivas também podem ser usados.
- In pipetar o volume correspondente de células no suporte de imagem de células vivas escolhidas, e colocar as células de volta na incubadora até o dia seguinte.
- DIA 2. Prossiga com a transfecção. Siga as diretrizes do método de transfecção transitório preferido para obter uma eficiência de transfecção ideal (~50/80%). Não é necessário um método específico de transfecção. Observe que a eficiência da transfecção pode variar de acordo com a linha celular utilizada. Incubar por 48 h.
NOTA: Produzir clones estáveis contendo cada um dos três vetores para contornar a necessidade de transfecções transitórias. Nesta fase, dois tipos de controles devem ser planejados. Em primeiro lugar, é necessário um controle "somente para doadores" para verificar se a presença de AURKA de comprimento completo não perturba a vida útil do mTurquoise2 em si. Em segundo lugar, um biosensor portador de uma mutação morta pela quinase deve ser usado como um controle negativo onde o FRET é abolido ou significativamente reduzido. Alternativamente a um mutante morto pela quinase, um inibidor químico da ativação AURKA como o ANÁlogo ATP MLN8237 pode ser usado como um controle negativo.- Planeje com antecedência três condições de transfecção, cada uma delas em um poço independente:
O vetor "somente para doadores" (por exemplo, AURKA-mTurquoise2)
O "biosensor" (por exemplo, superYFP-AURKA-mTurquoise2)
Um biosensor quinase-morto/"K162M" (por exemplo, superYFP-AURKA K162M-mTurquoise2) ou, alternativamente, um inibidor da ativação AURKA (por exemplo, MLN8237) - Realizar três condições para cada par independente de doadores/aceitadores para comparar.
- Considere dobrar o número de poços transfectados se comparar células não sincronizadas e G2/M (ver passo 2.6).
- Planeje com antecedência três condições de transfecção, cada uma delas em um poço independente:
- DIA 3. Sincronizar células em G2/M. Adicione 100 ng/mL nocodazole dissolvido em DMSO a cada poço transfeinado evitando exposição à luz e incubar por 16 h (preferencialmente durante a noite). Se comparar células não sincronizadas e G2/M sincronizadas, trate cada condição de transfecção com nocodazol ou com um volume igual de DMSO. Para uma melhor eficiência de sincronização, prepare alíquotas de uso único de nocodazol em DMSO, armazene-as a -20 °C e descarte-as após o uso.
NOTA: A eficiência de sincronização celular pode variar entre as linhas celulares. A concentração ideal de nocodazol e seu tempo de incubação devem ser determinadas experimentalmente por abordagens de citometria de fluxo antes dos experimentos de FRET/FLIM. Para análises estatisticamente relevantes do FRET/FLIM, recomendamos uma eficiência de sincronização em G2/M de pelo menos 50% da população celular global. - DIA 4. Lavagem de nocodazol e imagem FRET/FLIM em células mitóticas
- Remova o meio de cultura com uma pipeta e substitua-o por PBS pré-aquecido e estéril. Evite a exposição à luz, se possível. Balance suavemente o prato.
- Repita o procedimento de lavagem, evitando sempre a exposição à luz.
- Remova a segunda lavagem pbs e substitua-a por meio Leibovitz L-15 pré-aquecido e estéril, complementado com 20% de Soro Bovino Fetal (FBS) e 1% penicilina-estreptomicina (a partir de agora, mídia de imagem).
NOTA: Os meios de imagem devem ser adquiridos sem indicadores de pH (por exemplo, vermelho fenol) e componentes médios como riboflavina. Essas substâncias são uma fonte de autofluorescência que poderiam perturbar os valores de vida. - Prossiga com imagens FRET/FLIM. Minimize as rápidas mudanças de temperatura e prossiga para a etapa de imagem (passo 3) o mais rápido possível. Considere proteger a amostra da luz enquanto a transporta para a configuração do microscópio (ou seja, embrulhando-a em uma folha de alumínio ou colocando-a em uma caixa).
3. Aquisições da FRET/FLIM
NOTA: As aquisições da FRET/FLIM neste protocolo foram realizadas em uma configuração personalizada, descrita in35 e equipada com uma solução de controle como em 15,17 (Figura 2). A configuração agora é comercializada pela Inscoper e é feita de um microscópio de disco giratório com um laser branco para excitação pulsada, e um intensificador de alta velocidade na frente da câmera. Portões temporais de 2 ns em uma janela de tempo de 10 ns são sequencialmente usados para obter uma pilha de cinco imagens portadas. Essas imagens são então usadas para calcular a vida de fluorescência média pixel por pixel de acordo com a seguinte equação: τ = ΣΔti • Ιi/ΣΙi, onde Δti corresponde ao tempo de atraso do primeiro portão enquanto eu indico a imagem de intensidade de tempo de pixel por pixel35,36 . Este método garante medições rápidas de FLIM: não são necessárias etapas de encaixe ou binning, e a vida útil pode ser calculada em um modo online, com orçamento mínimo de fótons. O sistema também apresenta uma interface de software fácil de usar. No entanto, o mesmo experimento pode ser realizado sob qualquer outra configuração de microscópio comercial equipada para medições FLIM.
- Para garantir uma liberação ideal de células do bloco G2/M em mitose, realize experimentos a 37 °C. Se possível, realize experimentos FRET/FLIM com configurações de microscópio equipadas com uma câmara termostática.
- Ligue a câmara termostática do microscópio pelo menos 30 min a 1 h antes do experimento.
- Ligue o laser, a câmera, a configuração do microscópio e o software de imagem (Figura 2).
- Selecione os comprimentos de onda de excitação e emissão apropriados para o fluorohore doador. As opções convenientes de comprimentos de onda são: λex 440/10 nm e λem 483/35 nm para mTurquoise2 (Figura 3A); λex 488/10 nm e λem 525/50 nm para GFP) (Figura 3B).
- Defina o tempo de exposição, geralmente entre 30 e 100 ms (Figura 3). Cuidado com o excesso de energia laser pode resultar em efeitos fototóxicos induzidos como fotobleaching, o que poderia, por sua vez, modificar a fluorescência ao longo da vida37. Na configuração, valide a ausência de eventos de fotobleaching monitorando a intensidade de fluorescência do primeiro portão durante aquisições de lapso de tempo. Se as variações na intensidade da fluorescência forem observáveis, descarte a aquisição e ajuste a potência do laser.
NOTA: Na configuração aqui, selecione um tempo de exposição permitindo pelo menos 3000 níveis de cinza no primeiro portão; caso contrário, o software não calculará a vida útil do doador. Esse valor de nível cinza corresponde ao orçamento mínimo de fótons necessário para obter valores relevantes de vida útil. - Antes de lançar as aquisições da FRET/FLIM, certifique-se de que as células entraram na mitose esperando até o aparecimento do fuso bipolar (~20/30 min em células U2OS). Uma vez que a AURKA mitótica localiza principalmente nesta estrutura, verifique a progressão mitótica rastreando a formação do fuso em células diretamente sob o microscópio, com uma fonte de luz externa (Figura 1). Observe que o tempo necessário para a progressão mitótica pode variar de acordo com a linha celular utilizada.
- Se o tratamento com MLN8237 for planejado, coloque as células sob o microscópio e permita que elas atinjam a metafase (aproximadamente 20 minutos após a lavagem do nocodazol). Adicione 250 nM MLN8237 dissolvido em DMSO tanto para células expressando a construção somente de doadores quanto para células expressando o biosensor.
- Controle essa condição em células transfeinadas como acima e incubar com um volume igual de DMSO. Para uma melhor inibição aurka, prepare alíquotas de uso único de MLN8237 no DMSO, armazene-as a -80 °C. Descongele-os colocando as alíquotas no gelo e descarte-as após o uso.
- Incubar por 10 minutos. Após esse período, o fuso mitótico encolherá e apenas um único ponto intenso é deixado. Um fenótipo semelhante é observado quando os mutantes K162M são usados.
- Para uma melhor resolução do fuso mitótico, use pelo menos um objetivo de 63x (Figura 3).
- Uma vez encontrado uma célula em metafase (ver Figura 4 como um exemplo de uma célula em metafase), ajuste coordenadas de xiz para colocá-la no centro do campo de visão.
- Para imagens mais rápidas, selecione um único plano z . Escolha o plano onde o fuso mitotístico é mais visível ou intenso.
- Comece a gravação. O tempo de aquisição pode variar de acordo com a configuração FLIM utilizada (de poucos segundos a min). A maioria das configurações comerciais disponíveis no mercado elaborará tanto o micrografo fluorescência quanto o mapa de vida pixel a pixel. Salve ambas as imagens.
- Adquira pelo menos 10 imagens independentes de cada transfecção e/ou condição de tratamento.
4. Cálculo de ΔLifetime e comparação dos valores de FLIM entre pares doadores/aceitadores
- Extrair valores de vida de todo o mapa de vida pixel a pixel (ou seja, todo o fuso místico", ou selecionar regiões de interesse (ROIs) correspondentes a sub-regiões específicas.
NOTA: De acordo com a configuração FRET/FLIM utilizada, os cálculos de vida podem ser realizados diretamente no software de aquisição ou extraídos com soluções genéricas de processamento de imagens (por exemplo, Fiji/ImageJ: https://fiji.sc/). O software que calcula diretamente os valores de vida (também conhecidos como modo online) oferece uma solução mais fácil de usar, que é adequada para iniciantes e para usuários de microscopia que não estão totalmente familiarizados com o FRET/FLIM. Pelo contrário, a extração de valores vitalícios após a aquisição muitas vezes requer um procedimento adequado. Essa opção é menos acessível aos iniciantes, pois alguns conhecimentos prévios sobre modelos matemáticos de encaixe são necessários. - Uma vez visualizado ou extraído, calcule a vida média das células expressando o vetor "somente doador" (por exemplo, AURKA-mTurquoise2), por meio da vida útil do doador.
- Subtraia cada valor vitalício independente calculado na etapa 4.1 da vida média do doador. Repetir este passo para todas as células em todas as condições analisadas dará ao ΔLifetime para cada condição.
- Compare os valores da Vida útil δ para as condições "somente doadores", "biosensor" e "K162M", ou as condições DMSO e MLN8237.
NOTA: Para a condição "somente para doadores", o ΔLifetime deve resultar em valores próximos a zero e correspondentes às flutuações experimentais dos valores de vida. Para a condição "biosensor", os valores de ΔLifetime devem produzir a diferença líquida entre os dois construtos (ver Figura 4 para um exemplo ilustrado). - Compare os valores da ΔLifetime entre diferentes pares de doadores/aceitadores.
- Compare as condições do "biosensor": elas mostram δlifetime semelhante?
- As condições "K162M" ou MLN8237 mostram δlifetime semelhante entre eles? O ΔLifetime deles é semelhante à condição "somente para doadores"?
Resultados
Seguimos o procedimento descrito acima para registrar a autofosforilação de AURKA em Thr288 usando dois biosensores com diferentes propriedades espectrais. Comparamos a sonda inicial GFP-AURKa-mCherry14 com dois biosensores com diferentes propriedades espectrais. Essas duas sondas dependem do doador fluorescente mTurquoise2 e de um aceitador não fluorescente (ShadowG) em um caso, ou de um aceitador amarelo (superYFP) em um segundo caso. Em seguida, inserimos a sequência completa de AURKA dentro de cada par doador/aceitor. Para ter um controle negativo para ativação da AURKA, duas estratégias podem ser perseguidas. Primeiro, o uso de um pequeno ATP-analógico (MLN8237) interfere com a vinculação de ATP no bolso cinético da quinase e impede sua ativação38. Em segundo lugar, a mutação de Lys162 em Met (K162M), cria uma versão quinase morta de cada biosensor incapaz de ativar14,15,39. Esta mutação induz a ruptura de uma ponte de sal normalmente estabelecida entre Lys162 e Glu181, o que resulta em uma abertura estável do bolso cinético da quinase e desencadeia sua inativação geral40. Como controle negativo para fret, usamos uma construção desprovida de aceitação (GFP-AURKA ou AURKA-mTurquoise2).
Depois de sincronizar as células em G2/M e liberá-las em mitose, medimos a vida útil de todos os construtos transfectados no fuso mitótico (Figura 4). Note-se que essa estrutura foi considerada como um todo, e nenhum ROIs dentro do fuso foi analisado. Então calculamos ΔLifetime para todas as condições. Como esperado, a vida útil do GFP-AURKA ou AURKA-mTurquoise2 (as condições "somente para doadores") foi próxima de 0, indicando que os valores medidos para esses construtos flutuavam em torno do valor médio (Figura 4A,4B). Por outro lado, os valores de ΔLifetime para GFP-AURKA-mCherry foram estatisticamente diferentes da condição apenas de doadores, com ΔLifetime aumentando de ~130 ps (Figura 4A). Observações semelhantes foram feitas para shadowG-AURKA-mTurquoise2 e para superYFP-AURKA-mTurquoise2, com ΔLifetime aumentando de ~150 e ~220 ps da condição somente para doadores, respectivamente (Figura 4B,4C). Esses dados podem ser facilmente visualizados em células únicas com uma tabela de pesquisa pseudocolor (LUT). Neste caso, os valores de ΔLifetime em torno de 0 são pseudocoloridos amarelo, enquanto diferenças mais significativas são pseudocoloridas vermelho/roxo. De fato, o LUT pixel a pixel estava mais próximo do amarelo em células expressando os construtos somente para doadores, enquanto estava mais no espectro vermelho/roxo em células expressando qualquer biosensor (Figura 4A,4B). Isso também foi observado quando o biosensor GFP-AURKA-mCherry foi tratado com o inibidor farmacológico MLN8237.
Em seguida, analisamos o ΔLifetime de biosensores mortos pela quinase. Esses construtos mostraram valores intermediários de ΔLifetime: ΔLifetime foi significativamente maior quando comparado com a condição apenas de doadores (Figura 4B,4C), mas também foi significativamente menor do que suas contrapartes normais (Figura 4B,4D). As comparações com células tratadas com MLN8237 ou expressando biosensores mortos pela quinase são necessárias para estimar se as variações de ΔLifetime para cada par de doadores/aceitadores estão apenas ligadas à ativação da AURKA. No caso do GFP-AURKA-mCherry, as variações de ΔLifetime são abolidas quando um inibidor específico da AURKA é usado. Por outro lado, as variações de ΔLifetime são principalmente, mas não exclusivamente ligadas à ativação da AURKA no caso de shadowG-AURKA-mTurquoise2 e do superYFP-AURKA-mTurquoise2.
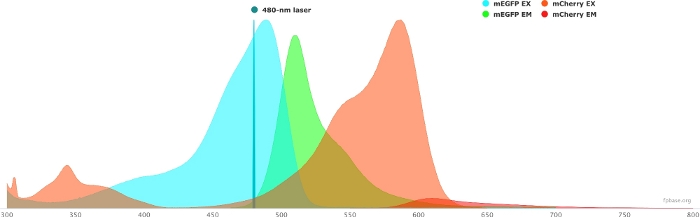
Figura 1: GFP (doador) e mCherry (aceitador) excitação e espectro de emissões.
Os espectros foram obtidos e adaptados do site base FP (https://www.fpbase.org/), e ajustados para uma excitação a laser de 480 nm. Clique aqui para ver uma versão maior desta figura.
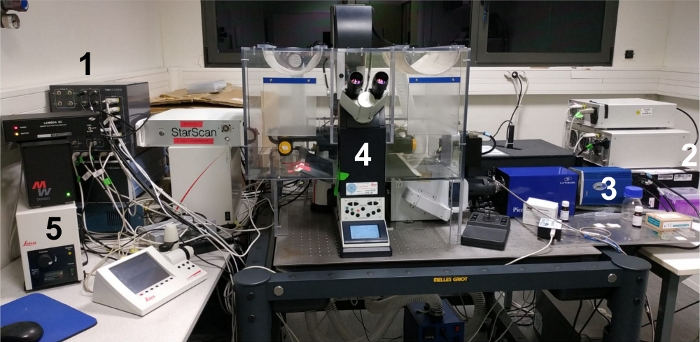
Figura 2: Imagem do espaço de trabalho experimental.
(1) A solução de controle; (2) fonte de laser branco; (3) Câmera CCD; (4) configuração do microscópio; (5) fonte/lâmpada de luz externa para triagem ocular da amostra. Clique aqui para ver uma versão maior desta figura.
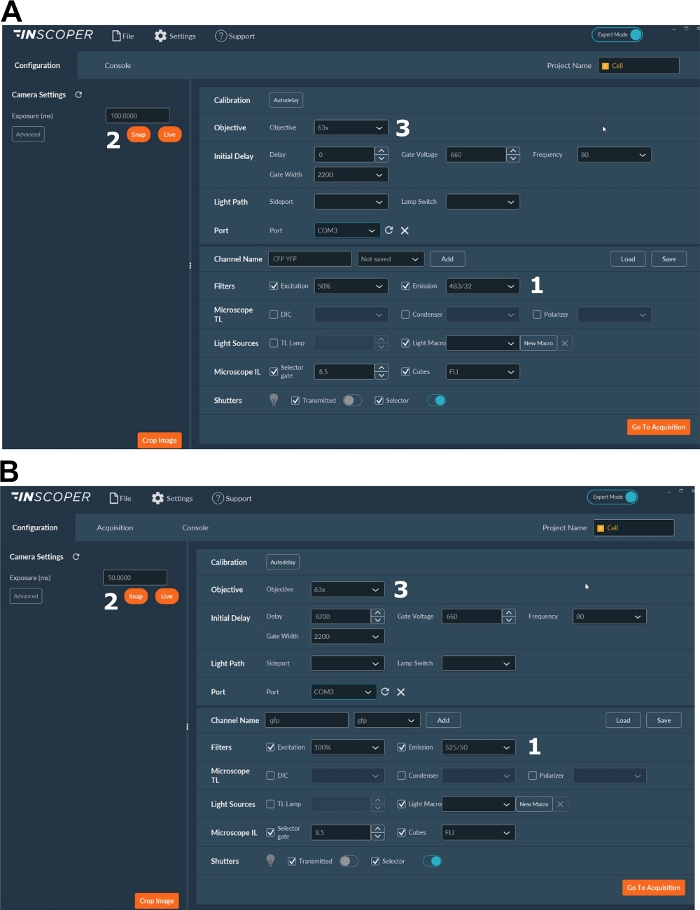
Figura 3: Imagens representativas do software para aquisição da FLIM.
(A, B) (1) parâmetros de excitação e emissão para o doador (CFP em A, ou GFP em B); (2) tempo de exposição; (3) seleção do objetivo. Clique aqui para ver uma versão maior desta figura.
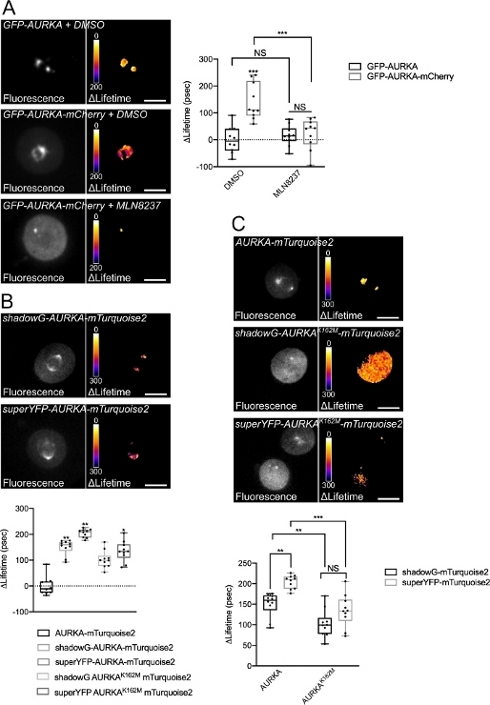
Figura 4: Imagens representativas de biosensores AURKA FRET e seus controles negativos.
(A) (Micrografos) Fluorescência (canal verde) e ΔLifetime pixel por pixel correspondente (somente doador – biosensor) de células U2OS expressando GFP-AURKA ou GFP-AURKA-mCherry, sincronizado em G2/M, liberado até que o fuso bipolar seja visível e depois tratado com DMSO ou com MLN8237. ΔLifetime é ilustrado com uma escala pseudocolor (tabela de imagens "Fogo"). (Gráfico) Quantificação correspondente e análise ANOVA bidirecional para as condições indicadas. (B) (Micrografos) Fluorescência (canal de ciano) e ΔLifetime pixel por pixel correspondente (apenas doador – biosensor) de células U2OS expressando shadowG-AURKA-mTurquoise2 (painel superior) ou superYFP-AURKA-mTurquoise2 (painel inferior), sincronizado em G2/M e liberado até que o fuso bipolar seja visível. ΔLifetime é ilustrado com uma escala pseudocolor (tabela de imagens "Fogo"). (Gráfico) Quantificação correspondente e análise unidirecional de ANOVA das condições representadas nos micrografos acima. (C) (Micrografos) Imagens de AURKA-mTurquoise2 (painel superior), shadowG-AURKA K162M-mTurquoise2 (painel médio) e superYFP-AURKA K162M-mTurquoise2 adquiridas e representadas como nos micrógrafos. (Gráfico) Análise bidirecional da ANOVA para as condições de transfecção indicadas. A barra em boxplots representa a mediana; os bigodes estendem-se do min ao máximo. n = 10 células por condição de um experimento representativo (de três). Os valores individuais são representados como pontos. Barra de escala: 10 μm. *P < 0,05, **P < 0,01, ***P < 0,001 contra cada condição indicada em (A) a condição "AURKA-mTurquoise2" em (B), e contra cada condição indicada em (C). NS: não é significativo. Clique aqui para ver uma versão maior desta figura.
Discussão
Biosensores FRET codificados geneticamente são ferramentas confiáveis para medir a ativação de proteínas únicas ou de vias de sinalização inteiras41. Particularmente, o biosensor AURKA FRET constitui uma maneira preferencial de explorar a ativação da quinase no tempo e no espaço. No entanto, alguns elementos merecem atenção especial ao projetar ou otimizar um biosensor FRET, não apenas em termos gerais, mas mais especificamente para a AURKA.
Em primeiro lugar, a natureza e a posição relativa do par FRET doador/aceitador podem ser adaptadas para funções específicas desta quinase. Aurka é muito enriquecida no fuso mitotístico durante a mitose, mas está presente em todo o ciclo celular e em diferentes locais subcelulares (por exemplo, centrossários, núcleo e mitocôndrias)1,2. Se o biosensor for usado em compartimentos específicos como mitocôndrias, que podem atingir pH ácido, a escolha de um par FRET doador-aceitante insensível pH como mTurquoise2/shadowG deve ser feita. Além disso, colocar o doador DE FRET no C-terminus poderia permitir uma melhor visualização do biosensor neste compartimento subcelular, e potencialmente até mesmo otimizar a detecção de FRET, dado que a AURKA N-terminus foi demonstrada para cortar parcialmente em mitocôndrias16,42.
Em segundo lugar, uma maneira ainda inexplorada de otimizar o biosensor AURKA FRET exigiria um desenho mais cuidadoso dos linkers entre a AURKA de comprimento completo e o par doador/aceitor. Não apenas a distância entre o par fluorescente, mas também as propriedades do próprio linker mostraram-se fatores-chave para melhorar a eficiência do FRET43,44,45,46. Nesta luz, aumentar a rigidez ou a flexibilidade do linker pode ser prejudicial à eficiência da FRET, ou melhorá-la ainda mais.
Em terceiro lugar, sabe-se que a superexpressão da AURKA induz anormalidades do fuso mitotístico em uma proporção significativa de células2. Seria interessante comparar o ΔLifetime obtido expressando a mesma construção fret sob um forte promotor como o citomegalovírus (CMV) – um dos promotores mais comuns encontrados em vetores de expressão de mamíferos – ou sob a sequência de promotores mínimos AURKA (CTTCCGG)14,47. Este promotor foi previamente mostrado para resgatar fusos monopolar ou multipolares surgidos após a derrubada da quinase, e seu uso não induziu perturbações de ciclo celular por se14,47. Embora o FLIM seja insensível aos níveis de expressão proteica e concentrações relativas nas células11, beneficiar-se de uma comparação completa dos dois promotores na mesma configuração biosensora ampliaria a compreensão do pool de AURKA ativado em qualquer local. Além disso, forneceria novas informações sobre como a ativação da AURKA pode mudar após a superexpressão, o que é relevante para paradigmas epiteliais e hematológicos do câncer.
Por último, o aplicativo FRET a jusante também deve ser levado em conta. Uma perspectiva futura no campo da AURKA seria cumular o biosensor conformacional quinase com um biosensor baseado em substrato. Analisar o comportamento de FRET de dois biosensores simultaneamente – um processo conhecido como MULTIPLEX FRET – requer um aceitador escuro no primeiro biosensor para evitar sangramento espectral no segundo canal de doadores. No contexto da AURKA, isso abriria a nova perspectiva excitante de detectar a ativação da quinase com o primeiro biosensor, e sua atividade enzimática em direção a um determinado substrato com o segundo. Os recentes desenvolvimentos no multiplexing agora permitem acumular até três biosensores por vez48. Aplicar um método semelhante no contexto da AURKA poderia representar uma estratégia muito promissora não apenas para testar a interação ativa-atividade da quinase, mas também para explorar cascatas de sinalização AURKA com resolução espostetemporal sem precedentes.
Em conclusão, o FRET/FLIM é uma maneira conveniente de aprofundar o conhecimento sobre a atividade proteica. Por um lado, permite visualizar a localização de uma determinada proteína em células vivas, graças a pelo menos uma moiety fluorescente. Por outro lado, pode desvendar alterações conformais de proteínas, que podem ser informativas sobre ativação de proteínas e/ou atividade. Portanto, os biosensores FRET/FLIM e conformacionais da FRET têm o potencial de se tornarem métodos generalizados para seguir caminhos de sinalização em células vivas e com resolução espacial requintada.
Divulgações
G.B. realizou os experimentos, escreveu e revisou o manuscrito, e forneceu financiamento, M.T. revisou o manuscrito e forneceu apoio. M.T. é um conselheiro científico e acionista da empresa Inscoper (França), que produz as soluções para medições rápidas da FLIM mostradas neste manuscrito. A Inscoper apoiou parcialmente a publicação do Open Access do manuscrito. O inscoper não estava envolvido em design experimental, manipulação de dados, nem na escrita do manuscrito.
Agradecimentos
Agradecemos aos engenheiros do Centro de Imagens Microscopia-Rennes (MRic, BIOSIT, Rennes, França) por conselhos e ajuda, e particularmente X. Pinson pela leitura crítica do manuscrito. MRic é membro da infraestrutura nacional France-BioImaging apoiada pela Agência Nacional de Pesquisa francesa (ANR-10-INBS-04). Este trabalho foi apoiado pelo Centre National de la Recherche Scientifique (CNRS), pela Ligue Contre le Cancer Comités d'Ille et Vilaine, des Côtes d'Armor et du Finistère, e pela Association pour la Recherche Contre le Cancer (ARC) para G.B.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Alisertib (MLN8237) | SelleckChem | S1133 | Use em uma diluição final de 250 nM |
| Meio de Eagle Modificado de Dulbecco (DMEM) | ThermoFischer Scientific Marca: Gibco | 41966052 | Glicose alta + L-glutamina + piruvato de sódio |
| Soro bovino fetal (FBS) | ThermoFischer Scientific Marca: Gibco | ||
| L15 | ThermoFischer Scientific Marca: Gibco | 21083027 | Leibovitz's L15 medium + L-glutamina, sem vermelho de fenol |
| LabTek | Nunc | 2515380 | |
| Nocodazole | Merck Marca: Sigma-Aldrich | M1404 | Use a uma diluição final de 100 ng/mL |
| Penicilina/Estreptomicina | ThermoFischer Scientific Marca: Gibco | 15140122 | Penicilina-Estreptomicina 10.000 U/mL (100x) |
| Tampão de fosfato salino (PBS) | ThermoFischer Scientific Marca: Gibco | 14190169 | DPBS, sem cálcio, sem magnésio |
| Tripsina/EDTA | ThermoFischer Scientific Marca: Gibco | 25300096 | Tripsina-EDTA 0,05%, Vermelho de Fenol (1x) |
Referências
- Bertolin, G., Tramier, M. Insights into the non-mitotic functions of Aurora kinase A: more than just cell division. Cellular and Molecular Life Sciences. , (2019).
- Nikonova, A. S., Astsaturov, I., Serebriiskii, I. G., Dunbrack, R. L., Golemis, E. A. Aurora A kinase (AURKA) in normal and pathological cell division. Cellular and Molecular Life Sciences. 70 (4), 661-687 (2013).
- Walter, A. O., Seghezzi, W., Korver, W., Sheung, J., Lees, E. The mitotic serine/threonine kinase Aurora2/AIK is regulated by phosphorylation and degradation. Oncogene. 19 (42), 4906-4916 (2000).
- Cheetham, G. M. T. Crystal Structure of Aurora-2, an Oncogenic Serine/Threonine Kinase. Journal of Biological Chemistry. 277 (45), 42419-42422 (2002).
- Bayliss, R., Sardon, T., Vernos, I., Conti, E. Structural basis of Aurora-A activation by TPX2 at the mitotic spindle. Molecular Cell. 12 (4), 851-862 (2003).
- Zhang, Y., et al. Identification of the auto-inhibitory domains of Aurora-A kinase. Biochemical and Biophysical Research Communications. 357 (2), 347-352 (2007).
- Littlepage, L. E., Wu, H., Andresson, T., Deanehan, J. K., Amundadottir, L. T., Ruderman, J. V. Identification of phosphorylated residues that affect the activity of the mitotic kinase Aurora-A. Proceedings of the National Academy of Sciences of the United States of America. 99 (24), 15440-15445 (2002).
- Kufer, T. A., et al. Human TPX2 is required for targeting Aurora-A kinase to the spindle. The Journal of Cell Biology. 158 (4), 617-623 (2002).
- Eyers, P. A., Erikson, E., Chen, L. G., Maller, J. L. A novel mechanism for activation of the protein kinase Aurora A. Current Biology. 13 (8), 691-697 (2003).
- Brunet, S., et al. Characterization of the TPX2 Domains Involved in Microtubule Nucleation and Spindle Assembly in Xenopus Egg Extracts. Molecular Biology of the Cell. 15 (12), 5318-5328 (2004).
- Padilla-Parra, S., Tramier, M. FRET microscopy in the living cell: Different approaches, strengths and weaknesses. BioEssays. 34 (5), 369-376 (2012).
- Aoki, K., Kamioka, Y., Matsuda, M. Fluorescence resonance energy transfer imaging of cell signaling from in vitro to in vivo: Basis of biosensor construction, live imaging, and image processing. Development, Growth & Differentiation. 55 (4), 515-522 (2013).
- Fuller, B. G., et al. Midzone activation of aurora B in anaphase produces an intracellular phosphorylation gradient. Nature. 453 (7198), 1132-1136 (2008).
- Bertolin, G., et al. A FRET biosensor reveals spatiotemporal activation and functions of aurora kinase A in living cells. Nature Communications. 7, 12674(2016).
- Bertolin, G., et al. Optimized FRET Pairs and Quantification Approaches To Detect the Activation of Aurora Kinase A at Mitosis. ACS Sensors. 4 (8), 2018-2027 (2019).
- Bertolin, G., et al. Aurora kinase A localises to mitochondria to control organelle dynamics and energy production. eLife. 7, (2018).
- Sizaire, F., Le Marchand, G., Pécréaux, J., Bouchareb, O., Tramier, M. Automated screening of AURKA activity based on a genetically encoded FRET biosensor using fluorescence lifetime imaging microscopy. Methods and Applications in Fluorescence. 8 (2), 024006(2020).
- Demeautis, C., et al. Multiplexing PKA and ERK1&2 kinases FRET biosensors in living cells using single excitation wavelength dual colour FLIM. Scientific Reports. 7, 41026(2017).
- Ringer, P., et al. Multiplexing molecular tension sensors reveals piconewton force gradient across talin-1. Nature Methods. 14 (11), 1090-1096 (2017).
- Nagai, T., Yamada, S., Tominaga, T., Ichikawa, M., Miyawaki, A. Expanded dynamic range of fluorescent indicators for Ca(2+) by circularly permuted yellow fluorescent proteins. Proceedings of the National Academy of Sciences of the United States of America. 101 (29), 10554-10559 (2004).
- Klarenbeek, J., Goedhart, J., van Batenburg, A., Groenewald, D., Jalink, K. Fourth-Generation Epac-Based FRET Sensors for cAMP Feature Exceptional Brightness, Photostability and Dynamic Range: Characterization of Dedicated Sensors for FLIM, for Ratiometry and with High Affinity. PLOS ONE. 10 (4), 0122513(2015).
- Fritz, R. D., et al. A Versatile Toolkit to Produce Sensitive FRET Biosensors to Visualize Signaling in Time and Space. Science Signaling. 6 (285), (2013).
- Mastop, M., et al. Characterization of a spectrally diverse set of fluorescent proteins as FRET acceptors for mTurquoise2. Scientific Reports. 7 (1), 11999(2017).
- vander Krogt, G. N. M., Ogink, J., Ponsioen, B., Jalink, K. A Comparison of Donor-Acceptor Pairs for Genetically Encoded FRET Sensors: Application to the Epac cAMP Sensor as an Example. PLoS ONE. 3 (4), 1916(2008).
- Cranfill, P. J., et al. Quantitative assessment of fluorescent proteins. Nature Methods. 13 (7), 557-562 (2016).
- Goedhart, J., et al. Structure-guided evolution of cyan fluorescent proteins towards a quantum yield of 93. Nature Communications. 3 (1), (2012).
- Mérola, F., et al. Newly engineered cyan fluorescent proteins with enhanced performances for live cell FRET imaging. Biotechnology Journal. 9 (2), 180-191 (2014).
- Erard, M., et al. Minimum set of mutations needed to optimize cyan fluorescent proteins for live cell imaging. Molecular BioSystems. 9 (2), 258-267 (2013).
- Tramier, M., Zahid, M., Mevel, J. C., Masse, M. J., Coppey-Moisan, M. Sensitivity of CFP/YFP and GFP/mCherry pairs to donor photobleaching on FRET determination by fluorescence lifetime imaging microscopy in living cells. Microscopy Research and Technique. 69 (11), 933-939 (2006).
- Padilla-Parra, S., et al. Quantitative Comparison of Different Fluorescent Protein Couples for Fast FRET-FLIM Acquisition. Biophysical Journal. 97 (8), 2368-2376 (2009).
- Burgstaller, S., et al. pH-Lemon, a Fluorescent Protein-Based pH Reporter for Acidic Compartments. ACS Sensors. , (2019).
- Bindels, D. S., et al. mScarlet: a bright monomeric red fluorescent protein for cellular imaging. Nature Methods. 14 (1), 53-56 (2016).
- Murakoshi, H., Shibata, A. C. E., Nakahata, Y., Nabekura, J. A dark green fluorescent protein as an acceptor for measurement of Förster resonance energy transfer. Scientific Reports. 5, 15334(2015).
- Murakoshi, H., Shibata, A. C. E. ShadowY: a dark yellow fluorescent protein for FLIM-based FRET measurement. Scientific Reports. 7 (1), 6791(2017).
- Leray, A., Padilla-Parra, S., Roul, J., Héliot, L., Tramier, M. Spatio-Temporal Quantification of FRET in living cells by fast time-domain FLIM: a comparative study of non-fitting methods [corrected]. PloS One. 8 (7), 69335(2013).
- Padilla-Parra, S., Audugé, N., Coppey-Moisan, M., Tramier, M. Quantitative FRET analysis by fast acquisition time domain FLIM at high spatial resolution in living cells. Biophysical Journal. 95 (6), 2976-2988 (2008).
- Song, L., Hennink, E. J., Young, I. T., Tanke, H. J. Photobleaching kinetics of fluorescein in quantitative fluorescence microscopy. Biophysical Journal. 68 (6), 2588-2600 (1995).
- Manfredi, M. G., et al. Characterization of Alisertib (MLN8237), an investigational small-molecule inhibitor of aurora A kinase using novel in vivo pharmacodynamic assays. Clinical Cancer Research: An Official Journal of the American Association for Cancer Research. 17 (24), 7614-7624 (2011).
- Katayama, H., et al. Phosphorylation by aurora kinase A induces Mdm2-mediated destabilization and inhibition of p53. Nature Genetics. 36 (1), 55-62 (2004).
- Nowakowski, J., et al. Structures of the Cancer-Related Aurora-A, FAK, and EphA2 Protein Kinases from Nanovolume Crystallography. Structure. 10 (12), 1659-1667 (2002).
- Palmer, A. E., Qin, Y., Park, J. G., McCombs, J. E. Design and application of genetically encoded biosensors. Trends in Biotechnology. 29 (3), 144-152 (2011).
- Grant, R., et al. Constitutive regulation of mitochondrial morphology by Aurora A kinase depends on a predicted cryptic targeting sequence at the N-terminus. Open Biology. 8 (6), 170272(2018).
- Shimozono, S., Miyawaki, A. Engineering FRET Constructs Using CFP and YFP. Methods in Cell Biology. 85, 381-393 (2008).
- Komatsu, N., et al. Development of an optimized backbone of FRET biosensors for kinases and GTPases. Molecular Biology of the Cell. 22 (23), 4647-4656 (2011).
- Schifferer, M., Griesbeck, O. A Dynamic FRET Reporter of Gene Expression Improved by Functional Screening. Journal of the American Chemical Society. 134 (37), 15185-15188 (2012).
- Peroza, E. A., Boumezbeur, A. H., Zamboni, N. Rapid, randomized development of genetically encoded FRET sensors for small molecules. Analyst. 140 (13), 4540-4548 (2015).
- Reboutier, D., et al. Aurora A is involved in central spindle assembly through phosphorylation of Ser 19 in P150Glued. The Journal of Cell Biology. 201 (1), 65-79 (2013).
- Mo, G. C. H., Posner, C., Rodriguez, E. A., Sun, T., Zhang, J. A rationally enhanced red fluorescent protein expands the utility of FRET biosensors. Nature Communications. 11 (1), 1848(2020).
Reimpressões e permissões
