Esta revisão tem como objetivo explorar o papel mecanicista da anquirina 1 do potencial receptor transitório (TRPA1) na patogênese da CIPN e avaliar seu potencial como alvo terapêutico para intervenções imunomoduladoras e anti-inflamatórias.
Artigo de revisão
TRPA1 na Neuropatia Periférica Induzida por Quimioterapia: Um Alvo Promissor para Imunomodulação e Terapia Anti-Inflamatória
Neste artigo
Resumo
Resumo
A neuropatia periférica induzida por quimioterapia (CIPN) é uma condição clínica comum e grave que ocorre quando um agente quimioterapêutico danifica o sistema nervoso periférico e geralmente é caracterizada por dor anormal nos membros distais e aumento da sensibilidade a estímulos quentes e frios. No entanto, poucos tratamentos clínicos para a NPI estão disponíveis, portanto é fundamental identificar modalidades de tratamento eficazes. O potencial transitório anquirina 1 (TRPA1), um receptor de lesão, pode ser ativado por estresse oxidativo, mediadores inflamatórios e condições hipotérmicas durante a patogênese e progressão da CIPN. O TRPA1 modula a via inflamatória a jusante e promove a liberação de fatores inflamatórios e neuropeptídeos, resultando em regulação imune anormal, o que por sua vez leva a uma resposta inflamatória neurogênica e à sinalização da dor. Neste estudo, é examinado o papel do TRPA1 na patogênese da CIPN, verifica-se a possibilidade de direcionar o TRPA1 para tratar a NPI inibindo a neuroinflamação, e explora-se a possibilidade de usar antagonistas da TRPA1 e ervas naturais para o tratamento clínico da NPI.
Introdução
O câncer continua sendo um dos principais desafios globais de saúdepública 1. Embora a quimioterapia desempenhe um papel crucial na melhoria da sobrevivência ao câncer, ela frequentemente é acompanhada de efeitos adversos graves, entre os quais o CIPN é uma das complicações mais comuns e complexas. A CIPN é clinicamente caracterizada por dor simétrica, parestesia e sensibilidade anormal ao frio ou calor nas extremidadesdistais 2, e alguns pacientes também podem apresentar dificuldade na coordenação motorafina 3. A incidência relatada de CIPN varia amplamente, variando de aproximadamente 50% a 90%, e cerca de 30%-40% dos casos podem evoluir para complicações neurológicascrônicas 2, reduzindo significativamente a qualidade de vida dos pacientes e a adesão ao tratamento. O risco de desenvolver NPI é influenciado por múltiplos fatores, incluindo o modo de administração (dose única, dose cumulativa ou duração do tratamento), medicamentos concomitantes, idade, anemia, índice de massa corporal (IMC) mais alto e neuropatiapré-existente 2,4,5. Agentes antineoplásicos relatados como induzindo diferentes graus de neurotoxicidade incluem compostos à base de platina, taxanos, alcaloides de vinca, inibidores de proteassoma (como bortezomib), drogas epigenéticas ou imunomoduladoras (como talidomida e lenalidomida) e inibidores de microtúbulos (como eribulina)6.
Atualmente, as opções farmacológicas para o manejo do CIPN continuam limitadas. A Sociedade Americana de Oncologia Clínica (ASCO) recomenda a duloxetina como a única intervenção farmacológica com suporte baseado em evidências para o tratamento com CIPN. Estudos clínicos demonstraram que a duloxetina é eficaz no alívio da dor relacionada ao CIPN, sendo seu benefício terapêutico mais pronunciado na neuropatia induzida por agentes quimioterapêuticos à base de platina, especialmente oxaliplatina (OXA), enquanto sua eficácia no CIPN causada por outros agentes, como taxanos e alcaloides vinca, parece ser mais variável entre osestudos 7. Apesar de sua eficácia analgésica comprovada, o benefício clínico geral da duloxetina é moderado, pois ela proporciona principalmente alívio sintomático, em vez de prevenir a CIPN ou reverter alterações patológicas subjacentes. Além disso, embora a duloxetina seja geralmente bem tolerada, o tratamento pode ser acompanhado por efeitos adversos leves a moderados, incluindo fadiga, insônia e náusea, o que pode limitar a adesão a longo prazo em alguns pacientes. Outros agentes comumente usados, como gabapentina e pregabalina, são empregados para o manejo sintomático, mas apresentaram resultados terapêuticos inconsistentes ou insatisfatórios no CIPN 8,9. Portanto, permanece uma necessidade urgente de desenvolver estratégias preventivas mais eficazes e identificar novos alvos terapêuticos para a CIPN.
Nos últimos anos, com o aprofundamento do entendimento da patogênese da CIPN, múltiplos mecanismos como resposta inflamatória, estresse oxidativo e alterações na plasticidade neural têm atraído gradualmente uma atenção crescente 10,11,12. Entre eles, o estresse oxidativo e a neuroinflamação são considerados contribuidores centrais para o início e progressão da lesão neuronal na CIPN. Importante destacar que o canal TRPA1, um canal iônico sensível ao redox amplamente expresso em neurônios sensoriais, emergiu como um mediador molecular chave ligando o estresse oxidativo e a sinalização inflamatória à hiperexcitabilidade neuronal e hipersensibilidadeà dor 13,14. Diferente do TRPV1, que detecta principalmente calor nocivo, e do TRPM8, que detecta estímulos frios, o TRPA1 é caracterizado por sua alta sensibilidade a vários metabólitos oxidativos e eletrofílicos, como o 4-hidroxinonenal (4-HNE)15. A ativação do TRPA1 normalmente envolve a modificação covalente dos resíduos críticos decisteína 16, um mecanismo único que posiciona o TRPA1 como uma ponte molecular crucial que liga o estresse oxidativo oxidativo e de peroxidação lipídica induzido pela quimioterapia ao desenvolvimento de hipersensibilidade à dor. Além disso, vários estudos em animais demonstraram envolvimento funcional do TRPA1 na dor neuropática induzida pela quimioterapia. Em particular, em modelos de neuropatia induzida por OXA, a ablação genética ou bloqueio farmacológico do TRPA1 alivia significativamente a alodinia fria e mecânica, indicando uma contribuição crucial do TRPA1 para a patogênese do CIPN17,18.
Especificamente, TRPA1 é um canal iônico sensível à redox, altamente expresso em neurônios nociceptivos periféricos. Agentes quimioterapêuticos frequentemente induzem disfunção mitocondrial, estresse oxidativo e peroxidação lipídica nos neurônios, levando ao acúmulo excessivo de espécies reativas de oxigênio (ROS) e produtos de peroxidação lipídica, como o 4-HNE. Essas moléculas reativas podem modificar covalentemente os principais resíduos de cisteína do TRPA1 ou alterar seu limiar de ativação, resultando na abertura de canais, influxo de Ca²⁺ e despolarização neuronal, amplificando assim a transmissão da dor e a sinalizaçãoinflamatória 19,20,21. Estudos anteriores demonstraram ainda que o TRPA1 é sensível ao frio e pode ser ativado por mediadores inflamatórios endógenos, contribuindo para o desenvolvimento da hipersensibilidade à dorinduzida pelo frio 22. Além disso, foi demonstrado que o TRPA1 atua como um canal iônico mecanossensível cuja atividade é modulada pelo estado redox celular, participando de dor mecânica anormais ehipersensibilidade 22,23. Além dos neurônios, o TRPA1 também é expresso em múltiplos tipos de células imunológicas, onde sua ativação modula a liberação de citocinas e as cascatas inflamatórias, amplificando ainda mais a neuroinflamaçãoperiférica 24. Coletivamente, a sensibilidade ao frio, a mecanosensibilidade e a resposta redox do TRPA1 estabelecem uma clara ligação mecanicista entre o estresse oxidativo induzido pela quimioterapia e os processos patológicos de dor resultantes, contribuindo assim para o início e manutenção do CIPN. Assim, direcionar o TRPA1 para romper o ciclo vicioso do estresse oxidativo e da toxicidade neuroinflamatória pode representar uma estratégia terapêutica promissora para o manejo da dor neuropática periférica induzida pela quimioterapia. Em estudos existentes, estratégias de intervenção voltadas para TRPA1 foram validadas em múltiplos sistemas modelo. In vitro, culturas de neurônios DRG combinadas com imagens de cálcio são comumente usadas para verificar o impacto da ativação do TRPA1 na excitabilidade neuronal induzida porquimioterapia 25. In vivo, a CIPN é tipicamente induzida em roedores usando OXA, paclitaxel ou bortezomib, seguida pela inibição farmacológica ou genética do TRPA1 e subsequentes avaliações comportamentais como hipersensibilidade ao frioe mecânica 17,26,27. No nível terapêutico, antagonistas do TRPA1 demonstraram eficácia no alívio da dor neuropática em modelospré-clínicos 28,29. Coletivamente, esses achados fornecem uma base experimental sólida para pesquisas translacionais direcionadas ao TRPA1 como estratégia terapêutica para o CIPN.
Pesquisas atuais já revelaram uma possível conexão entre TRPA1 e CIPN. No entanto, esses estudos focaram principalmente no impacto direto do TRPA1 na transmissão do sinal de dor e em seu papel local na resposta inflamatória. No entanto, ainda falta pesquisa sistemática e exploração aprofundada dos mecanismos pelos quais o TRPA1 modula as respostas imunes para afetar o processo patológico geral da CIPN. Portanto, este artigo discute os potenciais mecanismos da CIPN, com foco em explorar o papel da TRPA1 na patogênese da CIPN. O status atual das pesquisas sobre antagonistas do TRPA1 e ervas naturais também é resumido para validar a viabilidade de inibir o TRPA1 produzir efeitos imunes anti-inflamatórios para o tratamento da CIPN. A inovação deste artigo está em estudar sistematicamente o papel do TRPA1 na patogênese da CIPN a partir de uma perspectiva imuno-reguladora, superando limitações anteriores de pesquisas que focavam exclusivamente em seus efeitos em células nervosas ou inflamação local. Além disso, fornece novos alvos e suporte teórico para o desenvolvimento de medicamentos para tratar o CIPN, com grande importância científica e valor de aplicação clínica.
Revisão e perspetiva
1. Mecanismos potenciais para o CIPN
O patomecanismo da CIPN é complexo e está associado à disfunção mitocondrial induzida por medicamentos quimioterapêuticos, estresse oxidativo, anormalidades do sistema imunológico, desregulação dos canais iônicos, dano ao neurônio do gânglio da raiz dorsal (DRG) e perturbação do citoesqueletoneuronal 2,30,31,32,33,34,35,36,37. 38,39,40,41,42. A Tabela 1 oferece uma visão geral dos mecanismos patogênicos específicos envolvidos na CIPN.
- Disfunção mitocondrial e estresse oxidativo
Agentes quimioterapêuticos induzem alterações morfológicas mitocondriais, distúrbios bioenergéticos e produção excessiva de ROS, levando a danos estruturais mitocondriais, comprometimento funcional e estresseoxidativo 12,43. Esses eventos ativam células imunes, elevam os níveis de citocinas pró-inflamatórias e desencadeiam vias de sinalização inflamatória, contribuindo por última vez para o desenvolvimento da CIPN. Especificamente, agentes quimioterapêuticos à base de platina formam adutos de DNA platina que se acumulam no DRG, onde se ligam ao DNA nuclear (nDNA) e ao DNA mitocondrial (mtDNA). Isso promove a reticulação, altera a estrutura e a síntese do DNA nuclear, induz danos ao DNA/mitocondriais, aumenta a produção de ROS, ativa canais relacionados aos receptores de lesão e induz a apoptose neuronal. Também há evidências de que a OXA induz dor neuropática ativando astrócitos e regulando cinocinas pró-inflamatórias na via da proteína quinase ativada por mitógeno (MAPK).
Além dos compostos à base de platina, outros agentes quimioterapêuticos podem prejudicar a integridade mitocondrial por meio de diversos mecanismos. O paclitaxel interfere tanto no transporte axonal quanto no mitocondrial, levando à abertura do poro de transição de permeabilidade mitocondrial (mPTP). Esse evento resulta na perda do potencial da membrana mitocondrial, geração excessiva de ROS, depleção de ATP, derramamento de cálcio e inchaço mitocondrial. O bortezomib, por outro lado, inibe a atividade dos proteassomos e perturba a homeostase das proteínas celulares, induzindo assim danos estruturais mitocondriais e comprometimento funcional. Essas alterações se manifestam como inchaço e vacuolização mitocondrial, desregulação do cálcio, supressão da cadeia respiratória, diminuição da produção de ATP e acúmulo de ROS. Além disso, a vincristina (VCR) inibe a polimerização dos microtúbulos, que compromete o transporte mitocondrial ao longo dos axônios e, subsequentemente, leva à redução do potencial membranário, homeostase do cálcio perturbada e excitabilidade neuronal anormal. Coletivamente, esses agentes destacam o papel central da disfunção mitocondrial nos efeitos neurotóxicos dos medicamentos quimioterapêuticos 41,44,45,46,47.
Da mesma forma, a disfunção mitocondrial atua como reguladora central da sinalização pró-inflamatória, enquanto a inflamação, por sua vez, agrava os danos mitocondriais, criando assim um ciclo vicioso deneurotoxicidade 30,31. Notavelmente, os ROS gerados durante esse processo ativam diretamente o canal iônico sensível ao redox, TRPA1, induzindo influxo de cálcio, hiperexcitabilidade neuronal e sintomas característicos associados à CIPN, como resfriado e alodinia mecânica. Assim, o estresse oxidativo atua como um nexo central que liga o dano mitocondrial, a ativação do TRPA1 e a patogênese da CIPN. A Figura 1 ilustra os mecanismos pelos quais a disfunção mitocondrial e o estresse oxidativo contribuem para o desenvolvimento da CIPN. - Anomalias no sistema imunológico
- Interações Neuroimunes
As interações neuroimunes desempenham um papel crucial no desenvolvimento e persistência do CIPN. Evidências crescentes sugerem que a comunicação entre os sistemas nervoso e imunológico contribui significativamente para sua patogênese. Agentes quimioterapêuticos induzem estresse celular e lesão axonal, levando à liberação de padrões moleculares associados ao dano (DAMPs) que ativam a sinalização do receptor tipo Toll-like 4 (TLR4) em macrófagos e células gliais. Essa ativação promove a polarização dos macrófagos M1 e a secreção de quimiocinas como CCL2 e CXCL10, que recrutam linfócitos T CD4+ e CD8+ e células B para a DRG, ao mesmo tempo em que reduz o número de células Tanti-inflamatórias 48,49,50,51. Embora os neutrófilos sejam altamente suscetíveis aos efeitos citotóxicos da quimioterapia, levando à neutropenia sistêmica, vários estudos relataram aumento da ativação e infiltração de neutrófilos no sistema nervoso periférico e na DRG durante a neuropatia induzida pelaquimioterapia 32. Os mastócitos (MCs) regulam ainda mais as respostas pró-inflamatórias ao recrutar células imunes e liberar uma variedade de citocinas inflamatórias. Além disso, citocinas pró-inflamatórias podem suprimir a atividade das células natural killer (NK), agravando a neuroinflamação e o estresse oxidativo e, assim, promovendo a progressão daCIPN 52.
Agentes quimioterapêuticos também podem alterar a expressão de genes associados às funções imunes e neuronais nos neurônios sensoriais. Por exemplo, o VCR aumenta a expressão do fator de transcrição 3 (Atf3) e da neurotensina (Nts), modulando assim a liberação de quimiocinas e promovendo o recrutamento de células imunes para a DRG, que por sua vez influencia a resposta neuroinflamatória. A OXA regula a expressão da prostaglandina-H2 D-isomerase (Ptgds) e do gene 1 do RNA nucleolar pequeno hospedeiro (Snhg1), que estão envolvidos na síntese de mediadores inflamatórios e na modulação da plasticidade neuronal, afetando assim a excitabilidade neuronal e a transmissão do sinal de dor. Em contraste, a cisplatina (CDDP) altera a expressão da lipocalina-2 (Lcn2) e da homeobox 2 do dedo de zinco (Zfhx2), prejudicando a homeostase metabólica neuronal e a regulação transcricional, promovendo consequentemente a neuroinflamação e a disfunçãoneuronal 53. Coletivamente, a desregulação desses perfis de expressão gênica sob estresse quimioterapêutico revela a complexa interação entre lesão neuronal e ativação imune durante a patogênese da CIPN.
Além disso, TRPA1 é expressa não apenas em neurônios sensoriais, mas também em células imunológicas como macrófagos e MCs, onde media a liberação de citocinas pro-inflamatórias. Essa expressão dual neuronal e imune do TRPA1 pode servir como um elo molecular chave que impulsiona a diafonia neuroimune e a inflamação subjacentes à CIPN. - Exacerbação da Neuroinflamação
Agentes quimioterapêuticos modulam a ativação e a secreção de mediadores imunes das células gliais satélite (SGCs) no DRG, microglia e astrócitos na medula espinhal, e células de Schwann nosaxônios 54. A ativação das células imunológicas aumenta os níveis de citocinas pró-inflamatórias, como fator de necrose tumoral-alfa (TNF-α), interleucina-1 beta (IL-1β), interleucina-6 (IL-6), interleucina-8 (IL-8), interleucina-20 (IL-20), que promovem neuroinflamação e sensibilização neuronal; Por outro lado, a expressão de citocinas anti-inflamatórias como interleucina-10 (IL-10) e interleucina-4 (IL-4) é suprimida, prejudicando a resolução da inflamação. Paralelamente, quimiocinas como CCL2, CXCL1, CXCL12, CX3CL1 e CCL3 contribuem para o recrutamento de células imunes e para as interações glia-neuronal. Essas mudanças ativam coletivamente vias inflamatórias de sinalização chave, como a MAPK e o fator nuclear kappa-cadeia leve de células B ativadas (NF-κB), que aumentam ainda mais a produção de citocinas e a hiperexcitabilidadeneuronal 54,55,56,57,58,59. A Figura 2 ilustra os mecanismos pelos quais a desregulação do sistema imunológico induz a CIPN.
Importante destacar que estudos recentes demonstraram que o TRPA1 atua como um efetor e amplificador crítico a jusante dessas cascatas inflamatórias. Citocinas pro-inflamatórias e mediadores oxidativos podem sensibilizar ou ativar diretamente os canais TRPA1 nos neurônios sensoriais, ligando assim a neuroinflamação ao aumento da excitabilidade neuronal e à hipersensibilidade à dor em CIPN60,61.
- Interações Neuroimunes
- Desregulação dos canais iônicos
- Canais de potássio
Agentes quimioterapêuticos induzem uma resposta neuroinflamatória, levando à expressão aberrante dos canais Kir4.1, que promovem a ativação dos SGCs, a regulação positiva da proteína do ácido fibrilar glial (GFAP) e a liberação de citocinas pró-inflamatórias (por exemplo, TNF-α e IL-6). Isso agrava a excitabilidade dos neurônios DRG e induz a CIPN33. - Canais TRP
Os canais TRP estão envolvidos na resposta inflamatória e na dor neuropática associadas à CIPN e podem ser ativados pelo estresse oxidativo induzido pela quimioterapia. Entre eles, o canal TRPA1, predominantemente localizado em neurônios sensoriais, media a inflamação neurogênica ao liberar neuroptídeos como peptídeos relacionados ao gene da calcitonina (CGRP) e substância P (SP), que promovem o recrutamento de células imunes para os locais de lesão. Enquanto isso, o TRPA1 também é expresso em células gliais e imunes, onde sua ativação estimula a liberação de citocinas e quimiocinas pró-inflamatórias, aumentando ainda mais o recrutamento de células imunológicas e amplificando a resposta inflamatória. Coletivamente, o TRPA1 serve como uma ponte crucial entre os sistemas nervoso e imunológico, contribuindo para o aumento da inflamação e hipersensibilidade neuronal na CIPN. Portanto, o antagonismo da TRPA1 pode aliviar a dor por meio da modulação neuroimune dupla, inibindo a liberação de CGRP e SP, reduzindo a inflamação neurogênica e o recrutamento de células imunológicas, e diminuindo os níveis62 de citocinas pro-inflamatórias.
Singh et al. relataram que o tratamento com OXA aumentou a coexpressão do potencial receptor transitório vaniloide 1 (TRPV1) e do potencial receptor transitório M8 (TRPM8) com TRPA1 nos DRGs de ratos, levando ao aumento dos comportamentos neuropáticos de dor. Notavelmente, TRPA1 e TRPV1 compartilham diafonia funcional na sinalização de dor induzida pela quimioterapia; no entanto, as aplicações clínicas atuais focam principalmente no agonista do TRPV1, capsaicina, que alivia a dor neuropática ao dessensibilizar os nociceptores34 expressores de TRPV1. Isso fornece insights para o desenvolvimento futuro de estratégias analgésicas voltadas para TRPA1. Coletivamente, o TRPA1 atua como um integrador crítico do estresse oxidativo, ativação imune e sinalização da dor, tornando-se um alvo promissor tanto para terapias analgésicas quanto anti-inflamatórias no CIPN.
- Canais de potássio
- Lesão neuronal da DRG
- Dano Neuronal Direto
A DRG é o principal local afetado pela CIPN, mas os mecanismos de dano neuronal diferem entre agentes quimioterapêuticos. A Figura 3 mostra as vias distintas envolvidas na lesão neuronal da DRG induzida por vários medicamentos. Por exemplo, o PTX promove a infiltração de macrófagos na DRG, o que subsequentemente reduz o número de fibras nervosas intraepidérmicas (IENFs) e acelera a progressão daCIPN 35. Agentes à base de platina se acumulam nos neurônios da DRG, causando disfunção mitocondrial, geração excessiva de ROS e apoptose neuronal. A talidomida pode induzir diretamente danos neuronais da DRG. Além disso, vários agentes quimioterapêuticos alteram a expressão e a função dos canais de íons de sódio, potássio e cálcio, levando à hiperexcitabilidadeneuronal 36,37. A ruptura das estruturas microtubulares na DRG prejudica ainda mais o transporte axonal e desencadeia a degeneração walleriana, resultando em perda de fibras nervosas e transmissão neuralcomprometida 38. - Dano imuno-mediado indireto
Além da toxicidade neuronal direta, agentes quimioterapêuticos podem ferir indiretamente os neurônios da DRG por meio da ativação da sinalização imune inata. A lesão celular causada por esses agentes libera DAMPs, que por sua vez ativam receptores de reconhecimento de padrões (PRRs), como o TLR4 e o receptor para produtos finais de glicação avançada (RAGE). A ativação desses receptores induz cascatas neuroinflamatórias, amplifica a excitabilidade neuronal e agrava a dor neuropática39. Coletivamente, esses achados sugerem que agentes quimioterapêuticos induzem lesão à DRG tanto por mecanismos citotóxicos diretos quanto por vias imunológicas mediadas indiretas, contribuindo assim para o início e progressão da CIPN.
- Dano Neuronal Direto
- Perturbação do citoesqueleto neuronal
Estudos anteriores mostraram que a despolimerização de microtúbulos enfraquece diretamente a integridade estrutural dos neurônios e prejudica sua capacidade de alongamento axonal. A desmontagem do citoesqueleto causa irregularidades na superfície neuronal, e essas alterações mecânicas podem servir como marcas físicas do CIPN40. Outro estudo de Chine et al. foi o primeiro a demonstrar que Hsp27 pode prevenir a CIPN protegendo a estrutura axonal. Ao contrário dos mecanismos anti-inflamatórios tradicionais, o Hsp27 exerce efeitos neuroprotetores ao regular vias apoptóticas e manter a estabilidade docitoesqueleto 46.
Alcaloides de Vinca (como vincristina, VCR) se ligam especificamente às extremidades β-tubulina, bloqueando a formação do fuso e o transporte axonal, levando à despolimerização dos microtúbulos e defeitos no crescimento deneuritas 40. Em contraste, o paclitaxel estabiliza os microtúbulos e impede sua despolimerização, interrompendo assim a transmissão de sinais elétricos e o transporte mitocondrial dentro dos axônios, o que induz a desmielinização das fibras nervosasperiféricas 41. O bortezomib, por meio de uma via não proteassomal, induz polimerização excessiva dos microtúbulos, inibe a extensão da neurita e desencadeia a degeneraçãoaxonal 42.
Esses fármacos levam coletivamente a comprometimento do transporte axonal, apoptose neuronal e perda da condução neural, formando a base patológica central da CIPN. Além disso, a ativação da via de sinalização RhoA/ROCHA/LIMK/cofilina impede a remodelação do filamento de actina, inibindo ainda mais a regeneraçãoaxonal 63. A ruptura do citoesqueleto também interage com defeitos de transporte mitocondrial e ativação da calpaina, formando um ciclo vicioso de "estrutura-energia-apoptose" que acelera a progressão da CIPN64.
2. Mecanismos da NPI associada ao TRPA1
TRPA1 é um canal cátiônico não seletivo que normalmente existe como um homotetramero na membrana celular. Contém seis segmentos transmembrana (S1-S6) característicos dos canais TRP. Entre eles, S1-S4 formam o domínio semelhante ao sensor de voltagem (VSLD), enquanto S5 e S6 moldam o poro pelo qual os íons passam. Essas regiões são essenciais para a ativação do canal e seu papel na percepção de estímulos dolorosos, térmicos equímicos 65. A região N-terminal longa do TRPA1 contém múltiplos domínios de repetição anquirina (ARDs), que mediam interações com outras proteínas e contribuem para a regulação dos canais. Essa região também serve como um local chave para a modulação por quinases envolvidas na sinalização dador 66,67. No extremo C, o domínio semelhante ao TRP conecta-se à região transmembrana e desempenha um papel central no gate de canais. O movimento desse domínio, juntamente com os rearranjos de S5 e S6, está na base da abertura do canal e do influxo de Ca2+, que ativa vias de sinalização a jusante envolvidas em inflamação edor 68,69. No geral, os ARDs, hélices transmembranaras (S1-S6) e domínio semelhante ao TRP são as principais características estruturais que determinam a ativação do TRPA1 e seu papel na dor e na sinalização inflamatória. A Figura 4 ilustra os domínios estruturais chave do TRPA1 relevantes para sua ativação por agentes quimioterapêuticos, enquanto a Tabela 2 resume os mecanismos do CIPN associados ao TRPA1 61,62,70,71,72,73,74,75,76,77,78,79,80,81,82,83.
- Ativação do TRPA1 mediada por estresse oxidativo no CIPN
- O estresse oxidativo é um dos principais fatores tanto para a eficácia antitumoral quanto para a neurotoxicidade dos medicamentosquimioterapêuticos 84. O TRPA1 funciona como um canal iônico sensível a redox e eletrófilo, que é ativado sob condições de elevado estresse oxidativo durante a quimioterapia. Fosfolipídios oxidados (OxPAPCs) e outros eletrófilos derivados de espécies reativas de oxigênio (ROS) modificam covalentemente resíduos de cisteína no domínio N-terminal do TRPA1, ativando assim o canal e promovendo o influxo de cálcio. Essa ativação leva à liberação de neuropeptídeos e mediadores inflamatórios como CGRP e SP, que mediam a transmissão anormal da dor e a inflamação neurogênica na patogêneseCIPN 61,70. Enquanto isso, a inflamação periférica desencadeada por medicamentos quimioterapêuticos resulta em geração e acúmulo excessivo de ROS nos gânglios sensoriais, que ativam e regulam ainda mais o TRPA1, formando um ciclo de retroalimentação positiva ROS-TRPA1 que amplifica a hipersensibilidade inflamatória e mecânica85.
A CIPN induzida pelo CDDP também depende desse mecanismo, já que a CDDP promove a produção de ROS nos tecidos orais, o que ativa o TRPA1 e leva à dor orofacialpersistente 86. De forma semelhante, a OXA modula a atividade do TRPA1 por meio de múltiplos mecanismos. Por um lado, a OXA ativa diretamente o TRPA1 por meio de um mecanismo sensível ao glutation, levando à acidificação citoplasmática nos neurôniosDRG 71,87. Por outro lado, a OXA inibe a prolila hidroxilase (PHD), prevenindo assim a hidroxilação dos resíduos de prolina na região N-terminal do TRPA1, o que aumenta a sensibilidade do canal ao ROS e aumenta significativamente sua resposta aos estímulosfrios 71. Além disso, a OXA ativa a via de sinalização p38 MAPK, promovendo ainda mais a hipersensibilidade ao frio mediada porTRPA1 88.
Estudos em animais forneceram fortes evidências que apoiam esses mecanismos. Em camundongos selvagens tratados com OXA, foram observadas adódinios mecânicos pronunciados e hipersensibilidade ao frio, enquanto essas respostas foram significativamente atenuadas em camundongos knockoutTRPA1 89. Achados consistentes também foram obtidos em um modelo larval de CIPN em peixe-zebra, no qual a ativação do TRPA1 aumentou a produção de ROS promovendo o estresse oxidativo e a transdução do sinal de dor, sustentando assim a resposta àdor 90. Coletivamente, esses achados indicam que o TRPA1 funciona como um nexo crítico que liga a detecção ROS à amplificação da dor, formando uma via central pela qual o estresse oxidativo media a dor neuropática na CIPN.
- O estresse oxidativo é um dos principais fatores tanto para a eficácia antitumoral quanto para a neurotoxicidade dos medicamentosquimioterapêuticos 84. O TRPA1 funciona como um canal iônico sensível a redox e eletrófilo, que é ativado sob condições de elevado estresse oxidativo durante a quimioterapia. Fosfolipídios oxidados (OxPAPCs) e outros eletrófilos derivados de espécies reativas de oxigênio (ROS) modificam covalentemente resíduos de cisteína no domínio N-terminal do TRPA1, ativando assim o canal e promovendo o influxo de cálcio. Essa ativação leva à liberação de neuropeptídeos e mediadores inflamatórios como CGRP e SP, que mediam a transmissão anormal da dor e a inflamação neurogênica na patogêneseCIPN 61,70. Enquanto isso, a inflamação periférica desencadeada por medicamentos quimioterapêuticos resulta em geração e acúmulo excessivo de ROS nos gânglios sensoriais, que ativam e regulam ainda mais o TRPA1, formando um ciclo de retroalimentação positiva ROS-TRPA1 que amplifica a hipersensibilidade inflamatória e mecânica85.
- O papel do TRPA1 na regulação imunológica e na dor inflamatória
TRPA1 é um canal catônico, sensível ao redox, não seletivo, que é expresso tanto no sistema nervoso sensorial periférico quanto em vários tipos de células imunológicas. Pode ser ativado por estresses oxidativos, nitativos e aldeídos induzidos por fármacos quimioterapêuticos, bem como por mediadores inflamatórios e estímulos eletroquímicos, desempenhando assim um papel crítico nas respostas inflamatórias e na sensibilização à dor durante a CIPN24,91,92.- TRPA1 regula a neuroinflamação mediada por células imunes
No sistema nervoso periférico, TRPA1 é melhor caracterizado nos neurônios sensoriais DRG, onde atua como um mediador chave da nocicepção. Durante a quimioterapia, níveis elevados de ROS, espécies reativas de nitrogênio (RNS) e metabólitos aldeídosos, originados principalmente de neurônios lesionados e células de Schwann ao redor, podem ativar diretamente o TRPA1 neuronal, levando a uma excitabilidade neuronal aumentada e hipersensibilidadeà dor 93. Enquanto isso, em neurônios sensoriais, a sinalização TLR4 demonstrou aumentar a expressão de TRPA1 em neurônios DRG, aumentando assim a hipersensibilidade àdor 94.
Além dos neurônios, as células de Schwann também expressam TRPA1, que pode ser ativado pelo estresse oxidativo. Células de Schwann ativadas amplificam os sinais ROS e liberam mediadores inflamatórios, formando um ciclo de retroalimentação "célula-neurônio de Schwann-TRPA1" que sustenta a neuroinflamação e contribui para o desenvolvimento do CIPN72,73. Estudos em animais mostraram que a depleção dos macrófagos residentes no nervo ciático atenua significativamente a dor relacionada ao câncer induzida pela ativação das células de Schwann TRPA1 e pelo estresse oxidativo, destacando a interação entre células de Schwann e células mieloides73.
Além dos neurônios sensoriais, TRPA1 é expresso funcionalmente em várias populações de células imunológicas, incluindo macrófagos, células T, células NK e MCs 24,74,95. ROS, RNS e metabólitos gerados durante a quimioterapia podem ativar o TRPA1 nessas células, levando a diversas respostas imunes dependendo do tipo celular91. Nos macrófagos, o TRPA1 suprime a ativação pro-inflamatória, promove um fenótipo anti-inflamatório e limita a infiltração de macrófagos, exercendo assim efeitos anti-inflamatórios e protetorestecidusuais 14,96. Nos linfócitos, a ativação do TRPA1 suprime a ativação das células T e as funções efetoras, regulando negativamente as respostas imunes mediadas pelas célulasT 97, enquanto o influxo de Ca 2+ mediado por TRPA1 pode aumentar a citotoxicidade das células NK, modulando as respostas neuroinflamatórias após lesãonervosa 52,74. Nos mastócitos, a ativação do TRPA1 tem sido implicada na desgranulação induzida pelo estresse e na sinalização pró-inflamatória, contribuindo para a amplificação da inflamação alérgica eneurogênica 24,75.
Juntas, essas observações sugerem que o TRPA1 atua como um centro de sinalização ligando neurônios, células de Schwann e células imunes, com a ativação elevada do TRPA1 em cada tipo celular contribuindo para o início e manutenção da CIPN. A Figura 5 mostra os mecanismos propostos de diafonia neuroimune mediada por TRPA1 e sinalização de dor no CIPN. - TRPA1 na dor inflamatória e nocicepção relacionada à CIPN
No sistema nervoso sensorial, TRPA1 está predominantemente localizado nos neurônios sensoriais primários da DRG, gânglios do trigêmeo (TG) e gânglios vagos (VG). Produtos oxidativos do estresse, mediadores inflamatórios e sinalização de quinase proteica (PKA/PKC) induzidos por agentes quimioterapêuticos aumentam a fosforilação do TRPA1 e a atividadedos canais 26. A ativação do canal aumenta o influxo intracelular de Ca2+ , desencadeando a liberação de neuropeptídeos como SP, neuroquinina A (NK-A) e CGRP, que promovem vasodilatação, extravasamento plasmático e recrutamento de células imunológicas, induzindo assim inflamação neurogênica e sensibilizaçãoà dor 62.
Em condições inflamatórias, níveis elevados de citocinas pró-inflamatórias (família IL-1, TNF-α, IL-6, IL-8) e quimiocinas (CXCL5/CXCR2) aumentam ainda mais a produção de ROS e a ativação do TRPA1, levando à despolarização da membrana e hiperexcitabilidade dos neurônios DRG, contribuindo para a dor neuropática. Além disso, mediadores inflamatórios como o NGF aumentam a expressão do TRPA1, formando um ciclo de retroalimentação positiva que sustenta inflamação edor 14,98,99,100. O TRPA1 também participa tanto da sensibilização periférica quanto central, amplificando assim a transmissão da dor101.
Além disso, o TRPA1 promove a sinalização nociceptiva ao modular as vias relacionadas à inflamação. O aumento do TRPA1 aumenta o influxo de Ca2+ e ativa a via da panexina-1 (PANX1), aumentando a liberação de trifosfato de adenosina (ATP). O ATP extracelular, atuando como neurotransmissor, contribui ainda mais para a hipersensibilidade à dor102. Agentes quimioterapêuticos também podem sensibilizar TRPA1 por meio da ativação dos receptores de bradicinina B2 e da sinalização posterior de PLC/PKCε em mastócitos, agravando a dor relacionada àCIPN 103. Por outro lado, compostos opioides como a loperamida demonstraram suprimir a atividade TRPA1 e dos canais de sódio dependente de voltagem (VGSC), inibir a ativação microglial e o estresse oxidativo, e consequentemente aliviar a hiperalgesia em CIPN104,105.
Em resumo, o TRPA1 atua como um alvo molecular chave que liga o estresse oxidativo e a sinalização inflamatória no CIPN. Ao coordenar interações bidirecionais entre células imunes e neurônios sensoriais, o TRPA1 não apenas inicia e propaga a inflamação, mas também amplifica a dor, servindo como uma ponte crítica entre a regulação imunológica, neuroinflamação e hipersensibilidade nociceptiva. - Diafonia do canal iônico mediado por TRPA1 e sensibilização neuronal por DRG
O TRPA1 é altamente expresso em neurônios sensoriais lesionados, especialmente na DRG, e atua como um canal iônico chave mediador do CIPN. Ele modula a excitabilidade neuronal e promove a transmissão do sinal nociceptivo por meio de interações com múltiplos canais iônicos. Por exemplo, a ativação do TRPV1 pode aumentar a sensibilidade ao TRPA1, e ambos os canais frequentemente são coexpressos, contribuindo sinergisticamente para a alodinia fria e hiperalgesiamecânica 76,106. Além disso, o TRPA1 apresenta funções complementares com o canal sensível ao frio TRPM8: o TRPM8 media sensações de resfriamento inocentes na faixa de 25-28 °C, enquanto o TRPA1 é ativado abaixo de 17 °C e é responsável por detectar estímulos intensos e nocivos de frio. A ativação anormal de ambos os canais foi implicada na hipersensibilidade ao frio comumente observada em pacientes comCIPN 77. O estresse oxidativo induzido pela quimioterapia e o aumento da atividade dos canais Ca2+ podem ativar ainda mais os canais TRPA1, levando a disparos frequentes do potencial de ação dependentes dos canais de Na+ dependentes de voltagem (Nav1.7)78,79. Além disso, Zn2+ pode ativar diretamente o TRPA1 para promover a liberação do CGRP80, enquanto canais K+ dependentes de voltagem (Kv7) exercem um efeito regulatório negativo sobre esseprocesso 81. Coletivamente, a interação cooperativa entre TRPA1 e outros canais iônicos, incluindo TRPV1, TRPM8, Ca2+, Na+, K+ e Zn2+, amplifica a excitabilidade neuronal e a transmissão nociceptiva no CIPN.
Além disso, a homeostase intracelular do pH pode modular a atividade do TRPA1. O trocador Na+/H+ 1 (NHE1) influencia a sensibilidade ao TRPA1 ao regular o pH intracelular. Em condições de lesão inflamatória ou induzida por quimioterapia, TRPA1 e NHE1 interagem nos neurôniosDRG 87,107, e a acidificação intracelular aumenta a resposta do TRPA1, levando a um aumento da frequência do potencial de ação e à liberação elevada de neurotransmissores como glutamato e CGRP82,83. Esse processo contribui para dor inflamatória e hipersensibilidade ao frio e ainda sustenta a neuroinflamação. Por outro lado, a inibição da expressão ou função de TRPA1 nos neurônios DRG atenua significativamente a transmissão nociceptiva e as respostasneuroinflamatórias 108.
Em resumo, o TRPA1 atua como um centro molecular central que liga o estresse oxidativo e a sinalização do canal iônico no CIPN. Por meio de extensa comunicação cruzada com múltiplos canais iônicos e mecanismos reguladores intracelulares, o TRPA1 promove a hiperexcitabilidade dos neurônios sensoriais e a hipersensibilização da dor, representando um alvo molecular crítico para o tratamento da dor associada à CIPN. A Figura 6 mostra o mecanismo pelo qual o TRPA1 modula a excitabilidade neuronal e aprimora a sinalização nociceptiva por meio de interações com vários canais iônicos.
- TRPA1 regula a neuroinflamação mediada por células imunes
3. Potencial de direcionar TRPA1 para tratamento com CIPN
Na seção anterior, elucidamos como o TRPA1 é um alvo chave para aliviar a CIPN, desencadeando uma resposta em cascata neuroinflamatória. O mecanismo de ação do TRPA1 é duplo: por um lado, o TRPA1 é diretamente modulado pela cascata neuroinflamatória e participa do processo patológico do CIPN; por outro lado, o TRPA1 interage com sinais inflamatórios, que por sua vez mediam respostas neurotóxicas e agravam os danos neuronais. Portanto, a inibição direcionada do TRPA1 pode reduzir o estresse oxidativo e as respostas neuroinflamatórias, atenuar a sinalização da dor e, por fim, melhorar os sintomas relacionados à CIPN. A Figura 7 mostra os mecanismos propostos pelos quais a inibição do TRPA1, seja por antagonistas específicos ou agentes naturais naturais, mitiga a dor neuropática associada à CIPN.
- Antagonista do TRPA1
O TRPA1 pode ser ativado por substâncias exógenas (por exemplo, óleo de mostarda e cinamaldeído) e por substâncias endógenas (por exemplo, produtos oxidativos do estresse e mediadores inflamatórios) para causar dor, coceira einflamação. Por esse motivo, o TRPA1 foi reconhecido como um alvo terapêutico com amplo potencial de aplicação, incluindo manejo da dor, doenças inflamatórias e distúrbios neurológicos. Portanto, pesquisar e desenvolver antagonistas do TRPA1 é fundamental.
Vários antagonistas do TRPA1 demonstraram potencial de valor terapêutico no alívio do CIPN109,110,111,112,113,114,115,116,117. Seus principais mecanismos envolvem a supressão das respostas ao estresse oxidativo mediadas pelo TRPA1, o influxo de cálcio e a sinalização neuroinflamatória, exercendo assim efeitos antagônicos sobre a atividade do TRPA1. Em estudos pré-clínicos, o bloqueador seletivo TRPA1 HC-030031 aliviou significativamente a hipersensibilidade mecânica e ao frio induzida por OXA eCDDP 28. Enquanto isso, antagonistas de próxima geração como GRC-17536 e LY-3526318 avançaram para ensaios clínicos de fase II para neuropatia diabética, tosse crônica e dor neuropática relacionada à osteoartrite, mostrando boa tolerabilidade e eficácia preliminar109,113.
A Tabela 3 fornece um resumo do status atual de desenvolvimento e das aplicações clínicas dos antagonistas representativos do TRPA1. Esses estudos fornecem evidências clínicas que apoiam o potencial translacional dos antagonistas do TRPA1 no tratamento da dor neuropática. No entanto, a maioria dos antagonistas do TRPA1 ainda está limitada pela baixa biodisponibilidade e possíveis efeitos fora do alvo 115,118,119, e ainda não entrou na avaliação clínica específica do CIPN. Pesquisas futuras devem focar na otimização da seletividade dos compostos e das propriedades farmacocinéticas, bem como no desenho de ensaios clínicos especificamente direcionados ao CIPN, para validar a relevância terapêutica da inibição do TRPA1 nesse contexto.
Além do antagonismo direto, a modulação da atividade do TRPA1 por outros alvos moleculares também mostrou potencial no CIPN. Os receptores Sigma-1 exercem funções regulatórias sobre uma variedade de canais iônicos, e os antagonistas dos receptores Sigma-1 demonstraram inibir significativamente a expressão e a função da membrana plasmática dos canais TRPA1, prevenindo assim a progressão dos sintomas de dor em camundongos modeloCIPN induzidos por OXA, 89. Um estudo de Trevisan et al. demonstrou que os sintomas de hipersensibilidade à CIPN induzidos pelo bortezomibe poderiam ser efetivamente prevenidos e aliviados pelo uso concomitante do antagonista do TRPA1 HC-030031 ou do ácido antioxidante α-lipoico antes ou no momento daquimioterapia 120. Além disso, no contexto da neurotoxicidade induzida por medicamentos quimioterapêuticos, os inibidores do TRPA1 conseguem mitigar danos neurológicos ao reduzir a sinalização pró-inflamatória dependente de cálcio.
Em resumo, os antagonistas do TRPA1 desempenham papéis importantes na prevenção e tratamento da CIPN, modulando a função e inibindo a atividade desse canal, entre outros mecanismos, para atenuar a hipersensibilidade à dor e aliviar danos nervosos. - Moduladores da atividade do TRPA1 como novas opções para o tratamento com CIPN
O TRPA1 está envolvido nos processos patológicos da CIPN por meio da resposta em cascata neuroinflamatória e da lesão neurotóxica, podendo ser um novo alvo para o tratamento da CIPN.
Diversos estudos demonstraram que certas ervas naturais e seus componentes ativos estão intimamente associados à regulação da atividade dos canais TRPA1 e apresentam efeitos biológicos, como ações anti-inflamatórias e analgésicas, fornecendo assim estratégias potenciais para a prevenção e tratamento da CIPN. Por exemplo, foi demonstrado que a liquirina possui propriedades anti-inflamatórias significativas121, enquanto a alicina apresenta potencial analgésico devido às suas características antioxidantes e anti-inflamatórias122; ambos os compostos estão envolvidos na modulação da atividade do canal TRPA1. Com base nesses achados, especula-se que esses compostos naturais possam aliviar a percepção da dor relacionada à CIPN e as respostas neuroinflamatórias por meio da regulação da atividade do TRPA1, exercendo assim potenciais efeitos terapêuticos. Estudos posteriores revelaram que o mentol apresenta um efeito regulador bidirecional nos canais TRPA1, ativando TRPA1 em baixas concentrações enquanto inibe sua atividade em concentrações mais altas. O uso adequado do mentol pode, portanto, modular a atividade do TRPA1 para alcançar efeitos analgésicos e anti-inflamatórios em pacientes com CIPN123. Da mesma forma, a canela, tradicionalmente usada como terapia de aquecimento para promover a circulação sanguínea, contém cinnamaldeído como seu principal componente ativo. Li et al. relataram que a cinnamaldeído ativa os receptores TRPA1, promovendo a termogênese no tecido adiposo marrom e, assim, ajudando a manter a temperatura corporal e aliviar a sensibilidade ao frio124. Além disso, o cinnamaldeído aumenta a resposta antioxidante ao ativar o fator nuclear relacionado ao eritroide 2 (Nrf2)125. Coletivamente, o mentol, ao inibir TRPA1 em concentrações mais altas, pode aliviar a alodinia mecânica e fria característica da CIPN, enquanto o cinnamaldeído, por meio de seus mecanismos antioxidantes ativadores da TRPA1 e mediados pela Nrf2, pode combater o estresse oxidativo induzido pela quimioterapia e melhorar a intolerância ao frio em pacientes com CIPN. Além disso, os extratos de bergenin monohidrato, ligustrazina, saikosaponina e água do Notopterygium incisum têm demonstrado reduzir a dor neuropática126,127,128,129.
Tabela 4 resume as fontes naturais de ervas dos ligandos TRPA1 e seus possíveis mecanismos para aliviar o CIPN. Esses achados destacam o potencial dos componentes da MTC para mitigar a neurotoxicidade na CIPN. Embora uma variedade de compostos naturais tenha sido identificada como moduladores TRPA1 com potenciais efeitos terapêuticos, a maioria deles permanece no in vitro e estágios de pesquisa com animais, e as evidências de sua eficácia no CIPN são principalmente derivadas de modelos pré-clínicos. Em contraste, apenas o mentol possui evidências humanas limitadas de prova de conceito e ensaios clínicos registrados em andamento130. Esses achados sugerem coletivamente que, embora produtos naturais direcionados ao TRPA1 mostrem grande potencial para aliviar a neurotoxicidade relacionada ao CIPN, são necessários estudos clínicos bem elaborados para validar seu potencial translacional e eficácia terapêutica.
Moduladores naturais de TRPA1 identificados a partir de extratos vegetais não apenas oferecem novas perspectivas terapêuticas para o manejo da dor, mas também representam fontes naturais potenciais para o tratamento da CIPN. Evidências crescentes indicam que compostos naturais podem aliviar sintomas neurotóxicos induzidos pela quimioterapia ao suprimir a superativação do TRPA1 ou exercer efeitos regulatórios bidirecionais no canal, alcançando assim resultados tanto analgésicos quanto anti-inflamatórios. No entanto, apesar do potencial pré-clínico promissor, a validação clínica sistemática permanece insuficiente. Além disso, esses compostos tipicamente exibem características regulatórias multi-alvo e multi-via, dificultando a definição da contribuição específica da modulação TRPA1 para seus efeitos terapêuticos gerais. Estudos futuros devem focar em elucidar os mecanismos moleculares pelos quais moduladores naturais de TRPA1 influenciam a CIPN, explorar as interações sinérgicas entre TRPA1 e outros canais iônicos ou vias de sinalização, e conduzir ensaios clínicos bem elaborados para confirmar sua eficácia e segurança. Tais esforços serão essenciais para traduzir agentes naturais que visam TRPA1 em estratégias práticas para o manejo do CIPN.
4. Discussão
De acordo com as estatísticas mais recentes da Agência Internacional para Pesquisa sobre o Câncer (IARC), haverá quase 20 milhões de novos casos de câncer em 2022, e aproximadamente 50% desses pacientes com câncer eventualmente morrerão devido ao câncer ou suas complicações. As projeções da IARC também indicam que o número de novos casos de câncer por ano ultrapassará 35 milhões em 2050. O câncer é, portanto, uma grande preocupação de saúde pública em todo o mundo e um dos principais contribuintes para o peso global dadoença 1. Embora terapias inovadoras para o câncer (por exemplo, terapias direcionadas e imunoterapia) continuem sendo pesquisadas e desenvolvidas, a quimioterapia ainda desempenha um papel central no tratamento do câncer. O CIPN é um efeito colateral comum da quimioterapia e afeta o curso do tratamento e sua eficácia. No entanto, a patogênese da NPI não é clara, mas pode estar relacionada à disfunção mitocondrial, estresse oxidativo, anormalidades no sistema imunológico, desregulação dos canais iônicos e danos nos neurônios daDRG 2. Atualmente, apenas a duloxetina foi recomendada pela ASCO para o manejo da dor em pacientes com CIPN. Apesar de sua eficácia analgésica demonstrada, o benefício clínico geral da duloxetina é moderado, pois ela proporciona principalmente alívio sintomático, em vez de prevenir a CIPN ou reverter alterações patológicassubjacentes 8. Portanto, explorar os potenciais alvos do CIPN é importante para o desenvolvimento de medicamentos e a terapia de precisão.
Os canais TRP, que são mediadores-chave da sinalização nociceptiva, têm recebido cada vez mais atenção no contexto do desenvolvimento das terapias CIPN. Entre os canais de TRP, o TRPA1 foi sugerido como um fator chave na indução da hipersensibilidade à dor por uma variedade de agentesquimioterapêuticos 131. Portanto, este estudo foca no papel do TRPA1 na patogênese da CIPN e elucida ainda mais os mecanismos pelos quais ele media a dor neuropática, como ilustrado na Figura 8. Esse canal é ativado pelo estresse oxidativo para provocar dor mecânica anormal e hipersensibilidade aofrio 61,70,71, e está envolvido na nocicepção inflamatória ao modular células imunes para mediar aneuroinflamação 62,72,73,74,75. Além disso, canais TRPA1 interagem com TRPV1, TRPM8 e canais dependentes de tensão como Ca2+, Nav1.7, Zn2+ e Kv7. Essas interações amplificam as respostas neuropáticas e inflamatórias àdor 76,77,78,79,80,81. Essa modulação sinérgica tem implicações clínicas significativas. Como TRPA1, TRPV1 e TRPM8 são coexpressos em neurônios sensoriais e podem regular mutuamente a atividade uns dos outros, inibidores duplos ou multi-alvo são capazes de produzir efeitos analgésicos mais pronunciados do que aqueles que visam apenas TRPA1. Além disso, essa interação sinérgica permite que cada composto alcance eficácia analgésica comparável em doses menores, reduzindo assim os potenciais efeitos adversos. Da mesma forma, a DRG, alvo da neurotoxicidade CIPN, é afetada pelo TRPA1. A ativação do TRPA1 aumenta a excitabilidade dos neurônios da DRG, o que por sua vez promove a liberação de neurotransmissores da DRG, levando a uma hipersensibilidade aumentada aos sintomas nociceptivos82,83. Em conclusão, o TRPA1 pode agravar a dor neuropática em pacientes com CIPN ao induzir uma resposta em cascata neuroinflamatória. Assim, antagonizar o TRPA1 pode aliviar efetivamente os sintomas inflamatórios e dolorosos do CIPN, o que também sugere que a aplicação de antagonistas do TRPA1 e ervas naturais é crucial.
A eficácia dos antagonistas do TRPA1 foi demonstrada de forma eficaz em modelos animais. Por exemplo, em camundongos TRPA1 KO e com a aplicação de antagonistas TRPA1 (por exemplo, HC-030031), os sintomas de dor neuropática induzida por medicamentos quimioterapêuticos são significativamenteatenuados 86,89. No entanto, ainda existem limitações na aplicação dos antagonistas TRPA1, pois ensaios clínicos para pacientes com CIPN ainda não foram conduzidos, sugerindo que a segurança e a eficácia dos antagonistas TRPA1 em humanos precisam ser avaliadas e confirmadas adicionalmente. Por exemplo, diferenças nos padrões de expressão do TRPA1 e na sensibilidade aos antagonistas entre roedores e humanos podem levar a discrepâncias entre os resultados pré-clínicos e clínicos. Além disso, a conversão de doses experimentais de animais para humanos permanece incerta, aumentando ainda mais a complexidade do desenvolvimento de medicamentos.
Além disso, os mecanismos precisos pelos quais o TRPA1 funciona como alvo terapêutico no CIPN ainda não foram totalmente elucidados, e seus papéis específicos de tecidos exigem investigação adicional. Dada a ampla expressão do TRPA1 em neurônios sensoriais, células de Schwann e células imunes, delimitar suas funções específicas em diferentes contextos celulares continua desafiador. A maioria dos estudos existentes depende de antagonistas sistêmicos do TRPA1, dificultando atribuir com precisão os efeitos observados a compartimentos celulares específicos. Deve-se enfatizar que o TRPA1 expresso nos neurônios sensoriais media diretamente a sinalização nociceptiva, enquanto o TRPA1 em células de Schwann e células imunes regula principalmente processos inflamatórios e microambientais que modulam secundariamente a sensibilidade à dor. Portanto, a deleção específica de tecidos do TRPA1 forneceria importantes insights mecanicistas. A perda neuronal específica de TRPA1 pode esclarecer seu papel direto na excitabilidade do nociceptor e na transmissão da dor, enquanto a deleção específica das células de Schwann pode elucidar como o estresse oxidativo impulsionado por TRPA1 e as interações glial-neuronais promovem neuroinflamação sustentada. Importante, modelos de eliminação TRPA1 específicos para células imunes (por exemplo, em macrófagos ou células T) ajudariam a definir a contribuição da sinalização imune TRPA1 para a diafonia neuroimune e regulação inflamatória na CIPN. Tais abordagens aprofundariam substancialmente nossa compreensão das funções específicas de tecidos e células do TRPA1 e facilitariam o desenvolvimento de estratégias terapêuticas mais precisas. Enquanto isso, múltiplos aspectos do antagonismo da TRPA1 no tratamento da CIPN ainda precisam ser explorados mais a fundo. Por exemplo, se o TRPA1 apresenta papéis funcionais diferenciais na CIPN induzidos por agentes quimioterapêuticos distintos, e como sua atividade pode ser modulada com mais precisão para alcançar a eficácia terapêutica ideal, permanecem questões importantes não resolvidas.
Nesse contexto, o uso combinado de antagonistas TRPA1 com compostos naturais de fitoterapia ou formulações da medicina tradicional chinesa representa uma abordagem terapêutica promissora. Essa terapia combinada pode não apenas reduzir a toxicidade relacionada a medicamentos, mas também aumentar a eficácia por meio de efeitos sinérgicos multi-alvo. No geral, o TRPA1 antagonizante pode modular as respostas imunes e interromper cascatas neuroinflamatórias, mitigando assim efetivamente a neurotoxicidade e os danos neuronais, oferecendo novos insights e estratégias potenciais para o manejo clínico da CIPN.
Conclusões
Esta revisão explora de forma abrangente a relação complexa entre TRPA1 e CIPN, bem como os potenciais efeitos anti-inflamatórios do antagonismo do TRPA1 em seu tratamento. Estudos pré-clínicos mostraram que a inibição farmacológica ou a deleção genética do TRPA1 podem suprimir a neuroinflamação, reduzir a excitabilidade neuronal e mitigar a neurotoxicidade, produzindo assim efeitos anti-inflamatórios e analgésicos que podem ajudar a aliviar os sintomas do CIPN. No entanto, ainda existem algumas limitações na pesquisa atual. Estudos futuros devem explorar mais profundamente os mecanismos moleculares específicos subjacentes ao envolvimento do TRPA1 no CIPN, otimizar estratégias de direcionamento e conduzir ensaios clínicos em larga escala para verificar a segurança e eficácia dos antagonistas do TRPA1. Isso proporcionará opções de tratamento mais precisas e eficazes para pacientes com CIPN.
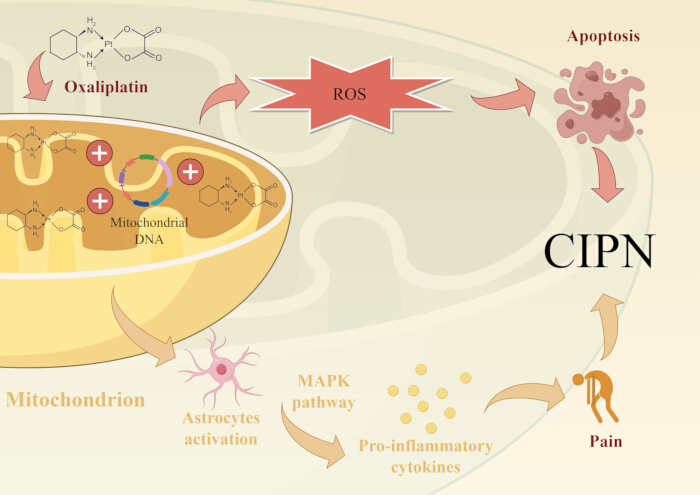
Figura 1: Disfunção mitocondrial e mecanismos CIPN induzidos por estresse oxidativo. Agentes quimioterapêuticos à base de platina formam adutos de DNA platinado que se acumulam na DRG, onde se ligam ao nDNA e ao mtDNA. Isso induz danos ao DNA/mitocondrial, aumenta a produção de ROS e induz a apoptose neuronal. Também há evidências de que a OXA induz dor neuropática ativando astrócitos e regulando cinocinas pró-inflamatórias na via MAPK. Por favor, clique aqui para ver uma versão ampliada desta figura.
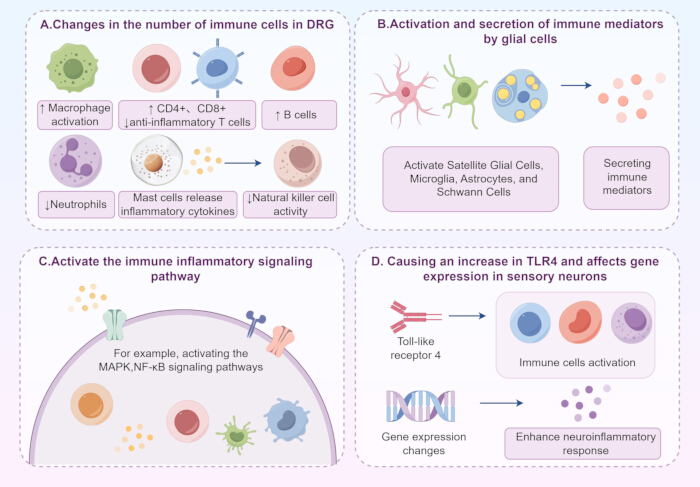
Figura 2: Mecanismos de indução de CIPN por anomalias no sistema imunológico. (A) Agentes quimioterapêuticos levam à ativação de macrófagos, aumento no número de linfócitos T (CD4+), células T citotóxicas (CD8+) e células B na DRG, além de uma diminuição no número de células T anti-inflamatórias e neutrófilos. Os MCs contribuem para a progressão da CIPN ao recrutar células imunes e liberar uma variedade de citocinas inflamatórias na CIPN, diminuindo assim a atividade das células NK, o que por sua vez agrava a neuroinflamação e o estresse oxidativo. (B) Agentes quimioterapêuticos modulam a ativação e a secreção de mediadores imunes a partir de SGCs no DRG, microglia e astrócitos na medula espinhal, e células de Schwann nos axônios, resultando em aumento da excitabilidade dos neurônios sensoriais e hipersensibilidade à dor intensificada na CIPN. (C) A ativação de vias de sinalização imuno-inflamatória, como MAPK e NF-κB, também desempenha um papel importante no agravamento das respostas neuroinflamatórias. (D) Agentes quimioterapêuticos também podem ativar células imunes e aumentar as respostas neuroinflamatórias ao aumentar o TLR4 e desencadear a desregulação gênica associada. Por favor, clique aqui para ver uma versão ampliada desta figura.
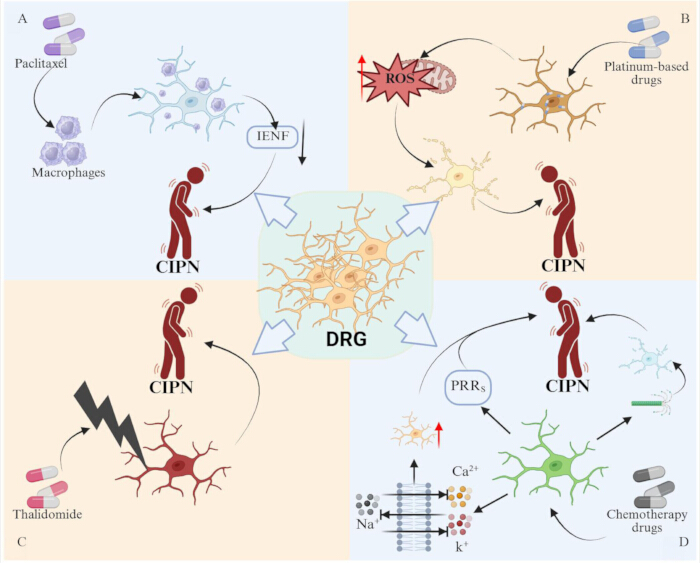
Figura 3: A DRG é um alvo importante para agentes quimioterapêuticos desencadearem a CIPN. (A) A PTX pode levar à infiltração de macrófagos na DRG, o que, por sua vez, desencadeia uma diminuição no número de IENFs. (B) Medicamentos de platina se acumulam na DRG, levando à disfunção mitocondrial e ao aumento dos níveis de ROS, que, por sua vez, promovem a apoptose neuronal. (C) A talidomida pode danificar diretamente a DRG. (D) Agentes quimioterapêuticos também podem danificar os neurônios da DRG ao alterar canais de íons de sódio, potássio e cálcio, perturbar a estrutura dos microtúbulos e ativar os PRRs. Por favor, clique aqui para ver uma versão ampliada desta figura.
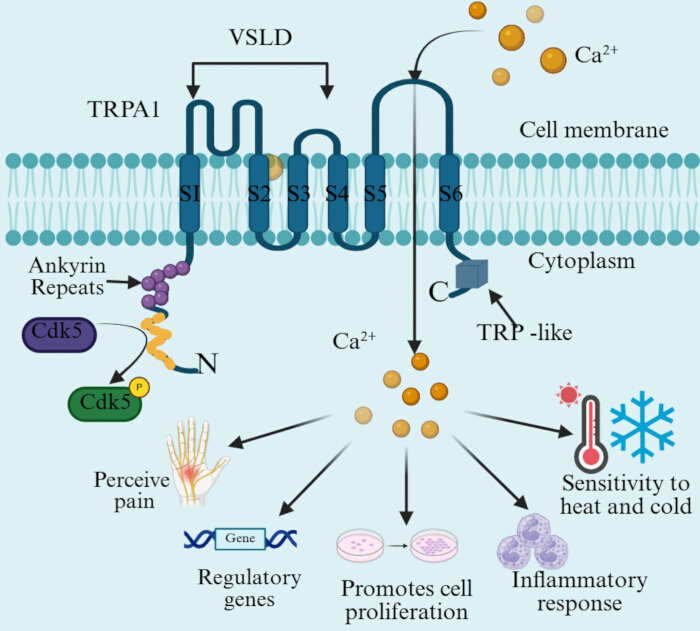
Figura 4: Os principais domínios estruturais do TRPA1 relevantes para sua ativação por agentes quimioterapêuticos. O canal TRPA1 contém seis fragmentos transmembranares α-helicoidais (S1-S6). Entre eles, S1-S4 constituem o VSLD, e S5 e S6 formam uma estrutura de laço poroso côncavo. Tanto as extremidades NH2 quanto COOH do canal TRPA1 estão localizadas no citoplasma. Um dos terminais mais longos da NH2 contém ARDs e o sítio Cdk5, enquanto o C-terminal do TRPA1 contém um domínio semelhante ao TRP e está ligado ao domínio estrutural transmembrana. A ativação dos canais pode causar influxo de Ca2+ , que por sua vez desencadeia uma série de vias de sinalização celular, como aquelas que regulam a expressão gênica, promovem a proliferação celular e induzem respostas inflamatórias. A estrutura do TRPA1 dita sua função na percepção da dor e da sensibilidade ao calor/frio. Por favor, clique aqui para ver uma versão ampliada desta figura.
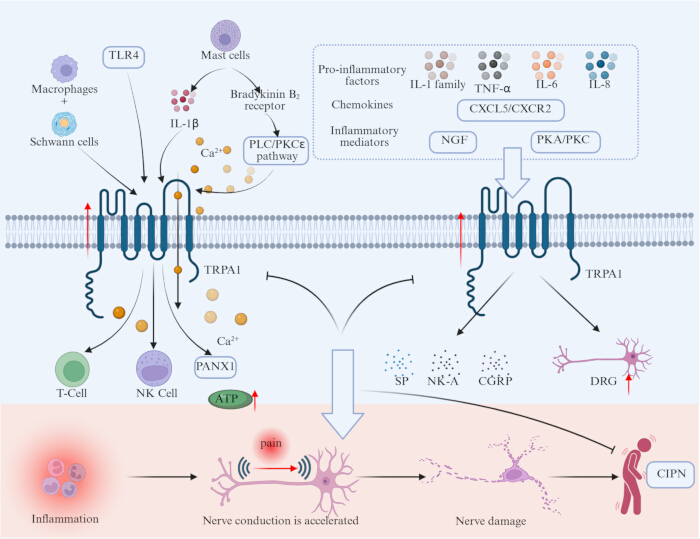
Figura 5: TRPA1 regula a nocicepção neuroinflamatória mediada por células imunológicas. Células imunes (macrófagos, células de Schwann e MCs), fatores pró-inflamatórios (família IL-1, TNF-α, IL-6, IL-8), quimiocinas (CXCL5/CXCR2), mediadores inflamatórios (NGF, PKA/PKC) e TLR4 podem ativar os canais TRPA1. A ativação dos canais TRPA1 pode aumentar a concentração intracelular de Ca2+ , o que promove a liberação de SP, NK-A e CGRP, afeta as células imunes (células T, células NK) e modula as vias relacionadas à inflamação (via PANX1), aumentando assim a excitabilidade dos neurônios DRG e mantendo a neuroinflamação e a dor persistente. Por favor, clique aqui para ver uma versão ampliada desta figura.
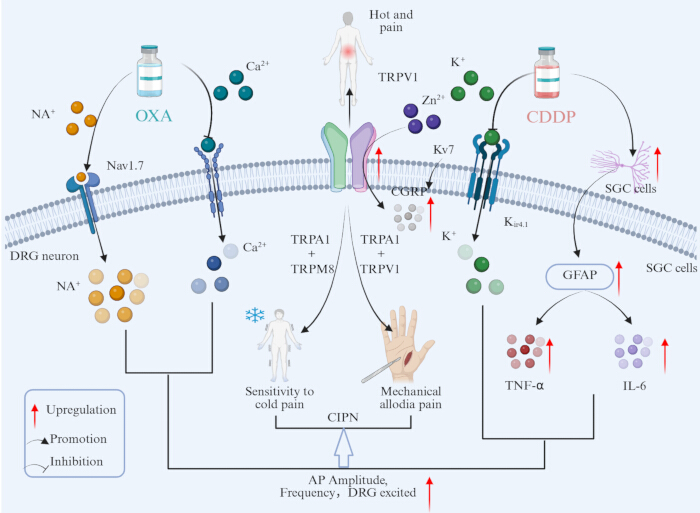
Figura 6: TRPA1 modula os canais iônicos para acelerar a sinalização de dor. TRPA1 e TRPM8 estão envolvidos na hipersensibilidade ao frio, e TRPA1 e TRPV1 estão envolvidos na alodinia mecânica. Além disso, canais TRPA1 com Ca2+, Nav1.7, Zn2+, Kv 7 e Kir4.1 dependentes de voltagem promovem a liberação de mediadores inflamatórios (por exemplo, CGRP, GFAP) e fatores pró-inflamatórios (por exemplo, TNF-α, IL-6), desencadeando a hiperexcitabilidade dos neurônios DRG, o que por sua vez exerce um efeito sinérgico no agravamento da dor neuropática e inflamatória. Por favor, clique aqui para ver uma versão ampliada desta figura.
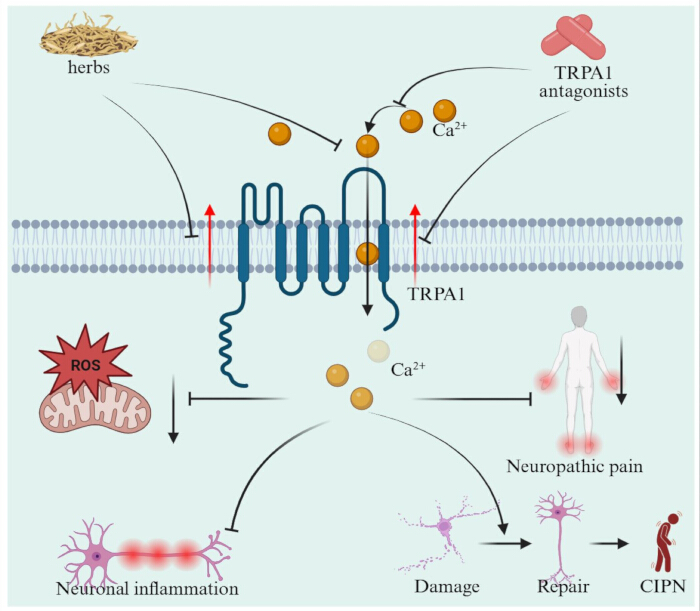
Figura 7: Potencial de direcionar TRPA1 para tratamento com CIPN. O uso de antagonistas do TRPA1 e ervas naturais pode inibir a atividade dos canais do TRPA1, reduzindo assim o fluxo de Ca2+ e o estresse oxidativo, que, por sua vez, suprimem as respostas neuroinflamatórias e reduzem a dor neuropática, reduzindo os danos nervosos e melhorando os sintomas relacionados ao CIPN. Por favor, clique aqui para ver uma versão ampliada desta figura.
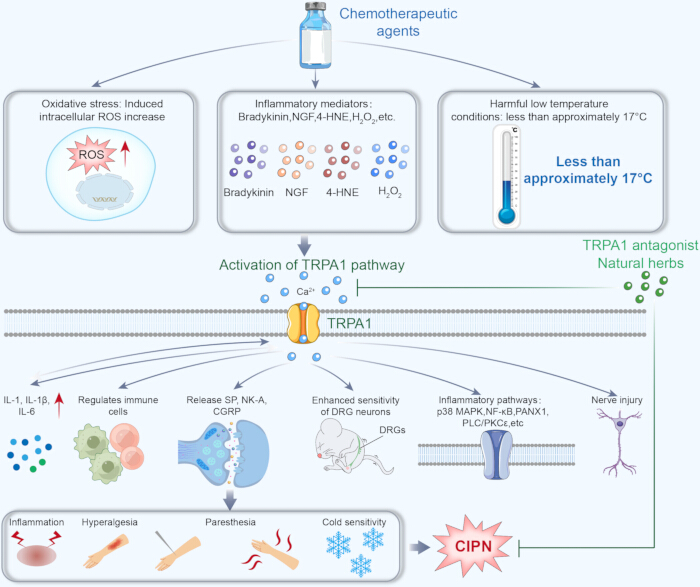
Figura 8: Inibindo o TRPA1. Uma Estratégia Terapêutica para o CIPN. A ativação do TRPA1 impulsiona inflamação e hipersensibilidade no CIPN; sua inibição por antagonistas ou ervas pode reduzir a inflamação neurogênica, a sensibilização nociceptiva e os sintomas de CIPN. Por favor, clique aqui para ver uma versão ampliada desta figura.
Tabela 1: Potenciais mecanismos subjacentes à CIPN. Agentes quimioterapêuticos contribuem para a CIPN por meio de múltiplas vias patológicas, incluindo disfunção mitocondrial e estresse oxidativo, anormalidades do sistema imunológico, desregulação dos canais iônicos, lesão neuronal da DRG e perturbação do citoesqueleto neuronal. Esses mecanismos coletivamente levam à neuroinflamação, neurotoxicidade e dor neuropática. Por favor, clique aqui para baixar esta Tabela.
Tabela 2: Mecanismos da CIPN associados ao TRPA1. O TRPA1 contribui para a CIPN por meio de múltiplos processos patológicos, incluindo ativação induzida por estresse oxidativo, modulação imune e inflamação, interações dos canais iônicos e lesão neuronal da DRG. Esses mecanismos aumentam coletivamente a excitabilidade neuronal e promovem a dor neuropática e a hipersensibilidade. Por favor, clique aqui para baixar esta Tabela.
Tabela 3: Status atual de desenvolvimento e indicações clínicas de antagonistas representativos do TRPA1. Esta tabela resume os principais antagonistas do TRPA1 investigados em estudos pré-clínicos e clínicos, incluindo seus mecanismos de ação, indicações terapêuticas e estágios de desenvolvimento de fármacos. Esses agentes inibem a atividade dos canais TRPA1, reduzindo assim o estresse oxidativo, a inflamação e a dor neuropática associada ao CIPN e outras condições patológicas. Por favor, clique aqui para baixar esta Tabela.
Tabela 4: Fontes naturais de ervas dos ligantes TRPA1 e seus potenciais mecanismos para aliviar o CIPN. Esta tabela resume compostos naturais representativos e extratos herbais que modulam a atividade do TRPA1, incluindo suas fontes, tipos químicos, condições experimentais e alvos moleculares. Esses agentes naturais exercem efeitos neuroprotetores e anti-inflamatórios ao regular TRPA1 e vias de sinalização relacionadas, aliviando assim o estresse oxidativo, a neuroinflamação e a hiperexcitabilidade neuronal associadas à CIPN. Por favor, clique aqui para baixar esta Tabela.
Divulgações
Não há conflitos financeiros de interesse a serem divulgados.
Agradecimentos
Os autores gostariam de expressar sua gratidão a todos os membros do grupo de Mingzhu Li pelo apoio e ajuda. Este manuscrito foi apoiado pela China National Natural Science Foundation (82104838), pelo Programa Spark da China Promotion Foundation (XH-D001) e pelo Programa Provincial Chave de Pesquisa e Desenvolvimento de Liaoning (2024JH2/102500062), que é muito reconhecido. As Figuras 1 e 2 foram desenhadas usando FigDraw.
Referências
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).