В данном видео демонстрируется получение рекомбинантных вирусов кори с использованием липосом для доставки в клетки-продуценты плазмид, кодирующих вирусный антигеном и основные вспомогательные белки. Транскрибированная и реплицированная РНК приводит к образованию вирусных частиц, экспрессирующих иммуностимулирующие и флуоресцентные репортерные белки. Затем с помощью флуоресцентной микроскопии визуализируется образование синцитиев, что подтверждает успешное производство рекомбинантного вируса.
Методическая статья
Создание рекомбинантного вируса кори, кодирующего иммуностимулирующий белок
22 просмотров
⸱
30 сентября 2026 г.
В этой статье
Аннотация
Протокол
ПРИМЕЧАНИЕ: [O], [P] и [M] обозначают подразделы, применимые соответственно к: онколитическим вирусам (ОВ) в целом, (большинству) парамиксовирусов или только к вирусу кори (ВК). [B] обозначает разделы, специфичные для трансгенов биспецифических активаторов Т-клеток (BTE).
1 Клонирование трансгенов, кодирующих иммуномодуляторы, в векторы вируса кори
- [O] Разработка последовательности вставки.
- [O] Выберите интересующий вас иммуномодулятор на основе литературных данных или исследовательских данных, таких как генетический скрининг, и определите соответствующую последовательность комплементарной ДНК (кДНК) с помощью подходящих баз данных, таких как GenBank, Европейский нуклеотидный архив (European Nucleotide Archive) или международная информационная система по иммуногенетике (IMGT).
- [O] Добавьте дополнительные элементы в последовательность трансгена (Рисунок 1). Предшествующая последовательность Козака и видоспецифическая оптимизация кодонов могут повысить уровень экспрессии. Сигнальные последовательности необходимы для секреции. Включите последовательности, кодирующие N- и/или C-концевые белковые метки для детекции и очистки. Предусмотрите сайты рестрикции для вставки в вектор.
ПРИМЕЧАНИЕ: [M] Для экспрессии трансгена из рекомбинантных геномов MV необходимы дополнительные транскрипционные единицы (ATU), содержащие сигналы начала и остановки гена полимеразы MV. Ранее были разработаны подходящие антигеномные кДНК-векторы под управлением промоторов цитомегаловируса (CMV), содержащие ATU с уникальными сайтами рестрикции для введения трансгенов в прямой ориентации в определенные позиции. [P] Правильное позиционирование трансгена имеет решающее значение, так как оно влияет на репликацию вируса и экспрессию трансгена из-за градиента экспрессии, характерного для парамиксовирусов. Введение в ATU, расположенную близко к 3'-концу антигенома (т. е. в лидерной позиции или ниже гена P), обычно приводит к высокой экспрессии трансгена за счет снижения репликации вируса. При использовании ATU ниже гена H можно ожидать усиления репликации и более низких уровней экспрессии трансгена. Упаковка генома нескольких парамиксовирусов, включая вирус кори, требует связывания шести нуклеотидов каждым белком нуклеокапсида. При вставке трансгенов в такие вирусы убедитесь, что количество нуклеотидов всего генома будет делиться на шесть. Это также называют «правилом шести». При необходимости добавьте дополнительные нуклеотиды во вставку (выше последовательности Козака или ниже стоп-кодона), не допуская сдвига рамки считывания или появления преждевременных стоп-кодонов. [M] Избегайте в трансгене последовательностей, которые схожи с сигналами начала (AGGRNCMARGW) и остановки (RTTAWANAAAA) генов MV, а также последовательностей редактирования РНК (AAAAAGGG). - [O] Закажите олигонуклеотиды с нужной последовательностью или соберите их из имеющихся последовательностей, используя стандартный молекулярный клонинг.
ПРИМЕЧАНИЕ: [O] Для амплификации трансгена методом полимеразной цепной реакции (ПЦР) разработайте прямой праймер, включающий вышележащий сайт рестрикции и первые 15–20 нуклеотидов вставки, и обратный праймер, включающий последние 15–20 нуклеотидов вставки с последующим нижележащим сайтом рестрикции.
- [O] Клонирование вставки в ДНК, кодирующую вирусный (анти-)геном.
- [O] Клонируйте вставку в ДНК-векторы или ДНК-антигеномы РНК-вирусов стандартными методами молекулярного клонирования (т. е. ферментативным рестрикционным расщеплением с последующим лигированием ДНК).
- [O] Предотвратите религацию вектора, используя несовместимые сайты рестрикции или проведя дефосфорилирование перед лигированием.
- [O] Выделите продукт лигирования с помощью электрофореза в агарозном геле и последующей очистки геля с использованием имеющихся в продаже наборов. В целом оптимальная эффективность лигирования достигается при молярном соотношении вставки к вектору 3:1.
- [O] Трансформируйте продукт лигирования в компетентные бактерии, подходящие для эффективного выделения крупных плазмид (т. е. проведите тепловой шок E. coli), и идентифицируйте бактериальные клоны, содержащие нужную ДНК, с помощью ПЦР-скрининга колоний.
- [O] Выделите амплифицированную ДНК из одного бактериального клона, используя имеющиеся в продаже наборы для подготовки ДНК. Подтвердите целостность генома контрольным рестрикционным анализом с соответствующими рестриктазами (например, HindIII для геномов MV [M]). Подтвердите правильность вставки и целостность трансгена с помощью секвенирования.
ПРИМЕЧАНИЕ: [M] Для трансгенов, вставленных в MV H-ATU, проведите секвенирование по Сенгеру со следующими праймерами: H-9018 [прямой праймер, связывается с позицией 9018 генома MV в открытой рамке считывания (ORF) гена H]: 5' GTGTGCTTGCGGACTCAGAATC 3'; L-9249+ (обратный праймер, связывается с позицией 9249 генома MV в L-ORF): 5' CAGATAGCGAGTCCATAACGG 3'.
- [O] Клонируйте вставку в ДНК-векторы или ДНК-антигеномы РНК-вирусов стандартными методами молекулярного клонирования (т. е. ферментативным рестрикционным расщеплением с последующим лигированием ДНК).
2. Получение рекомбинантных частиц вируса кори, кодирующих иммуномодуляторы
- [O] Получите рекомбинантные вирусные частицы из (анти-)геномной ДНК путем трансфекции клеток-продуцентов вируса согласно стандартному протоколу для соответствующего вируса. Соблюдайте правила работы в стерильных условиях. Проводите культивирование клеток в вытяжных шкафах, в частности, все этапы, связанные с вирусом, выполняйте в боксах биологической безопасности II класса.
- [M] Для спасения вирусов кори из кДНК за 24 ч до трансфекции равномерно распределите клетки-продуценты MV (линия Vero, полученная из почек африканской зеленой обезьяны) по 6-луночному планшету. Посейте 2 x 10⁵ клеток в 2 мл модифицированной среды Игла в модификации Дульбекко (DMEM), содержащей 10% эмбриональной телячьей сыворотки (FBS), в каждую лунку, чтобы к моменту трансфекции достичь 65–75% конфлюэнтности.
ПРИМЕЧАНИЕ: [P] Уменьшите количество клеток, если они слишком разрастаются до момента образования вирус-индуцированных синцитиев. - [P] Трансфицируйте клетки ДНК, кодирующей вирусный антигеном, необходимыми вспомогательными плазмидами и, при желании, плазмидой, кодирующей флуоресцентный репортер для оценки эффективности трансфекции.
- [M] Смешайте 5 µg рекомбинантной ДНК, кодирующей антигеном вируса кори, по 500 ng плазмид экспрессии для млекопитающих, кодирующих белки N и L вируса кори, и по 100 ng плазмид, кодирующих белок P, в общем объеме 200 µL DMEM. При необходимости для оценки эффективности трансфекции (и если он еще не присутствует в конструкции вирусного антигенома) добавьте 100 ng плазмиды флуоресцентного репортера.
- Добавьте 18,6 µL липосомального реагента для трансфекции, немедленно перемешайте, постукивая по пробирке, и инкубируйте в течение 25 мин при комнатной температуре (RT).
- [P] Замените среду на 1,8 мл DMEM с 2% FBS и 50 µg/mL канамицина (или других антибиотиков для предотвращения контаминации) на лунку, затем покапельно добавьте смесь для трансфекции в лунку и осторожно перемешайте круговыми движениями. Инкубируйте клетки overnight при 37 °C и 5% CO2. На следующий день замените среду на 2 мл свежей DMEM с 2% FBS и 50 µg/mL канамицина; повторяйте эту процедуру при закислении среды.
ПРЕДОСТЕРЕЖЕНИЕ: [O] Работайте с клетками и материалами в соответствии с правилами биологической безопасности, так как вирус может присутствовать с момента трансфекции и на последующих этапах. Утилизируйте (потенциально) инфекционные отходы надлежащим образом.
- [M] Для спасения вирусов кори из кДНК за 24 ч до трансфекции равномерно распределите клетки-продуценты MV (линия Vero, полученная из почек африканской зеленой обезьяны) по 6-луночному планшету. Посейте 2 x 10⁵ клеток в 2 мл модифицированной среды Игла в модификации Дульбекко (DMEM), содержащей 10% эмбриональной телячьей сыворотки (FBS), в каждую лунку, чтобы к моменту трансфекции достичь 65–75% конфлюэнтности.
Результаты
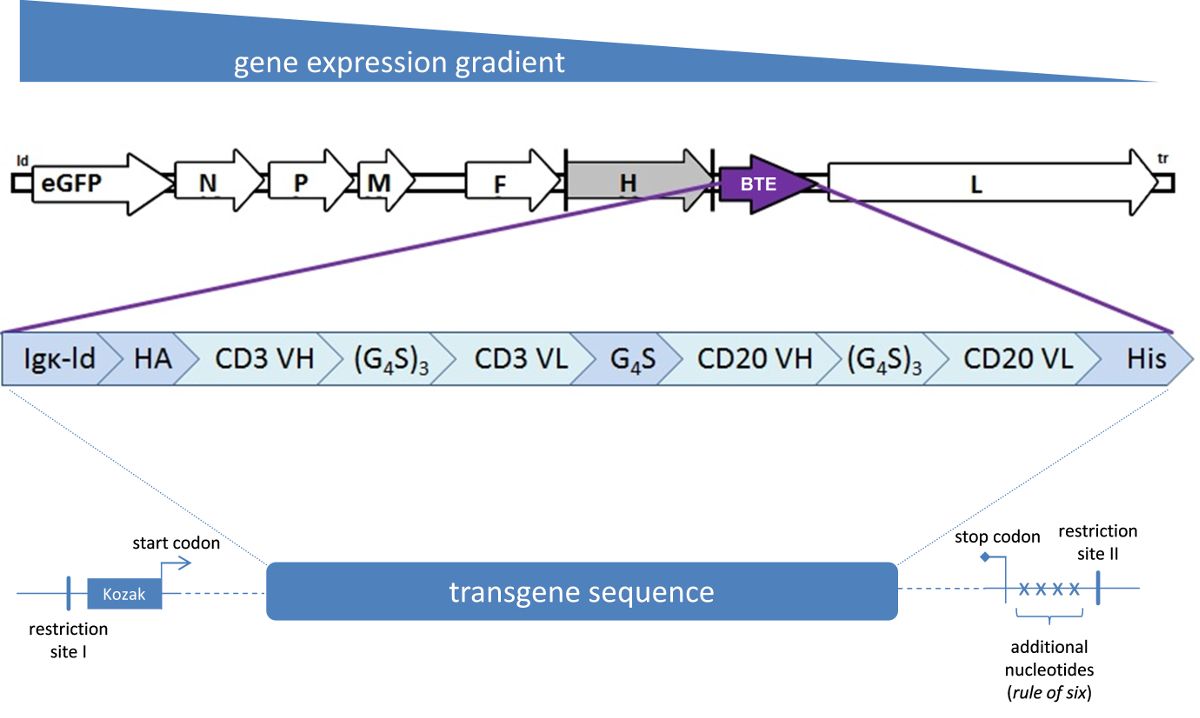
Рисунок 1: Схематическое представление генома вируса кори. Улучшенный зеленый флуоресцентный белок (eGFP) кодируется в дополнительной транскрипционной единице ниже лидерной (ld) последовательности. N, P, M, F, H и L обозначают гены, кодирующие структурные белки вируса кори: нуклеокапсидный белок, белок P, матриксный белок, белок слияния, белок гемагглютинина и большой белок (полимеразу) соответственно, которые экспрессируются дифференциально, как показано выше. Трансген биспецифического активатора Т-клеток (BTE) вставлен в дополнительную транскрипционную единицу (ATU) ниже открытой рамки считывания H. Трансген кодирует лидерный пептид иммуноглобулина каппа (Igκ) для эффективной секреции, а также теги гемагглютинина гриппа (HA) и гексагистидина (His) для детекции и очистки. Гены, кодирующие вариабельные домены тяжелой (VH) и легкой (VL) цепей антител, нацеленных на CD3 и CD20 соответственно, соединены via пептидными линкерными последовательностями, содержащими остатки глицина (G) и серина (S). Перед последовательностью трансгена расположена последовательность Козака. Ниже кодирующей области в качестве примера включены дополнительные нуклеотиды для соблюдения «правила шести». Вставочная кассета фланкирована двумя сайтами рестрикции, что позволяет вставить ее в соответствующую ATU.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Rapid DNA Dephos & Ligation Kit | Roche Life Science, Mannheim, Germany | 4898117001 | |
| CloneJET PCR Cloning Kit | Thermo Fisher Scientific, St. Leon-Rot | K1231 | |
| Агароза | Sigma-Aldrich, Taufkirchen, Germany | A9539-500G | |
| QIAquick Gel Extraction Kit | QIAGEN, Hilden, Germany | 28704 | |
| NEB 10-beta Competent E. coli | New England Biolabs (NEB), Frankfurt/Main, Germany | C3019I | |
| QIAquick Miniprep Kit | QIAGEN, Hilden, Germany | 27104 | |
| Рестриктаза HindIII-HF | New England Biolabs (NEB), Frankfurt/Main, Germany | R3104S | |
| Модифицированная среда Игла в модификации Дульбекко (DMEM) | Invitrogen, Darmstadt, Germany | 31966-021 | |
| Фетальная бычья сыворотка (FBS) | Biosera, Boussens, France | FB-1280/500 | |
| FugeneHD | Promega, Mannheim, Germany | E2311 | может быть заменен любым подходящим реагентом для трансфекции |
| Канамицин | Sigma-Aldrich, Taufkirchen, Germany | K0129 | |
| Клетки Vero | ATCC, Manassas, VA, USA | CCL81 | |
| 6-луночные планшеты | Neolab, Heidelberg, Germany | 353046 |
