Представлен подробный протокол использования технологии CRISPR/Cas9 для достижения высокоэффективного целенаправленного вбивания больших мультицистронных конструкций в первичных Т-клетках человека с помощью пути репарации ДНК, опосредованного гомологией (HMEJ). Т-клетки, сконструированные с использованием этого протокола, адаптированного к cGMP, поддерживают превосходную клеточную экспансию, цитотоксичность и выработку цитокинов.
Методическая статья
Невирусная инженерия первичных Т-клеток человека с помощью гомологически опосредованного целевого соединения больших матриц ДНК
В этой статье
Краткое содержание
Аннотация
Многие современные адоптивные клеточные методы лечения основаны на ленти- или ретровирусных векторах для конструирования Т-клеток для экспрессии химерного антигенного рецептора (CAR) или экзогенного рецептора Т-клеток (TCR) для нацеливания на специфический опухолеассоциированный антиген. Использование вирусных векторов для производства терапевтических Т-клеток значительно увеличивает сроки, стоимость и сложность производства, ограничивая при этом трансляцию новых методов лечения, особенно в академических условиях. Представлен процесс эффективной невирусной инженерии Т-клеток с использованием CRISPR/Cas9 и гомологически опосредованного соединения концов для достижения целенаправленной интеграции большого мультицистронного груза ДНК. Этот подход позволил достичь частот интеграции, сравнимых с частотами вирусных векторов, при этом получить высокофункциональные Т-клетки, способные оказывать мощную противоопухолевую эффективность как in vitro , так и in vivo. Примечательно, что этот метод быстро адаптируется к текущей надлежащей производственной практике (cGMP) и клиническому масштабированию, обеспечивая краткосрочный вариант производства терапевтических Т-клеток для использования в клинических испытаниях.
Введение
Т-клетки являются ключевым компонентом адаптивной иммунной системы, обладая прямой цитолитической способностью, способностью модулировать иммунный ответ путем производства цитокинов, лицензирования В-клеток и дендритных клеток, а также формирования иммунологическойпамяти. Они играют важнейшую роль в развитии иммунитета, гомеостазе и эпиднадзоре, защите от патогенов, профилактике и защите от рака, а также аллергии и аутоиммунитета. Т-клетки обладают огромным разнообразием Т-клеточных рецепторов (TCR), которые образуются в результате рекомбинации V(D)J, что позволяет Т-клеткам распознавать широкий спектр антигенов и формировать эффективные иммунные ответы против различныхпатогенов. Т-клетки в целом можно разделить на две категории: CD4 Т-клетки, также известные как хелперные Т-клетки, которые в первую очередь помогают другим иммунным клеткам, таким как В-клетки, в координации иммунного ответа, и CD8 Т-клетки, или цитотоксические Т-клетки, которые непосредственно убивают инфицированные или раковые клетки, распознавая специфические антигены, присутствующие на ихповерхности.
Разработка химерных антигенных рецепторов (CAR) привела к значительному росту интереса к геномной инженерии Т-клеток для иммунотерапии. CAR — это сконструированные белки, которые объединяют антигенсвязывающие домены, полученные из антител, с сигнальными доменами Т-клеток, что позволяет Т-клеткам идентифицировать и нацеливаться на клетки, экспрессирующие специфический эпитоп, распознаваемый антителенной частью CAR3. Эти рецепторы использовались для различных иммунотерапий, включая инфекционные заболевания и аутоиммунные заболевания, но наиболее передовыми являются эти технологии для иммунотерапии рака.
CAR-T-клетки были чрезвычайно успешны в лечении лейкозов и лимфом, но показали ограниченную эффективность для лечения солидных опухолей 4,5. Это привело к волне дальнейших разработок, направленных на повышение эффективности CAR-T-клеток при показаниях к лечению солидных опухолей. Было разработано несколько подходов, включая броню цитокинов, нокаут гена контрольной точки, доминантные негативные рецепторы, хемокиновые рецепторы, экспрессию нескольких CAR в одной клетке, модификацию CAR для усиления внутриклеточной сигнализации и интеграцию в заранее определенные локусы, например, локус TRAC, для использования регуляторных механизмов хозяина для предотвращения истощения 6,7,8. Многие из этих подходов требуют либо большего генетического груза, либо интеграции с учетом специфики участка. Альтернативные подходы также включают использование трансгенных TCR, чтобы позволить Т-клеткам нацеливаться на внутриклеточные неоантигены 9,10. Тем не менее, это имеет существенный недостаток, заключающийся в том, что TCR должен обладать специфичностью как к эпитопу неоантигена, так и к молекуле HLA, что ограничивает использование возможного терапевтического продукта пациентами, экспрессирующими родственный HLA. Кроме того, многие опухоли изменяют или уменьшают экспрессию HLA в ответ на иммунотерапию, что значительно снижает эффективность Т-клеток, экспрессирующих трансгенные TCR11.
Большинство клеточных терапий CAR-T или TCR-T, участвующих в клинических испытаниях, производятся с использованием ретровирусных векторов, таких как лентивирус или гаммаретровирус, что позволяет достичь высокой частоты интеграции с грузами среднего размера. Тем не менее, вирусные векторы страдают от длительных сроков производства из-за текущих требований надлежащей производственной практики (cGMP) и неспецифических профилей интеграции, которые создают риск инсерционного мутагенеза12,13. Кроме того, может быть затруднительно произвести трансгенный ретровирус при высоких титрах, если вес груза превышает 5 кб14. Другие векторы, такие как векторы, полученные из рекомбинантного аденоассоциированного вируса (rAAV), не интегрируются естественным образом, но могут транспортировать донорскую матрицу ДНК в ядро и могут использоваться в сочетании с CRISPR/Cas9 для облегчения традиционной гомологически направленной рекомбинации (HDR), опосредованной геномной инженерией. Тем не менее, эти вирусы также имеют длительные и сложные производственные процессы и ограничены размером груза (<4,7 кб) и необходимостью включения длинных гомологических плеч (500-1000.н)15,16,17,18.
Сообщалось о невирусной геномной инженерии с использованием транспозонов или комбинации целевых нуклеаз и донорской матрицы ДНК в первичных лимфоцитахчеловека 8,19,20. Однако эти подходы ограничены токсической реакцией на голые молекулы ДНК в цитоплазме после распознавания цитоплазматическими ДНК-сенсорами, экспрессируемыми в лимфоцитах21. Были предприняты попытки использовать низкомолекулярные ингибиторы этих чувствительных путей ДНК во время трансфекции, но избыточность этих путей может осложнить их использование в протоколах cGMP22. Примечательно, что транспозонные векторы, такие как Sleeping Beauty, PiggyBac и Tc Buster, позволяют интегрировать большой генетический груз с высокой эффективностью, но имеют неспецифический профиль интеграции23,24. Невирусная, таргетированная интеграция трансгенов с использованием плазмидных, линейных или одноцепочечных матриц ДНК в сочетании с таргетной нуклеазой для HDR является привлекательной альтернативой, но она ограничена низкой эффективностью, особенно при работе с все более крупными генетическими грузами, при этом эффективность составляет менее 10% при использовании груза размером более 1,5 кб 8,19.
Здесь мы представляем пошаговый протокол для невирусного, гомологически опосредованного соединения концов (HMEJ) встраивания больших полезных нагрузок ДНК в первичные Т-клетки человека, как описано в Webber, Johnson et al.25. HMEJ использует короткие гомологические плечи 48.о., фланкированные сайтами-мишенями гРНК Cas9, что обеспечивает высокоэффективную целевую интеграцию большого груза ДНК по сравнению с традиционным HDR. Одним из методов снижения цитотоксичности плазмидной ДНК в первичных Т-клетках является использование плазмид с минимальными опорами, таких как миникруги или наноплазмиды25. Миникруги представляют собой миниатюризированные плазмидные векторы, полученные путем иссечения источника репликации и гена устойчивости к антибиотикам путем рекомбинации после амплификации плазмид; было показано, что они улучшают невирусную инженерию Т-клеток и снижают клеточную токсичность23,24. Наноплазмиды также имеют уменьшенный общий размер, что достигается за счет использования минимального источника репликации и нетрадиционного маркера отбора26. По нашему опыту, миникруглые и наноплазмидные векторные платформы обеспечивают сопоставимое повышение эффективности и снижение токсичности по сравнению с традиционнымиплазмидами25.
В данной работе мы представляем подробный протокол, обеспечивающий синергию временной оптимизации доставки реагента и состава реагента, а также использование HMEJ и CRISPR/Cas9 для достижения высокоэффективной сайт-специфичной геномной инженерии первичных Т-клеток человека с большими (>6,3 kb) мультицистронными ДНК-матрицами для использования в иммунотерапии и ряде других применений25. Мы достигаем более высокой интеграции с HMEJ и гомологическими группами 48.о.о., чем с традиционной HR с использованием групп гомологии 1 kb, особенно с генетическими грузами >1,5 kb25,27. Важно отметить, что Т-клетки, сконструированные с помощью репарации HMEJ, сохраняют превосходную клеточную экспансию, цитотоксичность и продукцию цитокинов, сохраняя при этом неистощенный фенотип25. Этот протокол легко адаптируется к стандартам cGMP и масштабируется до клинически значимых номеров клеток, что позволяет быстро перейти к будущему использованию в различныхклинических испытаниях.
Протокол
Все эксперименты проводились с соблюдением универсальных мер предосторожности в отношении патогенов, передающихся через кровь, с использованием стерильной/асептической техники, средств индивидуальной защиты и надлежащего оборудования уровня биобезопасности 2 (BSL2). Все описанные здесь эксперименты были одобрены Институциональным комитетом по биобезопасности (IBC) Университета Миннесоты. Подробная информация о реагентах и оборудовании, использованных в этом исследовании, приведена в Таблице материалов.
1. Подготовка СМИ
- Приготовьте добавки для Т-клеточной полной среды (ТКМ).
- Восстановите рекомбинантный человеческий IL-2 до концентрации 12000 МЕ/мл путем добавления 100 мМ уксусной кислоты, стерилизованной фильтром, и хорошо перемешайте с помощью пипетирования. Затем разбавьте до концентрации 6000 МЕ/мл стерилизованным фильтром 0,2% бычьего сывороточного альбумина (BSA) в 1x фосфатно-солевом буфере (1x PBS) и хорошо перемешайте с помощью пипетирования для получения раствора для длительного хранения.
- Восстановите рекомбинантный человеческий IL-7 до концентрации 200 нг/л со стерильной водой и хорошо перемешайте с помощью пипетирования. Затем дополнительно разбавьте до концентрации 100 нг/мкл стерилизованными фильтром 0,2% BSA в PBS и хорошо перемешайте с помощью пипетирования для получения раствора для длительного хранения.
- Восстановите рекомбинантный человеческий IL-15 до концентрации 200 нг/л со стерильной водой и хорошо перемешайте с помощью пипетирования. Затем дополнительно разбавьте до концентрации 100 нг/мкл стерилизованными фильтром 0,2% BSA в PBS и хорошо перемешайте с помощью пипетирования для получения раствора для длительного хранения.
ПРИМЕЧАНИЕ: Храните каждый цитокин в небольших аликвотах при температуре от -20 °C до -80 °C в течение шести месяцев и избегайте повторных циклов замораживания/размораживания.
- Подготовьте ТКМ среды.
- Приготовьте базальную среду, добавив 2,6% добавку для расширения Т-клеток и 2,5% замену сыворотки иммунных клеток в базальную среду для расширения Т-клеток. Подробности см. в Таблице материалов .
- Приготовьте ТКМ, добавив в базальную среду 1% L-глутамина, 1% пенициллина/стрептомицина, 10 мМ N-ацетил-L-цистеина, 300 МЕ/мл рекомбинантного человеческого IL-2, 5 нг/мл рекомбинантного человеческого IL-7 и 5 нг/мл рекомбинантного человеческого IL-15.
- Стерилизовать ТКМ путем пропускания фильтра через фильтр 0,22 мкм в стерильную бутылку с фильтрующим материалом.
- Хранить ТКМ при температуре 4 °C до 2 недель.
- Приготовьте базальную среду, добавив 2,6% добавку для расширения Т-клеток и 2,5% замену сыворотки иммунных клеток в базальную среду для расширения Т-клеток. Подробности см. в Таблице материалов .
- Подготовьте носитель для восстановления.
- Приготовьте базальную среду, добавив 2,6% добавку для расширения Т-клеток и 2,5% замену сыворотки иммунных клеток в базальную среду для расширения Т-клеток.
- Приготовьте восстановительную среду путем добавления 1% L-глутамина, 10 мМ N-ацетил-L-цистеина, 300 МЕ/мл рекомбинантного человеческого IL-2, 5 нг/мл рекомбинантного человеческого IL-7, 5 нг/мл рекомбинантного человеческого IL-15 в базальную среду и 1 мкг/мл ДНКазы.
ПРИМЕЧАНИЕ: Не добавляйте пенициллин/стрептомицин в восстановительные среды, так как это может снизить восстановление клеток после электропорации. - Стерилизуйте фильтрующий материал путем пропускания фильтра размером 0,22 мкм в стерилизованную бутылку с фильтрующим материалом.
- Храните восстановительный фильтрующий материал при температуре 4 °C в течение 2 недель.
- Приготовьте восстановительную среду путем добавления 1% L-глутамина, 10 мМ N-ацетил-L-цистеина, 300 МЕ/мл рекомбинантного человеческого IL-2, 5 нг/мл рекомбинантного человеческого IL-7, 5 нг/мл рекомбинантного человеческого IL-15 в базальную среду и 1 мкг/мл ДНКазы.
- Приготовьте базальную среду, добавив 2,6% добавку для расширения Т-клеток и 2,5% замену сыворотки иммунных клеток в базальную среду для расширения Т-клеток.
2. Тщательный подбор сайта и дизайн шаблона
- Определите геномное целевое местоположение для вскрытия.
Примечание: Безопасное место для гавани, такое как AAVS1, может быть использовано, если требуется минимальное воздействие на целевую клетку. Сайт-мишень, нарушающий экспрессию генов, может быть использован для одновременного нокаутирования гена-мишени и вбивания интересующего его конструкта за один шаг. Целевой сайт и донор, предназначенные для интеграции в кадре с эндогенным геном, могут быть использованы для создания слияний генов или в сочетании с последовательностью 2A рибосомального пропуска для помещения конструкции под транскрипционный контроль эндогенного промотора (рис. 1). - Спроектируйте каргообразный шаблон таким образом, чтобы экспрессионная кассета была окружена плечами гомологии 48.о.н., соответствующими сайту интеграции, и фланкирована линеаризующими сайтами-мишенями гРНК.
ПРИМЕЧАНИЕ: Линеаризующая плазмидную гРНК может представлять собой универсальную гРНК28 (UgRNA) (GGGAGGCGUUCGGGCCACAG), предназначенную для нацеливания на последовательность (GGGAGGCGTTCGGGCCACAG), не обнаруженную в геноме25 человека или мыши, или на геномную последовательность гРНК-мишени, так что одна гРНК может разрезать в месте попадания в геном, а также линеаризировать каргообразный шаблон (Рисунок 1). В качестве векторов для шаблона груза можно использовать либо наноплазмиды, либо миникруги. Стандартные плазмиды могут быть использованы вместо наноплазмид или миникругов для некоторых трансформированных линий, но это приведет к уменьшению поражения и расширения клеток в более чувствительных первичных клетках, таких как Т-клетки.
3. Выделение и активация Т-клеток
- Получение Т-клеток у коммерческого поставщика или выделение Т-клеток из PBMC с помощью иммуномагнитной сортировки18.
- Определите необходимое для эксперимента количество Т-клеток, а затем разморозьте, промойте и ресуспендируйте Т-клетки в концентрации 1 × 10⁶ клеток/мл в ТКМ. Добавьте 1 мл этой смеси в лунки 24-луночной пластины.
- Сделайте вихревые бусины активации Т-клеток, чтобы повторно суспендировать бусины, и добавьте бусины в соотношении 2:1 бусины: клетка к каждой лунке. Инкубируйте эти клетки в течение 36 часов в инкубаторе с температурой 37 °C и 5%CO2 перед началом инженерии Т-клеток.
Примечание: Время инкубации менее или более 36 часов после активации снижает эффективность вбивания Т-клеток, жизнеспособностьи постинженерное расширение клеток.
- Сделайте вихревые бусины активации Т-клеток, чтобы повторно суспендировать бусины, и добавьте бусины в соотношении 2:1 бусины: клетка к каждой лунке. Инкубируйте эти клетки в течение 36 часов в инкубаторе с температурой 37 °C и 5%CO2 перед началом инженерии Т-клеток.
4. Инженерия Т-клеток
- Определение экспериментальных условий, необходимых для завершения эксперимента, включая экспериментальный контроль.
ПРИМЕЧАНИЕ: Важно включить состояние, состоящее только из плазмид, в качестве контроля эписомальной экспрессии. В качестве отрицательного контроля также можно использовать состояние электропорации с химически модифицированным сайтом-мишенью гРНК28 и/или мРНК Cas9 Cas9 в отсутствие донора плазмиды. - Подготовьте восстановительную пластину.
- Для каждого экспериментального условия, включая экспериментальный контроль, добавьте 300 мкл восстановительной среды в лунку 24-луночного планшета для культивирования тканей и прогрейте планшет в инкубаторе с температурой 37 °C и 5%CO2 .
ПРИМЕЧАНИЕ: В таблице 1 приведены альтернативные номера клеток, объем восстановления и условия.
- Для каждого экспериментального условия, включая экспериментальный контроль, добавьте 300 мкл восстановительной среды в лунку 24-луночного планшета для культивирования тканей и прогрейте планшет в инкубаторе с температурой 37 °C и 5%CO2 .
- Подготовьте Т-клетки.
- Соберите стимулированную смесь активационных шариков Т-клеток/Т-клеток, подсчитайте жизнеспособные клетки и ресуспендируйте активационные шарики Т-клеток/Т-клеток в концентрации 1-5 ×10 6 клеток/мл в среде ТКМ в микроцентрифужной пробирке объемом 1,5 мл.
- Поместите микроцентрифужную пробирку в магнит (см. Таблицу материалов) и дайте ей инкубироваться в течение 3 минут.
ПРИМЕЧАНИЕ: Удаление бусин требуется, если для активации Т-клеток используются бусины для активации Т-клеток. Удаление валиков может не понадобиться, если используется альтернативный метод активации. - После инкубации и не снимая с магнита, перенесите среду и Т-клетки в новую пробирку. Эта пробирка содержит стимулированные Т-клетки с удаленными активационными шариками Т-клеток. Подсчитайте Т-клетки и поместите их в конические пробирки объемом 14 мл или 50 мл. Залейте в пробирку 1× PBS и держите клетки в инкубаторе с температурой 37 °C и 5%CO2 до тех пор, пока они не будут готовы к центрифугированию.
- Приготовьте смесь для Т-клеток.
- Определите необходимое количество буфера Master Mix (82% раствора первичной ячейки и 18% добавки), умножив количество условий электропорации плюс один (n + 1). (например, запланировано 6 условий электропорации + 1 = 7,7 × 18 μL на условие = 126 μL Master Mix Buffer).
ПРИМЕЧАНИЕ: Эти объемы специфичны для системы 4D-электропорации, используемой в данном исследовании (см. Таблицу материалов). Другие системы электропорации потребуют других объемов и концентраций. Объем раствора первичной ячейки = Общий объем необходимого буфера для основной смеси × 0,82 и Объем добавки = Общий объем необходимого буфера для основной смеси x 0,18. (например, 0,82 × 126 мкл = 103,32 мкл раствора первичной клетки и 0,18 × 126 мкл = 22,68 мкл). - Смешайте раствор первичной клетки и добавку вместе, чтобы получить буфер Master Mix.
- Центрифугируйте Т-клетки в 1x PBS в течение 10 минут при 200 × г (при комнатной температуре) и отсасывайте из надосадочной жидкости.
- Ресуспендируйте Т-клетки в буфере Master Mix в концентрации 1 × 10⁶ клеток на 18 мкл буфера Master Mix.
- Определите необходимое количество буфера Master Mix (82% раствора первичной ячейки и 18% добавки), умножив количество условий электропорации плюс один (n + 1). (например, запланировано 6 условий электропорации + 1 = 7,7 × 18 μL на условие = 126 μL Master Mix Buffer).
- Подготовьте реактивы.
- Используя концентрации исходных растворов, определить объем плазмиды HMEJ, гРНК-мишени, гиРНК линеаризации плазмиды (UgRNA) и мРНК Cas9, необходимый для достижения указанной массы на одну электропорацию (табл. 2).
- Добавляйте реагенты в лунку 96-луночного планшета на льду для каждого состояния.
- Приготовьте электропорационную смесь.
- При необходимости добавьте 18 мкл смеси Т-клеток в каждую лунку 96-луночного планшета.
- При необходимости добавляйте дополнительный буфер Master Mix Buffer, чтобы убедиться, что все условия электропорации имеют окончательный общий объем 22 μL.
ПРИМЕЧАНИЕ: Объем 22 мкл включает в себя 10% избыточного объема с учетом возможных потерь при пипетировании.
- Проводят электропорацию.
- Включите оборудование и загрузите программу.
- Определите необходимое количество кювет и откройте необходимое количество кювет. Отметьте один конец кюветы и колпачка и снимите колпачок с кюветы.
ПРИМЕЧАНИЕ: На кювету приходится 16 лунок для реакций объемом 20 μл. - Аккуратно пипеткой нанесите 20 мкл электропорационной смеси из лунок 96-луночного планшета вверх и вниз 1-2 раза и загрузите в кюветы.
- Закройте кювету с помощью маркировки, сделанной на шаге 4.7.2, чтобы не надевать колпачок задом наперед. Постучите по кювете 3-5 раз, чтобы удалить потенциальные пузырьки воздуха, а затем поместите оборудование и электропорите кювету.
- Аккуратно снимите кювету с оборудования, поместите ее в колпак и дайте ячейкам отдохнуть в течение 15 минут при комнатной температуре.
- После отдыха извлеките 80 мкл нагретой восстановительной среды из восстановительной пластины и добавьте к каждому образцу (добавляйте на боковую сторону кюветы, а не непосредственно в ячейки), очень осторожно сделайте пипетку вверх и вниз по одному разу и перенесите общий объем в 100 мкл обратно на восстановительную пластину.
ПРИМЕЧАНИЕ: Клетки очень хрупкие после электропорации. Бережное обращение имеет решающее значение. - Инкубируйте клетки при 37 °C и 5%CO2 в течение 30 минут.
- Добавить ТКМ для разбавления клеток до концентрации 1 ×10 6 клеток/мл. Замените половину среды на следующий день, а затем каждые 3-4 дня на ТКМ с концентрацией цитокинов 2× на протяжении всего эксперимента.
- После разбавления до 1 × 10⁶ клеток/мл рестимулируйте клетки путем добавления Т-клеточных активационных шариков в соотношении 0,5:1 гранул: клетка к каждой лунке.
ПРИМЕЧАНИЕ: Клетки могут быстро разрастаться. Может потребоваться замена половинных сред, а также перемещение ячеек в более крупные лунки. - На 3 день удалите бусины активации Т-клеток.
- После желаемой продолжительности вырастания соберите клетки.
ПРИМЕЧАНИЕ: Если в кювете есть неиспользованные лунки, использованные лунки могут быть помечены, и вся кювета может быть помещена в коническую форму объемом 50 мл и храниться при температуре 4 °C для использования в будущем.
Результаты
Здесь большой (>6,3 кб) мультицистронный шаблон под названием «Гигантский миникруг» был интегрирован в локус TRAC в первичных Т-клетках человека с помощью редактирования CRISPR/Cas9; TRAC-специфичная гРНК (TCTCTCAGCTGGTACACGGC), UgRNA и наноплазмида HMEJ (рис. 2A) с условием, в котором отсутствует TRAC-специфичная гРНК, универсальная гРНК и мРНК Cas9, используемая в качестве отрицательного контроля. Образцы, включающие конструкцию Giant Minicircle, TRAC-специфичную гРНК, универсальную гРНК и мРНК Cas9, имели среднюю частоту выбивания 23,35% при измерении экспрессии GFP (23,5% ± 5,247), в то время как отрицательный контроль не показал экспрессии GFP (рис. 2B). Не было существенных различий в расширении в развертку (рисунок 2C) и жизнеспособности (рисунок 2D) между экспериментальными условиями. Эти результаты демонстрируют высокоэффективное вбивание очень большого шаблона при сохранении превосходной жизнеспособности клеток и их расширения.

Рисунок 1: Схематическое изображение конструкции HMEJ. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
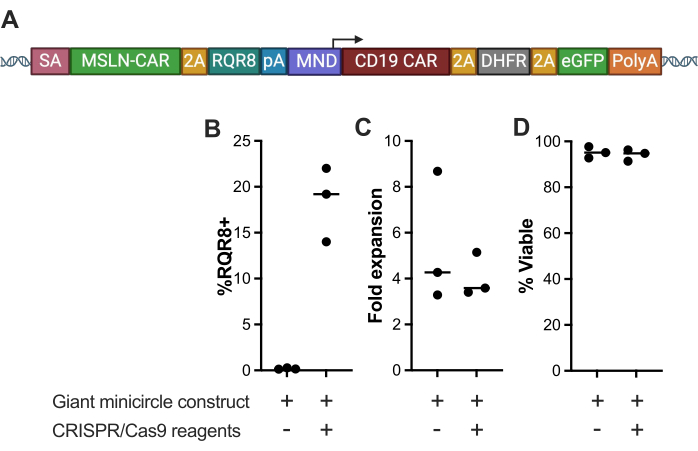
Рисунок 2: Характеристика Т-клеток, электропорированных с помощью гигантской конструкции мини-круга. (A) Схематическое изображение конструкции Giant Minicircle, большого (>6,3 kb) мультицистронного шаблона, кодирующего антимезотелиновый CAR и RQR8 под промотором TRAC с помощью линкера GSG, анти-CD19 CAR и мутеина DHFR и eGFP под промотором MND. (B) процент экспрессии RQR8, (C) кратное расширение и (D) жизнеспособность Т-клеток через девять дней после электропорации с помощью конструкции Giant Minicircle и реагентов CRISPR-Cas9 по сравнению с отрицательным контролем, электропорированным с помощью Giant Minicircle без реагентов CRISPR-Cas9. (***p < 0,001). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
| Размер пластины | Объем кюветы | Ячейки/Лунки | Объем носителя для восстановления | Объем 1x TCM с NAC | Общий итоговый объем |
| 24-луночный планшет | 22/22 μл | 1-3 х 106 | 300 μл | 680 мкл | 1 мл |
| 6-луночный планшет | 100/110 μл | 4-20 х 106 | 1 мл | 2,9 мл | 4 мл |
| 24-луночная пластина G-Rex | 20-110 μл | 1-20 х 106 | 400 мкл | 5,6 мл | 6 мл |
Таблица 1: Концентрации клеток для кювет и восстановительных планшетов.
| Размер кюветы | Шаблон Plasmid | ГРНК-мишень сайта | Линеаризация плазмид гРНК | МРНК Cas9 |
| 20 μл | 1-2 мкг (1 мкг) | 1-3 г (1 г) | 1-3 г (1 г) | 1-3 г (1,5 г) |
| 100 мкл | 5-10 г (5 г) | 5-15 г (5 г) | 5-15 г (5 г) | 5-15 г (5 г) |
Таблица 2: Необходимое количество реагентов CRISPR/Cas9 и матрицы ДНК.
Обсуждение
По мере того, как адоптивная клеточная терапия (АКТ) продолжает развиваться, растет спрос на эффективные, невирусные методы создания иммунных клеток без высокой стоимости и сложности, связанных с вирусными векторами. Ключевой целью в этой области является достижение site-specific интеграции, что повышает согласованность, безопасность и функциональность разработанных сотовых продуктов. Несмотря на то, что недавние исследования продемонстрировали успешную невирусную интеграцию небольших генетических конструкций, таких как репортерные гены и одиночные последовательности CAR или TCR29, существует необходимость в распространении этих методов на более крупные кассеты с мультиэкспрессией генов. Эти более крупные кассеты необходимы для усиления функции иммунных клеток, например, для добавления хемокиновых рецепторов или защиты цитокинов, улучшения специфичности (например, логических вентильных систем) или повышения безопасности с помощью аварийных выключателей. С этой целью мы стремились разработать невирусные подходы, способные обеспечить эффективную сайт-специфичную интеграцию более крупного генетического груза25.
Протокол состоит из нескольких важных этапов. Для минимизации токсичности требуется качественная, чистая наноплазмида или миникруг. В этом исследовании коммерчески приготовленные плазмиды показали наилучшие результаты. 36-часовой период между активацией Т-клеток и электропорацией также имеет решающее значение для достижения идеальных результатов. Также важно свести к минимуму обработку и манипуляции с клетками сразу после электропорации, пока клетки восстанавливаются. Также важно повторно добавить в культуру новые активационные гранулы Т-клеток после электропорации для достижения наилучшей возможной частоты интеграции груза и расширения клеток.
Протокол, как описано здесь, использует коммерчески доступную систему электропорации (см. Таблицу материалов). Другие системы электропорации также могут подойти, но они, вероятно, потребуют оптимизации условий электропорации для конкретного устройства и, возможно, работы с ячейками после электропорации.
Существует несколько ограничений для HMEJ-опосредованной инженерии Т-клеток человека. Протокол может работать и с плазмидой, но оптимальные результаты требуют использования наноплазмид или миникругов для доставки грузов, которые не так просты в изготовлении, как стандартные плазмиды. Более того, несмотря на то, что успешная интеграция очень большой мультицистронной кассеты продемонстрирована, вероятно, существует верхний предел груза, при котором частота интеграции генов начнет падать.
Данное исследование представляет HMEJ как мощный и эффективный невирусный метод геномной инженерии для производства сконструированных Т-клеток, особенно в контексте иммунотерапии рака. Преодолевая ограничения традиционных вирусных векторов, этот подход предлагает экономически эффективную, масштабируемую и безопасную альтернативу для создания генетически модифицированных Т-клеток с расширенной функциональностью. Возможность точной интеграции больших мультигенных кассет открывает новые возможности для инженерии иммунных клеток для лечения широкого спектра заболеваний, включая рак, инфекционные заболевания и аутоиммунные расстройства. Кроме того, совместимость метода HMEJ с производственными процессами клинического уровня обеспечивает его практическую применимость в реальных терапевтических условиях, прокладывая путь к более доступной и эффективной клеточной терапии в ближайшем будущем.
Раскрытие информации
B.R.W. и B.S.M. являются главными исследователями спонсируемых исследовательских соглашений, финансируемых Intima Biosciences для поддержки работы над этой рукописью. Были поданы заявки на патенты, охватывающие методы и подходы, изложенные в данной рукописи.
Благодарности
B.R.W. выражает признательность за финансирование от Управления открытий и переводов, грантов NIH R21CA237789, R21AI163731, P01CA254849, P50CA136393, U54CA268069, R01AI146009, грантов Министерства обороны HT9425-24-1-1005, HT9425-24-1-1002, HT9425-24-1-0231, а также Фонда исследований детского рака, Фонда исследований анемии Фанкони и Фонда рака и сообщества Рэнди Шейвера. B.S.M. выражает признательность за финансирование от Управления по открытиям и переводам, грантов NIH R01AI146009, R01AI161017, P01CA254849, P50CA136393, U24OD026641, U54CA232561, P30CA077598, U54 CA268069, грантов Министерства обороны HT9425-24-1-1005, HT9425-24-1-1002, HT9425-24-1-0231, а также Фонда исследований детского рака, Фонда исследований анемии Фанкони и Фонда рака и сообщества Рэнди Шейвера.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Уксусная кислота Millipore | Sigma | A6283 | |
| 1x DPBS, без кальция, без магния | Thermo Fisher Scientific | 14190144 | |
| 2,5% CTS Замена сыворотки иммунных клеток | Thermo Fisher Scientific | A2596101 | |
| Amaxa P3 Первичная клетка 4D-нуклеофактор X Kit L | lonza | V4XP-3024 | |
| Amaxa P3 Первичная клетка 4D-нуклеофактор X Kit S | Lonza | V4XP-3032 | |
| Сыворотка крупного рогатого скота Альбумин | Thermo Fisher Scientific | 15561020 | |
| Химически модифицированные направляющие РНК | Интегрированные технологии ДНК | по | индивидуальному заказу |
| CleanCap Cas9 мРНК | Trilink | L-7206 | |
| CTS OpTmizer Среда для расширения Т-клеток SFM + OpTmizer Добавка для расширения Т-клеток | Thermo Fisher Scientific | A1048501 | |
| DNase I | Stem Cell Technologies | 07900 | |
| Dynabeads Т-активатор человека CD3/CD28 | Thermo Fisher Scientific | 11141D | |
| DynaMag-2 | Thermo Fisher Scientific | 12321D | |
| Human IL15 | PeproTech | 200-15 | |
| Human IL2 | PeproTech | 200-02 | |
| Human IL7 | PeproTech | 200-07 | |
| L-глютамин | Thermo Scientific | ||
| Lonza 4D nucelofector Ядро | Lonza | AAF-1003B | |
| Lonza 4D нукелофектор X Unit | Lonza | AAF-1003X | |
| Minicircle | System Biosciences | MN910A-1 | Custom design |
| N-ацетил-L-цистеин | MiliporeSigma | A9165 | |
| Nanoplasmid | Aldevron | na | Custom design |
| Penicillin/Streptomycin | Thermo Fisher Scientific | 15-140-122 |
Ссылки
- Sun, L., Su, Y., Jiao, A., Wang, X., Zhang, B. T cells in health and disease. Signal Transduct Target Ther. 8 (1), 235(2023).
- Takahama, Y. Journey through the thymus: stromal guides for T-cell development and selection. Nature reviews. Immunology. 6 (2), 127-135 (2006).
- Dotti, G., Gottschalk, S., Savoldo, B., Brenner, M. K. Design and development of therapies using chimeric antigen receptor-expressing T cells. Immunol Rev. 257 (1), 107-126 (2014).
- DeRenzo, C., Gottschalk, S. Genetic modification strategies to enhance CAR T cell persistence for patients with solid tumors. Front Immunol. 10, 218(2019).
- Liu, X., et al. A chimeric switch-receptor targeting PD1 augments the efficacy of second-generation CAR T cells in advanced solid tumors. Cancer Res. 76 (6), 1578-1590 (2016).
- Yeku, O. O., Purdon, T. J., Koneru, M., Spriggs, D., Brentjens, R. J. Armored CAR T cells enhance anti-tumor efficacy and overcome the tumor microenvironment. Sci Rep. 7 (1), 10541(2017).
- Schober, K., et al. Orthotopic replacement of T-cell receptor α- and β-chains with preservation of near-physiological T-cell function. Nat Biomed Eng. 3 (12), 974-984 (2019).
- Roth, T. L., et al. Reprogramming human T cell function and specificity with non-viral genome targeting. Nature. 559 (7714), 405-409 (2018).
- Chandran, S. S., Klebanoff, C. A. T cell receptor-based cancer immunotherapy: Emerging efficacy and pathways of resistance. Immunol Rev. 290 (1), 127-147 (2019).
- Rosenberg, S. A., Restifo, N. P. Adoptive cell transfer as personalized immunotherapy for human cancer. Science (New York, N.Y.). 348 (6230), 62-68 (2015).
- Campoli, M., Ferrone, S. HLA antigen and NK cell activating ligand expression in malignant cells: a story of loss or acquisition. Semin Immunopathol. 33 (4), 321-334 (2011).
- Walther, W., Stein, U. Viral vectors for gene transfer: a review of their use in the treatment of human diseases. Drugs. 60 (2), 249-271 (2000).
- Bulcha, J. T., Wang, Y., Ma, H., Tai, P. W. L., Gao, G. Viral vector platforms within the gene therapy landscape. Signal Transduct Target Ther. 6 (1), 53(2021).
- Kumar, M., Keller, B., Makalou, N., Sutton, R. E. Systematic determination of the packaging limit of lentiviral vectors. Hum Gene Ther. 12 (15), 1893-1905 (2001).
- Samulski, R. J., Muzyczka, N. AAV-mediated gene therapy for research and therapeutic purposes. Annu Rev Virol. 1 (1), 427-451 (2014).
- Wang, D., Tai, P. W. L., Gao, G. Adeno-associated virus vector as a platform for gene therapy delivery. Nature reviews. Drug Discov. 18 (5), 358-378 (2019).
- Pomeroy, E. J., et al. a genetically engineered primary human natural killer cell platform for cancer immunotherapy. Mol Ther. 28 (1), 52-63 (2020).
- Johnson, M. J., Laoharawee, K., Lahr, W. S., Webber, B. R., Moriarity, B. S. Engineering of primary human B cells with CRISPR/Cas9 targeted nuclease. Sci Rep. 8 (1), 12144(2018).
- Nguyen, D. N., et al. Polymer-stabilized Cas9 nanoparticles and modified repair templates increase genome editing efficiency. Nat Biotechnol. 38 (1), 44-49 (2020).
- Lock, D., et al. Automated, scaled, transposon-based production of CAR T cells. J Immunother Cancer. 10 (9), e005189(2022).
- Semenova, N., et al. Multiple cytosolic DNA sensors bind plasmid DNA after transfection. Nucleic Acids Res. 47 (19), 10235-10246 (2019).
- Wimberger, S., et al. Simultaneous inhibition of DNA-PK and Polϴ improves integration efficiency and precision of genome editing. Nat Comm. 14 (1), 4761(2023).
- Monjezi, R., et al. Enhanced CAR T-cell engineering using non-viral Sleeping Beauty transposition from minicircle vectors. Leukemia. 31 (1), 186-194 (2017).
- Kay, M. A., He, C. -Y., Chen, Z. -Y. A robust system for production of minicircle DNA vectors. Nat Biotechnol. 28 (12), 1287-1289 (2010).
- Webber, B. R., et al. Cas9-induced targeted integration of large DNA payloads in primary human T cells via homology-mediated end-joining DNA repair. Nat Biomed Eng. 8, 1553-1570 (2024).
- Williams, J. A., Paez, P. A. Improving cell and gene therapy safety and performance using next-generation Nanoplasmid vectors. Mol Ther Nucleic Acids. 32, 494-503 (2023).
- Wierson, W. A., et al. Efficient targeted integration directed by short homology in zebrafish and mammalian cells. eLife. 9, 53968(2020).
- Hendel, A., et al. Chemically modified guide RNAs enhance CRISPR-Cas genome editing in human primary cells. Nat Biotechnol. 33 (9), 985-989 (2015).
- Moretti, A., et al. The past, present, and future of non-viral CAR T cells. Front Immunol. 13, 867013(2022).
Перепечатки и разрешения
