Данный обзор направлен на изучение механической роли анкирина с потенциальным временным рецептором 1 (TRPA1) в патогенезе CIPN и оценку его потенциала как терапевтической цели для иммуномодуляторного и противовоспалительного вмешательства.
Обзорная статья
TRPA1 в периферической невропатии, индуцированной химиотерапией: перспективная мишень для иммуномодуляции и противовоспалительной терапии
В этой статье
Краткое содержание
Аннотация
Периферическая невропатия (CIPN), вызванная химиотерапией, — это распространённое и серьёзное клиническое состояние, которое возникает, когда химиотерапевтическое средство повреждает периферическую нервную систему, и обычно характеризуется аномальной болью в дистальных конечностях и повышенной чувствительностью к горячим и холодным раздражителям. Однако существует мало клинических методов лечения CIPN, поэтому крайне важно определить эффективные методы лечения. Временный рецепторный потенциал анкирин 1 (TRPA1), рецептор повреждения, может активироваться окислительным стрессом, воспалителями и гипотермическими условиями во время патогенеза и прогрессирования CIPN. TRPA1 модулирует воспалительный путь и способствует высвобождению воспалительных факторов и нейропептидов, что приводит к нарушениям иммунной регуляции и, в свою очередь, к нейрогенному воспалительному ответу и болевой передаче. В этом исследовании рассматривается роль TRPA1 в патогенезе CIPN, подтверждена возможность таргетирования TRPA1 для лечения CIPN путём ингибирования нейровоспаления, а также рассматриваются перспективы использования антагонистов TRPA1 и натуральных трав для клинического лечения CIPN.
Введение
Рак остаётся одной из главных глобальных проблем общественногоздравоохранения 1. Хотя химиотерапия играет ключевую роль в улучшении выживаемости при раке, она часто сопровождается серьёзными побочными эффектами, среди которых CIPN является одним из самых распространённых и сложных осложнений. CIPN клинически характеризуется симметричной болью, парестезией и аномальной чувствительностью к холоду или теплу в дистальныхконечностях 2, а некоторые пациенты также могут испытывать нарушение мелкой моторнойкоординации 3. Зарегистрированная частота CIPN сильно варьируется — от примерно 50% до 90%, и около 30%–40% случаев могут перейти в хронические неврологическиеосложнения 2, что значительно снижает качество жизни пациентов и соблюдение лечения. Риск развития CIPN зависит от множества факторов, включая способ введения (одноразовая доза, совокупная доза или продолжительность лечения), сопутствующие медикаменты, возраст, анемию, более высокий индекс массы тела (ИМТ) и уже существующуюневропатию 2,4,5. Противонеопластические агенты, вызывающие разную степень нейротоксичности, включают платиновые соединения, таксаны, алкалоиды винки, ингибиторы протеасомов (например, бортезомиб), эпигенетические или иммуномодуляторы (такие как талидомид и леналидомид) и ингибиторы микротрубочек (например, эрибулин)6.
В настоящее время фармакологические возможности для управления CIPN остаются ограниченными. Американское общество клинической онкологии (ASCO) рекомендует дулоксетин как единственное фармакологическое вмешательство с доказательной поддержкой лечения CIPN. Клинические исследования показали, что дулоксетин эффективен в облегчении боли, связанной с CIPN, при этом его терапевтическая польза наиболее выражена при невропатии, вызванной химиотерапевтическими препаратами на основе платины, особенно оксалиплатином (OXA), тогда как его эффективность при CIPN, вызванной другими агентами, такими как таксаны и алкалоиды винки, по-видимому, более варьируется висследованиях 7. Несмотря на доказанную анальгетическую эффективность, общий клинический эффект дулоксетина умеренный, поскольку он в первую очередь обеспечивает облегчение симптомов, а не предотвращает CIPN или отменяет основные патологические изменения. Кроме того, хотя дулоксетин обычно хорошо переносимся, лечение может сопровождаться лёгкими или умеренными побочными эффектами, такими как усталость, бессонница и тошнота, что может ограничивать длительное придерживаться приёма у некоторых пациентов. Другие широко используемые препараты, такие как габапентин и прегабалин, применяются для симптоматического лечения, но при CIPN 8,9 показали непоследовательные или неудовлетворительные терапевтические результаты. Поэтому существует острая необходимость разработать более эффективные профилактические стратегии и выявить новые терапевтические цели для CIPN.
В последние годы, с углублением понимания патогенеза CIPN, различные механизмы, такие как воспалительная реакция, окислительный стресс и изменения нейропластичности, постепенно привлекают всё большеевнимание 10,11,12. Среди них окислительный стресс и нейровоспаление считаются центральными факторами инициации и прогрессирования повреждения нейронов при CIPN. Важно отметить, что канал TRPA1 — восстановительная ионный канал, широко экспрессируемый сенсорными нейронами, — стал ключевым молекулярным медиатором, связывающим окислительный стресс и воспалительную сигнализацию с гипервозбудимостью нейронов и гиперчувствительностью кболи 13,14. В отличие от TRPV1, который в первую очередь чувствует вредное тепло, и TRPM8, который обнаруживает холодные раздражители, TRPA1 характеризуется высокой чувствительностью к различным окислительным и электрофильным метаболитам, таким как 4-гидроксиноненал (4-HNE)15. Активация TRPA1 обычно включает ковалентную модификацию критических остатковцистеина 16 — уникального механизма, который позиционирует TRPA1 как ключевой молекулярный мост, связывающий окислительный и липидный переоксидный стресс, вызванный химиотерапией, с развитием болевой гиперчувствительности. Кроме того, несколько исследований на животных продемонстрировали функциональное участие TRPA1 в невропатической боли, вызванной химиотерапией. В частности, в моделях невропатии, индуцируемой OXA, генетическая абляция или фармакологическая блокада TRPA1 значительно облегчает холодную и механическую аллодинию, что указывает на важный вклад TRPA1 в патогенезCIPN 17,18.
В частности, TRPA1 — это редокс-чувствительный ионный канал, сильно экспрессируемый в периферических ноцицептивных нейронах. Химиотерапевтические препараты часто вызывают дисфункцию митохондрий, окисляющий стресс и перекисление липидов в нейронах, что приводит к чрезмерному накоплению реактивных форм кислорода (ROS) и продуктов перекисления липид, таких как 4-HNE. Эти реактивные молекулы могут ковалентно модифицировать ключевые остатки цистеина TRPA1 или изменять порог его активации, что приводит к открытию каналов, притоку Ca²⁺ и деполяризации нейронов, тем самым усиливая передачу боли и воспалительныесигналы 19,20,21. Предыдущие исследования также показали, что TRPA1 чувствителен к холоду и может активироваться эндогенными воспалительными медиаторами, способствуя развитию гиперчувствительности, вызванной холодом22. Кроме того, показано, что TRPA1 действует как механочувствительный ионный канал, активность которого регулируется клеточным редокс-состоянием, участвуя в аномальной механической боли игиперчувствительности 22,23. Помимо нейронов, TRPA1 также экспрессируется в нескольких типах иммунных клеток, где его активация модулирует высвобождение цитокинов и воспалительные каскады, дополнительно усиливая периферическоенейровоспаление 24. В совокупности чувствительность к холоду, механочувствительность и редокс-чувствительность TRPA1 устанавливают чёткую механистическую связь между окислительным стрессом, вызванным химиотерапией, и последующим патологическими болевыми процессами, тем самым способствуя инициации и поддержанию CIPN. Соответственно, целенаправленное применение TRPA1 для нарушения порочный круг окислительного стресса и нейровоспалительной токсичности может стать перспективной терапевтической стратегией для управления периферической невропатической болью, вызванной химиотерапией. В существующих исследованиях стратегии вмешательства, направленные на TRPA1, были подтверждены в нескольких модельных системах. In vitro культуры нейронов DRG в сочетании с кальциевой визуализацией часто используются для проверки влияния активации TRPA1 на нейронную возбудимость, вызваннуюхимиотерапией 25. In vivo CIPN обычно индуцируется у грызунов с помощью OXA, паклитаксела или бортезомиба, затем следует фармакологическое или генетическое ингибирование TRPA1 и последующие поведенческие оценки, такие как холодная и механическаягиперчувствительность 17,26,27. На терапевтическом уровне антагонисты TRPA1 продемонстрировали эффективность в облегчении невропатической боли в доклиническихмоделях 28,29. В совокупности эти результаты дают прочную экспериментальную основу для трансляционных исследований, направленных на TRPA1 как терапевтическую стратегию для CIPN.
Текущие исследования уже выявили возможную связь между TRPA1 и CIPN. Однако эти исследования в основном сосредоточены на прямом влиянии TRPA1 на передачу болевых сигналов и его локальной роли в воспалительном ответе. Тем не менее, всё ещё не хватает систематических исследований и глубоких исследований механизмов, с помощью которых TRPA1 модулирует иммунные ответы для влияния на общий патологический процесс CIPN. Поэтому в этой статье рассматриваются потенциальные механизмы CIPN с акцентом на изучение роли TRPA1 в патогенезе CIPN. Текущее состояние исследований антагонистов TRPA1 и натуральных трав также обобщено для подтверждения возможности ингибирования TRPA1 с целью получения противовоспалительного иммунного эффекта при лечении CIPN. Новшество этой статьи заключается в систематическом изучении роли TRPA1 в патогенезе CIPN с точки зрения иммунно-регуляторной системы, преодолевая ограничения предыдущих исследований, которые были сосредоточены исключительно на его влиянии на нервные клетки или локальное воспаление. Кроме того, он предоставляет новые цели и теоретическую поддержку для разработки лекарств для лечения CIPN, обладающих большим научным значением и клинической значимостью.
Обзор и перспектива
1. Потенциальные механизмы CIPN
Патомеханизм CIPN сложен и связан с химиотерапевтической дисфункцией митохондрий, вызванной лекарственными препаратами, окислительным стрессом, нарушениями иммунной системы, нарушением ионных каналов, повреждением нейронов дорсального корневой ганглии (DRG) и нарушением нейронного цитоскелета 2,30,31,32,33,34,35,36,37, 38,39,40,41,42. Таблица 1 даёт обзор специфических патогенных механизмов, задействованных в CIPN.
- Дисфункция митохондрий и окислительный стресс
Химиотерапевтические агенты вызывают морфологические изменения митохондрий, биоэнергетические нарушения и чрезмерное выработку РОС, что приводит к повреждению структуры митохондрий, функциональным нарушениям и окислительномустрессу 12,43. Эти события активируют иммунные клетки, повышают уровень провоспалительных цитокинов и запускают воспалительные сигнальные пути, что в конечном итоге способствует развитию CIPN. В частности, платиновые химиотерапевтические агенты образуют платино-ДНК-аддукты, которые накапливаются в DRG, где связываются с ядерной ДНК (nDNA) и митохондриальной ДНК (mtDNA). Это способствует перекрёстному сшиванию, изменяет структуру и синтез ядерной ДНК, индуцирует повреждение ДНК/митохондрии, усиливает выработку ROS, активирует каналы, связанные с рецепторами повреждений, и индуцирует нейронный апоптоз. Также имеются данные, что OXA вызывает невропатическую боль, активируя астроциты и повышая провоспалительные цитокины в пути митоген-активированной протеинкиназы (MAPK).
Помимо соединений на основе платины, другие химиотерапевтические средства могут нарушать целостность митохондрий различными механизмами. Паклитаксел мешает как аксональному, так и митохондриальному транспорту, что приводит к открытию митохондриальной переходной поры проницаемости (mPTP). Это событие приводит к потере мембранного потенциала митохондрий, чрезмерному образованию ROS, истощению АТФ, выбросу кальция и отёку митохондрий. Бортезомиб, напротив, подавляет активность протеасом и нарушает гомеостаз клеточного белка, тем самым вызывая повреждения структуры митохондрий и функциональные нарушения. Эти изменения проявляются в виде отёка и вакуолизации митохондрий, дисрегуляции кальция, подавления дыхательной цепи, снижения выработки АТФ и накопления АФЗ. Кроме того, винкристин (VCR) подавляет полимеризацию микротрубочек, что снижает транспорт митохондрий вдоль аксонов и, как следствие, приводит к снижению потенциала мембраны, нарушению гомеостаза кальция и аномальной возбудимости нейронов. В совокупности эти агенты подчёркивают центральную роль дисфункции митохондрий в нейротоксичных эффектах химиотерапевтическихпрепаратов 41,44,45,46,47.
Аналогично, дисфункция митохондрий служит центральным регулятором провоспалительных сигналов, а воспаление, в свою очередь, усугубляет повреждение митохондрий, создавая порочный кругнейротоксичности 30,31. Примечательно, что ROS, образующийся в ходе этого процесса, напрямую активирует окислительно-чувствительный ионный канал TRPA1, вызывая приток кальция, гипервозбудимость нейронов и характерные симптомы, связанные с CIPN, такие как простуда и механическая аллодиния. Таким образом, окислительный стресс выступает ключевым узлом, связывая повреждение митохондрий, активацию TRPA1 и патогенез CIPN. Рисунок 1 иллюстрирует механизмы, посредством которых дисфункция митохондрий и окислительный стресс способствуют развитию CIPN. - Нарушения в иммунной системе
- Нейроиммунные взаимодействия
Нейроиммунные взаимодействия играют ключевую роль в развитии и сохранении CIPN. Всё больше данных свидетельствует о том, что связь между нервной и иммунной системами значительно способствует её патогенезу. Химиотерапевтические агенты вызывают клеточный стресс и повреждение аксонов, приводя к высвобождению молекулярных паттернов, связанных с повреждением (DAMP), которые активируют сигнализацию рецепторов Toll-подобных 4 (TLR4) на макрофагах и глиальных клетках. Эта активация способствует поляризации макрофагов M1 и секреции хемокинов, таких как CCL2 и CXCL10, которые рекрутируют CD4+ и CD8+ Т-лимфоциты и В-клетки в DRG, при этом уменьшая количество противовоспалительныхТ-клеток 48,49,50,51. Хотя нейтрофилы очень восприимчивы к цитотоксичным эффектам химиотерапии, приводящим к системной нейтропении, несколько исследований сообщили об усилении активации и инфильтрации нейтрофилов в периферическую нервную систему и DRG при невропатии, вызваннойхимиотерапией 32. Тучные клетки (МК) дополнительно регулируют провоспалительные реакции, привлекая иммунные клетки и высвобождая различные воспалительные цитокины. Кроме того, провоспалительные цитокины могут подавлять активность естественных киллеров (NK), усиливая нейровоспаление и окислительный стресс, тем самым способствуя прогрессированиюCIPN 52.
Химиотерапевтические препараты также могут изменять экспрессию генов, связанных с иммунными и нейронными функциями в сенсорных нейронах. Например, видеомагнитофон повышает экспрессию активирующего транскрипционного фактора 3 (Atf3) и нейротензина (Nts), тем самым модулируя высвобождение хемокина и способствуя привлечению иммунных клеток в DRG, что, в свою очередь, влияет на нейровоспалительный ответ. OXA регулирует экспрессию простагландин-H2 D-изомераза (Ptgds) и гена хозяина малого нуклеолярного РНК 1 (Snhg1), которые участвуют в синтезе воспалительных медиаторов и модуляции нейронной пластичности, тем самым влияя на возбудимость нейронов и передачу болевых сигналов. В отличие от этого, цисплатин (CDDP) изменяет экспрессию липокалина-2 (Lcn2) и гомеобокса цинкового пальца 2 (Zfhx2), нарушая метаболический гомеостаз и транскрипционную регуляцию нейронов, а значит, способствуя нейровоспалению и дисфункциинейронов 53. В совокупности дисрегуляция этих профилей экспрессии генов под воздействием химиотерапевтического стресса выявляет сложное взаимодействие между повреждением нейронов и иммунной активацией в патогенезе CIPN.
Кроме того, TRPA1 экспрессируется не только в сенсорных нейронах, но и в иммунных клетках, таких как макрофаги и MC, где он опосредует высвобождение провоспалительных цитокинов. Эта двойная нейронная и иммунная экспрессия TRPA1 может служить ключевым молекулярным звеном, вызывающим нейроиммунные перекрёстные контакты и воспаление, лежащие в основе CIPN. - Обострение нейровоспаления
Химиотерапевтические агенты модулируют активацию и секрецию иммунных медиаторов из сателлитных глиальных клеток (SGC) в DRG, микроглии и астроцитов в спинном мозге, а также клеток Шванна ваксонах 54. Активация иммунных клеток повышает уровень провоспалительных цитокинов, таких как фактор некроза опухолей альфа (TNF-α), интерлейкин-1 бета (IL-1β), интерлейкин-6 (IL-6), интерлейкин-8 (IL-8), интерлейкин-20 (IL-20), которые способствуют нейровоспалению и сенсибилизации нейронов; наоборот, экспрессия противовоспалительных цитокинов, таких как интерлейкин-10 (IL-10) и интерлейкин-4 (IL-4), подавляется, что нарушает разрешение воспаления. Параллельно хемокины, включая CCL2, CXCL1, CXCL12, CX3CL1 и CCL3, участвуют в рекрутации иммунных клеток и взаимодействиях между глиальными нейронами. Эти изменения вместе активируют ключевые воспалительные сигнальные пути, такие как MAPK и ядерный фактор каппа-лайт-цепоч-энхансер активированных B-клеток (NF-κB), что дополнительно усиливает выработку цитокинов и гипервозбудимостьнейронов 54,55,56,57,58,59. Рисунок 2 иллюстрирует механизмы, с помощью которых дисрегуляция иммунной системы вызывает CIPN.
Важно отметить, что недавние исследования показали, что TRPA1 действует как критически важный эффектор и усилитель этих воспалительных каскадов. Провоспалительные цитокины и окисляющие медиаторы могут сенсибилизовать или непосредственно активировать каналы TRPA1 на сенсорных нейронах, связывая нейровоспаление с повышенной возбудимостью нейронов и гиперчувствительностью к боли приCIPN 60,61.
- Нейроиммунные взаимодействия
- Дисрегуляция ионных каналов
- Калиевые каналы
Химиотерапевтические препараты вызывают нейровоспалительные реакции, приводящие к аномальной экспрессии каналов Kir4.1, что способствует активации SGC, повышению уровня белка глиальной фибриллярной кислоты (GFAP) и высвобождению провоспалительных цитокинов (например, TNF-α и IL-6). Это усиливает возбудимость нейронов DRG и вызываетCIPN 33. - Каналы TRP
Каналы TRP участвуют в воспалительном ответе и невропатической боли, связанных с CIPN, и могут активироваться окислительным стрессом, вызванным химиотерапией. Среди них канал TRPA1, преимущественно локализованный в сенсорных нейронах, опосредует нейрогенное воспаление, высвобождая нейропептиды, такие как пептид, связанный с геном кальцитонина (CGRP) и вещество P (SP), которые способствуют рекрутации иммунных клеток в места повреждения. В то же время TRPA1 также экспрессируется в глиальных и иммунных клетках, где его активация стимулирует выброс провоспалительных цитокинов и хемокинонов, что дополнительно усиливает рекрутацию иммунных клеток и усиливает воспалительный ответ. В совокупности TRPA1 служит важным мостом между нервной и иммунной системами, способствуя усилению воспаления и гиперчувствительности нейронов при CIPN. Таким образом, антагонизм TRPA1 может облегчать боль за счёт двойной нейроиммунной модуляции, подавляя высвобождение CGRP и SP, снижая нейрогенное воспаление и набор иммунных клеток, а также снижая уровень провоспалительныхцитокинов 62.
Сингх и соавторы сообщили, что лечение OXA увеличивает коэкспрессию транзиентного рецепторного потенциала ваниллоида 1 (TRPV1) и потенциала временного рецептора M8 (TRPM8) с TRPA1 в DRG крыс, что приводит к усилению невропатического болевого поведения. Примечательно, что TRPA1 и TRPV1 имеют общие функциональные перекрёстные связи при болевых сигналах, вызванных химиотерапией; однако в настоящее время клинические применения в основном сосредоточены на агонисте TRPV1 капсаицине, который облегчает невропатическую боль путём десенсибилизации ноцицепторов, экспрессирующихTRPV1 34. Это даёт представление о будущем разработке анальгетиков, направленных на TRPA1. В совокупности TRPA1 выступает в роли критического интегратора окислительного стресса, иммунной активации и сигнализации боли, что делает его перспективной целью как для обезболивающих, так и для противовоспалительных терапий в CIPN.
- Калиевые каналы
- Повреждение нейронов DRG
- Прямое повреждение нейронов
DRG является основным участком, поражаемым CIPN, однако механизмы повреждения нейронов различаются у химиотерапевтических препаратов. На рисунке 3 показаны различные пути, участвующие в повреждении нейронов DRG, вызванных различными препаратами. Например, PTX способствует инфильтрации макрофагов в DRG, что уменьшает количество внутриэпидермальных нервных волокон (IENF) и ускоряет прогрессированиеCIPN 35. Агенты на основе платины накапливаются в нейронах DRG, вызывая дисфункцию митохондрий, чрезмерную генерацию ROS и апоптоз нейронов. Талидомид может напрямую вызывать повреждение нейронов DRG. Кроме того, несколько химиотерапевтических препаратов изменяют экспрессию и функцию ионных каналов натрия, калия и кальция, что приводит к гипервозбудимостинейронов 36,37. Нарушение структуры микротрубочек в DRG дополнительно нарушает транспорт аксонов и запускает валлерианскую дегенерацию, что в конечном итоге приводит к потере нервных волокон и нарушениюнейронной передачи 38. - Косвенное иммунно-опосредованное повреждение
Помимо прямой нейронной токсичности, химиотерапевтические препараты могут косвенно повреждать нейроны DRG через активацию врождённой иммунной сигнализации. Клеточное повреждение, вызванное этими агентами, выделяет DAMPs, которые, в свою очередь, активируют рецепторы распознавания образов (PRR), такие как TLR4, а также рецептор для конечных продуктов продвинутой гликации (RAGE). Активация этих рецепторов вызывает нейровоспалительные каскады, усиливает возбудимость нейронов и усиливает невропатическуюболь 39. В совокупности эти результаты свидетельствуют о том, что химиотерапевтические препараты вызывают повреждение DRG как через прямые цитотоксичные механизмы, так и косвенные иммунно-опосредованные пути, тем самым способствуя возникновению и прогрессированию CIPN.
- Прямое повреждение нейронов
- Нарушение нейронного цитоскелета
Предыдущие исследования показали, что деполимеризация микротрубочек напрямую ослабляет структурную целостность нейронов и снижает их способность к удлинению аксонов. Разборка цитоскелета вызывает неровности на поверхности нейронов, и эти механические изменения могут служить физическими отличительными чертамиCIPN 40. Другое исследование Чайна и др. впервые показало, что Hsp27 может предотвратить CIPN, защищая структуру аксонов. В отличие от традиционных противовоспалительных механизмов, Hsp27 оказывает нейропротекторное действие, регулируя апоптотические пути и поддерживая стабильностьцитоскелета 46.
Алкалоиды Винка (такие как винкристин, видеомагнитофона) специально связываются с концами β-тубулинов, блокируя формирование веретена и аксональный транспорт, что приводит к деполимеризации микротрубочек и дефектам вырастаниянейрита 40. В отличие от этого, паклитаксел стабилизирует микротрубочки и предотвращает их деполимеризацию, тем самым нарушая передачу электрических сигналов и митохондриальный транспорт внутри аксонов, что вызывает демиелинизацию периферических нервныхволокон 41. Бортезомиб через непротеасомный путь индуцирует чрезмерную полимеризацию микротрубочек, подавляет расширение нейритов и запускает аксональнуюдегенерацию 42.
Эти препараты вместе приводят к нарушению аксонального транспорта, нейронному апоптозу и потере нейропроводности, что составляет основную патологическую основу CIPN. Кроме того, активация сигнального пути RhoA/ROCK/LIMK/кофилина предотвращает ремоделирование актиновых филаментов, что дополнительно ингибирует регенерациюаксонов 63. Нарушение цитоскелета также взаимодействует с дефектами транспорта митохондрий и активацией кальпаинта, образуя порочный цикл «структура-энергия-апоптоз», ускоряющий прогрессированиеCIPN 64.
2. Механизмы CIPN, связанные с TRPA1
TRPA1 — это неселективный катионный канал, обычно существующий в виде гомотетрамера в клеточной мембране. Он содержит шесть трансмембранных сегментов (S1-S6), характерных для TRP-каналов. Среди них S1-S4 образуют область, похожую на датчик напряжения (VSLD), а S5 и S6 формируют поры, через которые проходят ионы. Эти области необходимы для активации канала и его роли в восприятии болезненных, тепловых и химическихстимулов 65. Длинная N-конечная область TRPA1 содержит несколько доменов анкириновых повторов (ARD), которые опосредуют взаимодействия с другими белками и способствуют регуляции каналов. Эта область также служит ключевым местом для модуляции киназами, участвующими в сигнализацииболи 66,67. На C-конце домен, подобный TRP, соединяется с трансмембранной областью и играет центральную роль в гейтинге канала. Движение этого домена вместе с перестановками S5 и S6 лежит в основе открытия каналов и притокаCa2+, который активирует сигнальные пути ниже по потоку, участвующие в воспалении иболи 68,69. В целом, ARD, трансмембранные спирали (S1-S6) и домен, похожий на TRP, являются основными структурными особенностями, определяющими активацию TRPA1 и его роль в боли и воспалительном сигнале. Рисунок 4 иллюстрирует ключевые структурные домены TRPA1, связанные с его активацией химиотерапевтическими препаратами, а таблица 2 суммирует механизмы CIPN, связанные с TRPA1 61,62,70,71,72,73,74,75,76,77,78,79,80,81,82,83.
- Активация TRPA1, опосредованная окислительным стрессом, в CIPN
- Окислительный стресс является одним из основных факторов как противоопухолевой эффективности, так и нейротоксичности химиотерапевтическихпрепаратов 84. TRPA1 функционирует как ионный канал, чувствительный к редокс и электрофилам, который активируется при повышенном окислительном стрессе во время химиотерапии. Окисленные фосфолипиды (OxPAPC) и другие электрофилы, полученные из реактивных видов кислорода (ROS), ковалентно модифицируют остатки цистеина в N-концевом домене TRPA1, тем самым активируя канал и стимулируя приток кальция. Эта активация приводит к высвобождению нейропептидов и воспалительных медиаторов, таких как CGRP и SP, которые опосредуют аномальную передачу боли и нейрогенное воспаление в патогенезеCIPN 61,70. Тем временем периферическое воспаление, вызванное химиотерапевтическими препаратами, приводит к чрезмерному образованию и накоплению ROS в сенсорных ганглиях, что дополнительно активирует и усиливает TRPA1, формируя положительную обратную связь ROS-TRPA1, усиливающую воспалительную и механическуюгиперчувствительность 85.
CIPN, вызванный CDDP, также опирается на этот механизм, поскольку CDDP способствует выработке ROS в тканях полости рта, что активирует TRPA1 и приводит к стойкой орофациальнойболи 86. Аналогично, OXA модулирует активность TRPA1 через несколько механизмов. С одной стороны, OXA напрямую активирует TRPA1 через механизм, чувствительный к глутатиону, что приводит к цитоплазматическому закислению в нейронахDRG 71,87. С другой стороны, OXA ингибирует пролилгидроксилазу (PHD), тем самым предотвращая гидроксилирование остатков пролина в N-конечной области TRPA1, что повышает чувствительность канала к ROS и значительно повышает его реакцию на холодныестимулы 71. Кроме того, OXA активирует сигнальный путь p38 MAPK, дополнительно способствуя TRPA1-опосредованной гиперчувствительностик холоду 88.
Исследования на животных предоставили убедительные доказательства в поддержку этих механизмов. У мышей, обработанных OXA, наблюдалась выраженная механическая аллодиния и гиперчувствительность к холоду, тогда как у мышей с нокаутом TRPA1 эти ответы значительно ослабели89. Последовательные результаты также были получены в модели личинок CIPN у данио-рерио, где активация TRPA1 усиливала выработку ROS за счёт стимулирования окислительного стресса и передачи болевых сигналов, тем самым поддерживая болевой ответ90. В совокупности эти данные показывают, что TRPA1 функционирует как критический узл, связывающий чувствительность ROS и усиление боли, формируя центральный путь, через который окислительный стресс опосредует невропатическую боль при CIPN.
- Окислительный стресс является одним из основных факторов как противоопухолевой эффективности, так и нейротоксичности химиотерапевтическихпрепаратов 84. TRPA1 функционирует как ионный канал, чувствительный к редокс и электрофилам, который активируется при повышенном окислительном стрессе во время химиотерапии. Окисленные фосфолипиды (OxPAPC) и другие электрофилы, полученные из реактивных видов кислорода (ROS), ковалентно модифицируют остатки цистеина в N-концевом домене TRPA1, тем самым активируя канал и стимулируя приток кальция. Эта активация приводит к высвобождению нейропептидов и воспалительных медиаторов, таких как CGRP и SP, которые опосредуют аномальную передачу боли и нейрогенное воспаление в патогенезеCIPN 61,70. Тем временем периферическое воспаление, вызванное химиотерапевтическими препаратами, приводит к чрезмерному образованию и накоплению ROS в сенсорных ганглиях, что дополнительно активирует и усиливает TRPA1, формируя положительную обратную связь ROS-TRPA1, усиливающую воспалительную и механическуюгиперчувствительность 85.
- Роль TRPA1 в иммунной регуляции и воспалительной боли
TRPA1 — это редокс-чувствительный, неселективный катионный канал, который экспрессируется как в периферической сенсорной нервной системе, так и в различных типах иммунных клеток. Он может активироваться химиотерапевтическими препаратами окислительными, нитративными и альдегидными стрессами, а также воспалительными медиаторами и электрохимическими стимулами, играя ключевую роль в воспалительных реакциях и повышении боли во время CIPN24,91,92.- TRPA1 регулирует нейровоспаление, опосредованное иммунными клетками
В периферической нервной системе TRPA1 лучше всего характеризуется в сенсорных нейронах DRG, где он выступает ключевым медиатором ноцицепции. Во время химиотерапии повышенные уровни ROS, реактивных азотных форм (RNS) и альдегидных метаболитов, преимущественно происходящих из повреждённых нейронов и окружающих клеток Шванна, могут напрямую активировать нейронный TRPA1, что приводит к повышению возбудимости и гиперчувствительности к боли93. В то же время в сенсорных нейронах было показано, что сигнализация TLR4 повышает экспрессию TRPA1 в нейронах DRG, тем самым усиливая гиперчувствительность кболи 94.
Помимо нейронов, клетки Шванна также экспрессируют TRPA1, который может активироваться при воздействии окислительного стресса. Активированные клетки Шванна усиливают сигналы ROS и высвобождают воспалительные медиаторы, формируя обратную связь «клетка-нейрон-TRPA1», которая поддерживает нейровоспаление и способствует развитиюCIPN 72,73. Исследования на животных показали, что истощение макрофагов, находящихся в седалищном нерве, заметно снижает боль, связанную с раком, вызванную активацией TRPA1 клетки Шванна и окислительным стрессом, что подчёркивает взаимодействие между клетками Шванна имиелоидными клетками 73.
Помимо сенсорных нейронов, TRPA1 функционально экспрессируется в нескольких популяциях иммунных клеток, включая макрофаги, Т-клетки, NK-клетки и MC 24,74,95. ROS, RNS и метаболиты, вырабатываемые во время химиотерапии, могут активировать TRPA1 в этих клетках, вызывая разнообразные иммунные ответы в зависимости от типа91. В макрофагах TRPA1 подавляет провоспалительную активацию, способствует противовоспалительному фенотипу и ограничивает инфильтрацию макрофагов, тем самым оказывая противовоспалительные и тканевые защитныеэффекты 14,96. В лимфоцитах активация TRPA1 подавляет активацию и эффекторные функции Т-клеток, негативно регулируя иммунные ответы, опосредованныеТ-клетками 97, тогда как TRPA1-опосредованный притокCa2+ может усиливать цитотоксичность NK-клеток, модулируя нейровоспалительные реакции после повреждениянервов 52,74. В тучных клетках активация TRPA1 связана со стресс-индуцированной дегрануляцией и провоспалительными сигналами, способствуя усилению аллергического и нейрогенноговоспаления 24,75.
В совокупности эти наблюдения свидетельствуют о том, что TRPA1 служит сигнальным узлом, связывающим нейроны, клетки Шванна и иммунные клетки, при этом повышенная активация TRPA1 в каждом типе клеток способствует инициации и поддержанию CIPN. На рисунке 5 показаны предложенные механизмы перекрёстного перекрёстного взаимодействия и болевых сигналов, опосредованных TRPA1, при CIPN. - TRPA1 при воспалительной боли и ноцицепции, связанной с CIPN
В сенсорной нервной системе TRPA1 преимущественно локализован в первичных сенсорных нейронах DRG, трейничных ганглиях (TG) и блукающих ганглиях (VG). Продукты окислительного стресса, воспалительные медиаторы и сигнализация протеинкиназой (PKA/PKC), индуцируемые химиотерапевтическими агентами, усиливают фосфорилирование TRPA1 и активностьканалов 26. Активация каналов увеличивает внутриклеточный притокCa2+ , вызывая высвобождение нейропептидов, таких как SP, нейрокинин A (NK-A) и CGRP, которые способствуют вазодилатации, экстравазации плазмы и рекрутации иммунных клеток, тем самым вызывая нейрогенное воспаление и чувствительность кболи 62.
При воспалительных состояниях повышенный уровень провоспалительных цитокинов (семейство IL-1, TNF-α, IL-6, IL-8) и хемокинов (CXCL5/CXCR2) дополнительно усиливает выработку ROS и активацию TRPA1, что приводит к деполяризации мембран и гипервозбудливости нейронов DRG, что в конечном итоге способствует невропатической боли. Кроме того, воспалительные медиаторы, такие как NGF, повышают экспрессию TRPA1, формируя положительную обратную связь, которая поддерживает воспаление и боль 14,98,99,100. TRPA1 также участвует в периферической и центральной сенсибилизации, тем самым усиливая передачуболи 101.
Кроме того, TRPA1 способствует ноцицептивной сигнализации, модулируя пути, связанные с воспалением. Повышенная регуляция TRPA1 увеличивает притокCa2+ и активирует путь панексин-1 (PANX1), усиливая высвобождение аденозинтрифосфата (АТФ). Внеклеточный АТФ, действующий в роли нейромедиатора, дополнительно способствует повышению болевойгиперчувствительности 102. Химиотерапевтические препараты также могут сенсибилизировать TRPA1 через активацию брадикининовых B2-рецепторов и сигнализацию PLC/PKCε в тучных клетках, усиливая боль, связанную сCIPN 103. Напротив, опиоидные соединения, такие как лоперамид, подавляют активность TRPA1 и натриевого канала (VGSC), ингибируют микроглиальную активацию и окислительный стресс, а значит, облегчают гипералгезию приCIPN 104,105.
В итоге TRPA1 служит ключевым молекулярным мишенем, связывающим окислительный стресс и воспалительную сигнализацию в CIPN. Координируя двусторонние взаимодействия между иммунными клетками и сенсорными нейронами, TRPA1 не только инициирует и распространяет воспаление, но и усиливает боль, служа важным мостом между иммунной регуляцией, нейровоспалениями и ноцицептивной гиперчувствительностью. - TRPA1-опосредованное перекрёстные перекрестные каналы и сенсибилизация нейронов DRG
TRPA1 сильно экспрессируется в повреждённых сенсорных нейронах, особенно в DRG, и выступает в роли ключевого ионного канала, опосредующего CIPN. Он модулирует возбудимость нейронов и способствует ноцицептивной передаче сигнала через взаимодействие с несколькими ионными каналами. Например, активация TRPV1 может повысить чувствительность к TRPA1, и оба канала часто соэкспрессируются, что синергетически способствует холодной аллодии и механической гипералгезии 76,106. Кроме того, TRPA1 проявляет дополняющие функции с холодочувствительным каналом TRPM8: TRPM8 опосредовывает безобидные ощущения охлаждения в диапазоне 25-28 °C, тогда как TRPA1 активируется при температуре ниже 17 °C и отвечает за обнаружение интенсивных, вредных холодных раздражителей. Аномальная активация обоих каналов связана с гиперчувствительностью к холоду, часто наблюдаемой у пациентов сCIPN 77. Окислительный стресс, вызванный химиотерапией, и усиленная активность каналов Ca2+ могут дополнительно активировать каналы TRPA1, что приводит к частому активированию потенциала действия в зависимости от напряжением-зависимых Na+ каналов (Nav1.7)78,79. Кроме того,Zn 2+ может напрямую активировать TRPA1 для стимулирования высвобожденияCGRP 80, тогда как напряжение-зависимые K+ каналы (Kv7) оказывают негативное регуляторное воздействие на этотпроцесс 81. В совокупности кооперативное взаимодействие между TRPA1 и другими ионными каналами, включая TRPV1, TRPM8, Ca2+, Na+, K+ и Zn2+ каналы, усиливает возбудимость нейронов и ноцицептивную передачу в CIPN.
Кроме того, внутриклеточный гомеостаз pH может модулировать активность TRPA1. Na+/H+ обменник 1 (NHE1) влияет на чувствительность к TRPA1, регулируя внутриклеточный pH. При воспалительных или химиотерапевтических повреждениях TRPA1 и NHE1 взаимодействуют в нейронахDRG 87,107, а внутриклеточная кислотность повышает реакцию TRPA1, что приводит к увеличению частоты потенциала действия и повышенному высвобождению нейромедиаторов, таких как глутамат и CGRP82,83. Этот процесс способствует воспалительной боли и гиперчувствительности к холоду, а также дополнительно поддерживает нейровоспаление. Напротив, ингибирование экспрессии или функции TRPA1 в нейронах DRG значительно ослабляет ноцицептивную передачу и нейровоспалительныереакции 108.
В заключение, TRPA1 служит центральным молекулярным узлом, связывающим окислительное напряжение и сигнализацию ионных каналов в CIPN. Благодаря обширному перекрёстному взаимодействию с несколькими ионными каналами и внутриклеточным регуляторным механизмами, TRPA1 способствует гипервозбудимости сенсорных нейронов и гиперсенсибилизации боли, являясь критически важной молекулярной мишенью для лечения боли, связанной с CIPN. Рисунок 6 показывает механизм, с помощью которого TRPA1 модулирует возбудимость нейронов и усиливает ноцицептивную сигнализацию через взаимодействие с различными ионными каналами.
- TRPA1 регулирует нейровоспаление, опосредованное иммунными клетками
3. Потенциал таргетирования TRPA1 для лечения CIPN
В предыдущем разделе мы объяснили, как TRPA1 является ключевой мишенью для облегчения CIPN через запуск нейровоспалительного каскадного ответа. Механизм действия TRPA1 двояков: с одной стороны, TRPA1 напрямую модулируется нейровоспалительным каскадом и участвует в патологическом процессе CIPN; с другой стороны, TRPA1 взаимодействует с воспалительными сигналами, которые, в свою очередь, опосредуют нейротоксичные реакции и усугубляют повреждение нейронов. Таким образом, целенаправленное ингибирование TRPA1 может снизить окислительный стресс и нейровоспалительные реакции, ослабить болевые сигналы и, в конечном итоге, улучшить симптомы, связанные с CIPN. Рисунок 7 показывает предложенные механизмы, с помощью которых ингибирование TRPA1, будь то конкретными антагонистами или натуральными травяными агентами, смягчает невропатическую боль, связанную с CIPN.
- Антагонист TRPA1
TRPA1 может активироваться экзогенными веществами (например, горчичным маслом и циннамальдехидом) и эндогенными веществами (например, продуктами окислительного стресса и воспалительными медиаторами)62 , вызывая боль, зуд ивоспаление 109. По этой причине TRPA1 признан терапевтической целью с широким потенциалом применения, включая управление болью, воспалительные заболевания и неврологические расстройства. Поэтому исследование и разработка антагонистов TRPA1 крайне важны.
Несколько антагонистов TRPA1 продемонстрировали потенциальную терапевтическую эффективность для облегчения CIPN 109,110,111,112,113,114,115,116,117. Их основные механизмы включают подавление окислительных стрессовых реакций, опосредованных TRPA1, приток кальция и нейровоспалительные сигналы, тем самым оказывая антагонистический эффект на активность TRPA1. В доклинических исследованиях селективный блокатор TRPA1 HC-030031 значительно облегчал механическую и холодную гиперчувствительность, вызванную OXA иCDDP 28. Тем временем антагонисты следующего поколения, такие как GRC-17536 и LY-3526318, прошли до фазы II клинических испытаний диабетической невропатии, хронического кашля и невропатической боли, связанной с остеоартритом, демонстрируя хорошую переносимость и предварительнуюэффективность 109,113.
Таблица 3 содержит краткое изложение текущего состояния развития и клинических применений представительных антагонистов TRPA1. Эти исследования предоставляют клинические доказательства в пользу трансляционного потенциала антагонистов TRPA1 в лечении невропатической боли. Однако большинство антагонистов TRPA1 по-прежнему ограничены низкой биодоступностью и потенциальными внецелевыми эффектами 115,118,119 и ещё не прошли специфическую клиническую оценку для CIPN. Будущие исследования должны быть сосредоточены на оптимизации селективности соединений и фармакокинетических свойств, а также на разработке клинических испытаний, специально направленных на CIPN, чтобы подтвердить терапевтическую значимость ингибирования TRPA1 в этом контексте.
Помимо прямого антагонизма, модуляция активности TRPA1 через другие молекулярные мишени также показала перспективы в CIPN. Рецепторы Sigma-1 выполняют регуляторные функции на различных ионных каналах, и было показано, что антагонисты рецепторов Sigma-1 значительно ингибируют экспрессию плазматических мембран и функцию каналов TRPA1, тем самым предотвращая прогрессирование болевых симптомов у мышей-моделей CIPN, вызванныхOXA, 89. Исследование Тревисана и соавторов показало, что симптомы гиперчувствительности к CIPN, вызванной бортезомибом, можно эффективно предотвратить и смягчить при одновременном применении антагониста TRPA1 HC-030031 или антиоксиданта α-липоевой кислоты до или во времяхимиотерапии 120. Кроме того, в контексте нейротоксичности, вызванной химиотерапевтическими препаратами, ингибиторы TRPA1 способны смягчать неврологические повреждения, снижая кальциевые провоспалительные сигналы.
В заключение, антагонисты TRPA1 играют важную роль в профилактике и лечении CIPN, регулируя функцию и подавляя активность этого канала, а также другие механизмы, чтобы ослабить гиперчувствительность к боли и облегчить повреждение нервов. - Модуляторы активности TRPA1 как новые варианты лечения CIPN
TRPA1 участвует в патологических процессах CIPN через нейровоспалительный каскадный ответ и нейротоксичное повреждение и может стать новой целью для лечения CIPN.
Несколько исследований показали, что определённые натуральные травы и их активные компоненты тесно связаны с регуляцией активности каналов TRPA1 и проявляют биологические эффекты, такие как противовоспалительные и обезболивающие, что позволяет создавать потенциальные стратегии профилактики и лечения CIPN. Например, было показано, что ликвиритин обладает значительными противовоспалительными свойствами121, в то время как аллицин обладает обезболивающим потенциалом благодаря своим антиоксидантным и противовоспалительным свойствам122; оба соединения участвуют в модуляции активности канала TRPA1. Основываясь на этих данных, предполагается, что эти природные соединения могут облегчать восприятие боли, связанные с CIPN, и нейровоспалительные реакции через регуляцию активности TRPA1, тем самым оказывая потенциальный терапевтический эффект. Дальнейшие исследования показали, что ментол проявляет двунаправленное регуляторное воздействие на каналы TRPA1, активируя TRPA1 при низких концентрациях и одновременно ингибируя его активность при высоких. Правильное использование ментола может модулировать активность TRPA1 для достижения обезболивающего и противовоспалительного эффекта у пациентов с CIPN123. Аналогично, корица, традиционно используемая как согревающая терапия для улучшения кровообращения, содержит циннамальдегид в качестве основного активного компонента. Ли и др. сообщили, что циннамальдегид активирует рецепторы TRPA1, способствуя термогенезу в коричневой жировой ткани и, тем самым помогая поддерживать температуру тела и снижать чувствительность к холоду124. Кроме того, циннамальдегид усиливает антиоксидантный ответ, активируя ядерный фактор, связанный с эритроидом 2 (Nrf2)125. В совокупности ментол, ингибируя TRPA1 в более высоких концентрациях, может облегчить механическую и холодную аллодинию, характерную для CIPN, тогда как циннамальдегид, благодаря активирующему TRPA1 и антиоксидантным механизмам, опосредованным Nrf2, может противодействовать окислительному стрессу, вызванному химиотерапией, и улучшать непереносимость холода у пациентов с CIPN. Кроме того, были доказаны меры бергенина моногидрата, лигустразина, сайкосапонина и водных экстрактов Notopterygium incisum в снижении невропатической боли126,127,128,129.
Таблица 4 обобщает природные травяные источники TRPA1-лигандов и их возможные механизмы облегчения CIPN. Эти результаты подчёркивают потенциал компонентов ТКМ в снижении нейротоксичности при CIPN. Хотя ряд природных соединений был идентифицирован как модуляторы TRPA1 с потенциальным терапевтическим эффектом, большинство из них остаются на уровне in vitro и стадии исследований на животных, и доказательства их эффективности в CIPN в основном основаны на доклинических моделях. В отличие от этого, только ментол обладает ограниченными доказательствами доказательств концепции на людях и продолжающимися зарегистрированными клиническими испытаниями130. Эти результаты в совокупности свидетельствуют о том, что хотя натуральные продукты, направленные на TRPA1, демонстрируют большие перспективы в снижении нейротоксичности, связанной с CIPN, необходимы дальнейшие хорошо спланированные клинические исследования для подтверждения их трансляционного потенциала и терапевтической эффективности.
Натуральные модуляторы TRPA1, выявленные из растительных экстрактов, не только предоставляют новые терапевтические подходы для управления болью, но и представляют собой потенциальные природные источники для лечения CIPN. Всё больше данных указывает на то, что натуральные соединения могут облегчать нейротоксичные симптомы, вызванные химиотерапией, подавляя гиперактивацию TRPA1 или оказывая двусторонние регуляторные эффекты на канал, тем самым достигая как обезболивающих, так и противовоспалительных эффектов. Однако, несмотря на их многообещающий доклинический потенциал, систематическая клиническая валидация остаётся недостаточной. Кроме того, эти соединения обычно обладают многоцелевыми и многопутными регуляторными характеристиками, что затрудняет определение специфического вклада модуляции TRPA1 в их общий терапевтический эффект. Будущие исследования должны быть сосредоточены на выяснении молекулярных механизмов, через которые естественные модуляторы TRPA1 влияют на CIPN, изучению синергетических взаимодействий между TRPA1 и другими ионными каналами или сигнальными путями, а также проведению хорошо спланированных клинических испытаний для подтверждения их эффективности и безопасности. Такие усилия будут необходимы для преобразования природных агентов, направленных на TRPA1, в практические стратегии управления CIPN.
4. Обсуждение
Согласно последней статистике Международного агентства по изучению рака (IARC), в 2022 году будет почти 20 миллионов новых случаев рака, и примерно 50% этих пациентов в конечном итоге умрут от рака или его осложнений. Прогнозы IARC также показывают, что количество новых случаев рака в год превысит 35 миллионов в 2050 году. Таким образом, рак является одной из главных проблем общественного здравоохранения во всём мире и одним из главных факторов глобального бремениболезней 1. Хотя новые методы лечения рака (например, таргетная терапия и иммунотерапия) продолжают исследоваться и разрабатываться, химиотерапия по-прежнему играет центральную роль в лечении рака. CIPN является распространённым побочным эффектом химиотерапии, влияющим на ход лечения и его эффективность. Однако патогенез CIPN неясен, но может быть связан с дисфункцией митохондрий, окислительным стрессом, нарушениями иммунной системы, нарушением ионных каналов и повреждением нейроновDRG 2. В настоящее время ASCO рекомендует только дулоксетин для обезболивания у пациентов с CIPN. Несмотря на его доказанную анальгетическую эффективность, общая клиническая польза дулоксетина умеренна, так как он в первую очередь облегчает симптомы, а не предотвращает CIPN или обращает обратное патологическиеизменения 8. Поэтому изучение потенциальных целей CIPN важно для разработки лекарств и точной терапии.
TRP-каналы, являющиеся ключевыми медиаторами ноцицептивной сигнализации, получают всё большее внимание в контексте разработки терапии CIPN. Среди каналов TRP TRPA1 считается ключевым фактором индукции болевой гиперчувствительности различными химиотерапевтическимипрепаратами 131. Поэтому данное исследование сосредоточено на роли TRPA1 в патогенезе CIPN и дополнительно проясняет механизмы, с помощью которых он опосредует невропатическую боль, как показано на рисунке 8. Этот канал активируется окислительным стрессом, вызывая аномальную механическую боль и гиперчувствительность кхолоду 61,70,71 и участвует в воспалительном ноцицепции, модулируя иммунные клетки для опосредования нейровоспаления 62,72,73,74,75. Кроме того, каналы TRPA1 взаимодействуют с TRPV1, TRPM8 и каналами с ограничением напряжения, такими как Ca2+, Nav1.7, Zn2+ и Kv7. Эти взаимодействия усиливают невропатические и воспалительные болевыереакции 76, 77, 78, 79, 80, 81. Такая синергетическая модуляция имеет значительные клинические последствия. Поскольку TRPA1, TRPV1 и TRPM8 соэкспрессируются в сенсорных нейронах и могут взаимно регулировать активность друг друга, двойные или многоцелевые ингибиторы способны вызывать более выраженные обезболивающие эффекты, чем те, что нацелены только на TRPA1. Кроме того, это синергетическое взаимодействие позволяет каждому соединению достигать сопоставимой анальгетической эффективности при низких дозах, тем самым снижая потенциальные побочные эффекты. Аналогично, DRG, являющийся мишенью нейротоксичности CIPN, подвержен воздействию TRPA1. Активация TRPA1 повышает возбудимость нейронов DRG, что, в свою очередь, способствует высвобождению нейромедиаторов из DRG, что приводит к повышенной гиперчувствительности к ноцицептивнымсимптомам 82,83. В заключение, TRPA1 может усиливать невропатическую боль у пациентов с CIPN, вызывая нейровоспалительный каскадный ответ. Таким образом, антагонистирование TRPA1 может эффективно облегчить воспалительные и болезненные симптомы CIPN, что также говорит о необходимости применения антагонистов TRPA1 и натуральных трав.
Эффективность антагонистов TRPA1 была эффективно продемонстрирована на животных моделях. Например, у мышей с KO-инфекцией TRPA1 и при применении антагонистов TRPA1 (например, HC-030031) симптомы невропатической боли, вызванной препаратами, значительноослабляют 86,89. Тем не менее, существуют ограничения в применении антагонистов TRPA1, поскольку клинические испытания для пациентов с CIPN пока не проводились, что свидетельствует о необходимости дополнительной оценки и подтверждения безопасности и эффективности антагонистов TRPA1 у людей. Например, различия в паттернах экспрессии TRPA1 и чувствительности к антагонистам у грызунов и человека могут приводить к расхождениям между доклиническими и клиническими результатами. Кроме того, переход экспериментальных доз от животных к человеку остаётся неопределённым, что ещё больше усложняет разработку лекарств.
Кроме того, точные механизмы, с помощью которых TRPA1 функционирует как терапевтическая мишень в CIPN, пока не полностью выяснены, а его тканевые роли требуют дальнейших исследований. Учитывая широкую экспрессию TRPA1 в сенсорных нейронах, клетках Шванна и иммунных клетках, определение его специфических функций в разных клеточных контекстах остаётся сложным. Большинство существующих исследований опираются на системные антагонисты TRPA1, что затрудняет точное отнесение наблюдаемых эффектов к конкретным клеточным отделениям. Следует подчеркнуть, что TRPA1, экспрессируемый сенсорными нейронами, напрямую опосредует ноцицептивную сигнализацию, тогда как TRPA1 в клетках Шванна и иммунных клетках в основном регулирует воспалительные и микроэкологические процессы, которые вторично регулируют чувствительность к боли. Таким образом, тканево-специфическая делеция TRPA1 даст важные механистические выводы. Нейронноспецифическая потеря TRPA1 может прояснить его прямую роль в возбудимости ноцицепторов и передаче боли, тогда как клеточно-специфическая делеция Шванна может прояснить, как окислительный стресс, вызванный TRPA1, и глиально-нейронные взаимодействия способствуют устойчивому нейровоспалению. Важно, что иммунноклеточно-специфические нокаутные модели TRPA1 (например, в макрофагах или Т-клетках) помогут определить вклад иммунной сигнализации TRPA1 в нейроиммунные перекрёстные перекрёстные связи и регуляцию воспалительных веществ при CIPN. Такие подходы значительно углубили бы наше понимание специфических для тканей и клеток функций TRPA1 и способствовали разработке более точных терапевтических стратегий. Тем временем несколько аспектов антагонизма TRPA1 в лечении CIPN предстоит дальнейшее изучение. Например, проявляет ли TRPA1 различные функциональные роли в CIPN, вызванные различными химиотерапевтическими агентами, и как его активность может быть точнее модулирована для достижения оптимальной терапевтической эффективности, остаются важными нерешёнными вопросами.
В этом контексте сочетание антагонистов TRPA1 с натуральными травяными соединениями или формулами традиционной китайской медицины представляет собой перспективный терапевтический подход. Такая комбинированная терапия может не только снизить токсичность, связанную с лекарствами, но и повысить эффективность за счёт многоцелевых синергетических эффектов. В целом, антагонизующий TRPA1 может модулировать иммунные ответы и прервать нейровоспалительные каскады, тем самым эффективно снижая нейротоксичность и повреждение нейронов, открывая новые инсайты и потенциальные стратегии для клинического лечения CIPN.
Выводы
Этот обзор всесторонне исследует сложную связь между TRPA1 и CIPN, а также возможные противовоспалительные эффекты антагонизма TRPA1 в его лечении. Доклинические исследования показали, что фармакологическое торможение или генетическая делеция TRPA1 может подавлять нейровоспаление, снижать возбудимость нейронов и снижать нейротоксичность, тем самым вызывая противовоспалительные и обезболивающие эффекты, которые могут помочь облегчить симптомы CIPN. Однако в текущих исследованиях всё ещё есть некоторые ограничения. Будущие исследования должны дополнительно изучить конкретные молекулярные механизмы, лежащие в основе участия TRPA1 в CIPN, оптимизировать стратегии таргетинга и провести масштабные клинические испытания для проверки безопасности и эффективности антагонистов TRPA1. Это обеспечит более точные и эффективные варианты лечения для пациентов с CIPN.
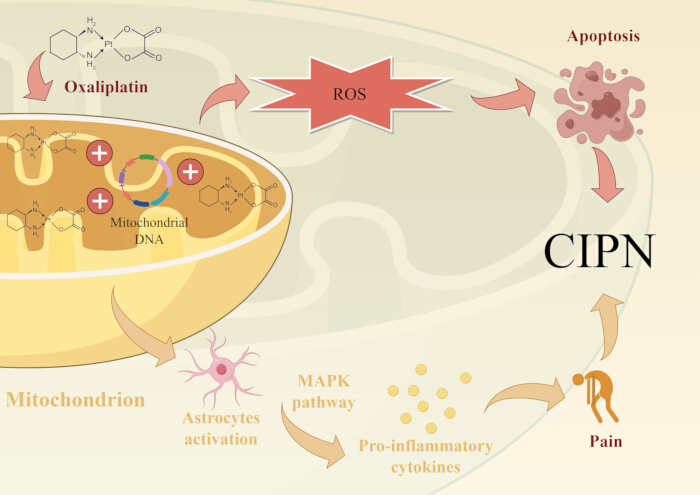
Рисунок 1: Дисфункция митохондрий и механизмы CIPN, вызванные окислительным стрессом. Платиновые химиотерапевтические агенты образуют платино-ДНК-аддукты, которые накапливаются в DRG, где связываются с nDNA и mtDNA. Это вызывает повреждение ДНК/митохондрии, усиливает выработку ROS и вызывает нейронный апоптоз. Также имеются данные, что OXA вызывает невропатическую боль, активируя астроциты и усиливая провоспалительные цитокины в пути MAPK. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
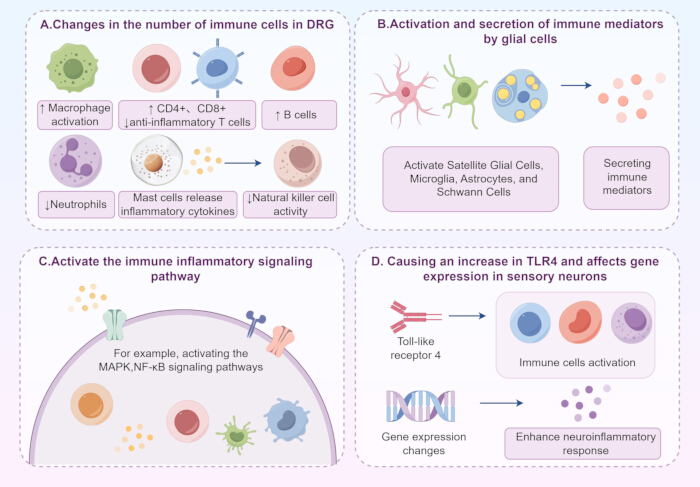
Рисунок 2: Механизмы индукции CIPN из-за аномалий в иммунной системе. (A) Химиотерапевтические препараты вызывают активацию макрофагов, увеличивают количество Т-лимфоцитов (CD4+), цитотоксичных Т-клеток (CD8+) и В-клеток в DRG, а также уменьшают количество противовоспалительных Т-клеток и нейтрофилов. MC способствуют прогрессированию CIPN, привлекая иммунные клетки и высвобождая различные воспалительные цитокины в CIPN, тем самым снижая активность NK-клеток, что, в свою очередь, усугубляет нейровоспаление и окислительный стресс. (B) Химиотерапевтические препараты модулируют активацию и секрецию иммунных медиаторов через SGC в DRG, микроглии и астроцитов в спинном мозге, а также клеток Шванна в аксонах, что приводит к повышенной возбудимости сенсорных нейронов и усилению болевой гиперчувствительности при CIPN. (C) Активация иммуновоспалительных сигнальных путей, таких как MAPK и NF-κB, также играет важную роль в усилении нейровоспалительных ответов. (D) Химиотерапевтические препараты также могут активировать иммунные клетки и усиливать нейровоспалительные реакции, увеличивая TLR4 и запуская сопутствующую дисрегуляцию генов. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
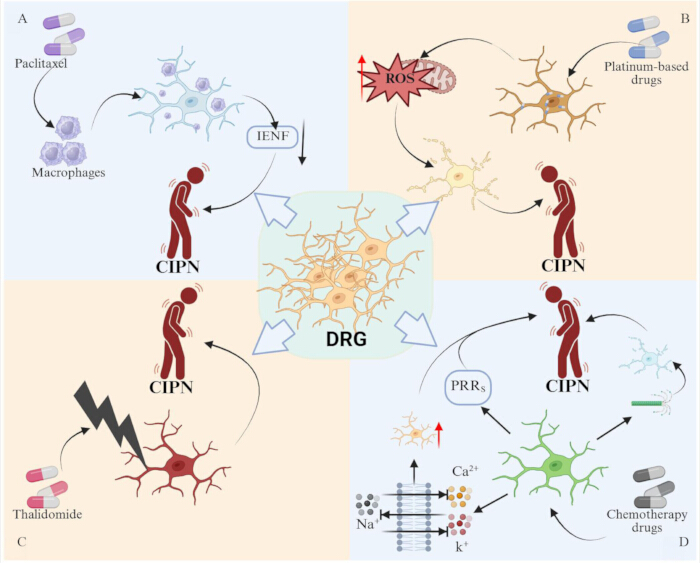
Рисунок 3: DRG является основной мишенью для химиотерапевтических препаратов, вызывающих CIPN. (A) PTX может привести к инфильтрации макрофагов в DRG, что, в свою очередь, приводит к уменьшению числа IENF. (B) Платиновые препараты накапливаются в DRG, что приводит к дисфункции митохондрий и повышению уровня ROS, что, в свою очередь, способствует нейронному апоптозу. (C) Талидомид может напрямую повредить DRG. (D) Химиотерапевтические препараты также могут повреждать нейроны DRG, изменяя каналы ионов натрия, калия и кальция, нарушая структуру микротрубочек и активируя PRR. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой фигуры.
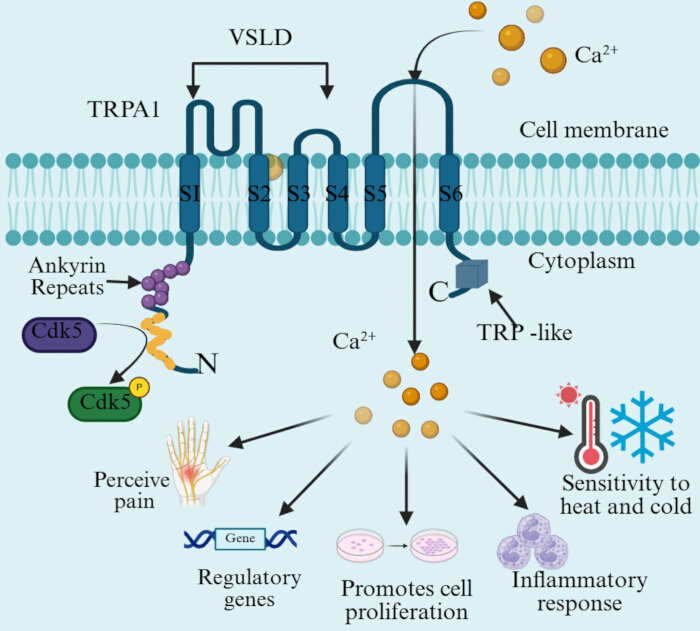
Рисунок 4: Ключевые структурные домены TRPA1, связанные с его активацией химиотерапевтическими препаратами. Канал TRPA1 содержит шесть трансмембранных α-спиральных фрагментов (S1-S6). Среди них S1-S4 составляют VSLD, а S5 и S6 образуют вогнутую поровую петлю. Оба конца канала TRPA1 — NH2 и COOH — расположены в цитоплазме. Один из более длинных концов NH2 содержит ARDs и участок Cdk5, тогда как C-конец TRPA1 содержит домен, похожий на TRP, и связан с трансмембранным структурным доменом. Активация каналов может вызвать притокCa2+ , что, в свою очередь, запускает серию клеточных сигнальных путей, таких как регулирование экспрессии генов, стимулирование клеточной пролиферации и провоцирование воспалительных ответов. Структура TRPA1 определяет его функцию в восприятии боли и чувствительности к теплу/холоду. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
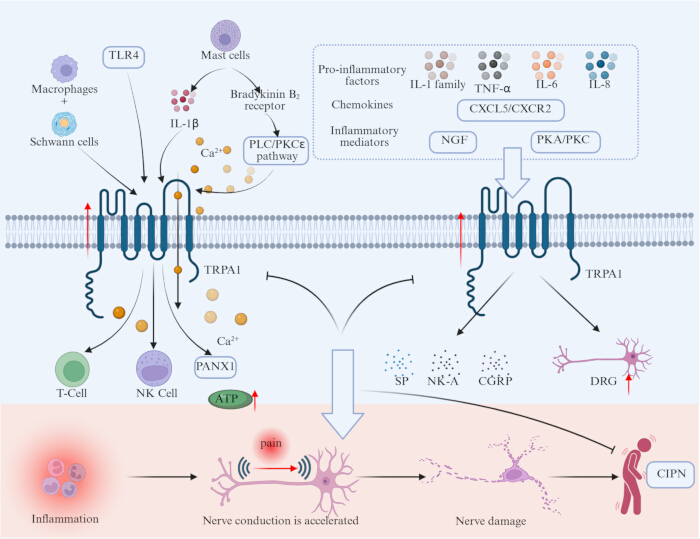
Рисунок 5: TRPA1 регулирует нейровоспалительную ноцицепцию, опосредованную иммунными клетками. Иммунные клетки (макрофаги, клетки Шванна и MCs), провоспалительные факторы (семейство IL-1, TNF-α, IL-6, IL-8), хемокины (CXCL5/CXCR2), воспалительные медиаторы (NGF, PKA/PKC) и TLR4 могут активировать каналы TRPA1. Активация каналов TRPA1 может увеличить концентрацию внутриклеточногоCa2+ , что способствует высвобождению SP, NK-A и CGRP, влияет на иммунные клетки (Т-клетки, NK-клетки) и модулирует воспаление (путь PANX1), тем самым повышая возбудимость нейронов DRG и поддерживая нейровоспаление и стойкую боль. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
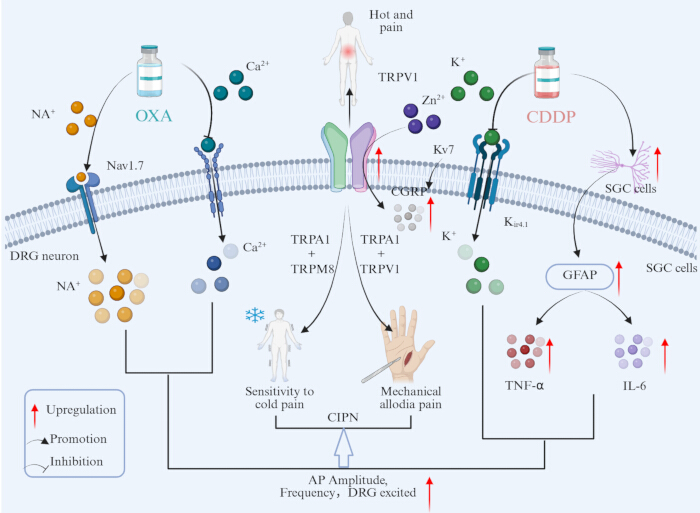
Рисунок 6: TRPA1 модулирует ионные каналы для ускорения болевых сигналов. TRPA1 и TRPM8 участвуют в гиперчувствительности к холоду, а TRPA1 и TRPV1 — в механической аллодинии. Кроме того, каналы TRPA1 с каналами Ca 2+, Nav1.7,Zn 2+, Kv 7 и Kir4.1 с напряжениями способствуют высвобождению воспалительных медиаторов (например, CGRP, GFAP) и провоспалительных факторов (например, TNF-α, IL-6), вызывая гипервозбудимость нейронов DRG, что, в свою очередь, оказывает синергетический эффект в усилении невропатической и воспалительной боли. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
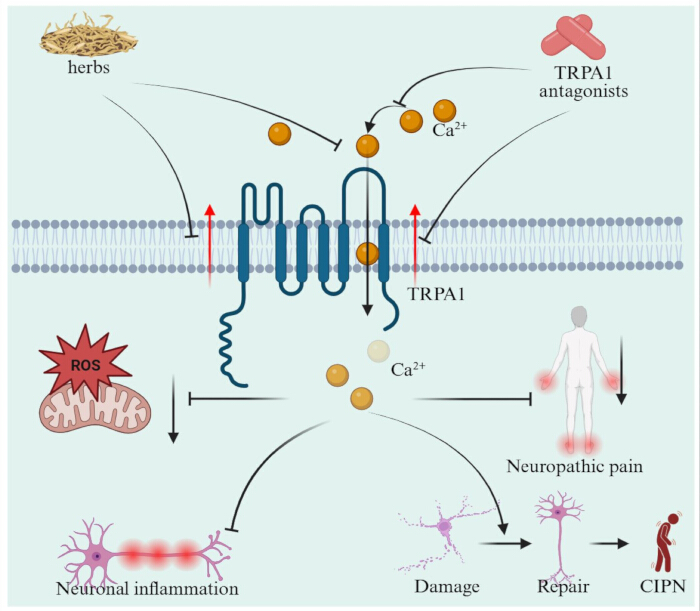
Рисунок 7: Потенциал таргетирования TRPA1 для лечения CIPN. Использование антагонистов TRPA1 и натуральных трав может подавлять активность каналов TRPA1, тем самым снижая потокCa2+ и окислительный стресс, что, в свою очередь, подавляет нейровоспалительные реакции и снижает невропатическую боль, в конечном итоге снижая повреждение нервов и улучшая симптомы, связанные с CIPN. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
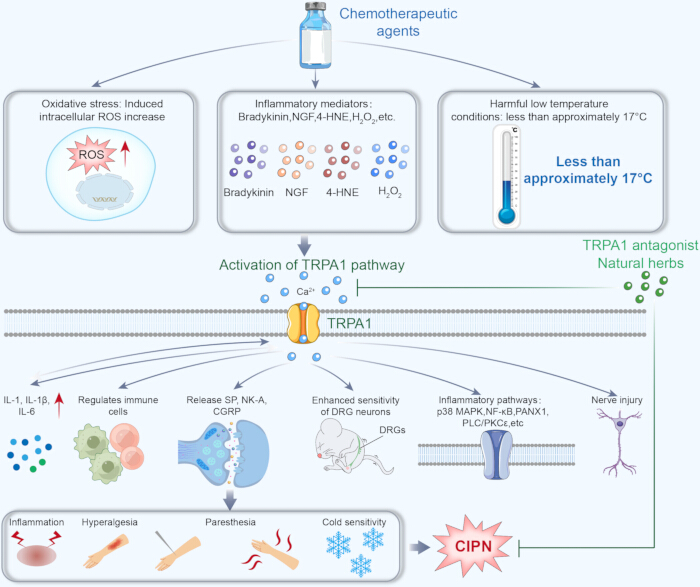
Рисунок 8: Ингибирование TRPA1. Терапевтическая стратегия для CIPN. Активация TRPA1 вызывает воспаление и гиперчувствительность при CIPN; его ингибирование антагонистами или травами может снижать нейрогенное воспаление, ноцицептивную сенсибилизацию и симптомы CIPN. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Таблица 1: Потенциальные механизмы, лежащие в основе CIPN. Химиотерапевтические препараты способствуют развитию CIPN через различные патологические пути, включая дисфункцию митохондрий и окислительный стресс, нарушения иммунной системы, дисрегуляцию ионных каналов, повреждение нейронов DRG и нарушение нейронного цитоскелета. Эти механизмы вместе приводят к нейровоспалению, нейротоксичности и невропатической боли. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Таблица 2: Механизмы CIPN, связанные с TRPA1. TRPA1 вносит вклад в развитие CIPN через различные патологические процессы, включая активацию, вызванную окислительным стрессом, иммуномодуляцию и воспаление, взаимодействие ионных каналов и повреждение нейронов DRG. Эти механизмы в совокупности усиливают возбудимость нейронов и способствуют нейропатической боли и гиперчувствительности. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Таблица 3: Текущий статус развития и клинические показания представительных антагонистов TRPA1. В этой таблице представлены основные антагонисты TRPA1, изученные в доклинических и клинических исследованиях, включая их механизмы действия, терапевтические показания и стадии разработки лекарств. Эти агенты ингибируют активность каналов TRPA1, тем самым снижая окислительный стресс, воспаление и невропатическую боль, связанные с CIPN и другими патологическими состояниями. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Таблица 4: Природные травяные источники лигандов TRPA1 и их потенциальные механизмы для облегчения CIPN. В этой таблице представлены представительные натуральные соединения и травяные экстракты, регулирующие активность TRPA1, включая их источники, типы химических веществ, экспериментальные условия и молекулярные мишени. Эти природные агенты оказывают нейропротекторное и противовоспалительное действие, регулируя TRPA1 и связанные с ним сигнальные пути, тем самым снижая окислительный стресс, нейровоспаление и гипервозбудимость нейронов, связанные с CIPN. Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Раскрытие информации
Нет финансовых конфликтов интересов, которые нужно раскрывать.
Благодарности
Авторы выражают благодарность всем членам группы Минчжу Ли за поддержку и помощь. Эта рукопись была поддержана Национальным фондом естественных наук Китая (82104838), программой Spark Фонда продвижения Китая (XH-D001) и Программой ключевых исследований и разработок провинции Ляонин (2024JH2/102500062), что вызывает благодарность. Рисунки 1 и 2 были нарисованы с помощью FigDraw.
Ссылки
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).