Мы представляем 3D-модель миграции глиобластомы, используя магнитные глиосферы, полученные пациентами, полученные из недавно диагностированных и рецидивирующих опухолей. Эта платформа позволяет визуализировать специфическую динамику миграции пациента и оценивать терапевтическую эффективность. Анализ можно мультиплексировать после миграции для оценки локализации белков и паттернов экспрессии.
Методическая статья
Воспроизводимый 3D-анализ миграции глиобластомы с магнитной наночастицой локализации сфероидов при гипоксических условиях
В этой статье
Краткое содержание
Аннотация
Мы описываем воспроизводимый 3D-миграционный анализ для моделирования миграционного и инвазивного потенциала глиосфер глиобластомы, полученных пациентами, из недавно диагностированных и рецидивирующих опухолей при клинически значимых гипоксических состояниях. Глиомасферы однородного размера переносятся на тонкий слой внеклеточного матрикса и совместно культивируются с наночастицами оксида железа с магнитом, что позволяет их централизованно локализовать в культурных колодцах, размещая их на держателе магнитной пластины. Включение магнитных наночастиц оксида железа в посевы позволяет проводить точную локализованную визуализацию отдельных пациентских глиосфер с помощью мягкой магнитной силы и оптимизирует автоматизированные конвейеры обработки изображений за счёт снижения позиционной изменчивости. Этот анализ поддерживает детальное изучение миграционного поведения глиобластомы в физиологически релевантной микросреде и позволяет напрямую сравнивать инвазивный потенциал и миграционное поведение между недавно диагностированными и рецидивированными пациентскими глиосферами. Метод совместим с живыми клетками и мультиплексированным анализом, предоставляя масштабируемую платформу для доклинического исследования миграции глиобластомы, инвазивного потенциала и терапевтического ответа.
Введение
Глиобластома остаётся одной из самых значимых проблем в нейроонкологии. Это заболевание обусловлено выраженной гетерогенностью между и внутри пациентов, устойчивым уклонением от стандарта лечения, устойчивостью к апоптотической индукции и заметной пластичностью в ответ на условия окружающейсреды. В последнее время сложность микросреды опухолей (ТМЭ) привлекла значительное внимание, особенно динамический характер стволоподобных клеток глиомы (ГСК), которые могут менять фенотип и состояние клетки в ответ на изменения микросреды 2,3. Эта фенотипическая пластичность способствует прогрессированию опухоли и способствует неизбежному рецидиву, несмотря на агрессивный стандарт лечения на передовой линии. Хирургическая резекция остаётся самым эффективным вмешательством для улучшения прогноза пациентов, однако из-за высокоинфильтративного и микроскопически инвазивного характера глиобластомы полное удаление опухолиневозможно 4. Моделирование инвазивной динамики образцов пациентов на различных стадиях заболевания и при специфических опухолевых условиях способствует более глубокому пониманию динамической и пластической способности миграции глиобластомы, а значит, поможет выявить эффективные новые методылечения 5. Поэтому разработка физиологически значимых моделей, отражающих специфическую для пациента динамику инвазии и миграции, необходима для улучшения доклинических исследований и продвижения этих целей. Кроме того, такие модели имеют решающее значение для оценки эффективности новых противоопухолевых методов терапии, которые теоретически могут быть разработаны для использования в сочетании с хирургическим вмешательством с целью предотвращения остаточного микроскопического вторжения и, в конечном итоге, снижения риска рецидива. Сложность глиобластомы оправдывает необходимость продвинутых, сложных доклинических моделей, способных воссоздать ключевые архитектурные особенности опухоли. Трехмерные модели, полученные от пациентов, привлекли всё большее внимание благодаря способности сохранять взаимодействие между клетками, поддерживать градиенты питательных веществ, кислорода и терапевтических веществ, а также воспроизводить структурную целостность родныхопухолей 6,7. Однако визуализация этих трёхмерных моделей представляет собой технические трудности, включая позиционирование сфероидов, вариабельность изображения и воспроизводимость анализа.
Здесь мы описываем специфическую для пациента модель миграции 3D-глиобластомы, выполненную при гипоксических условиях, что позволяет исследовать миграционную динамику по образцам, полученным из различных подтипов опухолей пациентов и стадий заболевания, включая наивные и рецидивирующие образцы опухоли. Эта платформа позволяет оценивать различные реакции на терапевтические агенты и поддерживает мультиплексный анализ после миграции посредством сегментации изображений, что позволяет количественно оценивать динамику миграции, рост сфероидов и экспрессию белков. Включение наночастиц оксида железа с магнитом позволяет равномерно централизовать сфероиды внутри каждой ямы за счёт мягкой магнитнойсилы 8. Сфероиды, культивируемые в стандартных многоколодных плитах, часто проявляют тенденцию к дрейфу к краям скважин, что считается обусловленным образованием жидких менисков и периферийным испарением, особенно в скважинах по периметруплиты 9,10,11. Эти явления вызывают артефакты изображения и фоновый шум, особенно при микроскопии пропущенного света, что может усложнять таймлапс-визуализацию динамики инвазии. В отличие от двухмерных монослойных культур, где для визуализации можно выбрать области с однородной плотностью клеток, анализы на инвазию одного сфероида требуют точного и последовательного позиционирования всей сфероидной и миграционной области внутри поля визуализации. Это добавляет дополнительную сложность, поскольку дрейф или нерегулярное расположение внутри скважины могут нарушить качество и воспроизводимость данных. Таким образом, последовательное централизирование сфероидов внутри многокамерных пластин минимизирует эти проблемы и улучшает не только качество изображения, но и экспериментальную согласованность, конвейеры обработки изображений и анализ после миграции. Кроме того, инициация сфероидных культур при равномерной плотности клеток в этих специализированных пластинах сфероидных культур способствует воспроизводимому формированию сфероидов, снижая вариабельность морфологии, скорости роста и структурнойцелостности 10,11. На практике типичные глиосферы, используемые в этих анализах, имеют диаметр от 150 до 300 мкм, образуясь воспроизводимо при стандартизированных плотностях клеток. Культуры поддерживаются при гипоксических условиях (1%–2%O2).
Платформа, описанная здесь, поддерживает форматы средней и высокой пропускной способности, такие как пластины с 96 ямецами, позволяющие делать несколько повторений на одного пациента, и масштабируема для скрининга лекарств или многофункциональныханализов 12 . Оптимизация позиционирования сфероидов и условий культурирования необходима для повышения прочности и клинической значимости 3D-доклинических моделей, используемых для изучения инвазивного потенциала глиомы и других динамических клеточных процессов.
Протокол
Клетки глиобластомы, полученные от пациентов, были предоставлены Erasmus MC, Роттердам, Нидерланды, и Больницей для больных детей (Торонто, Канада). Исходные образцы первичных пациентов для этих линий были получены в рамках плановых резекций пациентов по их информированному согласию (номера этического одобрения, MEC-2013-090, 0020010404).
1. Подготовка глиомасфер, полученных от магнитных пациентов (рисунок 1)
- Не менее чем за 30 минут до диссоциации глиомасферы необходимо обеспечить достаточное количество клеточного фермента и среды для глиомасферы для эксперимента (обычно 1 мл на колбу T75) и довести их до комнатной температуры.
- В стерильных условиях собирайте глиомасферы из колбы с помощью аккуратной аспирации с помощью серологической пипетки и помощника для пипетки объемом 10 мл и перемещайте их в коническую трубку объемом 15 мл. Центрифугировать при 300 г в течение 3 минут. Аккуратно сбросьте супернатант, не нарушая клеточную гранулу.
- Суспензировать гранулу в 1 мл ферментной среды для отслоения клеток комнатной температуры и инкубировать в течение 10–15 минут, аккуратно перемешивая каждые 2–3 минуты пипеткой с помощью пипетки P1000 для облегчения диссоциации в одну ячейку.
- Добавьте равный объём среды глиосферы для деактивации фермента. Центрифугуйте суспензию одной клетки при 300 x g в течение 3 минут при 37 °C, затем аккуратно суспензируйте гранулу клетки в 3–5 мл полной среды глиомасферы, в зависимости от размера гранулы клетки, отмечая точный объём, используемый для дальнейшего подсчёта клеток.
ПРИМЕЧАНИЕ: Время инкубации ферментной среды во многом будет зависеть от размера глиосфер в культуре, всегда осматривайте их визуально перед использованием и принимайте их соответственно. - Возьмите репрезентативный аликвот 10 мкл из одноклеточной суспензии и аккуратно смешайте с 10 мкл Trypan Blue в микроцентрифуге на 1,5 мл. Загрузите 10 мкл этой смеси в гемоцитометр или автоматический счётчик клеток для определения жизнеспособных клеток.
- Посеять по 500 одиночных клеток глиобластомы на каждую скважину в сфероидную микропластину с ультранизкой прикреплённостью и 96 лунками. Оптимальная плотность посева может варьироваться у разных образцов пациентов.
- Добавьте 1 мкг/мл йодида пропидия (PI) и 0,05 мкл наночастиц оксида железа на одну скважину (например, используйте 1,5 мкл магнитных наночастиц для 20 сфероидов, что соответствует примерно 10 000 отдельным клеткам). Убедитесь, что наночастицы оксида железа были гомогенизированы перед добавлением, проводя пипетер вверх и вниз с P100, установленным на 100 мкл.
ПРИМЕЧАНИЕ: Объём используемых наночастиц оксида железа можно оптимизировать в зависимости от используемой клеточной линии, однако в данном случае 1,5 мкл на 10 000 клеток было достаточно для централизованной локализации сфероидов. Такая система обеспечивает единообразный размер сфероидов среди образцов пациентов, облегчая прямое сравнение динамики инвазии и роста во время инвазионного анализа. - Инкубировать пластины в течение 48 часов в увлажнённом инкубаторе клеточной культуры при 37 °C, 5%CO2 и 21%O2 для формирования глиомасферы.
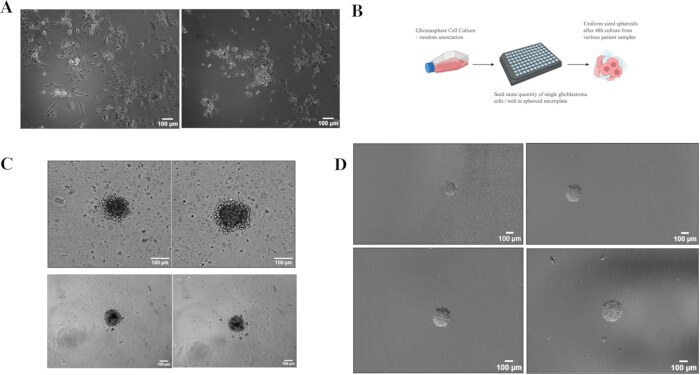
Рисунок 1: Однородно расположенные и равномерно расположенные глиосферы, культивируемые с наночастицами оксида железа. (A) Глиосферы, полученные из недавно диагностированных и рецидивирующих опухолей пациентов, демонстрируют двойные фенотипы и случайные клеточно-клеточные ассоциации. (B) Схематическое представление образования сфероидов однородного размера в течение 48 часов после посева. (C) Передаваемые световые изображения глиомасфер, культивируемых в течение 48 часов в сферической микропластине с круглым дном без (верхней панели) и с (нижней панелью) наночастиц оксида железа. Обратите внимание на тёмный, пятнистый вид глиосфер, содержащих наночастицы оксида железа. (D) Позиционирование глиомасферы, показывающее случайную локализацию глиосфер, культивируемых без наночастиц (сверху) по сравнению с постоянной центральной локализацией тех, что выращены наночастицами (снизу), что приводит к снижению фонового шума и улучшению качества изображения. Шкала = 100 мкм. Схема сделана с использованием Biorender.com. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
2. Подготовка многоклеточных пластин с внеклеточным матриксом (ECM) (за 1 час до миграционного анализа)
- Aliquot и храните ECM согласно инструкции производителя. Медленно размораживайте 1 мл аликвота ECM (разбавление 1:10) на льду ночью при 4 °C. Непосредственно перед покрытием подготовьте окончательный рабочий раствор в 1:100 (v/v), проведя дополнительное разбавление 1:10 в ледяной полной нейросферной среде. Держите разбавленный ECM на льду постоянно, чтобы предотвратить преждевременную полимеризацию. Всегда держите это разбавление на льду, так как ECM быстро полимеризуется при комнатной температуре.
- Впустите 50 мкл рабочего раствора 1:100 ECM в каждую скважину пластины с 96 лунками, прозрачной, плоским или μClear-дном. Инкубировать пластину при 37 °C не менее 1 часа, чтобы ECM затвердел и сформировал тонкую матрицу в каждой яме.
- После инкубации аккуратно удаляйте 30 мкл из каждой скважины, оставляя 20 мкл полимеризированного ЭБУ (итоговая концентрация 1:100 В/В) на дне каждой скважины. В это время ECM необходимо поддерживать максимально холодным, так как он быстро полимеризуется при комнатной температуре. В этом процессе пластину также можно предварительно охлаждать и хранить на льду.
3. Установка визуализационных пластин и живые клеточные изображения
- В день анализа (через 48 часов после засева глиомасферы) поместите микропластину с покрытием РЭБ на магнитный 96-ямецкий дисковый привод, как показано на рисунке 2B,C. Простерилизуйте магнитную пластину, распылив 70% этанола и вытирайте насухо, не замачивайте.
- Визуально осматривайте сфероиды на предмет качества и равномерности. С помощью пипетки перенесите 80 мкл среды с одной глиомасферой из каждой ямы и аккуратно нанесите пипетку на пластину поверхностью ЭБМ.
ПРИМЕЧАНИЕ: Для особенно крупных сфероидов старайтесь минимизировать сдвиговое напряжение во время переноса; это можно достичь, отрезав 1-2 мм от кончика наконечника пипетки P100 ножницами для расширения отверстия и снижения механических повреждений. Убедитесь, что ножницы были стерилизованы под ультрафиолетом перед использованием. Самое главное — минимизировать появление воздушных пузырьков, так как это сильно влияет на визуализацию. - Обрабатывайте сфероиды согласно экспериментальной конструкции. Приготовьте растворы обработки в нужных концентрациях в объёме 20 мкл, затем добавьте эти 20 мкл в каждую яму, содержащую сфероиды, чтобы получить итоговый объём 100 мкл.
ПРИМЕЧАНИЕ: Лечение глиомасфер таким образом снижает пипетирование и минимизирует риск удаления сфероидов из скважины. - Перенесите пластину, оставаясь на магнитном приводе, в систему визуализации для живой съемки. Будьте осторожны при снятии пластины из магнитного держателя и держите её максимально прямо, чтобы минимизировать движение сфероидов от центра колодца.
- Проводите живую съёмку с помощью программируемого инвертированного живого клеточного микроскопа с объективом Plan-Apochromat 5x/0.35 NA, трубечной линзой 0.5x, камерой Axiocam 506 (binning =2) и программным обеспечением Zen 3.1 (Blue Edition). Калибровка пикселя на микрон встроена в систему визуализации и автоматически выполняется программным обеспечением, поэтому ручная калибровка не требуется. В этом случае выполняйте съёмку с увеличением 2,5x (5x объектив с объективом 0,5x), при этом камера будет переведена на 2 x 2, что даёт калибровку 1 пиксель = 3,645 мкм.
- Отрегулируйте систему управления окружающей средой так, чтобы было 1% кислорода и 5%CO2 при очень медленном потоке воздуха из газового миксера. Это помогает предотвратить нежелательное испарение, когда входящий воздух проходит через увлажняющую бутылку.
- Чтобы предотвратить смещение глиомасферы в начальном периоде визуализации, уменьшите ускорение и скорость ступени микроскопа до 10%, минимизируя движение по поверхности РЭБ до сцепления сфероида.
- Аккуратно загрузите многозарядную пластину без магнитного привода в микроскоп. Если применимо, убедитесь, что материал пластины выбран в программном обеспечении, чтобы оптика была отрегулирована под соответствие.
- Используйте подходящее увеличение, охватывающее всё инвазивное поле зрения. Например, на Cell Discoverer 7 объектив 5x и трубка 0,5x были выбраны для увеличения в 2,5 раза.
- Определите каждую глиосферу, сфокусируйтесь и назначьте позицию, включающую координаты x-y-z. Аппаратная автофокусировка, если она доступна, должна использоваться для обеспечения единообразного изображения одной и той же фокальной плоскости на протяжении всего эксперимента.
- Проверьте как фазовый градиентный контраст (проходящий свет), так и флуоресцентные каналы, а также скорректируйте время экспозиции и интенсивность света, чтобы избежать переэкспозиции. Возбуждайте йодид пропидия (окрашивание мёртвых клеток) с помощью светодиода на 590 нм. Собирайте излучение с помощью четырёхполосного фильтра, захватывающего диапазон длины волны 618–756 нм. Это может варьироваться на других микроскопах в зависимости от фильтров и источника света.
- Настройте делать снимки каждый час в течение нужного количества дней.
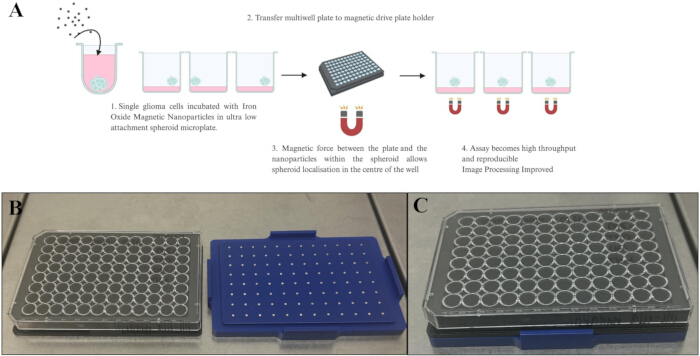
Рисунок 2: Описание установки визуализационной пластины. (A) Схематическая диаграмма, представляющая описанный протокол. (B) Изображение многояничной пластины рядом с магнитным приводом и простое установление многояничной пластины поверх магнитного привода, при этом каждый отдельный магнит локализован в центре каждой ямы, что облегчает локализацию глиосферы. Схема сделана с использованием Biorender.com. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
4. Фиксация сфероидов после инвазионного анализа для мультиплексированного анализа белков (Рисунок 3)
- После завершения инвазионного анализа промыйте каждую скважину 100 мкл PBS. Это увеличит объём до 200 мкл/скважины. Повторите этот шаг, затем удалив 100 мкл PBS и заменив его дополнительными 100 мкл PBS.
- Аккуратно удалите 200 мкл среды, затем добавьте 100 мкл 4% параформальдегида (PFA) в каждую колодцу и инкубуйте 10 минут при комнатной температуре под вытяжкой для выхлопа.
ВНИМАНИЕ: Параформальдегид — это токсичное химическое вещество, и следует соблюдать осторожность для минимизации риска или воздействия. - После фиксации удалите PFA из каждой скважины и промывайте 3 раза PBS, удаляя PFA и добавляя по 100 мл PBS каждый раз.
- Добавьте иммунное окрашивание согласно инструкции производителя. В качестве альтернативы, для длительного хранения добавьте в PBS азид натрия (0,02%) для поддержания стерильности и герметизируйте пластину прозрачной пленкой. Храните при 4 °C до необходимости.
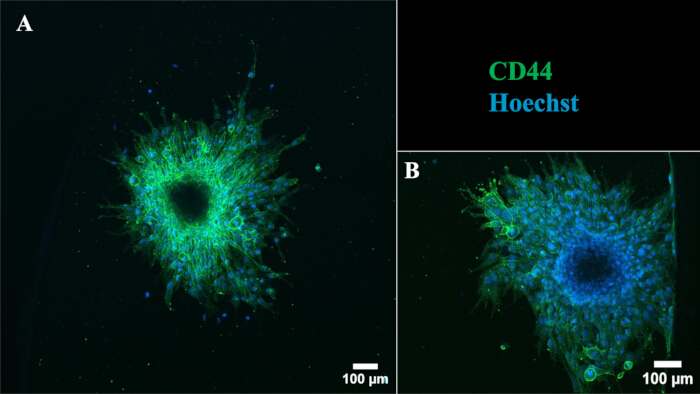
Рисунок 3: Репрезентативный анализ белков после миграционного анализа глиосфер, расположенных в центре и на краю скважины. Лазерная сканирующая конфокальная микроскопия рецидивных глиосфер, окрашенных с использованием антитела, направленного на маркер стволовых клеток глиобластомы CD44 после миграции. CD44-FITC (зелёный) и Hoechst (синие ядра). Шкала = 100 мкм. Наконечники стрелок указывают край колодца. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
5. Конвейер обработки изображений динамики миграции, полученной от пациентов
ПРИМЕЧАНИЕ: Исходя из опыта работы с нашим набором данных, мы рекомендуем использовать многоядерный процессор с высокой базовой частотой ядра и значительным объёмом памяти, так как обработка WEKA соответствует высокому количеству ядер и будет использовать доступную память в зависимости от размера набора данных. Подержанные и рекомендуемые характеристики приведены ниже. Обратите внимание, что обработка GPU не используется в этом рабочем процессе.
CPU: >= 6 ядер | >= 2 ГГц (рекомендуется); 32 ядра | 2,1 ГГц (б/у)
Память: > 32 ГБ (рекомендую); 192 ГБ (б/у)
- Open Fiji13 [в настоящее время прилагаемый ImageJ-win64.exe исполняемый файл используется для анализа]. Открыть изображение навигацией в – Файл > открыть Выбрать многоканальное, многосценное таймлапс-файл изображения (.czi) открывается на интерфейсе Фиджи (если используется скрипт, это Дополнительный файл 1).
- Выберите нужные изображения в графическом интерфейсе. Лучше всего использовать наиболее инвазивные глиосферы эксперимента, чтобы изначально обучать классификатор (то есть управляющий колодец — DMSO), так как это изображение даст детали каждого сегмента изображения, то есть внешний вид вторгающихся/мигрирующих клеток против сфероидных и фонов.
- Затем перейдите в раздел Image > Color > Split Channels — это разделяет изображение на два канала — один в данном случае с окрашиванием на йодид пропидия, другой с пропускаемым светом.
- Выберите канал для сегментации — в данном случае передаваемый световой канал, который отражает динамику миграции. Перейти к Плагинам > сегментации > Обучаемая сегментация WEKA14.
- Переименуйте два стандартных класса на: Класс 1: Глиосфера; Класс 2: Вторжение/Миграция. Добавьте третий класс под названием Background (необязательно, но рекомендуется), перейдя в Settings > New class > Background.
- С помощью инструмента Freeline аннотируете обучающие области внутри каждого стека изображений и класса, рисуя на репрезентативных областях, то есть нарисуйте завихрь в сфероиде и нажмите Add to Spheroid — повторите это для области вторжения и фона, пока все регионы не будут представлены в каждом классе. Обучайте классификатор, нажав Классификатор поездов. Дополнительные изображения могут быть аннотированы для дальнейшего обучения классификатора для повышения точности при необходимости.
- Когда это будет выполнено, сохраняйте обучаемую модель классификатора с помощью имени файла, например CellLine_Treatment_Classifier.model. Закройте окно сегментации после завершения.
- Для новых изображений с использованием этого сохранённого классификатора перейдите в раздел Плагины > Сегментация > Обучаемая сегментация WEKA >Загрузить классификатор> Открыть сохранённый классификатор CellLine_Treatment_Classifier (это сохраняет файл .model - . Для Дополнительного файла 2 обязательно подготовить это до запуска сценария. При запуске скрипта должен быть выбран соответствующий примерный файл).
- Навигация для получения вероятности на интерфейсе сегментации Trainable WEKA — это создаёт карты вероятностей для каждого выбранного класса, то есть Глиосфера, Вторжение/Миграция, Фон, указывающие вероятность того, что каждое значение пикселя, присвоенное изображению, принадлежит конкретному классу или области изображения. Это сгенерирует файл из трёх отдельных изображений вероятностных карт (Глиосфера, Вторжение, Фон) с 32-битным динамическим диапазоном для каждого изображения.
- Выберите карту вероятностей, соответствующую Invasion/Migration. Перейти к Image > Hyperstacks > уменьшить размерность. Выберите «Сохранить источник».
- Отменить Каналы , но оставить Кадры — это со временем сокращает карту до одного канала — в данном случае вероятностная карта Вторжения. Выберите отображение вероятностей, соответствующее глиосфере.
- Повторите шаги 5.10-5.11. Теперь для одной сцены миграции и сфероидной области будут две вероятностные карты, соответствующие исходному изображению временного прохождения света. Сохраняйте оба с помощью следующей конвенции имен файлов: ImageName_Scene_Gliomasphere_ProbabilityMap и ImageName_Scene_Invasion_Probability Map в папке, соответствующей выбранному эксперименту, то есть CellLine_Treatment.
- Установите порог для создания бинарной маски: перейдите к изображению > отрегулировать > порог. Выберите пороговый метод (например, Yen, Otsu). Оставляйте выбранный метод одинаковым для всех обработанных изображений.
- Переключитесь на анализ > набор измерений. Выберите нужные измерения; Площадь тика, интегрированную плотность и среднюю, затем нажмите ОК. Переходите к анализу > анализу частиц. Для Вторжения/Миграции размер набора: 0 – бесконечность; Круглость: 0,00 – 1,00. Для глиосфер устанавливайте размер: обычно 1500 – бесконечность (корректируйте по мере необходимости размер сфероидов в клеточной линии/обработке — управляющие сферы естественным образом увеличиваются); Круглость: 0,05 – 1,00. Выберите пиксельные единицы для всех.
- Перейти к анализу>анализу пикселей> Показать: Выберите маски. После создания масок проверьте сегментированную область интереса по всему стеку таймлапса для точного отслеживания. Применяйте бинарные операции через процесс > бинарный > ... (например, выбор Fill Holes при очистке маски сфероида), затем переход к Analyze > Analyze Particles > Show > Choose Nothing и Summarise. Это обеспечит сводное окно выбранных измерений.
- Сохраните результаты, нажав File > Save As > Results. Сохраните как .csv файл. Откройте в таблицах или другом программном обеспечении для анализа.
- Повторить пороговое измерение и анализ частиц для всех сегментированных классов (например, глиосферы, инвазия), чтобы получить соответствующие измерения со временем. Выходная .csv обеспечивает площадь (в пикселях или микронах в зависимости от калибровки) со временем.
- Выберите флуоресцентный канал, представляющий окрашивание PI (например, канал 2). Применяйте пороговое измерение и анализ частиц, как указано выше, для выявления мёртвых клеток. Используйте плагин Calculator Plus для умножения масок PI-положительных клеток с маской глиомасферы и отдельно с масками инвазии для количественной оценки мертвых клеток для конкретных областей.
- Экспортировать маски, карты вероятностей и таблицы сводок в виде файлов TIFF и CSV с чёткими, описательными именами файлов для документации и дальнейшего анализа. При использовании скрипта, предоставленного в дополнении, можно найти следующую систему именования: например, FileName_Scene#_(PI-)Invasion_Summary.csv (данные для объектов во времени), FileName_Scene#_(PI-)Invasion.zip (области, определённые с помощью частиц анализа).
ПРИМЕЧАНИЕ: Дополнительный файл 1 генерирует отдельные tif-файлы с таймлапс-изображениями для каждой сцены. Дополнительный файл 2 будет запускать классификацию пикселей WEKA на основе заранее определённого файла модели классификации для всех сцен и всех изображений в каждом таймлапсе, предоставляя вероятностные карты для глиомасферы и вторгающихся ячеек. Дополнительный файл 3 сегментирует все изображения на глиосферы и вторгающиеся клетки, а также количественно определит покрытые области, а также распределение участков, покрытых мёртвыми (PI-положительными) клетками. Дополнительный файл 4 для запуска предполагает определённый пороговый метод и также конкретный регион для анализа, а Дополнительный файл 3 позволяет пользователю установить порог и корректировать регион для каждой сцены. Порог не следует менять на разные методы для каждой сцены, но можно установить разные методы для каждого объекта.
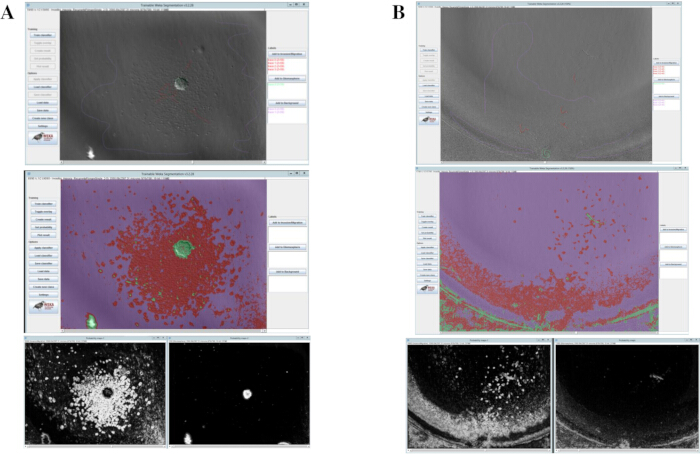
Рисунок 4: Проблема воспроизводимой обработки изображений из-за плохой сегментации глиомасферы. Конвейер обработки изображений с обучаемым плагином сегментации WEKA на Фиджи, показывающим (A) централизованно локализованную глиомасферу с большей сегментацией площади миграции на фоне по сравнению с (B) глиосферой, локализованной на краю, приводит к плохой сегментации изображения и непригодной к репликации. Обеспечивая согласованность локализации глиомасфер, обработка изображений между биологическими репликатами выглядит, как показано в (A), значительно повышая воспроизводимость и автоматизацию анализов. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Результаты
Используя описанный 3D-миграционный анализ при гипоксических условиях, глиомасферы рецидивирующих опухолей пациентов лечились либо транспортными препаратами, либо Препаратом X, а динамика инвазии отслеживалась каждые часа в течение 72 часов. Рисунок 5 описывает сегментационный анализ WEKA динамики инвазии, показывая, что препарат X значительно снижает инвазивный потенциал рецидивирующих глиомсфер по сравнению с контролями транспортных средств при клинически значимых гипоксических условиях.
Для дальнейшей оценки влияния препарата X на характеристики стволовых клеток после миграции глиомасферы были фиксированы и иммунокрашены для экспрессии и локализации маркера стволовых клеток глиобластомы CD44, как показано на рисунке 6. Этот мультиплексированный анализ облегчает визуализацию динамики миграции и экспрессии маркеров стволовых клеток, давая представление о том, как препарат X модулирует как инвазивный потенциал, так и стволоподобные свойства моделей рецидивирующей глиобластомы при клинически значимых гипоксических условиях.
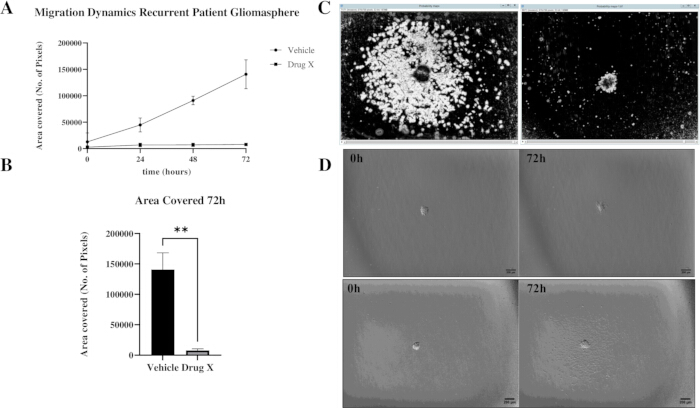
Рисунок 5: Оптимизированный миграционный анализ подчёркивает эффективность нового препарата X в предотвращении повторной миграции глиомасферы. Пациенты получали рецидивные глиосферы, обработанные транспортным средством или Препаратом X в течение 72 часов в условиях гипоксии. Динамика вторжения фиксировалась каждые часа в течение 72 часа. (A) Репрезентативные световые изображения динамики вторжения на 0 и 72 часа в верхней панели — обработанная на автомобиле, а нижняя панель — Препарат X обработан. (B) Репрезентативные вероятностные карты зоны вторжения, используемые в сегментационном анализе. (C) Рецидивирующие глиомасферы, обработанные препаратом X, демонстрировали значительно меньший инвазивный потенциал по сравнению с транспортными средствами. Количественная оценка инвазивной зоны через 72 часа выявила значительное снижение инвазии в глиосферах, обработанных препаратом X, что представлено как общая площадь, покрытая на момент фиксации. Данные отражают область вторжения во времени от n=3 независимых реплик. Статистическая значимость оценивалась с помощью непарного t-теста; p < 0,005 обозначается как **. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
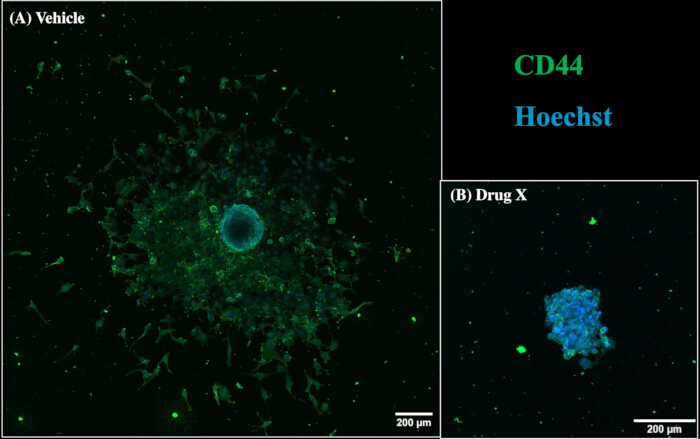
Рисунок 6: Миграция и экспрессия маркеров стволовых клеток после лечения. Глиомасферы, описанные на рисунке 5 , были фиксированы после миграции и иммунокрашены с помощью антитела, направленного на маркер стволовых клеток глиобластомы CD44, после лечения либо транспортным средством, либо препаратом X. Этот рисунок демонстрирует тип мультиплексированного постмиграционного анализа, который может быть проведен с использованием стандартных методов иммуноокрашивки. На изображениях показаны CD44-FITC (зелёный) и Hoechst (ядра, синие). Шкала = 200 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
Дополнительный файл 1: Пересохранение многосценных CZI-файлов из микроскопа как отдельных сцен в виде TIF-файлов.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 2: Генерация вероятностных карт с использованием модели Weka.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 3: Сегментационный анализ без порога. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 4: Сегментационный анализ с порогом. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Моделирование инвазивной динамики высокоагрессивных опухолей, таких как глиобластома, имеет решающее значение для лучшего понимания заболеваний и выявления более эффективных стратегий лечения. Сложная, адаптивная и пластическая природа миграции клеток глиобластомы требует доклинических моделей, способных точно отражать динамическое поведение отдельных клеток глиомы при их миграции из центральной опухолевой массы. Важно, что моделирование этих процессов на образцах, полученных пациентами из разных стадий заболевания, позволяет исследователям лучше решать проблему гетерогенности опухолей и выявлять любые специфические изменения динамики инвазии, специфичные для конкретных стадий.
Учитывая эту сложность, разумно предположить, что доклинические модели должны обладать равным уровнем сложности. Здесь мы описываем усовершенствованный метод получения одинакового размера пациентских глиосфер, сокультивируемых с наночастицами оксида железа. Этот подход позволяет контролируемо локализовать глиосферы в центре каждой скважины, что позволяет автоматизировать живую клеточную визуализацию динамики инвазии. Несколько исследований выявили значительную вариабельность размера, формы и кинетики роста сфероидов при использовании традиционных методов 3D-культуры, Сайд и коллеги показали, что сфероиды могут иметь широкое распределение диаметров между теми, что происходят из несортированных и отсортированных раковых стволовых клеток, что отражает присущую вариабельность формированиясфероидов 15,16. Эта гетерогенность также была выявлена как основной источник проблем воспроизводимости в сфероидных скрининговых анализах, что дополнительно подчёркивает важность формирования гомогенных популяцийсфероидов 12. Эти результаты подчёркивают необходимость стандартизации условий формирования сфероидов перед проведением функциональных анализов — задачи, которые этот метод непосредственно решает. Стандартизируя как размер, так и положение сфероидов, этот метод значительно повышает воспроизводимость и минимизирует вариабельность, обычно связанную с 3D-системами культивирования клеток, где неравномерное формирование сфероидов может влиять на дальнейший анализ.
В ходе первоначальной разработки этого анализа мы наблюдали значительную вариабельность локализации сфероидов между репликатами, что потребовало использования большого количества колодц на эксперимент, а также множества биологических репликий для получения статистически значимых результатов. Это не только значительно увеличило нагрузку, но и создало значительное количество непригодных для использования данных, снизило эффективность и воспроизводимость анализов. Полученная вариабельность, таким образом, отражала потерю количественно измеримых данных, а не различия в поведении вторжения. Централизуя глиомасферы внутри каждой ямы, магнитная локализация обеспечивает последовательное сегментирование и анализ изображений из всех репликат, даже если между образцами наблюдаются биологические различия в динамике вторжения.
Включение наночастиц оксида железа создаёт мягкую магнитную силу, которая последовательно централизует глиосферы во всех скважинах, значительно улучшая производительность конвейера обработки изображений, обработки данных и анализа после миграции, не влияя на биологию или жизнеспособностьглиосферы 8. Ключевым преимуществом этой системы является её совместимость с постмиграционным мультиплексированным анализом; например , рисунок 6 представляет собой анализ визуализации маркера стволовых клеток глиобластомы CD44, что позволяет оценивать экспрессию стволовых, подобных клеткам после миграции и лечения между образцами пациентов. Эта возможность подчёркивает потенциал платформ для интегративных исследований, связывающих инвазивные фенотипы с молекулярными особенностями, что является важным фактором с учётом фенотипической пластичности стволоподобных клеток глиобластомы в ответ на микроэкологические сигналы и их способности избегать лечения, способствующего неизбежному рецидиву опухоли.
Хотя этот анализ значительно улучшает воспроизводимость визуализации динамики вторжения отдельных сфероидов, существуют критические ограничения, которые необходимо учитывать для будущей оптимизации анализов. Матригель — широко используемая модель базальной мембраны, однако это сложный, неопределённый заместитель внеклеточного матрикса (ЭКМ), полученный из мышиных сарком, который не полностью воспринимает микроокружение человеческогомозга 17. Будущая оптимизация анализа может включать специфические модели ЭБМ, специфичные для мозга, чтобы лучше имитировать микроокружение опухолей мозга, что, по нашему мнению, является необходимым этапом оптимизации моделей инвазии в мозг invitro 18,19. Хотя Matrigel остаётся широко распространённой моделью ЭКМ, она представляет собой внеклеточный матрикс, не специфический для мозга, полученный из мышиной саркомы. Таким образом, она не полностью воспроизводит биохимические и механические свойства микросреды человеческого мозга. Важно, что стратегия магнитной локализации, описанная здесь, не зависит от матрицы и может быть легко адаптирована к специфическим для мозга систем ЭКМ в будущих исследованиях для дальнейшего повышения физиологической значимости.
Другими аспектами анализа являются потенциальные требования к обучению новой модели сегментации WEKA для каждой клеточной линии из-за гетерогенности образца и вариабельности морфологии инвазии. Кроме того, плотность посева и концентрация наночастиц должны быть оптимизированы для каждой клеточной линии и типа сфероида, чтобы сохранить равномерность и жизнеспособность перед проведением высокопроизводительных миграционных анализов. Несмотря на эти ограничения, эта платформа предоставляет масштабируемую и адаптируемую структуру для изучения специфического пациента инвазии глиобластомы и ответа на лечение. Его совместимость с живыми клетками визуализации, автоматизированными сегментационными конвейерами и мультиплексированным послеанализным анализом открывает возможности для высококачественного скрининга новых терапевтических средств, комбинированных терапий и механистических исследований инвазии из высокогетерогенных образцов опухолей пациентов. Кроме того, расширение этого анализа на системы кокультуры, такие как резидентные клетки мозга, такие как астроциты, нейроны и микроглии, или модели взаимодействия с гематоэнцефалическим барьером, даёт дополнительное понимание взаимодействий опухолевых стром, способствующих прогрессированию и рецидиву глиобластомы.
В ходе разработки анализов было определено несколько технических этапов как критические факторы, определяющие воспроизводимость и общую эффективность анализа. Стандартизация плотности посевов клеточных линий перед анализом обеспечивает единообразие исходного размера глиомасферы, что позволяет сопоставлять динамику роста сфероидов между клетовыми линиями, методами обработки и условиями. Без этого этапа стандартизации начальные размеры сфероидов добавят значительный уровень вариабельности, что может отражать переменные реакции глиосфер на экспериментальные условия. Точная центральная локализация глиомасфер внутри каждой скважины является ключевым требованием для точного автоматизированного получения изображений и сегментации на следующей линии. Смещённые сфероиды приводили к значительному шуму изображения и препятствуют использованию сегментации WEKA для сегментации изображений на чётко определённые области. Обеспечивая локализацию всех глиомасфер в центре, один и тот же классификатор WEKA можно использовать несколько раз, поскольку шум значительно снижается, а качество изображения значительно улучшается. Это показано на рисунке 1. Включение магнитных наночастиц оксида железа является методом обеспечения центрального расположения глиосфер, минимизации вариативности позиции и существенного улучшения обработки изображений и сопоставимости между репликами. Наконец, обучение сегментационной модели в конвейере WEKA представляет собой дополнительный критический этап стандартизации. Из-за межпациентной гетерогенности и различий в морфологии инвазии единая модель сегментации может не обобщаться на всех образцах. Перенастройка или уточнение параметров классификации для каждой клеточной линии обеспечивает точное отображение вероятностей инвазивных зон и предотвращает количественные ошибки.
В целом, этот анализ предоставляет воспроизводимую и масштабируемую платформу для изучения динамического инвазивного поведения образцов глиомы, полученных пациентами, в реальном времени. Его совместимость с мультиплексированной визуализацией и молекулярным анализом делает его мощным и универсальным инструментом как для фундаментальных, так и для трансляционных исследований глиомы, что значительно повысит трансляционную значимость доклинических моделей глиобластомы.
Раскрытие информации
Нечего раскрывать
Благодарности
Эта работа была поддержана Research Ireland (Science Foundation Ireland) по коду гранта 20391A01 и Health Research Board под кодом гранта ERA-TRANSCAN-2022-002. Клетки были любезно предоставлены нашими сотрудниками из лаборатории Диркса, SickKids, Торонто и Медицинского центра Эразмус (EMC), Роттердам.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| КОМПЛЕКТ 96-СКВАЖИННОЙ БИОПЕЧАТИ, ЧИСТЫЙ | Грейнер | 655840 | |
| Аккутаза | Инвитроген | 00-4555-56 | н/д |
| Добавка B-27 (50 раз), сыворотка и bbsp; бесплатно без витамина А | Gibco | 12587010 | 10% |
| Базовый фактор роста фибробластов, Human (bFGF) | PeproTech | 100-18B | 20 ng/ml |
| Celldiscoverer 7 | Zeiss | - | |
| Сфероидные микропластины Корнинга | Корнинг | CLS4515 | |
| Матрица матригеля Корнинга | Корнинг | 354234 | Финальное разбавление 1:100 |
| Countess Automated Cell Counter | Инвитроген | - | |
| DMEM-F12 (500 мл) | Термофишер | 11320-074 | н/д |
| Эпидермальный фактор роста человека (EGF) | PeproTech | AF-100-15 | 20 ng/ml |
| FITC Mouse Anti-Human CD44 | BD Pharmingen | 555478 | 1:100 |
| Greiner CELLSTAR 96 Скважинные клеточные микропластины для культивирования полистирола с F-дном/дымоходом и микро. Прозрачный, чёрный, TC, стерильный, с крышкой | Грейнер | 655090 | |
| Гепарин | Термофишер | A16198 | 5µ g/ml |
| Hoechst 33258 | Сигма Олдрич (Merck) | 861405 | 1&микро; g/ml |
| NanoShuttle-PL | Грейнер | 657841 | 1.5 & микро; l/10 000 ячеек |
| Пенициллин — стрептомицин | Merck | P4333 | 1% |
Ссылки
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
Перепечатки и разрешения
