Ortak arıtma nükleazlar ve proteazlar tarafından geleneksel yöntemlerle saflaştırılmış ökaryotik ribozomlar hazırlıkları kontaminasyonu mansap biyokimyasal ve yapısal analizleri olumsuz etkiler. Maya ribozomlar bir model sistem olarak kullanarak bu sorunu çözmek için basit ve hızlı bir kromatografik saflaştırma yöntemi kullanılır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Yüksek Aktif Maya Ribozomlar Kromatografik Arıtma
Bu makalede
Özet
Özet
Ökaryotik ribozomlar, böylece araştırmacılar için önemli bir meydan okuma poz eubacterial ve archael muadillerine göre çok daha dayanıksız. Özellikle sorunlu hücrelerin parçalanması, proteaz ve ribozomlar düşürebilir nükleazlar çok sayıda serbest olduğu bir gerçektir. Bu nedenle, mümkün olduğunca çabuk bu enzimler ribozom ayırmak için önemlidir. Ne yazık ki, geleneksel diferansiyel Ultrasantrifügasyon yöntemleri, yapısal bütünlüğünü ve işlevselliğini etkileyen bu enzimler zaman kabul edilemeyecek kadar uzun süre maruz ribozomlar bırakır. Bu sorunu çözmek için, bir sistein ücret Sulfolink reçine kullanarak kromatografik yöntem kullanmaktadır. Bu basit ve hızlı uygulama, sağlam, yüksek biyokimyasal aktif maya ribozomların yüksek verim üreten ortak arıtma proteolitik ve nucleolytic faaliyetleri, önemli ölçüde azaltır. Bu yöntem aynı zamanda memeli ribozomlar için geçerli olması gerektiğini düşündürmektedir. Sadeliğiyöntemi ve ökaryotik ribozomlar çalışma için önemli bir teknik ilerleme, kromatografik saflaştırılmış ribozom gelişmiş saflık ve aktivite gösterir.
Protokol
1. Bir sistein hazırlanması Sulfolink reçine ücret
- Oda sıcaklığında Sulfolink reçine (Pierce) hazırlayın.
- Her bir şişenin içine dağıtılan 5 ml, 10 ml% 50 olarak iki adet 10 ml plastik şişeleri, üretici tarafından sağlanan Sulfolink kaplin jel bulamaç toplam yerleştirin.
- Kısaca 850 xg'de şişeleri santrifüj ve dikkatle süpernatantlar kaldırmak.
- 5 ml boncuklar resuspending xg 850 kısaca santrifüj ve pipet ile süpernatantı çıkarmadan kaplin tamponu (50 mM Tris, pH 8.5, 5 mM EDTA) jel üç kez yıkayın.
- Her tüp kaplin tamponu 50 mM L-sistein çözüm beş ml ekleyin ve 1 saat 25 bulamaç karıştırın ° C
- Yukarıda adım 1.4 'de açıklandığı gibi yıkama L-sistein kalan çıkarın.
- Jel 10 ml bağlayıcı tampon yeniden süspanse [20 mM Hepes, pH 7.6, 5 mM Mg (oac) 2, 60 mM NH 4 Cl, 2 mM DTT] ve reçine bağlayıcı tampon 10 ml yıkama ile dengelenmesi3 kez adım 1.4 'de açıklandığı gibi. Durusu reçine içine 10 ml santrifüj sütun, kap ve 4 saklanan ° C RNA bağlayıcı reçine kapasitesi ~ 20 ml başına 260 birimleri.
2. Sistein kullanarak ribozomların Kromatografik arıtma Sulfolink reçine ücret
Not: Eğer proteaz aktivitesi bir sorun olduğunu kanıtlamaktadır bir yük ile çalışan, proteaz inhibisyonu kokteyller sonraki tüm tamponlar kullanılabilir.
- Buz üzerinde tüm bileşenlerini korumak ve RNaz-serbest su ve steril filtrasyon kullanan tüm çözümler hazırlıyoruz.
- Büyümeye uygun ortam orta-log faz (1.2 OD 595 = 0.6) bir gecede maya hücreleri. Pelet hücreler santrifüj yoluyla, 4, 5 dakika boyunca 3700 xg bağlayıcı tampon ve santrifüj 1 gram hücreleri yıkayın ° C
- Bağlayıcı tampon 1 ml yaklaşık toplam hacmi 2 ml ve 0,5 mm cam boncuklar 4 soğutulmuş bir eşit miktarda kullanarak bozabilir yeniden süspanse hücreler ° C uBiospec Mini-boncuk Bilo (Bartlesville, OK) şarkı. Örnekleri gerektiği gibi birden fazla tüp içine bölünebilir.
- Beckman Coulter Optima Max E ultrasantrifüjdeki (Fullerton, CA) 30 dakika 30.000 xg'de santrifüj kesintisiz hücrelerin, organellerin ve hücresel enkaz çıkarın.
- Kullanımdan hemen önce, pelet, 1.000 az bir dakika boyunca reçine depolama çözümü kaldırmak için xg. İki ml reçine, hücre, her bir gram için kullanılır.
- Doğrudan tahsil Sulfolink bulamaç haline lipid fraksiyonu ya en üst ya da hücre artıkları tüplerin alt kısmında kirlenme, yer ve en aza indirmek için özen, 30.000 xg dönüş (S30) hücre lizat süpernatantlar çıkarın. Lipid tabakasının ya kaldırılması ya da ucu süpernatant geçti sonra pipetlemeyin dışarı iterek önlenebilir.
- S30/Sulfolink karışımı 15 dakika boyunca karıştırma olmadan buz üzerinde inkübe edin.
- Sütun 15 ml konik tüpler içine yerleştirin ve 1000 xg'de santrifüjr bir dakika.
- Sütunlar, el ile karıştırın ve buz üzerinde bir 15 dakika daha inkübe flowthrough fraksiyonları içine geri yerleştirin.
- Sütunlar, 15 ml konik tüpler içine yerleştirin ve bir dakika için 1000 xg'de santrifüj. Flowthrough atın.
- Kap sütun ve bağlayıcı tampon 5 ml ekleyin. Elle sütunları yeniden süspanse, kapakları kaldırmak ve bir dakika boyunca 1000 xg sütunları santrifüj santrifüj kadar karıştırın. Bu yıkama protokolü iki kez daha tekrarlayın.
- 1.5 ml (20 mM Hepes-KOH, pH 7.6, 10 mM Mg (oac) 2, 500 mM KCl, 2mm DTT, 0.5 mg / ml heparin) elüsyon tampon her sütun ekleyin. Elle çamurlar karıştırın ve 2 dakika boyunca buz üzerinde inkübe
- Yeni 15 ml konik boru ve santrifüj içine koyun 1 dakika boyunca 1000 xg sütunlar. Eluat toplayın. Bir kez daha final kombine örnek hacmi ~ 3 ml olduğunu elüsyon adımı yineleyin. İkinci el reçine, heparin olmadan elüsyon tamponu ile yıkanır ve bağlayıcı Buffe ile dengelemer ve yeniden daha sonra kullanmak için bağlayıcı tampon 4 10 ml ° C saklanır.
3. Puromycin tedavi
Not: tRNA türlerinin kirlenmesine neden kaldırmak için alternatif bir yöntem ribozom ikinci tur teşvik etmek için glikoz tükenmiş medya zengin bir glikoz geçmek için. Ancak, bu ribozom fonksiyonu ve konsantrasyonu etkileyebilir maya hücrelerinin metabolik durumunu değiştirmek.
Endojen peptidil-tRNA, puromycin yapılan bir tedavi ribozomlar şerit için.
- Oda sıcaklığında 1M KOH damla damla ekleyerek pH 7.5 100 mM puromycin çözüm nötralize.
- ~ 1mm eluat nihai konsantrasyonu nötralize puromycin çözüm ekleyin.
- 1 mM nihai konsantrasyonu 100 mM GTP ekleyin.
- 30 dakika boyunca inkübe 30 ° C
4. Gliserol yastıklar üzerinden sedimantasyon ribozomlar Saflaştırılması
- Bir ml4 ml'lik hacim, polikarbonat ultrasantrifüjdeki tüp içine minder tamponu (20 mM Hepes, pH 7.6, 10 mM Mg (oac) 2, 500 mM KCl, 2 mM DTT,% 25 gliserol).
- Katmanı puromycin yavaşça 4 geceleme xg yastık üstüne elüsyon kesirler ve santrifüj örnekleri 100.000 ° C tedavi
- Santrifüj rotor tüpleri çıkarın ve süpernatantlar aspire.
- Pelet saflaştırılmış ribozom içeren yastık tampon 1 ml iki kez yıkayın.
- Cam bir çubuk kullanarak nazik bozulma yastık tampon 100 ul ribozomlar tekrar
- Kesinti sonra, parafilm tüpler kapak ve bir saat boyunca soğuk bir odaya girdap içinde ılımlı bir hızda sallamak.
- Mikrosantrifüj tüp, maksimum hızda 5 dakika santrifüj 4 ° C, içeriği aktarın ve taze tüplerine süpernatantlar kaldırmak.
- 4,1-4,7 o 100 ul depolama tampon (50 mM HEPES-KOH pH 7.6, 50 mM NH 4 Cl, 5 mM Mg hariç 2 yastık tampon ml ve adımları tekrarlayın.(Oac) 2, 1 mM DTT,% 25 gliserol) yastık tampon yerine adımları 4.4 ve 4.5 kullanılır.
- Sayısal olarak saflaştırılmış ribozomlar spektrofotometrik (1 A 260 = 20 maya ribozomların pmoles) ve -80 mağaza ° C 1 gram maya tipik sonuçları ribozom 300-400 pmoles.
5. Temsilcisi sonuçları:
RNA türlerinin her protokol üç önemli adımlar çıkarılan bir örnek Şekil 2'de gösterilmiştir. RRNA olmasına rağmen en önemli türler toplam hücre lizatları bulunan (T), bu diğer RNA türlerinin çok sayıda da içerir. Sulfolink sütun (SL) arınmış ribozomlar da, bu türler için de sütun yatağın yüksek afinite nedeniyle tRNAs büyük miktarda içerir. Peptidil-tRNAs peptidler hidroliz puromycin sonuçları ile bu fraksiyonun Tedavi ve ribozomlar bu türlerin ayrılma teşvik etmektedir. Puromycin tedavi örnekleri (Pm) eksikliği co-purifyinböylece g tRNA türleri ve tamamen saf ribozomlar temsil eder. Daha önce 8 bildirildiği gibi, bu ribozom detaylı fonksiyonel ve yapısal analizler için ideal substratlar, son derece sağlam ve biyokimyasal olarak aktif.
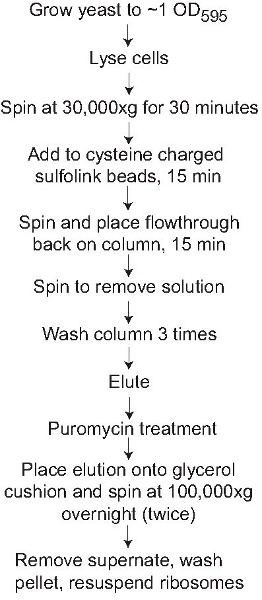
Şekil 1. Yöntemi Akış Şeması sulfolink reçine bağlı sistein kullanarak ribozomların Kromatografik arıtma tasvir edilmiştir.
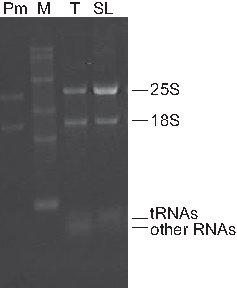
Şekil 2. Ribozom hazırlıkları Temsilcisi analiz Total RNA türleri, daha sonra puromycin ile tedavi edilen toplam hücre lizatları (T), Sulfolink saflaştırılmış ribozomlar (SL) ve Sulfolink saflaştırılmış ribozomlar çıkarılan ve gliserol yastık (Pm) aracılığıyla tortulaşmış edildi . Lane M RNA boyutu belirteçler temsil eder. 25S ve 18S rRNA, tRNAs ve diğer RNA türlerinin yanı sıra temsil Gruplar gösterilir. Tümşeritli RNA 2 mg ile yüklendi.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Ribozom arıtma protokolleri temelde düşük hızda spin sitozolik bir fraksiyonu hasat parçalama hücreleri içerir ve daha sonra yüksek hızda santrifüj 1 ribozomlar peletleme . Bakteri ribozomları temizlemek için bir kaç yeni yöntemler kullanılmış olsa da, aynı ökaryotlar 2-4 için doğru değildi. Maya ribozomlar biyokimyasal ve yapısal çalışmalar ek adımlar yaş, örneğin tuz yıkama ve gliserol minderler (örneğin: 5) boyunca eklenmiş olmasına rağmen, büyük olasılıkla, arıtma işlemi sırasında en...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Çıkar çatışması ilan etti.
Teşekkürler
Ashton Belew, Karen Jack Sharmishtha Musalga, Sergey Sulima Shivani Reddy ve onların yardım ve bu projenin giriş Michael Rhodin Dinman laboratuvar üyeleri, teşekkür etmek istiyoruz. Bu çalışma, Amerikan Kalp Derneği (AHA 0630163N), AM ve Ulusal Sağlık Enstitüleri (5R01 GM058859-12) JDD bağışları ile destek verdi. JAL, 2009 ek ana hibe bir Amerikan Yatırım ve Kurtarma Yasası (3R01GM058859-11S1) tarafından desteklenmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Reaktifi Adı | Şirket | Katalog numarası | |
| Sulfolink Kaplin reçine | Delmek | 20402 | |
| Mini boncuk-çırpıcı 16 | Biospec | 607 | |
| Optima Max E ultrasantrifüjdeki | Beckman Coulter | ||
| Legend RT | Sorvall | ||
| 0,5 mm Cam boncuklar | Biospec | 11079105 | |
| Tris | Sigma-Aldrich | 252859 | |
| EDTA | Sigma-Aldrich | E9884 | |
| DTT | Sigma-Aldrich | 43815 | |
| Hepes | Sigma-Aldrich | 54459 | |
| NH 4 Cl | Sigma-Aldrich | A9434 | |
| KCl | Sigma-Aldrich | 60128 | |
| Mg (oac) 2 | Sigma-Aldrich | M5661 | |
| KOH | Sigma-Aldrich | 221473 | |
| Gliserin | Sigma-Aldrich | G5516 | |
| Puromycin | Sigma-Aldrich | P7255 | |
| GTP | Fermentas | R0461 |
Kaynaklar
- Palade, G. E., Siekevitz, P. Liver microsomes; an integrated morphological and biochemical study. J. Biophys. Biochem. Cytol. 2, 171-200 (1956).
- Fabry, M., Kalvoda, L., Rychlik, I. Hydrophobic interactions of Escherichia coli ribosomes. Biochim. Biophys. Acta. 652, 139-150 (1981).
- Jelenc, P. C. Rapid purification of highly active ribosomes from Escherichia coli. Anal. Biochem. 105, 369-374 (1980).
- Le goffic, F., Moreau, N., Chevelot, L., Langrene, S., Siegrist, S. Purification of bacterial ribosomes using chloramphenicol and erythromycin columns. Biochimie. 62, 69-77 (1980).
- Meskauskas, A., Petrov, A. N., Dinman, J. D. Identification of functionally important amino acids of ribosomal protein L3 by saturation mutagenesis. Mol. Cell Biol. 25, 10863-10874 (2005).
- Algire, M. A. Development and characterization of a reconstituted yeast translation initiation system. RNA. 8, 382-397 (2002).
- Maguire, B. A., Wondrack, L. M., Contillo, L. G., Xu, Z. A novel chromatography system to isolate active ribosomes from pathogenic bacteria. RNA. 14, 188-195 (2008).
- Leshin, J. A., Rakauskaite, R., Dinman, J. D., Meskauskas, A. Enhanced purity, activity and structural integrity of yeast ribosomes purified using a general chromatographic method. RNA. Biol. 7, 354-360 (2010).
- Triana, F., Nierhaus, K. H., Chakraburtty, K. Transfer RNA binding to 80S ribosomes from yeast: evidence for three sites. Biochem. Mol. Biol. Int. 33, 909-915 (1994).
- Azzam, M. E., Algranati, I. D. Mechanism of puromycin action: fate of ribosomes after release of nascent protein chains from polysomes. Proc. Natl. Acad. Sci. U. S. A. 70, 3866-3869 (1973).
- Nathans, D. Puromuycin inhibition of protein synthesis: incorporation of puromycin into peptide chains. Proc. Natl. Acad. Sci. U. S. A. 51, 585-592 (1964).
- Rabinovitz, M., Fisher, J. M. A dissociative effect of puromycin on the pathway of protein synthesis by Ehrlich ascites tumor cells. J. Biol. Chem. 237, 477-481 (1962).
- Allen, D. W., Zamecnik, P. C. The effect of puromycin on rabbit reticulocyte ribosomes. Biochim. Biophys. Acta. 55, 865-874 (1962).
- Yarmolinsky, M. B., Haba, G. L. Inhibition by puromycin of amino acid incorporation into protein. Proc. Natl. Acad. Sci. U. S. A. 45, 1721-1729 (1959).
- Becker-Ursic, D., Davies, J. In vivo and in vitro phosphorylation of ribosomal proteins by protein kinases from Saccharomyces cerevisiae. Biochemistry. 15, 2289-2296 (1976).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
