Membran kaçakçılığı, proteinlerin plazma zarından hücre içine taşınmasını (yani endositoz) ve ardından bozunma için lizozomlara veya geri dönüşüm için plazma zarına kaçakçılığı içerir. Bu makalede açıklanan yöntemler, endositoz ve plazma zarı proteinlerinin geri dönüşümünü incelemek için tasarlanmıştır.
Yöntem makalesi
Plazma Zarı Proteinlerinin Endositozu ve Geri Dönüşümünü İncelemek için Hücre Bazlı L-Glutatyon Koruma Testleri
Bu makalede
Özet
Özet
Membran kaçakçılığı, proteinlerin plazma zarından hücre içine taşınmasını (yani endositoz) ve ardından bozunma için lizozomlara veya geri dönüşüm için plazma zarına kaçakçılığı içerir. Hücre bazlı L-glutatyon koruma testleri, hücre yüzeyinde lokalize olan protein reseptörlerinin, kanalların, taşıyıcıların ve adezyon moleküllerinin endositozunu ve geri dönüşümünü incelemek için kullanılabilir. Endositik tahlil, hücre yüzey proteinlerinin, bir disülfid bağı içeren bir hücre zarı geçirimsiz biyotin ve 4 ºC'de N-hidroksisüksinamid (NHS) ester ile etiketlenmesini gerektirir - zar kaçakçılığının meydana gelmediği bir sıcaklık. Biyotinile plazma membran proteinlerinin endositozu, 37 ºC'de inkübasyon ile indüklenir. Daha sonra, endositik trafiği durdurmak için sıcaklık tekrar 4 ºC'ye düşürülür ve plazma zarında kalan proteinlere kovalent olarak bağlanan biyotin içindeki disülfid bağı L-glutatyon ile azaltılır. Bu noktada, sadece endositoza uğrayan proteinler L-glutatyondan korunur ve böylece biyotinile kalır. Hücre lizizinden sonra, biyotinile proteinler streptavidin agaroz ile izole edilir, agarozdan ayrıştırılır ve ilgilenilen biyotinile protein western blot ile tespit edilir. Geri dönüşüm deneyi sırasında, biyotinilasyondan sonra hücreler 37 °C'de inkübe edilerek endositik veziküllere biyotinile proteinler yüklenir ve plazma zarında kalan proteinlere kovalent olarak bağlanan biyotin içindeki disülfid bağı, endositik tahlilde olduğu gibi 4 ºC'de L-glutatyon ile indirgenir. Daha sonra, endositik veziküllerden biyotinile edilmiş proteinlerin plazma zarına geri dönmesine izin vermek için hücreler 37 ° C'de tekrar inkübe edilir. Hücreler daha sonra 4 ºC'de inkübe edilir ve plazma zarlarına geri dönüştürülen proteinlere bağlanan biyotin içindeki disülfid bağı L-glutatyon ile azaltılır. L-glutatyondan korunan biyotinile proteinler, plazma zarına geri dönüştürülmeyen proteinlerdir.
Giriş
Tüm canlı hücreler, hücre dışı ligandlar, mikroorganizmalar, besinler, transmembran proteinler ve lipitler gibi kargoları plazma zarından endositik veziküllere (yani endositoz) aktararak bilgileri işler. Geri dönüşüm adı verilen karşılıklı bir süreç, endositozu dengeler ve içselleştirilmiş zarın ve yükün çoğunu hücre yüzeyine geri döndürür. Endositoz ve geri dönüşüm arasındaki denge, plazma zarı bileşimini kontrol eder ve hücrelere zaman ve mekanda çözülmüş bilgiler sağlar. Endositoz ve geri dönüşüm, besin alımı ve metabolizması, gelişim, proliferasyon, farklılaşma ve polarite, yeniden programlama, migrasyon, hücre yapışması ve migrasyonu, sitokinez ve nörotransmisyon1-3 gibi çeşitli hücresel fonksiyonların ana düzenleyicileridir. Endositik ve geri dönüşüm yolları çok dinamik ve oldukça koordinelidir ve hücrelerin tüm plazma zarının eşdeğerini saatte 1-5 kez çevirmesine izin verir.
Hücre bazlı L-glutahion koruma testleri, epitelyal ve epitel olmayan hücrelerde4-8 reseptörler, kanallar, taşıyıcılar ve adezyon molekülleri dahil olmak üzere transmembran proteinlerin endositozu ve geri dönüşümünü incelemek için yararlıdır. Daha önce insan hava yolu epitel hücrelerinde ve HEK293hücrelerinde 9-15 Kistik Fibrozis Transmembran İletkenlik Regülatörünün (CFTR) endositozu ve geri dönüşümü üzerinde çalışmıştık. Makalede açıklanan biyotinilasyon bazlı tahliller, yarı geçirgen büyüme destekleri üzerinde polarize koşullar altında kültürlenen epitel hücrelerinde endositoz ve geri dönüşümü incelemek için optimize edilmiştir. Bu protokoller, plastik doku kültürü kaplarında veya epitel olmayan hücrelerde kültürlenen epitel hücrelerinde endositoz ve proteinlerin geri dönüşümünü incelemek için değiştirilebilir. Şekil 1 ve 2, epitelyal ve epitel olmayan hücrelerde endositik ve geri dönüşüm testlerinin örneklerini içerir.
Endositik testler daha önce tarif edildiği gibigerçekleştirilir 9-15. Hücreler kollajen kaplı yarı geçirgen büyüme destekleri11,14 üzerinde kültürlenir. Alternatif olarak, hücreler kollajen kaplı plastik doku kültürü kaplarında10,15 kültürlenebilir. Membran trafiğini durdurmak için hücreler hızla 4 ºC'ye soğutulur ve plazma zarı proteinleri 4 °C'de hücre zarı geçirimsiz bir biotin ile etiketlenir. Biotin ile reaksiyona girer kalıntılarının >ε-amini ve disülfid bağı tiyol-bölünebilir. Biyotinilasyondan sonra hücreler, protein kaçakçılığını indüklemek ve endositik vezikülleri 2.5, 5.0, 7.5 veya 10 dakika boyunca yüklemek için 37 ° C'de inkübe edilir. Daha sonra hücreler 4 °C'ye soğutulur ve plazma zarı proteinlerine kovalent olarak bağlanan biyotin içindeki disülfid bağı L-glutatyon (GSH) ile indirgenir. Protokolün bu noktasında, sadece plazma zarından endositoz edilen proteinler GSH'den korunur ve böylece biyotinile kalır. 37 ºC'de inkübasyon veya GSH tedavisi olmadan biyotinilasyondan sonra 4 ° C'de kalan hücreler, sıfır zamanında biyotinile edilen CFTR miktarını belirlemeye hizmet edecektir. Biyotinilasyondan sonra 4 ° C'de kalan hücreler, 37 ºC'de inkübasyon olmadan, ancak GSH tedavisi ile, disülfid bağlarının azaltılmasının verimliliğini belirlemeye hizmet edecektir. Yukarıda tarif edilen tedavileri takiben, hücreler parçalanır, biyotinile proteinler streptavidin agaroz ile izole edilir, SDS numune tamponuna ayrıştırılır ve SDS-PAGE ile ayrılır. İlgilenilen protein, biyotinile edilmiş örneklerde western blotlama ile tespit edilir. Sıfır zamanında 4 ºC'de (37 ºC ısınma olmadan) biyotinile protein miktarı %100 olarak kabul edilir. 4 ºC'de GSH tedavisinden sonra biyotinile kalan protein miktarı arka plan olarak kabul edilir ve farklı zaman noktalarında 37 ºC'ye ısıtıldıktan sonra biyotinile kalan protein miktarından çıkarılır. Protein endositozu, arka plan çıkarıldıktan sonra hesaplanır ve sıfır zamanında mevcut olan biyotinillenmiş protein miktarına kıyasla 37 ºC'ye ısıtıldıktan sonra her zaman noktasında biyotinile proteinin yüzdesi olarak ifade edilir.
Geri dönüşüm tahlilleri daha önce açıklandığı gibigerçekleştirilir 11,16. Hücreler kollajen kaplı yarı geçirgen büyüme destekleri üzerine kültürlenir11. Alternatif olarak, hücreler kollajen kaplı plastik doku kültürü kapları13 üzerinde kültürlenebilir. Hücreler, endositik vezikülleri biyotinile proteinlerle yüklemek için biyotinilasyondan sonra 37 ° C'ye ısıtılır. 37 ºC'de ilk inkübasyon süresi, endositik sinyalin doğrusal artışı sırasında ilgilenilen proteinin endositozunun maksimuma ulaştığı zaman ile belirlenir. Süre proteine özgüdür ve hücre tipine ve hücre kültürü koşullarına bağlı olabilir. Deneyimlerimize göre, CFTR endositozu 5.0 veya 7.5 dakika13,14'te maksimuma ulaşmıştır (Şekil 1 ve 2). Daha sonra, hücreler hemen 4 °C'ye soğutulur ve plazma zarı proteinlerine bağlı biyotin içindeki disülfid bağı GSH ile azaltılır. Daha sonra, hücreler ya ilgilenilen endositozlu protein miktarını belirlemek için parçalanır ya da ilgilenilen endositozlu biyotinile proteinin plazma zarına geri dönmesine izin vermek için farklı süreler boyunca tekrar 37 ° C'ye ısıtılır. Hücreler daha sonra tekrar 4 °C'ye soğutulur ve plazma zarlarına geri dönüştürülen proteinlere bağlı biyotin üzerindeki disülfid bağı GSH ile azaltılır. İlgilenilen proteinin geri dönüşümü, birinci ve ikinci GSH işleminden sonra biyotinile protein miktarı arasındaki farktan belirlenir.
Endositik ve geri dönüşüm tahlillerinin fizibilitesi birkaç faktöre bağlıdır. İlk olarak, hücre tek tabakalarının oluşumu bir ön koşuldur ve tek tabaka oluşturmayan veya çok tabakalı olarak büyüyen hücreler bu yazıda açıklanan tahliller için uygun değildir. İkincisi, hücre yüzeyinde ilgilenilen proteinin bolluğu ve proteini western blotlama ile tespit etmek için bir antikorun varlığı kritiktir. Proteinin kararlı durum bolluğunun ilk olarak tüm hücre lizatlarında (WCL) belirlenmesini öneririz. Üçüncüsü, spesifik hücre yüzey proteinini biyotinile etme yeteneği test edilmelidir. Biyotin, lizin kalıntılarına bağlanır. Bu nedenle, biyotinilasyonun etkinliği kısmen proteinin hücre dışı alanındaki lizin kalıntılarının sayısına bağlıdır. Buna göre, hücre dışı alan(lar)da lizin kalıntılarının bulunup bulunmadığını belirlemek için protein dizisinin taranmasını öneririz. Tüm hücre dışı domain lizin kalıntıları, protein katlanması nedeniyle biyotin için eşit derecede erişilebilir olmayabilir. Bu nedenle, sadece hücre yüzeyindeki proteinin kararlı durum bolluğunu belirlemek için değil, aynı zamanda ilgilenilen protein için biyotinilasyon bazlı tahlillerin fizibilitesini incelemek için kararlı durumda protein biyotinilasyonu ve ardından western blotlama yapılmalıdır.
Bu protokol, hava-sıvı arayüzü9,10,13-15'te 24 mm yarı geçirgen büyüme destekleri üzerinde kültürlenmiş CFBE41o- insan hava yolu epitel hücrelerinde vahşi tip CFTR'nin endositozu ve geri dönüşümünün incelenmesi için optimize edilmiştir. CFTR, apikal membran alanına polarize olur; Bu nedenle, protokol apikal membran alanının biyotinilasyonunu tanımlar. Bazolateral membran alanının biyotinilasyonu, endositozu ve bazolateral membrana polarize olan proteinlerin geri dönüşümünü incelemek için gerekli olacaktır. Bu yazıda açıklanan endositik test protokolünün 6 koşulu vardır: Yalnızca biyotinillenmiş (BT = zaman sıfır; örnek a); GSH kontrolü (GSH; örnek b); ve 2.5, 5.0, 7.5 veya 10 dakikalık endositik zaman noktaları (örnekler C; Tablo 1). Protokoldeki endositik zaman noktalarının sayısı ve/veya uzunluğu gerektiği gibi değiştirilebilir.
Geri dönüşüm testi, endositik sinyalin doğrusal artışı sırasında ilgilenilen proteinin endositozunun maksimuma ulaştığı zaman noktasını belirledikten sonra gerçekleştirilir. Bu zaman noktası, geri dönüşümü indüklemeden önce endositik vezikülleri ilgilenilen protein ile yüklemek için kullanılacaktır. Zaman proteine bağlıdır ve hücre tipleri ile kültür koşulları arasında farklılık gösterebilir15. CFTR endositozunun, CFTR15'i stabil bir şekilde eksprese eden insan hava yolu epitel hücreleri CFBE41o'da 7.5 dakikalık zaman noktasında platoya ulaştığını daha önce tespit etmiştik. Buna karşılık, CFTR endositozu, CFTR13'ü stabil bir şekilde eksprese eden HEK293 hücrelerinde 5.0 dakikalık zaman noktasında platoya ulaştı. Bu yazıda açıklanan geri dönüşüm tahlil protokolünün 5 koşulu vardır: Yalnızca biyotinile edilmiş (BT = zaman sıfır; örnek a); GSH kontrolü (GSH; örnek b); 5.0 dk endositoz (Endo; numune c), 5.0 dk endositoz ve ardından 2.5 veya 5.0 dk geri dönüşüm zaman noktaları (Rec; örnekler d; Tablo 2). Protokoldeki geri dönüşüm zaman noktalarının sayısı ve/veya uzunluğu gerektiği gibi değiştirilebilir.
Protokol
1. Tohumlama Hücreleri
- 24 mm'lik filtreleri %10 kollajen I ile ön işlemden geçirin (%10 kollajen I'i Minimal Esansiyel Ortamda (MEM) hazırlayın, filtrenin tüm yüzeyini kollajen solüsyonu ile kaplayın, UV ışığı altında oda sıcaklığında 30 dakika inkübe edin ve 37 ºC'de 1 saat hücre kültürü inkübatöründe inkübe edin, inkübasyondan sonra fazla kollajeni emdirin).
- Hücre kültürü ortamı hazırlayın (20 dakika boyunca CO2 ile gazlanmış MEM,% 10 Fetal Sığır Serumu (FBS), 50 U / ml penisilin, 50 U / ml streptomisin, 2 mM L-glutamin, 0.5 μg / ml puromisin)
- Tohum CFBE41o- sırasıyla endositoz ve geri dönüşüm için altı adet 24 mm filtrede 1 x 10⁶/filtrede hücreler.
- Tohumlamadan bir gün sonra apikal ortamı çıkarın ve her gün sadece bazolateral taraftan besleyin.
- Deneyden 24 saat önce seçim antibiyotik negatif besiyeri ile besleyin. Tohumlamadan 6-10 gün sonra CFBE41o- hücrelerinde deney yapın.
2. Deney öncesi hazırlıklar (endositoz ve geri dönüşüm tahlili için benzer)
- Soğuk odada bir tezgah alanı oluşturun. Endositik ve geri dönüşüm testleri, 37 ° C'deki inkübasyon dışında soğuk odada yapılmalıdır. 24 mm'lik filtreleri içeren plakalar soğuk odada doğrudan tezgah üstüne yerleştirilmelidir.
- 37 ºC inkübatörü açın.
- 500 ml PBS++, pH 8.2 (Dulbecco'nun Fosfat Tamponlu salin (PBS), 1 mM magnezyum klorür ve 0.1 mM kalsiyum klorür, pH 8.2) hazırlayın ve 250 ml'yi 37 °C'de bir inkübatörde ve 250 ml'yi soğuk odada 4 °C'de saklayın.
- Kuyuları PBS++, pH 8.2, 37 °C ile 6 oyuklu bir plakaya doldurun ve inkübatörde 37 °C'de tutun.
- Kuyuları PBS++, pH 8.2, 4 °C ile 6 oyuklu başka bir plakaya doldurun ve 4 °C'de soğuk odada tutun.
- 4 °C'de 100 ml PBS++, pH 8.6 hazırlayın ve soğuk odada saklayın.
- Biyotinilasyon adımından sonraki 30 dakika içinde PBS++, pH 8.2, 4 °C'de 0.8 mg / ml konsantrasyonda disülfid bağı ve NHS esteri içeren biyotini hazırlayın (biyotin tamponunun hacmi filtrenin tüm yüzeyini tamamen kaplamalıdır); 1,5 ml / 24 mm filtre öneririz.
- Suda, pH 8.6'da 100 ml GSH tamponu hazırlayın ve 4 ºC'ye soğutun (75 mM sodyum klorür, 1 mM magnezyum klorür ve 0.1 mM kalsiyum klorür, 50 mM GSH, 80 mM sodyum hidroksit ve %10 FBS). GSH ve sodyum hidroksit deneyden hemen önce eklenmelidir. pH'ı kontrol edin ve 8.6'ya ayarlayın; Sodyum hidroksit, karboksil gruplarını nötralize eder ve glutatyondaki sistein kalıntılarının yarısını protondan arındırır. Bu sisteinin pKa'sında 8.64 olan güçlü bir şekilde tamponlanır. (Geri dönüşüm tahlili için aynı hacimde GSH tamponu hazırlayın).
- 50 ml Lysis tamponu, pH 8.2 hazırlayın ve 4 ° C'de tutun (25 mM HEPES, pH 8.2,% 1 (h / h) Triton X-100,% 10 (h / h) gliserol); 50 ml lizis tamponu başına Tam proteaz inhibitör kokteyli ekleyin ve 4 ºC'ye soğutun; pH'ta bir düşüş meydana gelebileceği için Tamamlayın ekledikten sonra pH'ı kontrol edin.
- 100 mM DTT ile Laemli numune tamponu hazırlayın.
- 1x Çalışma tamponu hazırlayın (100 ml 10x Çalışma tamponu, 900 ml su).
- 1x Transfer tamponu hazırlayın ve 4 ºC'ye soğutun (sodyum dodesil sülfat (SDS) içermeyen 100 ml 10x Transfer tamponu, 200 ml metanol, 700 ml su).
3. Endositik Test
CFTR, apikal membran alanına polarize olur; bu nedenle, protokol apikal membran alanının biyotinilasyonunu tanımlar. Bazolateral membrana polarize olan proteinlerin endositozunu incelemek için bazolateral membran alanının biyotinilasyonu gerekecektir.
İş akışı: Hücre yüzeyi proteinlerinin 4 ºC'de biyotinilasyonu → Endositik vezikülleri biyotinile proteinlerle yüklemek için 37 ºC'ye ısıtma → Endositik trafiği durdurmak için 4 ºC'ye soğutma → Hücre yüzeyinde kalan proteinlere bağlı biyotindeki disülfid bağının azaltılması → Hücre lizisi → Biyotinilasyonun izolasyonu (örn. endositozlu) streptavidin agarozlu proteinler → Streptavidin agarozdan biyotinile proteinlerin elüsyonu → Protein elektroforezi ve western blotting.
- Altı adet 24 mm'lik filtre içeren plakayı (Tablo 1: örnekler a-c) hücre kültürü inkübatöründen getirin ve buz üzerinde soğuk (4 ºC) PBS++, pH 8.2 ile doldurulmuş plakaya hızlı bir şekilde aktarın.
- PBS++'ın tüm yüzeyi hızlı bir şekilde kaplamak için apikal yüzeyden taşmasına izin verin. Buz üzerindeki plakayı soğuk odaya getirin ve tezgahın üzerine koyun.
- Düşmeyi önlemek için filtreleri yerinde tutarak plakayı ters çevirerek PBS++'ı hızlı bir şekilde çıkarın. Apikal ve bazolateral tarafa ~ 2 ml PBS++ ekleyin.
- Filtreleri ~ 2 ml soğuk PBS ++, pH 8.2 3x ile 2 dakika boyunca yıkayın. Yıkamayı apikal veya bazolateral olmak üzere her seferinde bir taraftan emdirin ve her seferinde bir tarafa taze PBS++, pH 8.2 ekleyin.
- Son yıkamayı emdirin ve bazolateral tarafa 1 ml PBS++, pH 8.2 ekleyin. Apikal tarafa 1.5 ml biyotin tamponu ekleyin ve karanlıkta 30 dakika inkübe edin. Tamponları karşı tarafa dökmekten kaçının.
- Biyotin tamponunu apikal taraftan emdirin ve PBS++, pH 8.2 3x ile 2 dakika yıkayın.
- Farklı bir plakada iki filtreyi bir kenara koyun (Tablo 1: numune a ve b), apikal ve bazolateral tarafa ~ 2 ml PBS ++, pH 8.2 ekleyin ve soğuk odada saklayın. Kalan 4 filtreyi bir plakada tutun (Tablo 1: örnekler c) ve her filtrenin apikal ve bazolateral tarafına ~ 2 ml PBS++ pH 8.2 ekleyin. Plakayı buzun üzerine yerleştirin ve 37 ºC inkübatörün yanındaki tezgahın üzerine getirin.
- Önceden ısıtılmış PBS++ pH 8.2 ile doldurulmuş 37 ºC'lik inkübatördeki filtreleri buzdan plakaya hızlı bir şekilde aktarın ve her bir filtrenin tüm yüzeyini ılık PBS++ pH 8.2 ile kaplayacak şekilde her bir filtreyi hassas bir şekilde 2,5, 5,0, 7,5 veya 10 dakika boyunca inkübe edin.
- İnkübasyon sırasında, plakadaki dört kuyuyu soğuk (4 ºC) PBS++ pH 8.2 ile buz üzerine tamamen doldurun.
- Belirtilen inkübasyon süresinden sonra, ılık (37 ºC) PBS++, pH 8.2'yi boşaltmak için her bir filtreyi ters çevirin ve buz üzerindeki plakaya aktarın. Apikal tarafı taşmak ve her filtrenin tüm yüzeyini hızlı bir şekilde kaplamak için soğuk PBS++, pH 8.2 ekleyin.
- Filtreleri buza aktardıktan sonra, plakayı soğuk odaya getirin ve tezgahın üzerine yerleştirin.
- Tüm filtrelerde (numune a-c) PBS++'ı her iki taraftan emdirin ve bazolateral tarafı 1 ml PBS++ pH 8.6 ile doldurun. Filtre a'nın apikal tarafına 1,5 ml PBS++, pH 8,6 ekleyin (Tablo 1: örnek a).
- B ve c filtrelerinde GSH tamponu (pH 8.6) ile apikal membran proteinlerine bağlı biyotin içindeki disülfid bağını azaltın (Tablo 1: numune b ve c).
- Apikal tarafa 1.5 ml GSH tamponu ekleyin, 15 dakika inkübe edin ve altı kez tekrarlayın.
- Bazolateral tarafta 1 ml PBS++ pH 8.6 tutun. Tamponu bazolateral tarafa dökmekten kaçının.
- Prosedür 3.15'i tamamladıktan sonra, tüm filtreleri (Tablo 1: numune a, b ve c) PBS++ pH 8.2 2x ile kısa bir süre yıkayın, yıkamayı apikal ve bazolateral taraftan emdirin ve tüm yıkamayı boşaltmak ve tekrar emmek için filtreli plakayı 45°'lik bir açıyla ayarlayın.
- Plakayı tezgahın üzerine düz bir şekilde yerleştirin ve her filtrenin apikal tarafına 500 μl lizis tamponu ekleyin ve 15 dakika çalkalayarak soğuk odada inkübe edin.
- Hücreleri bir lastik polis memuru ile kazıyın ve 1.5 ml'lik bir Eppendorf tüpünde toplayın.
- 4 °C'de 10 dakika boyunca 14.000 x g'da döndürün.
- Süpernatanları 1.5 ml'lik taze tüplere aktarın ve peletleri atın. Süpernatanlar artık tam hücre lizatları (WCL) olarak adlandırılmaktadır.
- 50 μl WCL'ye (tüm WCL'nin %10'u) DTT ile 100 μl Laemli numune tamponu ekleyin ve 37 °C'de 30 dakika inkübe edin (WCL numuneleri).
- % 50 streptavidin agarozun 200 μl alikotunu hazırlayın ve bir emişe bağlı 27 G'lık bir iğne ile tüm yıkama tamponunu çıkarın: 2x'i 1 ml PBS ile yıkayın, yıkamalar arasında nabız dönüşü olan pelet boncukları; WCL eklemeden önce dengelemek için 1 ml lizis tamponu ile bir kez yıkayın; WCL eklemeden önce agarozu kurutun.
- Kalan WCL'yi yıkanmış streptavidin agaroz ile inkübe edin (lizis tamponu ile hacmi 1.2 ml'ye getirin ve karanlıkta en az 2 saat veya soğuk odada O / N döndürün).
- Streptavidin agaroz-biyotinile protein komplekslerini 1 ml lizis tamponu ile üç kez yıkayın (lizis tamponunun yıkama sırasında Komple içermesi gerekmez), agarozu yıkamalar arasında darbeyle döndürün ve son yıkamadan sonra kurutun.
- Streptavidin agaroz-biyotinillenmiş protein komplekslerini 65 μl Laemli numune tamponu ile DTT ile 85 ° C'de 5 dakika inkübe edin.
- Nabız döndürün ve ayrıştırılmış biyotinile protein komplekslerini toplayın.
- Oyuk başına 40 μl WCL numuneleri ve biyotinillenmiş (BT) numunelerin tüm hacmi ile% 7,5 jel yükleyin.
- Çalışan tampon içeren SDS'de jelleri 120 V'ta çalıştırın.
- Proteinleri, SDS'siz bir transfer tamponunda 1.5 saat boyunca (<400 A kadar) 90-95 V'ta bir PVDF membranına aktarın.
- TBS-T% 0.1 O / N'de% 5 yağsız sütü bloke edin. Her iki zarı da anti-CFTR fare monoklonal antikoru CFF596 ve bir keçi anti-fare HRP konjuge ikincil antikoru ile kurulayın.
- Kemilüminesans gerçekleştirin. Her iki zarı da anti-ezrin veya anti-aktin antikoru ile yeniden kurulayın.
4. Geri Dönüşüm Deneyi
İş Akışı: Hücre yüzeyi proteinlerinin 4 ºC'de biyotinilasyonu → Endositik vezikülleri biyotinile proteinlerle yüklemek için 37 ºC'ye ısıtma → Endositik trafiği durdurmak için 4 ºC'ye soğutma → Hücre yüzeyinde kalmış proteinlere bağlı biyotindeki disülfid bağının azaltılması → Endositik veziküllerden biyotinile proteinlerin hücre yüzeyine geri dönmesine izin vermek için 37 °C'ye ısınma → 4 ºC'ye soğutma Endositik kaçakçılığı durdurmak için → Hücre yüzeyine geri dönüştürülmüş proteinlere bağlı biyotindeki disülfid bağının azaltılması → Hücre lizisi → Streptavidin agarozu ile biyotinile proteinlerin (yani geri dönüştürülmemiş olanların) izolasyonu → Streptavidin agarozundan biyotinile proteinlerin elüsyonu → Protein elektroforezi ve western blotlama.
- Endositik testte (bölüm 3.1-3.6) açıklanan prosedürü takiben apikal yüzey proteinlerini beş adet 24 mm'lik filtrede (Tablo 2: örnekler a-d) biyotinilatın.
- Soğuk odada, yeni bir plakaya iki filtre yerleştirin (Tablo 2: numune a ve b), apikal ve bazolateral tarafa ~ 2 ml PBS ++, pH 8.2 ekleyin ve soğuk odada tutun.
- Kalan 3 filtreyi, her filtrenin apikal ve bazolateral tarafında ~2 ml PBS++ pH 8.2 ile bir plakada (Tablo 2: numune c ve d) tutun. C ve d filtreli plakayı buzun üzerine yerleştirin ve 37 ºC'lik inkübatörün dışındaki tezgaha getirin.
- Filtreleri buz üzerindeki plakadan inkübatörde önceden ısıtılmış PBS++ pH 8.2 ile doldurulmuş plakaya hızlı bir şekilde aktarın ve 5.0 dakika bekletin.
- Kuluçka sırasında, plakanın 3 kuyusunu soğuk (4 ºC) PBS++ pH 8.2 ile buz üzerine doldurun.
- 37 ºC'de 5.0 dakikalık inkübasyondan sonra filtreleri buz üzerindeki plakaya aktarın. Soğuk PBS++ pH 8.2'nin apikal taraftan taşmasına ve her filtrenin tüm yüzeyini hızlı bir şekilde kaplamasına izin verin.
- Buz üzerindeki plakayı soğuk odaya getirin ve tezgahın üzerine koyun.
- a, b, c ve d filtrelerinin her iki tarafından PBS++ pH 8.2'yi emdirin ve bazolateral tarafa 1 ml PBS++ pH 8.6 ekleyin.
- A ve b filtrelerini c ve d filtrelerinden ayrı tutun. A ve b filtrelerinin apikal tarafına 1 ml PBS++ pH 8.6 ekleyin.
- Endositik tahlilde açıklanan prosedürü takiben b, c ve d filtrelerinde hücre yüzeyinde kalan biyotindeki disülfid bağını azaltın (adım 3.13-3.15).
- B, c ve d filtrelerini kısaca PBS++ pH 8.2 2x ile yıkayın ve taze PBS++, pH 8.2 ile değiştirin. Filtreleri d yeni bir tabağa yerleştirin ve buzu 37 ºC'lik inkübatörün dışındaki tezgahın üzerine getirin.
- Filtreleri buz üzerindeki plakadan önceden ısıtılmış PBS++ pH 8.2 ile doldurulmuş inkübatördeki plakaya hızlı bir şekilde aktarın ve yukarıda 4.4-4.9 adımlarında açıklandığı gibi her birini tam olarak 2.5 veya 5.0 dakika boyunca bir filtrede inkübe edin.
- İkinci inkübasyondan sonra 37 ºC'de 37 ºC'de GSH tamponu ile apikal membran proteinlerine bağlanan biyotin içindeki disülfid bağını 4.4'te tarif edildiği gibi filtreler d'de azaltın, ancak GSH tamponu ile sadece üç adet 15 dakikalık inkübasyon bu adım sırasında yapılacaktır. Bu adım sırasında a, b ve c filtrelerini apikal ve bazolateral tarafta PBS++ pH 8.6'da tutun.
- Hücre lizizi ve Western blotlama için endositik tahlilde açıklanan prosedürleri izleyin (adım 3.16-3.31).
Sonuçlar
CFTR endositozu, kolajen kaplı filtreler üzerinde kültüre edilen CFBE41o- hücrelerinde incelenmiştir (Şekil 1). Biyotinillenmiş CFTR, fare monoklonal antikoru klon 596 ve fare karşıtı yaban turbu peroksidaz antikoru kullanılarak, kemilüminesansı takip eden western blotting tespit sistemi ile western blotting yöntemiyle görselleştirilmiştir. Biyotinillenmiş CFTR'nin nicelendirmesi, filmin lineer dinamik aralığındaki pozlamalar kullanılarak densitometre ile gerçekleştirilmiştir. CFTR endositozu, arka plan çıkarıldıktan sonra hesaplanmış ve 37 ºC'ye ısıtılma sonrası her zaman noktasındaki biyotinillenmiş CFTR yüzdesi, sıfırıncı dakikadaki biyotinillenmiş CFTR miktarıyla karşılaştırılarak ifade edilmiştir.Şekil 1A ve 1B). CFTR endositozu 0-7,5 dk arasında lineerdi. Arka plan CFTR'nin bulunduğu deneylerde >%10'u, yetersiz GSH işlemi nedeniyle hariç tutuldu (Şekil 1D).
CFTR geri dönüşümü, kolajen kaplı doku kültürü kaplarında kültüre edilen HEK293 hücrelerinde incelenmiştir (Şekil 2). CFTR endositozu 0,0-5,0 dk arasında lineer seyretmiş ve 5,0 dk zaman noktasında maksimuma ulaşmıştır (Şekil 2A); bu nedenle, endositik vezikülleri CFTR dahil biotinillenmiş proteinlerle doldurmak için hücreler 37 ºC'de 5,0 dk boyunca inkübe edilmiştir (Şekil 2B ve 2C). Endosite edilen CFTR'nin geri dönüşümü, birinci ve ikinci GSH işlemi sonrası biotinillenmiş CFTR miktarı arasındaki fark olarak hesaplanmıştır.
Tablo 1. Endositik analizler.
| Endositoz | BT | GSH | Endo-2.5 | Endo-5.0 | Endo-7.5 | Endo-10.0 |
| Numune | a | b | c2.5 | c5.0 | c7.5 | c10.0 |
| Biotin | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2.5 dk | 5.0 dk | 7.5 dk | 10 dk |
| GSH | (-) | + | + | + | + | + |
Tablo 2. Geri dönüşüm deneyi.
| Geri Dönüşüm | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| Örnek | a | b | Sadece "c" karakteri girilmiş olduğundan çevrilecek bir metin bulunmamaktadır. Lütfen çevirmek istediğiniz metni sağlayın. | d2.5 | d5.0 |
| Biyotin | + | + | + | + | + |
| 1. 37 ºC | (-) | (-) | 5 dk | 5 dk | 5 dk |
| 1. GSH | (-) | (-) | + | + | + |
| 2. 37 ºC | (-) | (-) | + | + | + |
| 2. GSH | (-) | (-) | (-) | 2,5 dk | 5 dk |
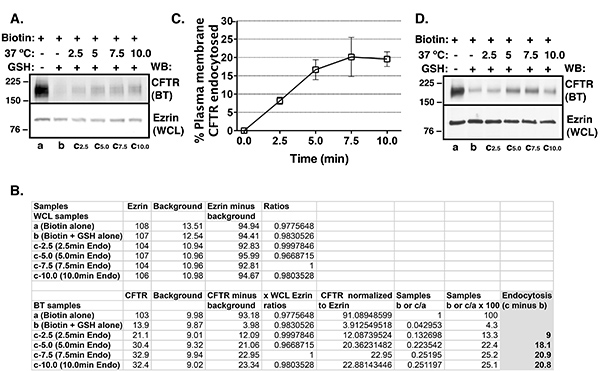
Şekil 1. CFBE41o- hücrelerinde CFTR endositozunu belirlemek için gerçekleştirilen endositik analizlerin özeti. Hücreler, kollajen kaplı filtreler üzerinde kültüre edilmiştir. Temsili western blot görüntüleri (A), temsili densitometre değerleri (B) ve deneylerin özeti (C) CFTR endositozunun zamana bağlı fonksiyonunu göstermektedir. Plazma membran CFTR bolluğunu belirlemek için seçici hücre yüzeyi biyotinilasyonu ve western blotting kullanılmıştır. Protein bolluğu, filmin lineer dinamik aralığındaki pozlamalar kullanılarak densitometre ile nicelleştirilmiştir. Sıfırıncı zamanda, biyotinillenmiş (BT) CFTR miktarı %100 olarak kabul edilmiştir (Tablo 1: örnek a). Sıfırıncı zamanda, GSH uygulamasının ardından kalan BT CFTR miktarı, CFTR arka planı olarak kabul edildi (örnek b; lütfen bunun, şeklinde gösterildiği gibi tüm örneklerden çıkarılan arka plandan farklı bir arka plan olduğuna dikkat edin; Şekil 1B). Arka plan CFTR, analize dahil edilen deneylerde %6,7 ± 0,9 (ortalama ± S.E.M.) idi. Arka plan CFTR, 37 ºC'de 2,5, 5,0, 7,5 veya 10 dakikalık ısıtma sonrası BT CFTR değerinden çıkarıldı (örnek c eksi örnek b). CFTR endositozu, arka plan CFTR çıkarıldıktan sonra 2,5, 5,0, 7,5 veya 10 dakikalık zaman noktalarında biotinillenmiş halde kalan CFTR yüzdesi olarak ifade edildi. CFTR endositozu, sıfır ile 7,5 dakika arasında lineerdi. Tüm hücre lizatındaki (WCL) ezrin miktarı, yükleme kontrolü olarak kullanıldı. Grup başına 4 deney. Arka plan CFTR'nin olduğu deneylerde >%10'u, yetersiz GSH işlemi nedeniyle hariç tutuldu (D). Hariç tutulan deneydeki GSH kontrolünde (örnek b) biyotinillenmiş CFTR miktarı %14,5'ti.
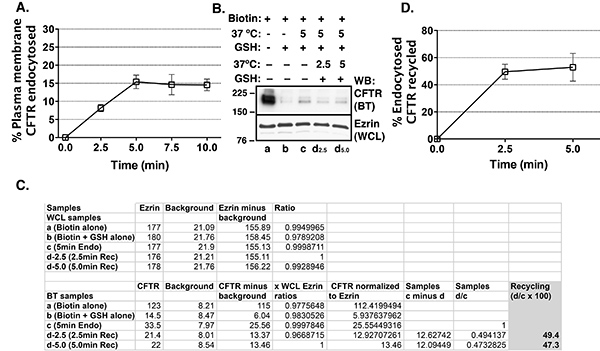
Şekil 2. Sabit CFTR eksprese eden HEK293 hücrelerinde gerçekleştirilen endositoz ve geri dönüşüm analizlerinin özeti. Hücreler, kolajen kaplı doku kültürü plaklarında kültüre edilmiştir. CFTR endositozunun 0-5 dk arasında lineer olduğunu gösteren verilerin özeti (A). Bu nedenle, geri dönüşüm analizlerinde, 37 ºC'de 5 dk ısıtma ile endositik veziküller CFTR dahil biotinillenmiş (BT) proteinlerle yüklenmiştir. Protein bolluğu, filmin lineer dinamik aralığındaki pozlamalar kullanılarak densitometre ile nicelendirilmiştir. CFTR geri dönüşümünü zamana bağlı olarak gösteren temsili western blot (B), temsili densitometre değerleri (C) ve deneylerin özeti (D). Sıfırıncı zamanda, BT CFTR miktarı %100 olarak kabul edilmiştir (Tablo 2: örnek a). Sıfırıncı zamanda, GSH uygulaması sonrası kalan BT CFTR miktarı CFTR arka planı olarak kabul edilmiştir (örnek b; lütfen bunun, C'de gösterildiği gibi tüm örneklerden çıkarılan arka plandan farklı bir arka plan olduğunu not ediniz). Arka plan CFTR miktarının %10'dan > olduğu deneyler, yetersiz GSH uygulaması nedeniyle hariç tutulmuştur. Endositik veziküller, 37 ºC'de 5 dk inkübasyonun ardından plazma membranında kalan proteinlerden biotini koparmak için yapılan GSH uygulamasıyla CFTR dahil BT proteinlerle yüklenmiştir (örnek c ve d). 37 ºC'de 5 dk ısıtma ve ardından yapılan GSH uygulaması sonrası BT CFTR miktarı, endosite edilen CFTR'yi temsil eder (örnek c). 37 ºC'de 5 dk ısıtma ve ilk GSH uygulamasını takiben hücreler, endosite edilen proteinlerin plazma membranına geri dönmesine izin vermek için tekrar 2,5 veya 5,0 dk boyunca 37 ºC'de ısıtılmış ve geri dönen CFTR üzerindeki biotin ikinci GSH uygulaması ile indirgenmiştir (örnek d). Bu noktada, sadece endozomlardan plazma membranına geri dönmemiş olan CFTR biotinillenmiş olarak kalmıştır (örnek d). CFTR geri dönüşümü, ilk GSH uygulaması sonrası BT CFTR (örnek c) ile 2,5 ve 5,0 dk'daki ikinci GSH uygulaması sonrası BT CFTR (örnek d) arasındaki fark olarak hesaplanmış ve endosite edilen CFTR'nin yüzdesi olarak ifade edilmiştir. CFTR geri dönüşümü hızlı gerçekleşmiş ve 2,5 dk'da maksimuma ulaşmıştır. Tüm hücre lizatındaki (WCL) Ezrin bolluğu, yükleme kontrolü olarak kullanılmıştır. Grup başına 3 deney.
Tartışma
Endositik ve geri dönüşüm testlerinin başarısı, CFTR'nin plazma zarında verimli biyotinilasyonuna bağlıdır. Biyotin kullanımdan hemen önce hazırlanmalıdır çünkü NHS-ester kısmı kolayca hidrolize olur ve reaktif olmaz. Ayrıca, biyotinilasyon adımı, protein kaçakçılığını durdurmak için 4 ºC'de sıkı sıcaklık kontrolü gerektirir. Biyotinilasyon adımı sırasında sıcaklık 4 ºC'nin üzerine çıkarılırsa, değişken miktarlarda CFTR'nin biyotinilasyonuna neden olan protein kaçakçılığı meydana gelebilir.
Endositik ve geri dönüşüm testlerinin başarısı, plazma zarında kalan biyotinlenmiş CFTR'deki disülfid bağının verimli bir şekilde azaltılmasına da bağlıdır. GSH işleminden sonra biyotinlenmiş kalan CFTR miktarı, sıfır zamanında toplam biyotinlenmiş CFTR'nin %<10'u olmalıdır. GSH kontrol numunesinde biyotinlenmiş CFTR miktarının % >10 olduğu deneyler hariç tutulmalıdır. Şekil 1D, GSH kontrolündeki biyotinlenmiş CFTR miktarının %14.5 olduğu "başarısız" deneyi göstermektedir. Biyotinlenmiş CFTR'deki disülfid bağının yetersiz indirgenmesi, deney sırasında sıcaklığın zayıf kontrolüne ikincil olabilir. GSH tedavisi sırasında sıcaklık 4 ºC'nin üzerine çıkarılırsa, protein kaçakçılığı meydana gelebilir ve sıcaklıktaki kasıtsız artışın bir sonucu olarak endositozlanan biyotinlenmiş CFTR, arka plan CFTR'sini artıracaktır. Alternatif olarak, biyotinlenmiş CFTR'deki disülfid bağının yetersiz indirgenmesi, havadaki oksidasyonun veya uygun olmayan pH'ın neden olduğu sulu çözeltide GSH'nin yarı ömrünün azalmasından kaynaklanabilir. Daha önce belirlendiği gibi, GSH, pH 8.64'te güçlü bir şekilde tamponlanmış halde kalır. Deneyimlerimize göre, GSH tamponu ile altı adet 15 dakikalık uygulama, disülfid bağını %90'dan fazla azalttı ve bu da 90 dakikalık bir tedaviden daha verimli bir şekilde azalttı.
Hücre kültürü özel dikkat gerektirir. Biyotin, ilgilenilen proteinin eksprese edildiği bozulmamış hücrelerde plazma zarı alanına ulaşmalıdır. Apikal membran alanında eksprese edilen CFTR'nin endositozunu ve geri dönüşümünü incelemek için biyotinilasyon bazlı endositik ve geri dönüşüm testlerini kullandık. Bu tahliller, yarı geçirgen büyüme destekleri üzerinde kültürlenmiş hücrelerde bazolateral membran alanında bulunan proteinlerin endositik trafiğini incelemek için de kullanılabilir. Biyotin ve GSH tamponları, apikal membran proteinlerini tespit etmek için hücrelerin yalnızca üst tabakasına veya bazal membran proteinlerini tespit etmek için alt tabakaya ulaşacağından, çok katmanlı oluşturan epitel hücreleri bu tahliller için uygun değildir. Plastik üzerinde kültürlenen epitel hücreleri, tahliller sırasında yıkanmaya daha yatkın olabilir. Deney sırasında rastgele hücre kaybı, sonuçları tehlikeye atacaktır. Hücrelerin plastik doku kültürü kaplarında kültürlendiği deneylerde tek tabaka bütünlüğünün mikroskop altında periyodik olarak incelenmesini öneriyoruz. Doku kültürü kaplarının kolajen ile kaplanması hücre yapışmasını artırabilir.
Biyotinlenmiş protein örnekleri, hücre içi proteinlerle kontaminasyon açısından rutin olarak test edilmelidir. Biyotinlenmiş protein örneklerinde hücre içi proteinlerin saptanması, WCL ile inkübasyondan sonra streptavidin agaroz-biyotinlenmiş protein komplekslerinin yetersiz yıkandığını gösterebilir. Bu nedenle ilk adım yıkama verimini arttırmaktır. Ayrıca, plazma zarı bütünlüğü bozulmuş hücrelerin varlığı, biyotinin hücre içi proteinlere erişimine izin verecektir. Endoplazmik retikulum gibi yalnızca hücre içi bir bölmede eksprese edilen bir protein için Western blotlama, hücre içi proteinlerin biyotinilasyonunu saptamak için kullanılabilir. Alternatif olarak, biyotinlenmiş protein örneklerinin hücre içi proteinlerle kontaminasyonunu test etmek için aktin veya ezrin gibi hücre iskeleti proteinleri kullanılabilir. Hücre iskeleti proteinleri, transmembran proteinlerle kompleksler oluşturabilir ve biyotinlenmiş protein örneklerinde az miktarda hücre iskeleti proteinleri tespit edilebilir. Bununla birlikte, deneyimlerimize göre, biyotinlenmiş/WCL ezrin veya aktin oranı <1:1.000'dir ve bu nedenle bu proteinler, biyotinilasyona dayalı deneylerde hücre zarı bütünlüğünün belirlenmesi için uygundur.
Biyotinilasyon reaksiyonu, daha önce bildirildiği gibi reaksiyona girmemiş biyotinilasyon reaktifini çıkarmak için glisin veya Tris ile söndürülebilir17. Ayrıca GSH, iyodoasetamid6 ile söndürülebilir. Deneyimlerimize göre, reaksiyona girmemiş biyotinilasyon reaktifi ve GSH, söndürme reaktifleri kullanılmadan PBS++ ile nazikçe yıkanarak verimli bir şekilde uzaklaştırılabilir.
Biyotinlenmiş protein komplekslerini izole etmek için streptavidin ve nötravidin agaroz seçimi duruma göre belirlenmelidir. Deneyimlerimize göre, streptavidin agaroz, spesifik olmayan bağlanmanın tahlil sonuçlarına müdahale eden seviyelerde meydana geldiği nötravidin agarozun aksine, biyotinlenmiş olmayan proteinlerin minimum bağlanmasıyla biyotinlenmiş protein komplekslerinin etkili bir şekilde izole edilmesini sağlar (yayınlanmamış gözlem).
Açıklamalar
Yazarlar, rekabet eden hiçbir finansal çıkarları olmadığını beyan ederler.
Teşekkürler
Bu çalışma, ABD Ulusal Sağlık Enstitüleri (NIH) hibeleri R01HL090767, R01HL090767-02S1, P30 DK06010 ve NepCure Vakfı Araştırmacı Yeni Yön Hibesi (AS-U.'ya) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| CFBE41o- hücre | referansı10,11,13,14,15< / sup> | ||
| HEK293 hücre | referansı13< / sup> | ||
| Minimal Esansiyel Orta (MEM) | Gibco | 11095 | |
| L-Glutamin | Cellgro | 25-005-CL | |
| Penisilin | Sigma | P0781 | |
| Streptomisin | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol Sığır Kollajeni Çözüm Tip I | Gelişmiş Biomatrix | 5005-B | |
| Kültür Reaktifleri | |||
| Dulbecco' s Fosfat Tamponlu Tuzlu Su (PBS) | Gibco | 14190 | |
| Kalsiyum klorür | Sigma | C3306 | |
| Magnezyum klorür | Sigma | M2670 | |
| Sodyum klorür | Sigma | S3014 | |
| EZLink Sülfo-NHS-SS-Biotin | Pierce | 21331 | |
| L-Glutatyon azaltılmış (GSH) | Sigma | G6529 | |
| Streptavidin-agaroz reçine | Thermo Fisher | 20353 | |
| Sodyum hidroksit | Sigma | 224165 | |
| Fetal sığır serumu | Gemini Bioscience | 100-106 | |
| Milli-Q su | Millipore | Avantaj Sistemi | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Gliserol | FisherScientific | G33 | |
| Laemli Numune tamponu | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | Sigma | 646563 | |
| Komple Proteaz İnhibitör kokteyli | Roche | 1697498 | |
| Streptavidin boncukları | Thermo Scientific | 20353 | |
| Kemilüminesans | Perkin Elmer | NEL104001EA | |
| Reaktifler | |||
| Yağsız kuru süt | Karanfil | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Tris-tamponlu Salin (TBS) | BioRad | 170-6435 | |
| Sığır Serum Albümini (BSA) | Gibco | 15120 | |
| Birincil ve ikincil | |||
| Western Blotting | |||
| Mouse monoklonal Anti-CFTR 596 | Kistik Fibrozis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| Anti-ezrin için Antikorlar; | |||
| Çalışma tamponu 10x | BioRad | 161-0772 | |
| Transfer tamponu 10x ( SDS olmadan) | BioRad | 161-0771 | |
| Metanol | Fisher | A4129 | |
| Coulter sayacı | Beckman Coulter | Z1Coulter Parçacık Sayacı | |
| Standart Hücre Kültür ekipmanı | |||
| : UV ışıklı | |||
| Stok şişeleri | |||
| , Transwell filtreleri-24mm, | Corning | 3412 | |
| 4 cm, hücre kültürü kapları | |||
| , pH metre | |||
| , | |||
| 15 ml ve 50 ml konik tüpler1.5 ml Eppendorf tüpleri | |||
| Kauçuk polis memuru | |||
| Soğuk oda | |||
| Buz kovaları ve buz | |||
| 27 G iğneler | |||
| 37 >m; C İnkübatör | |||
| Termometre | |||
| Tezgah üstü santrifüj | |||
| Soğutmalı santrifüj | |||
| Elektroforez ekipmanı | |||
| Geliştirici Film | |||
| GE Amersham | 28-9068-36 | ||
| PVDF membranı | Millipore | IPVH00010 | |
| ImageJ yazılımı | NIH |
Kaynaklar
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Yeniden basım ve izinler
