Presinaptik salım yüz zarında Ca2+ akımlarının kaydedilmesi, Ca2+ girişinin ve nörotransmitter salınımının kesin olarak anlaşılmasının anahtarıdır. Fonksiyonel izole retikülospinal aksonlar veren lamprey omuriliğinin akut bir ayrışmasını sunuyoruz ve bu da bireysel presinaptik terminallerin serbest bırakma yüz zarından doğrudan kayda izin veriyor.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Lamprey Reticulospinal Aksonlar Akut Ayrılma Bireysel Fonksiyonel Presinaptik Terminalleri Yayın Yüz Membranından Kayıt Enable
Bu makalede
Özet
Özet
Sinaptik iletim son derece hızlı bir süreçtir. Aksiyon potansiyeli bırakma yüz zarında bulunan voltaj-kapılı kalsiyum kanalları (VGCCs) aracılığıyla, presinaptik terminale Ca 2 akını tahrik, vezikül füzyon ve nörotransmitter salınımı için tetikleyici olduğunu. Sinaptik iletim süratine önemli aksiyon potansiyeli, VGCCs gelişi ve nörotransmitter bırakma makineler arasındaki mekansal ve zamansal senkron olduğunu. Doğrudan ca bireysel presinaptik terminallerin serbest yüz zardan 2+ akımları kaydetmek için yeteneği presinaptik Ca 2 + ve nörotransmitter salınımı arasındaki ilişkinin kesin bir anlayış için şarttır. Elektrofizyolojik kayıt için presinaptik bırakma yüz zarına erişim çoğu hazırlıkları ve presinaptik Ca mevcut değildir 2+ giriş görüntüleme teknikleri ve makroskopik akım MeasureMe kullanılarak karakterize edilmiştirNTS - Ca 2 + girişi görselleştirmek için yeterli zamansal çözünürlüğe sahip değilsiniz teknikleri. Doğrudan tek presinaptik terminallerinde VGCCs vasıflandırılması merkezi sinapslara mümkün olmamıştır ve bu güne kadar başarılı bir şekilde sadece civciv kılcal gangliyon çanak tipi sinaps ve sıçan kaliksler elde edilmiştir. Biz başarıyla postsinaptik yapıların yoksun fonksiyonel presinaptik terminalleri ile izole reticulospinal aksonlarını verir omuriliğin bir akut ayrışmış hazırlık geliştirerek taşemen omurilik dev reticulospinal sinaps bu sorunu ele alınmıştır. Biz floresan etiket ve bireysel presinaptik terminalleri belirlemek ve kayıt için onları hedef olabilir. Bu hazırlık kullanarak, immünohistokimya ve elektrofizyoloji yaklaşımlar kullanılarak tek tek presinaptik terminallerin serbest yüzünde doğrudan VGCCs tanımlanmıştır. Ca 2 + akımları bırakma yüz zar o doğrudan kaydedilmiştirm bağımsız presinaptik terminalleri, birinci tür kayıt merkezi sinapslarda gerçekleştirilecektir.
Giriş
Sinaptik iletim son derece hızlı ve hassas bir işlemdir. Presinaptik terminalin etki potansiyeli istilası salma Yan membran, presinaptik Ca 2 + artışım vezikül füzyon ve nöro-ileticinin salıverilmesine 1 için tetikleyici olarak görev bulunan VGCCs açılmasına yol açar. Bu adımların hepsi mikrosaniye 2 yüzlerce içinde meydana gelmektedir ve dolayısıyla vesikül füzyon makine 3 VGCCs sıkı uzamsal bağlanmasını gerektirir. Presinaptik Ca 2 + akıları başlıca Ca 2 + duyarlı boyalar kullanarak 4 yaklaşımlar görüntüleme ile karakterize edilmiştir. Presinaptik nöronların Ca 2 + modüle eden bir araya getiren Ca +2 tamponları dolaylı olarak presinaptik sinir iletiminin kalsiyum ve 3 arasındaki ilişkiyi karakterize etmek için kullanılmaktadır. Ayrıca, Ca 2 + 5 uncaging veya macroscopi kaydederek presinaptik serbest Ca 2 + konsantrasyonunu modüleCa c 2 + akımları vezikül füzyon ve / veya salınımının önlemler ile birlikte kullanılmıştır; Bu kapasite ölçümleri gibi 6 veya postsinaptik tepkiler aynı soruyu ele 2. Sinaptik vezikül füzyon ve nörotransmitter salınımını tetikleyerek 2+ akımlar Ancak, serbest yüzüne 2+ akımları doğrudan Ca karakterize, membran depolarizasyon Ca çevrilir presinaptik membranın özel bölümünde, Ca kesin bir ölçü elde ayrılmaz olduğunu 2+ sinaptik vezikül füzyon gereksinimi. Buna ek olarak, bununla doğrudan aksiyon potansiyelinin zamanla arasındaki zamanlama ilişkisinin tam aydınlatılması vezikül füzyon ve serbest doğru eş zamanlı ölçümleri ile karşılaştırın bağlanmış, tek tek presinaptik terminallerinde Ca 2 + akımları karakterize etmek için, presinaptik Ca2 + akımı, vezikül füzyon ve bırakın. Salma Yan membran erişimpostsinaptik dendritler tarafından appozisyon kapatmak nedeniyle presinaptik terminalleri çoğunda mevcut değildir. Bireysel presinaptik terminallerde akımının doğrudan ölçümler önlediğinden Bu erişilememesi VGCCs karakterizasyonu önemli bir engel olmuştur. Bireysel presinaptik terminallerde presinaptik Ca 2 + akımları doğrudan karakterizasyonu bugüne kadar merkezi sinapsların mümkün olmamıştır ve sadece iki kalisyel tipi presinaptik terminallerde elde edilmiştir; civciv siliyer ganglion 7-10 ve sıçan kalikslerin 11,12 çanak tipi sinaps. Taşemen omurilik 13 dev reticulospinal sinaps da dahil olmak üzere diğer tüm presinaptik terminallerde, presinaptik salınmasını yüz zara erişim eksikliği gibi Ca2 + akıları presinaptik incelemek için Ca 2 + görüntüleme gibi doğrudan olmayan yaklaşımlar kullanılmasını gerektirmiştir.
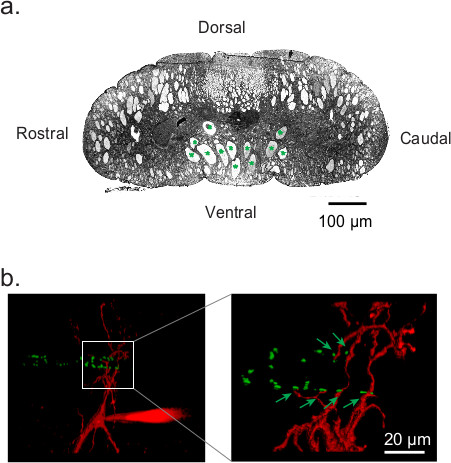 Dorsolomber ventral bir yönlenmesine işaret eder taşemen omurilik Şekil 1. taşemen dev reticulospinal sinaps.: (A) kesiti. Reticulospinal aksonlar yeşil Asteriks ile işaretlenir. Postsinaptik nöronun 13 üzerine (yeşil oklarla işaretli) presinaptik reticulospinal akson passant kişileri en çok yapmak gösteren taşemen omurilikte reticulospinal sinaps (b) 3-D rekonstrüksiyonu. Postsinaptik nöron Alexa Fluor 568 hidrazitle (kırmızı) ile dolu olan ise presinaptik terminalleri, Alexa Fluor 488 hydrazide birleşmiş falloidin (yeşil) ile işaretlenmiş edilmiştir.
Nöron üzerine passant sinaptik bağlantıları tr omurilik Rostral-kaudal eksen Şekil 1a kordon paralel form birden ventral bölgesinde bulunan Lamprey dev reticulospinal akson,Spinal ventral boynuz 14 Şekil 1b 13. Makroskopik tam hücreli Ca 2 + akımları sağlıklı omurilik 13,15 olarak reticulospinal aksonlarından kaydedildi. Ancak, Ca doğrudan ölçümde önceki kör girişimleri hücre bağlı yama kelepçe tekniği kullanılarak sağlam taşemen omurilikte reticulospinal akson 2+ akımlar nedeniyle karşıt süreçler postsinaptik nedeniyle presinaptik bırakma yüz membran ulaşamama 13 başarısız kanıtlanmış Şekil 1b. Zar daha önce serbest yüz, sinaps mekanik pertürbasyon önceden 12 kayıt veya mekanik ayrılma 16, ikiye katlanmış bir enzim tedaviye sinaptik sonrası nöronu 11 çıkarılmasıyla ulaşılabilir hale getirilmiştir. Omurilik karmaşık organizasyonu göz önüne alındığında, postsinaptik nöron tespit ve mekanik bunu geri veya th perturb son derece zor olduğunu kanıtlayacake sinaps. Dolayısıyla, biz mekanik ayrılma ardından enzimatik tedavi 17 kullanmaya karar verdi.
Bu yaklaşımı kullanarak, böylelikle bireysel presinaptik terminallere sınırsız erişim sağlayan, herhangi bir postsinaptik süreçlerin yoksun fonksiyonel presinaptik terminalleri ile canlı izole reticulospinal aksonlarını verir taşemen omuriliğin bir akut ayrışmış hazırlık geliştirdik. Standart bir ters mikroskop ve flüoresan görüntüleme ile bağlantılı olarak, hücre-ile bir kayıt için, Ca 2 + akımları Şekil 4C ve Şekil 4d izole bir kayıt çözeltisi içeren bir yama pipet ile tanımlama, ve bireysel floresan tanımlanan presinaptik terminalleri hedef sağlıyor ekli gerilim kelepçe tekniği. Ca 2 + akımları tek tek presinaptik terminalleri Şekil 4f presinaptik bırakma yüz membran doğrudan kaydedildi. Bu, bir significaBu merkezi sinapslara gerçekleştirilebilir ilk bu tür kayıt olduğu nt sinaptik iletim alanında atılım.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
Poli-D-lisin hidrobromit hazırlanması 1.
- 0.1 M borat tamponda (pH 8.5) içerisinde 1 mg / mL poli-D-lisin hidrobromit hazırlayın.
- -20 ° C'de kısım ve mağaza.
Lameller 2. Poli-lizin Kaplama
Not: Bir laminer akış odasında tüm temizlik ve kaplama işlemleri yapınız.
- 2 saat süre ile, 1 N hidroklorik asit (HCl) içeren bir Petri tabağına yerleştirin lamelleri.
- Aspire tüm HCI ve% 70 Etanol (EtOH) 2-3x ile durulayın.
- 1 saat süre ile% 70 EtOH içinde bırakın.
- Aspire 70% EtOH ve% 100 EtOH 2-3x ile durulayın.
- 2 saat boyunca% 100 EtOH içinde bırakın. Tüm EtOH aspire.
- Bir kaç saniye için filtre kağıdı ve kuru hava ile kurutun.
- Yer göre O / N 1 mg / ml poli-lizin çözeltisi.
- Durulayın Millipore su 4-5x ile ertesi gün lamelleri.
- Hava kuru poli-lisin temiz bir Petri kabı cam silindirler üzerinde lamelleri kaplı.
- Immunohistochemistr içiny, 35 x 10 mm Petri kabı, kapaklar kullanılması. 0.3 cm'lik bir kalınlığa kabına ve 30 ° CO / G ayarlamak için olanak sağlar: Sylgard hazırlanması (polydimethylsilioxane PDMS) PDMS (1 ağırlık elastomer ve sertleştirme maddesi 10) dökülerek yemekler dizildi. Bu kurduğunda, PDMS içine doğru daralmış 1 cm 2 cm kesti. Lamelleri için yukarıda belirtildiği gibi aynı adımları takip poli-lisin ile temiz ve ceket daraltma.
- Mağaza poli-lizin kaplı lamelleri ve yemekleri kullanıma kadar (2 haftaya kadar, ama her 3-4 gün periyodik olarak hazırlayarak iyi yapıştırıcı sonuçları elde) laminer akış odasının içine kapalı.
- Titreşimli doku dilimleme makinesi omuriliği pin, bir PDMS blok hazırlayın. Elastomer A, karıştırın ve Elastomer B, 1: 1 kadardır. 100 x 15 mm Petri kabı içine dökün ve 30 ° C sıcaklıkta O / N ayarlama imkanı verir. Pmds dikdörtgen bir parça kesin ve epoksi yapıştırıcı kullanarak dilimleme taban plakasına tutkal. Tutkal yerde PDMS sabitleme ayarlamak için izin ve düz elde etmek için yüzeyden birden çok ince kesitler dilimYüzey üzerinde doku yıkmaya.
Lamprey Omurilik 3. Akut Ayrılma İzole Reticulospinal Aksonlar Verim için
- (100 mg / L, MS-222) tricaine metansülfonat ile ammoecoete veya yetişkin lamprey (Petromyzon mannus) anestezisi. Lamprey ihtiva eden, bir kapakla kapatılmış bir plastik kap içerisine suya ekleyin anestetik kurban edilmesi.
- 130 NaCl, CaCI2, 1.8 MgCl2, 4 HEPES, 4 dekstroz (pH 7.6, osmolarite 270 mOsm) 2.1 KCI, 2.6 ve kaldırma gövde: soğuk (4 ° C) (mM cinsinden) aşağıdaki bileşime sahip bir Ringer çözeltisi içinde lamprey başını kesmek duvar kasları omurilik dorsal yüzeyini ortaya çıkarmak.
- Ince pensler kullanılarak bir omurilik dorsal yüzeyinden meninksler Primitiva çıkarın. Bu aşamada, ventral meninksler Primitiva çıkarmayın.
- 1 cm uzunluğunda parçalar halinde omurilik kesti.
- PDMS taban pla dilimleme kaplı üzerine, dorsal yüzü yukarı bakacak, ince böcek pimleri kullanarak bir omurilik parça Pinbuz soğukluğunda Ringer çözeltisi ihtiva eden titreşimli bir doku bölmesi dilimleyici te (2,12 bakınız).
- Rostral ve kuyruğu ile, bozulmamış arka sütun parçasının arkasındaki ayrılma süreci Şekil 2a ve Şekil 2b sırasında kolları olarak hizmet etmek üzere sona bırakarak bıçak rostro-kaudal ekseni boyunca kesit alınarak omurilik dorsal kolonun bir merkezi bölümü çıkarın. Dilimleme ve altta yatan reticulospinal akson kolon hasarsız Şekil 2b bırakarak sadece dorsal sütun kaldıran bir derinlik ayarını izin düşük hız ayarını kullanın.
- 1 mg / mL proteaz (Sterptomyces griseus dan Tip XIV) ve Ringer çözeltisi içinde (Clostridium histolyticum'dan Tip IA) hazırlanan bir 1 mg / ml kollajenaz bir karışım içinde 45 dakika boyunca oda sıcaklığında dilimlenmiş omurilik parçaları inkübe (EI Manira ve Bussieres'e uyarlanmıştır , 1997 17).
- Bir PDMS ince iğneler kullanılarak Pin enzim-tedavi omurilik adet Petri conta kaplıadencilik soğuk (4 ° C) Ringer çözeltisi.
- Ince forseps ile ventral meninksler Primitiva çıkarın.
- Omurilik Şekil 2d'de olduğu gibi reticulospinal akson merkez sütunu terk eden dilimlenmiş sırt bölümünün orta noktasında bir neşter ile omurilik yan yolları kesin.
- Lens üzerinde daldırma bir damla yağ koyun.
- Kayıt odasının Şekil 3 yuvasına poli-lizin kaplı lamel (Şekil 3a, üst parça, kırmızı dikdörtgen) yerleştirin ve bir mühür kolaylaştırmak için, Şekil 3a kırmızı ve mavi dikdörtgen arasındaki (tüm kenarlara boşluk vakum gres sürün. Vida yerine üst. kayıt teçhizat içerlek odasına yerleştirin.
- Pasteur pipeti kullanarak kayıt odasına Ringer çözeltisi ekleyin.
- Termoelektrik soğutma cihaz giriş hortumuna antifriz solüsyonu içeren basınç şişenin çıkış hortumunu bağlayın. OUTP bağlayınDış soğutma gömleği giriş ucuna ve hazne Şekil 3b'ye çıkış ucunda etmek üzere, termoelektrik bir soğutma cihazının ut boru.
- Kayıt bölümü içinde bir seferde omuriliğin bir parça yerleştirilir ve hafifçe aksonlar izole Şekil 2e ve 2f Şekil kadar Teflon kaplı forseps kullanılarak her zaman lamel boyunca onu korumak omurilik ayırın.
- Kayıt bölmesi Şekil 3b'de dış soğutma gömleği sayesinde, termoelektrik soğutma cihazı vasıtasıyla, (yer değiştirme ile) antifriz solüsyonu basınçlı (şişe içine itilir azot gazı) geçirilerek 10 ° C'ye kadar kayıt Çözelti oda sıcaklığına getirin.
- Aksonlar, 10 ° C'de 1 saat sonrası ayrılma kurtarmak için izin verin.
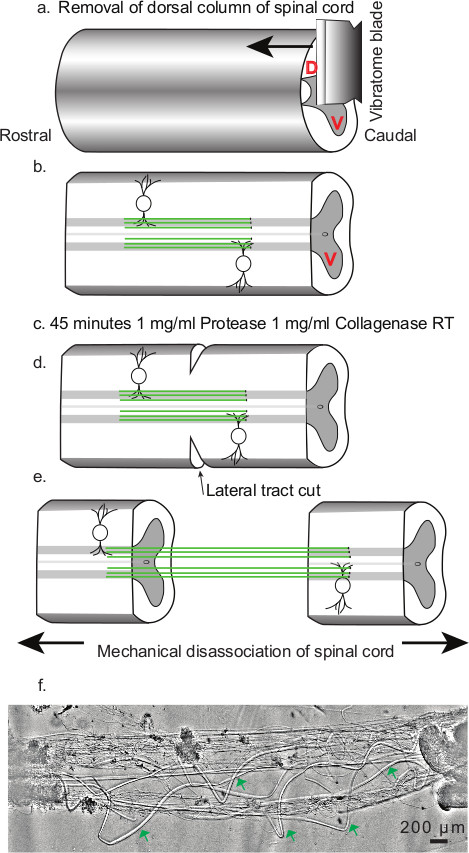
(A) dorsal kolon çıkarılması. Ok, doku dilimleme yönünü gösterir. Alfabe V (kırmızı yazı tipi renk) ventral boynuzu., (B), sırt kolon reticulospinal aksonlar maruz omurilik merkezi kısmı uzaklaştırılmıştır Dorsal boynuz (alfabe D (yazı tipi kırmızı renk) yeşil çizgileri işaretlenir ). Dilimleme işleminden sonra bozulmadan kalır ventral boynuz, alfabe V (kırmızı font color) ile işaretlenmiştir. (C) proteaz ve kollajenaz ile 45 dakikalık tedavi kokteyl (1 mg / ml) enzimleri. Yanal yolları (d) Kesme omurilik; konumunu, yönünü ve lateral kesim kapsamını gösteren. (e) spinal kord mekanik ayrışma. Oklar forseps ve ayrışma sırasında ayırma kuvvetinin yönü pozisyonunu göstermektedir. (F) representatiayrışmış reticulospinal akson hazırlama örneği ettik. Yeşil oklar hiçbir süreçler postsinaptik olmadan akut ayrışmış reticulospinal akson bölgelerini işaretlemek.
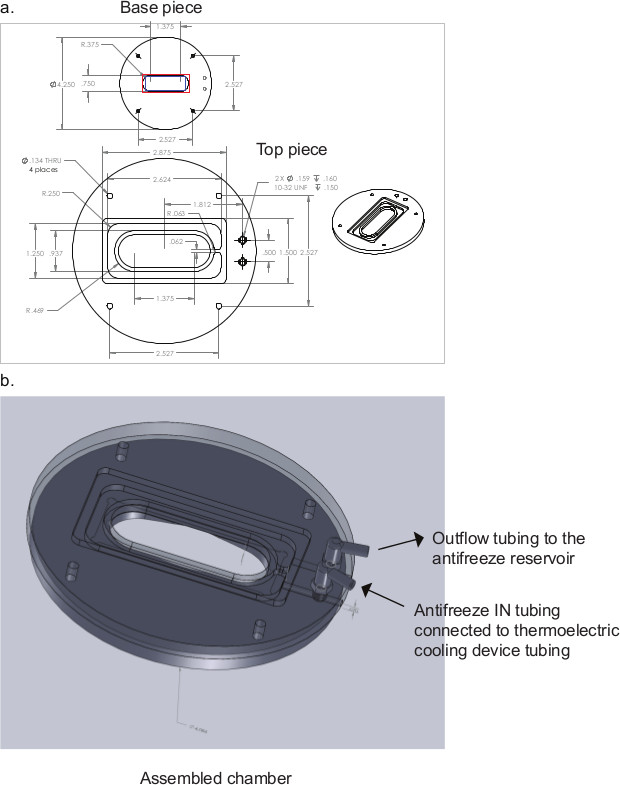
Sağlanan elektrofizyoloji deneyler için odasını kayıt Şekil 3. şematik. Boyutları inç vardır. Basepiece Şeması (A) 'da gösterilen kırmızı dikdörtgen basepiece içindeki lamel oluğa lamel konumlandırılmasını gösterir. Yüksek vakum yağ uygulanır, burada (a) basepiece şemada gösterilen kırmızı ve mavi dikdörtgen arasındaki bölgesidir. (B) toplanmış kayıt odasını göstermektedir.
FM 1-43 4. Etiketleme ve Presinaptik Terminalleri tanımlanması
- V içine FM 1-43 dahil ederek, presinaptik terminalleri Etiketyüksek K +, depolarizasyon sırasında sinaptik ekso-endositoz sırasında esicles. (30 mM KCI içeren 5 ml Ringer çözeltisi içinde) 5 uM FM 1-43 ile hazırlanmasını serpmek.
- 1 mg hazırlanmasını serpmek / ml Advasep-7 (5 mi Ringer çözeltisi içinde), fazla FM boya) 18 kaldırın.
- 15 dakika bir REMANT boya ve Advasep boşaltılmasında için Ringer solüsyonu ile hazırlanmasını serpmek.
- Standart protokoller kullanılarak fluoresans görüntüsü dijital CCD kamera ve görüntü toplama yazılımı micro-yapı ile birlikte bir ters flüoresan mikroskop 100 x yağ batırma objektifi (NA 1.25), Image.
- Şekil 4c ve Şekil 4d kayıt için hedef floresan etiketli presinaptik terminalleri tanımlayın.
İzole Reticulospinal Aksonlar 5. İmmünhistokimya
- Iki değerlikli iyon (Ca 2 + ve Mg 2 +), ücretsiz çanak iç satırının (Protokol bölüm 2.10.) DoldurunRinger çözeltisi.
- P-87 mikropipet çektirmenin yama pipetler Üretiyor. (Bir silikon boruya 0.89 mm emme ucuna bağlanmış bir mikro pipet ile iç çap kullanarak) bir yama pipet (1.5 mm dış çaplı cam) ve vakum kullanılarak poli-lisin içerlek bir ucunda dikiş yapıştırıcı küçük bir miktar.
- Protokol Bölüm 3, Şekil 2'de belirtildiği gibi. Aynı prosedür kullanılarak dağılımlarını yürütmek yüzeyine güçlü bir şekilde yapışması forseps ile yavaşça dikiş yapışkan ve basın omuriliğin bir ucunu. Içerlek diğer ucundaki dikiş tutkal bir damla koyun ve yavaşça aksonlar ayrışmış kadar omurilik germek ve dikiş tutkal üzerinde hafifçe sürükleyerek serbest omurilik ucunu yapışır. Nazik forseps ile bastırarak yerine sabitleyin.
- Değişim iki değerlikli perfüzyon düzenli Ringer solüsyonu ile Ringer solüsyonu boşaltın.
- Aksonlar 20 dakika sonrası dissoc kurtarmak için izin verin10 ° C'de iation.
- 20 dakika boyunca {fosfat tamponlu salin (PBS, (mM olarak) NaCl 137, KCl 2.7 Na 2 HPO 4 10, KH 2 PO 4 1.8, pH 7.4) içinde hazırlanan}% 4 paraformaldehit (PFA) içerisinde çözülmüş aksonlar düzeltildi. 0.2 uM bir şırınga filtreden geçirilerek kullanımdan önce PFA çözüm filtre.
- 10 dakika boyunca (PBS içinde), 0.1 M glisin perfüze PFA yıkayın.
- 10 dakika boyunca% 0.1 (PBS) Triton X inkübe edin.
- 20 dakika boyunca PBS ile perfüze edilmesi aşamalarını kapsamaktadır yıkayın.
- 4 ° C 'de 6 saat boyunca (PBS içinde),% 5 yağsız süt ile bloke edin.
- Ilgi VGCC primer antikor ekleyin (PBS içerisinde 1: 200 seyreltme) ve 4 ° C'de 20 saat boyunca inkübe edilir.
- 20 dakika boyunca PBS ile perfüze edilmesi aşamalarını kapsamaktadır yıkayın.
- 4 ° C'de 10 dakika boyunca (PBS içinde),% 5 yağsız süt ile bloke edin.
- Sekonder antikor ekleyin (PBS içerisinde 1: 400 seyreltme) ile, 4 ° C'de 2 saat boyunca karanlıkta inkübe edilir.
- 20 dakika boyunca PBS ile perfüze ile yıkayın.
- % 1 sığır serum ile bloke Albu'ya20 dakika boyunca (PBS içinde) Min.
- Alexa Fluor 488 falloidinle ekleyin (bir çalışma yoğunluğuna ul / 5 adet, metanol 200 birim / ml elde stoku).
- 20 dakika boyunca PBS ile perfüze ile yıkayın.
- Konfokal mikroskop 100X su daldırma lens kullanarak görüntü.
6. Elektrofizyolojik Kayıt
- P-87 mikropipet çektirmenin alüminosilikatlı cam yama pipetler (pipet direnci 2-5 M?) Üretiyor. Pipet tüm presinaptik terminali çapını kapsar şekilde tasarım yama pipet.
- PDMS 23 içine 50-60 psi basınç altına yama pipet batırarak kaplama PDMS yama pipetler (yama pipet arka ucuna bir azot gazı silindirine bağlanmış bulunan bir silikon boru, 0.89 mm iç çap, ekleyiniz) ve bir ısı ile kurutun silah. Alternatif olarak, bir bileşik mikroskop altında mümkün ucu kadar yakın kaplama uygulanarak PDMS ile elle ceket pipet.
- Bir MICR kullanarak yangın lehçe yama pipetleroforge (bileşik mikroskop sahneye takılan özel bir inşa platin filaman).
- Floresan mikroskobu ile etiketlenmiş presinaptik terminalleri gösteren izole aksonlar tanımlayın.
- Dolgu kayıt çözümü, bir şırınga kullanılarak Patch-pipetinin içine (Ca 2 + akımları izole etmek için tasarlandı yük taşıyıcı madde olarak, 10 mM CaCl2, 90 mM ya da BaCl 2, HEPES pH 7.6, 270 mOsm ozmolarite tamponlu).
- Motorlu bir manipülatör MP225 kullanarak yukarıda banyo pipet tutucu yerleştirin ve yama pipet takın. Yavaşça bir flüoresan tespit presinaptik yüzüne karşı banyosuna yerleştirin ve yama pipet indirin.
- Iletişim membran ile yapılır kadar yavaşça yama pipet Advance. Bu noktada, pipet tutucuya tutturulmuş bir boru yoluyla yumuşak ağız emme ile gigaohm sızdırmazlık sağlarlar.
- Bir A kullanmak, tek kanallı Ca 2 + akımları kayıt için gerekli son derece düşük arka plan gürültü düzeyleri elde etmek içinkayıtlar için bir soğutulmuş headstage ile xopatch 200B. 5 kHz Bessel filtresi kullanılarak 20-50 kHz ve filtresinde örnek verileri. Bir Axograph X kullanarak veri toplama yürütmek
- Uyarıcı olarak 10 mV artışlarla standart bir aşamalı bir protokol kullanın. Ca 2 + kanallarının maksimal aktivasyonunu sağlamak için, önceki aşamalı bir protokol, protokol ön darbe birleştirir. Kaçak akımlar sonrası analizi çıkarma için adım protokolü içine 10 mV sızıntı adımı birleştirin.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Bu ayrılma protokol verim sağlıklı ve fonksiyonel izole reticulospinal postsinaptik çıkıntılar Şekil2fde yoksun aksonları, ama yine de uyarılmış sinaptik vezikül ekzo-ve endositoz Şekil 4c ve 4d Şekil girebilen işlevsel presinaptik terminalleri muhafaza eder. Reticulospinal akson izole edilmiş bölgeleri bölümleri açık reticulospinal akson membran Şekil2fde serbest erişim sağlayan diğer herhangi bir nöronal işlemin açık olması için ışık mikroskobu ile te...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Bizim ayrışma protokol postsinaptik projeksiyonlar Şekil2fde yoksun izole reticulospinal aksonlarını veren tarafından önemli, ama yine de fonksiyonel presinaptik terminalleri Şekil 4c ve Şekil 4d muhafaza edilmektedir. Presinaptik terminale karşı süreçler postsinaptik yokluğu daha önce, merkezi sinapsların mümkün ve başarılı bir şekilde sadece iki kalisyel-tipi presinaptik terminallerde elde değil tek presinaptik terminallerde presinaptik bırakma yüz zarına doğrudan kay...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarların ifşa edecek herhangi bir rakip mali çıkarı veya başka çıkar çatışması yoktur.
Teşekkürler
Bu çalışma NINDS, RO1NS52699 ve SA'ya MH84874 tarafından desteklenmiştir.
Dr. Dave Featherstone'a (Biyoloji Bilimleri Bölümü, Illinois Üniversitesi, Chicago) immünohistokimya çalışmasında kullanılan dikiş yapıştırıcısını bize sağladığı için teşekkür ederiz. Michael Alpert'e yorumları ve el yazmasının redaksiyonu için teşekkür ederiz.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.2 ve mikro; m Şırınga filtresi | EMD Kırlangıç | SLGV004SL | |
| 22 x 60 mm Lameller | Fisherbrand | 12545J | |
| Advasep-7 | Cydex İlaç | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrojen/Yaşam Teknolojileri | A12379 | |
| Alexa-633 konjuge keçi anti-tavşan ikincil antikoru | Invitrogen/Life Technologies | A21070 | |
| Antifriz | Prestone | ||
| Borik asit | Sigma-Aldrich | B7660 | |
| Sığır serum albümini | Sigma-Aldrich | A7906 | |
| Parlak alan ışık kaynağı | Dolan-Jenner | Fiberlite 180 | |
| Kalsiyum klorür | Sigma Aldrich | C4901 | |
| Cloristridium Histolyticum'dan Kollajenaz Tip IA | Sigma-Aldrich | C9891 | |
| Kapak kayması | Fisher-Scientific | 12-545-J | |
| Dekstroz | , Sigma-Aldrich, | D9559 | |
| Dijital CCD Kamera | Hamamatsu | , C8484-03G01 | |
| Diseksiyon, ince forseps | Güzel Bilim Araçları | 91150-20 | |
| Diseksiyon, Forseps | Güzel Bilim Araçları | , 11251-20 | |
| Diseksiyon mikroskobu | Leica Biosystems | Leica MZ 12 | |
| Diseksiyon makası | Güzel Bilim Araçları | 15025-10 | |
| Diseksiyon makası ince | Güzel Bilim Araçları | 91500-09 | |
| Diseksiyon makası ultra ince | Güzel Bilim Araçları | 15000-08 | |
| FM 1-43 | Invitrogen/Yaşam Teknolojileri | T3163 | |
| Glisin | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| Yüksek vakumlu gres | Dow-Corning | ||
| Hidroklorik asit | Fisherbrand | SA-56-500 | |
| Daldırma yağı | Fisher-Scientific | M2000 | |
| Endüstriyel sınıf azot gazı tankı | Praxair | UN1066 | |
| Böcek pimleri | Güzel Bilim Araçları | 26002-10 | |
| Sıvı sütür tutkalı | Braun Veterinary Cair Division | 8V0305 | Deneylerimizde kullandığımız sütür yapıştırıcısı bize başka bir laboratuvar tarafından sağlandı. Artık üretilmiyor. Aesculap'tan ileride kullanılmak üzere bir Histoakril Sütür Tutkalı tedarik ettik (Ts1050071FP) |
| Magnezyum klorür | Sigma-Aldrich | M2670 | |
| Metanol | Sigma-Aldrich | 154903 | |
| Yağsız kuru süt | Hücre Sinyalizasyon Teknolojisi | 9999S | |
| P-87 Mikropipet çektirme Sutter | Aletleri | ||
| Paraformaldehit | Sigma-Aldrich | P6148 | |
| Perfüzyon pompası | Cole-Palmer | Masterflex C/L | |
| Petri kabı 100 x 15 mm | Fisher-Scientific | 875712 | |
| Petri kabı 35 x 10 mm | Fisher-scientific | 875712 | |
| Poli-D-lizin hidrobromür | Sigma-Aldrich | P1024 | MW > 300.000 |
| Potasyum klorür | Sigma-Aldrich | P9333 | |
| Potasyum fosfat monobazik | Sigma-Aldrich | P5379 | |
| Birincil antikorlar R-tipi kalsiyum kanalı | Alomone Labs | ACC-006 | |
| Streptomyces Griseus | Sigma-Aldrich | P5147'den | |
| Neşter bıçakları | World Precision Instruments | 500240 | |
| Schot Duran Basınçlı Şişe | Fisher-Scientific | 09-841-006 | |
| Tutkal uygulaması için silikon boru | Cole-Palmer | 07625-26 | |
| Dilimleme taban plakası | Leica Biosystems | 14046327404 | |
| Dilimleme odası | Leica Biosystems | 14046230132 | |
| Sodyum klorür | Sigma-Aldrich | S7653 | |
| Sodyum hidroksit | S8045 | ||
| Sodyum fosfat dibazik | Sigma-Aldrich | S9763 | |
| Sodyum tetraborat | Sigma-Aldrich | B3545 | |
| Sylgard 160 Silikon Elastomer Kiti | Dow Corning | SYLGARD® 160 | Hazırlamak için elastomer A ve elastomer B'yi ağırlıkça 10:1 oranında karıştırın |
| Sylgard 184 Silikon Elastomer Kiti | Dow Corning | SYLGARD® 184 | Hazırlamak için elastomer ve kürleme maddesini ağırlıkça 10:1 oranında karıştırın |
| Teflon kaplı forseps | Güzel Bilim Araçları | 11626-11 | |
| Trikain metansülfonat | Sigma-Aldrich | A5040 | |
| Vibratom bıçakları | Dünya Hassas Aletler | BIÇAKLAR | |
| Xenon lamba | Nikon |
Kaynaklar
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
