Bu yöntemi tetraploid ve triploid Caenorhabditis nematodlar diploit herhangi bir zorlanma nesil olanak sağlar. Bu yöntemle üretilen polyploid suşları segregasyonun profaz etkileşimlerde kromozom çalışma için kullanılan ve bu yöntem hücre, gelişimsel, evrim, ve kanser Biyoloji önemli temel sorular incelenmesi için yararlı olur.
Yöntem makalesi
Caenorhabditis elegans Ploitlik manipülasyon
Bu makalede
Özet
Özet
Tüm genom poliploidi dahil mekanizmaları geliştirme ve evrim önemli rol oynarlar; Ayrıca, tetraploid hücreleri anormal bir nesil kanser progresyon ve ilaç direnci gelişimi ile ilişkili olduğu düşünülmektedir. Şimdiye kadar kolayca çok hücreli bir hayvan Ploitlik çoğunlukla steril döl oluşturmadan işlemek mümkün olmamıştır. Sunulan tetraploid Caenorhabditis elegans oluşturmak için basit ve hızlı bir iletişim kuralı işte hayvanlar diploit herhangi bir zorlanma. Bu yöntem kullanıcının kromozom segregasyon sonuçta Ploitlik C. elegansiçinde artan mayoz sırasında içinde bir önyargı oluşturmasına izin verir. Bu strateji diploit gamet oluşturmak için rec-8 gen ifadesi geçici azaltılması üzerinde dayanır. Rec-8 mutant tetraploids döllenme üzerine potansiyel üretebilir diploit gamet oluşturur. Uysal bu düzeni tetraploid suşları mutasyonlar ve eþleþtirme ve synapsis mayoz sırasında kromozom dinamikleri ve etkileşimleri bir anlayış kazanmak için kromozom düzenlemeler taşıyan oluşturmak için kullanılmıştır. Bu yöntem kararlı tetraploid suşların genetik işaretler olmadan oluşturmak için verimli, diploit herhangi bir zorlanma için uygulanabilir ve triploid C. eleganstüretmek için kullanılan. Bu basit yöntem diğer temel biyolojik soru genom istikrarsızlık, gen dozaj, biyolojik ölçekleme, hücre dışı sinyal, adaptasyon stres, ilaçlar, direnç gelişimi için ilgili soruşturma için yararlıdır ve Türleşme mekanizmaları.
Giriş
Tüm genom poliploidi çapında doğa var ve çoğu zaman gerekli bir adım uyum, Türleşme, organogenesis, yara iyileşmesi ve biyolojik ölçekleme; Ayrıca kanser ve direnç uyuşturucu1,2,3,4,5,6,7,8, tanıtmak bilinmektedir 9 , 10 , 11 , 12. Tarım ve balıkçılık sanayi oluşturmak polyploid bitkiler, Balık ve kabuklu deniz ürünleri kimyasal arıtma (örneğin, safran ve orzalin) daha hızlı büyüme oranları ve hantal bitkileri ve Hayvancılık13, almak için 14,15. Deneysel ve verimsiz üretim tetraploids, fare ve Zebra balığı model sistemleri16,17için bulunmaktadır. Ancak, üretilen çoğu veya hepsi polyploid çok hücreli hayvanlar embryonically ölümcül ya da steril ve böylece çok hücreli bir organizma poliploidi etkileri üzerinde laboratuar çalışmaları için ideal değil. Sonuç olarak, tüm genom polyploidization çok hücreli organizmalarda herhangi bir anlayış için yakından ilişkili tür evrimsel son polyploidization olaylar18,19,20 sınırlı olmuştur . Biyolojik rolü sorguları veya polyploidization sonuçlarını ilerlemek için bir yolu C. elegans modeli sistemi kullanılır. Önemlisi, C. elegans normalde bir diploid var, sadece beş autosomes (A) ve bir cinsiyet kromozomu (X) başına genom içerir, saydam vivo biyolojik süreçler, müşahede sağlayan bir uysal genetik sistemidir ve 3-4 gün (yumurtadan cinsel olgun yetişkin) kısa bir ömrü vardır. C. elegans tüm genom doğada poliploidi en sık görülen tipidir bir tetraploid olarak çoğaltmak mümkün olduğu gösterilmiştir. Triploid hayvanlar ile diploitler, tetraploids kapısı tarafından oluşturulabilir ama onların Ploitlik istikrarlı değil ve suşların birkaç kuşak içinde diploit haline.
Son birkaç on yıl içinde sadece bir avuç uygun ve verimli C. elegans zahmetli ve suşların21,22, yalnızca sınırlı türde üretir bir strateji kullanarak laboratuvarda tetraploids suşların izole 23. bu strateji C. elegans tetraploids ısı-şok tedavileri tarafından muhtemelen genetik işaretler kullanarak sözde polyploid hayvanlar için bir tarama ardından gamet, kromozom segregasyon miktarını etkiler üretir. Bu tetraploids soruşturma değerini nasıl bu Yuvarlak solucanlar erkek veya hermafrodit olabilmek için son derece yararlı. Daha sonraki çalışmalar mevcut suşları synapsis düzenlenmesi bu nematodunun21,24,25,26mayoz sırasında gen doz ve büyüme araştırmak için kullanılır. Ne yazık ki, bu çalışmalar yeni tetraploid suşları ve arka plan genetik işaretler bulunan bu suşlar üreten zorluk Antlaşmasına neredeyse uygundu. Burada gösterilen bu synapsis düzenlenmesi sırasında mayoz27çalışmaya suşları üretmek için kullanılan istikrarlı tetraploids oluşturmak için bir basit ve hızlı iletişim kuralıdır.
Doğa olduğu gibi polyploidization tarafından diploid yerine haploit gamet oluşumu ortaya çıkabilir. Mayoz özgü cohesin bileşen mutant rec-8 diploit sperm oluşturur ve yumurtalar bu rec-8 gen knocking belirtilen bizim bulgu tetraploid döl (şekil 1)27üretiminde neden olur, 28,29. Tetraploid suşları üreten sadece mutant diploit gamet phenocopy rec-8 amacıyla iki kuşağın uyumu için RNA girişim (RNAi) tarafından rec-8 knocking içerir. Sözde polyploids kolayca belirlenebilir onların daha uzun tarafından normal vücut boyuttan daha küçük. Polyploids tam veya kısmi tetraploids kez kararlı hatları kurulan kromozomlar çekirdek başına sayılması tarafından onaylanır.
Burada açıklanan stratejisi herhangi bir ilk diploit genetik arka plan veya genetik işaretler kullanmadan karyotip istikrarlı tetraploid Caenorhabditis nematodunun suşları nesil sağlar. Bu iletişim kuralı daha verimli, çok yönlü ve daha önceden kullanılan düzeni basit olduğu için geliştirme, genom istikrar ve evrim çok hücreli temel süreçlerde polyploidization rollerini sorgulamak için gereken araçları genişleyecektir organizmalar. Bu protokol kullanımında sınırlama yalnızca öngörülebilir genetik geçmiş RNAi için dayanıklı mevcuttur.
Protokol
1. ayar kadar rec-8 RNAi (günde 1-3 Şekil 2)
Bu iletişim kuralı Kamath ve Ahringer30değiştirilir.
- Rec-8 dsRNA Escherichia coliifadede indüksiyon için Yuvarlak solucanlar büyüme orta (NGM) Ağar kaplamalar31 1 mM izopropil-β-D-2-thiogalactopyranoside (IPTG) ve 100 µg/mL nihai bir konsantrasyon ile desteklenmiş hazırlamak Ampisilin. 4 ° C'de karanlıkta kullanım için ilâ 4 hafta kadar saklayın.
- Rec-8 (W02A2.6) klon Ahringer laboratuvar Kütüphane30 rec-8 klon 100 µg/mL Ampisilin ve 50 µg/mL tetrasiklin takıma Luria suyu (LB) plakalar üzerine gelen taşıyan çizgi HT115 bakteri. Bir shaker 37 ° C'de gecede büyümek
- Gün 1'de, 4 mL LB içeren 100 µg/mL Ampisilin ve 50 µg/mL tetrasiklin rec-8 RNAi klon taşıyan HT115 E. coli bakteri taze çizgili tek kolonilerden tek kolonileri aşılamak. Bakteri kültürü bir Çalkalayıcı veya rulo davul 37 ° C'de gecede büyümek
- Ertesi sabah (gün 2), çift büklümlü (ds) RNA için rec-8 W02A2.6 1 mM IPTG son bir konsantrasyon ekleyerek ve 37 ° C'de 40 dk sallayarak HT115 bakteriyel kültür üretimi teşvik
- İndüksiyon sonra 100-200 µL HT115 rec-8 bakterilerin pilakalar NGM/IPTG tohum ve plakaları, oda sıcaklığında karanlık gecede (3. gün) depolamak.
- Ertesi sabah (4. gün), istenen nematodunun zorlanma indüklenen HT115 rec-8 bakteri plakaları için adım 2.1 açıklandığı gibi ekleyin.
2. oluşturma ve Yalıtma Tetraploids (günde 4-16 Resim 2)
- Gün 4, L4 (dördüncü larva) sahne hünsa NMG/IPTG plakaları istenen diploit yüklenmenize seribaşı önceki gün uyarılan olmuştu HT115 rec-8 bakteri ile 3-4 genç yerleştirin (1.5, yukarıda adım). Karanlıkta 15 ° C'de nematodlar büyümek.
- Üç gün önce bu adım ilk döl (F1s) L4s haline olacak adımları 1.3 ve 1.4 3 gün sonra adım 2.1, başlangıç yineleyin. Zamanlama bu adımın ne kadar hızlı bir yuvarlak yük 15 ° C'de büyür bağlıdır Diploit bir mutant suşları yavaş yetiştiricileri vardır ve bu zamanlama güzel tetraploids yalıtmak için ayarlama.
- Gün 8 (sonra 4 gün rec-8 RNAi beslenme tedavisinin), 20 (2 hünsa/Petri kabına) taze indüklenen HT115 rec-8 RNAi üzerine HT115 rec-8 bakteri yetiştirilen F1 (ilk anne babaya üretimi) L4 hünsa aktarmak ve izin Onları self-fertilize için.
- Alternatif olarak, HT115 rec-8 bakteriler taze yetiştirilen transferi 20 F1 L4 hünsa HT115 rec-8 RNAi bakteri ile birlikte aynı baskı (4-6 erkek/plaka ile 2 hünsa) tedavi edilmezse erkek indüklenen.
- Gün 13, uzun görünür döl için F2 (ikinci anne babaya nesil) tarama Başlat (Lon) veya genel olarak büyük vahşi türü; ardından tek tek Lon hayvanlar düzenli OP50 veya HB101 E. coli bakteri suşları üzerine aktarın. F3 (üçüncü anne babaya) döl eleme devam; Ancak, eğer onlar kurulan haline bağımsız suşları F3 döl aynı plaka kabul edilemez, çünkü onlar olabilir aynı kardeş zaten F2 anne kurmuştur.
Not: diploitler açıkça uzun oldukları için sözde tetraploids kolayca tanımlanır. Vahşi türü hünsa 2/3 tetraploids kısa olan. Uzun olduğundan, ileri sinüsoidal dalgalar vücut bükme başından kuyruğuna (şekil 3A) oluşturarak hareket ederken bir tetraploid vücut ilave bir dönüş yapar. - Lon solucan Self-fertilize ve rec-8 RNAi tedavi yokluğunda sadece döl Lon çocuğu kadar Lon döl seçerek yaymak izin verir. Bu iki ya da üç ek nesiller alabilir. Lon solucanlar kez steril ve döl verim değil.
3. doğrulama Tetraploid suşları (film 1 ve şekil 3A, B)
Not: Tetraploid suşları kromozomlar içinde onların döllenmemiş yumurta sayısını hesaplama tarafından doğrulanabilir. Floresan mikroskobu-ebilmek var olmak kullanılmış zorlanma kromozomlar floresan avans varsa (önce segregasyonun bölümler) döllenmemiş diploit yumurta kromozom çiftlerinin sayısı için ekran için. Floresan kromozom işaretleri yokluğunda tetraploid nematodlar nematodlar sabitleme ve DNA boya ile boyama tarafından taranması; etanol sabitleme ve bütün hayvan 4'için bir iletişim kuralı için aşağıya bakın 6-Diamidine-2 '-phenylindole dihydrochloride (DAPI) boyama.
- Bütün hayvan DAPI boyama
Not: Tetraploid suşları 12 bağlı kromozom çiftleri taşıyan bu hayvanlar boyama ve onun döllenmemiş yumurta DAPI organları sayılması DAPI tarafından doğrulanabilir.- Yer 5-10 µL M9 arabellek31 mikroskop slayt, ardından açılan için 6-10 nematodlar aktarın.
- Diseksiyon mikroskop altında hav bırakmayan bir temizlik dokusuyla nematodlar kaldırmadan damla--dan M9 çoğunu çizin. Daha sonra hemen % 90 etanol solucanlar üzerine bir 10 µL damla ekleyin. Tamamen, ama için Kuru solucanlar artık birkaç saniye izin ver.
- En kısa zamanda etanol buharlaşır (diseksiyon mikroskop altında böyle olduğundan bu görülebilir), ek bir 10 µL % 90 etanol solucanlar üzerine ekleyin.
- 3.1.3 üç kez daha yineleyin.
- Bir kez etanol son damla buharlaşıp vardır, DAPI veya Höchst boya 6 µL seçim (örneğin, bir 2 ng/µL DAPI hisse senedi konsantrasyon M9 içinde 1:1,000 seyreltme) önerilen son konsantrasyonu montaj medya ekleyin. %0,5 p-boya 20 mM Tris-HCl, pH % 90 gliserol antifade çözüm olarak 8.8, yerine sadece, M9 içinde çözünmüş slaytları uzun süreli depolama için kullanılır.
- Solucanlar bir coverslip ile slayt üzerinde kapak ve coverslip tırnak cilası ile kenarlarını kapatın. Floresan mikroskop (Adım 3.1.7) puanı en az 10 dk coverslip ekledikten sonra. Slaytlar antifade olmadan puanlama birkaç gün 4 ° C'de depolanabilir, ancak Floresans kalitesini birkaç gün sonra azalmaya başlar.
- 100 X büyütme oranında floresan mikroskop kullanarak Puan edinildi tek DAPI organları (muhtemelen tek kromozom çiftleri) sayısı için spermatheca hemen bitişik olan ve henüz spermatheca girmedi en olgun döllenmemiş yumurta içinde ya da Rahim.
- Bireysel DAPI organları içinde bir oosit çekirdeğe puanı için mikroskop'ın iyi odak yavaş yavaş oosit çekirdeği tepesinden sayım sırasında altına taşımak için kullanın. Sonra aynı çekirdek odağı (Yani, alt üst çekirdeği) ters yönde DAPI organları sayılan sayısını onaylamak için hareket ederken anlattıklarında.
- Her birinde en az on hünsa istikrarlı Lon zorlanma başına iki gonads en olgun döllenmemiş yumurta puan. Vahşi türü yumurta 6 DAPI organları üzerinde ortalama, 5 autosome çift ve seks kromozom çifti var. Bu zorlanma hayvanlarda kısmi (Autosomes, 3 X-chromosomes 4 setleri) ya da (4 takımları Autosomes, 4 X-chromosomes) çoğu yumurta 12 DAPI organları istikrarlı Lon suşlarının olduğunu gösteren tetraploids.
- DAPI organları zorlanma başına birden çok (en az 10) yumurta dan gözlenen ortalama sayısını hesaplayın. Bazı kromozom çiftleri dokunaklı ya da sağ üst kısmında bir başka DAPI sayısı bir oosit organları bu yüzden genellikle kromozom çiftleri gerçek sayısından daha küçük olduğunu.
- (İsteğe bağlı) Daha fazla istikrarlı Lon suşları DAPI organları ortalama sayısı 12 tam (4A, 4 X) veya kısmi (4A, 3 X) olup test etmek için nerede doğrulamak kromozom eksen proteinler HTP-332gibi karşı boyama ayirt tarafından tetraploids. Bu boyama kromozom çiftleri bağlanmamış kromozomlar kısmi tetraploid mevcut tek bir haç desen göstererek ayıracaktır.
Sonuçlar
Rec-8 segregasyonun Cohesin bileşeni işlev sonuçlarında diploit gamet bozulma:
Cohesin bileşeni mutant rec-8 segregasyonun yapılanması Imaging sperm ve yumurta tetraploid hayvan (şekil 1)27,29,33oluşturmak için olası mekanizmaları ortaya koydu. Mechanistically, rec-8 mutant sperm ve yumurta segregasyonun bölümü kusurlarý farklıdır; Ancak, hem erkek hem de dişi diploit gamet rec-8 mutant tarafından üretilmektedir.
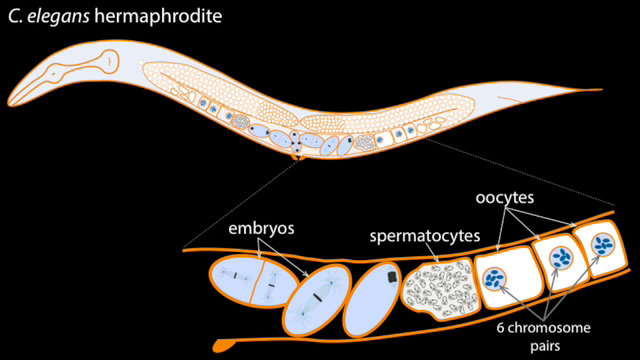
Vahşi türü mayoz, homolog kromozomlar geçici olarak birbirine crossover rekombinasyon tarafından bağlı olmak ve ilk segregasyonun bölümü bir birim veya bivalent (şekil 1A) olarak girin34. İlk bölümü sırasında ise uzak bir başka homolog kromozomlar (homologs) ayırmak kardeş her homolog chromatids kalır birlikte kadar ikinci bölümü. Kromozom segregasyon desen kadın ve erkek gamet aynı olsa da, spermatocyte bölümler simetrik ve özel sitokinez tabi oosit bölünmeler asimetrik olanlardır. Her bölümde, oosit bölümü ürün yarısı küçük bir kutup gövde atar. Böylece, her oosit öncü bir tek haploit oosit ve iki kutup organları (şekil 1B, C)35artış sağlar. Bunun tersi olarak, bir tek spermatocyte habercisi yükselişi için dört işlevsel spermatids iki simetrik bölümler geçiren tarafından verir. İkinci bölümü dört spermatids kapalı kalan bir vücuttan tomurcuklanma ile culminates. Desen ve spermatids sayısı belirlenir centrosomes36tarafından bu sitokinez özel olmamasıdır.
Rec-8 mutant gamet habercisi, crossover rekombinasyon homolog kromozomlar arasında yer almaz ve homologs bir bivalent ilk segregasyonun bölümü29,34başında olarak bağlı değil. Onlar vahşi tip gametler içinde olduğu gibi her homolog kardeş chromatids uzak bir başka ikinci bölümü kadar kalan yerine ilk bölümü ayırmak. Nispeten normal sitokinez (şekil 1B- spermatocytes geçmesi ise sitokinez geçmesi yumurta başarısız ilginçtir, rec-8 mutant fenotip ikinci bölümü sırasında kadın ve erkek gamet farklı olmamasıdır F) 27 , 28 , 29. diploit yumurta ortaya da ikinci bölümde onlar kromozom segregasyon ve sitokinez başarısız olmaları nedeniyle, bu nedenle onlar ikinci kutup vücut (şekil 1B, C) yükseltme değil. Rec-8 germlines spermatocytes spermatid tomurcuklanma veya sitokinez tabi ama kez kromozom diploit spermatid ve Kromatin eksik bir spermatid vermeye spermatids biri için her iki kümesini ayırmak (şekil 1 d- F)27. Kromatin eksik rec-8 sperm oranı miktar şekil 1Fiçinde gösterilir.
Rec-8 mutantlar kadın ve erkek diploit gamet oluşumu bu mutant fenotip potansiyel tam genom tetraploid suşları oluşturmak için kullanılan olabilir önerdi.
Tetraploid C. elegans suşları nesil:
Geçici RNAi29,37tarafından rec-8 knocking tarafından oluşturulan tetraploid suşları rec-8 gen bir mutasyon varlığı önlenebilir. Bu gibi rec-8 mutantlar29,37RNAi işleviyle rec-8 azalma artış tüm genom tetraploid hayvan için potansiyel olarak verebilir diploit gamet oluşturmak istiyorsunuz varsayar. Bu iletişim kuralı için temel rec-8 mutantlar hem diploit gamet ortaya çıkmasına ve makul sayıda genç, aneuploid gamet ve çoğunlukla steril veya embriyonik/larva için ölümcül ortaya çıkmasına diğer segregasyonun mutantlar aksine efendim olmasıdır.
Birden fazla tetraploid suşları rec-8 dsRNA (bkz: iletişim kuralı, Şekil 2ve Tablo 1) iki stratejiden birini kullanarak ifade C. elegans bakteri besleme tarafından oluşturulan27. Tetraploids tarafından kendi kendine Gübreden hünsa Petri yemeklerinde iki ya da üç nesiller için rec-8 dsRNA ifade bakteri ile oluşturulabilir. Hermafrodit taze yerleştirilir bu strateji tarafından yapılan rec-8 RNAi plakaları ve onun soyunu taze indüklenen rec-8 RNAi ifade bakteri ( protokolübkz:) ile yeni plakalar üzerine daha sonra birkaç gün transfer. Buna ek olarak, tetraploids rec-8 dsRNA Petri yemeklerinde aynı genotip tedavi edilmezse erkek rec-8 dsRNA ( ifade bakteri ile ifade bakteri beslenen hünsa ilk nesil kapısı aracılığıyla oluşturulabilir Şekil 2). Bu durumda, çapraz erkeklerde rec-8 RNAi bakteri L4 Sahne Alanı'ndan itibaren çiftleşme sırasında maruz kalır. Her iki düzenleri tetraploid hayvan27için neden olmaktadır. Tablo 1 tetraploid suşları burada sunulan düzeni kullanılarak elde gösterir. Triploid ve tetraploid C. elegans diploitler boyutu büyük, ama triploid suşları kararsız ve tetraploid suşları nispeten istikrarlı22,23ise bir ya da iki generations diploit olma eğilimindedir. Sözde tetraploid suşları sadece Lon döl (şekil 3A) çocuğu özgün baskı (Lon) hünsa daha büyük olarak tespit edilmiştir. Lon hayvanlar kolayca tanımlanır - vahşi türü diploit hayvan üçte ikisi tetraploids uzunluğu ve vücutlarını ileri sinüsoidal hareketi (şekil 3A) sırasında fark edilebilir bir ilave bend yapmak değil.
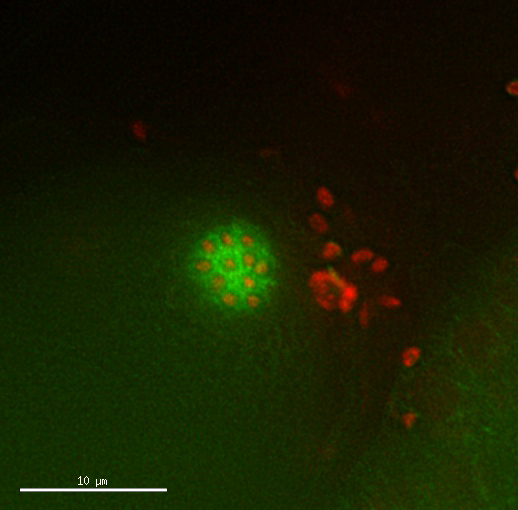
Tetraploid suşları 12 yumurta içinde altı kromozom çiftleri diploit hünsa (şekil 3B, Cve film 1) için yumurta içinde karşılaştırıldığında tetraploid hünsa çift kromozom varlığı için tarama tarafından teyit edildi.
Tetraploid sınıflar:
İki tür tetraploid hünsa tespit edildi: diploit hünsa diğeri benzer frekanslarda bir çocuğu erkek çocuğu erkek çok daha yüksek frekanslarda (Tablo 1). Bu iki tür tetraploid hünsa üreten sınıf yüksek frekanslarda erkeklerin ise üreten sınıf Frekanslar diploit erkekler benzer tüm onun kromozom için (4A, 4 X), tetraploid farklıdır gösterilmiştir autosomes ama triploid kromozomal (4, 3 X) için için tetraploid hünsa. Tetraploids daha sonra sınıf stabildir ve 4A, 3 X hünsa ve 4A, 2 X erkek üretmek.
Tetraploid suşları daha yavaş büyür ve damızlık boyutta önceki yöntem22,23ile oluşturulan suşları için görüldüğü gibi onlar, elde edilmiştir diploitler göre üretmek. Madl ve Herman22 önerilen tetraploid suşları ölü embriyo artan oranda oosit anöploidi nedeni olabilir, ancak tetraploid suşlarının yüzeysel muayene yeterli düzeyde olmadığını göstermiştir yüksek sayıda aneuploid Yumurtalar ne anormal yumurta veya damızlık boyutu (Movie 2ve şekil 3 c, D) gözlenen azalma hesaba spermatocyte bölümler.
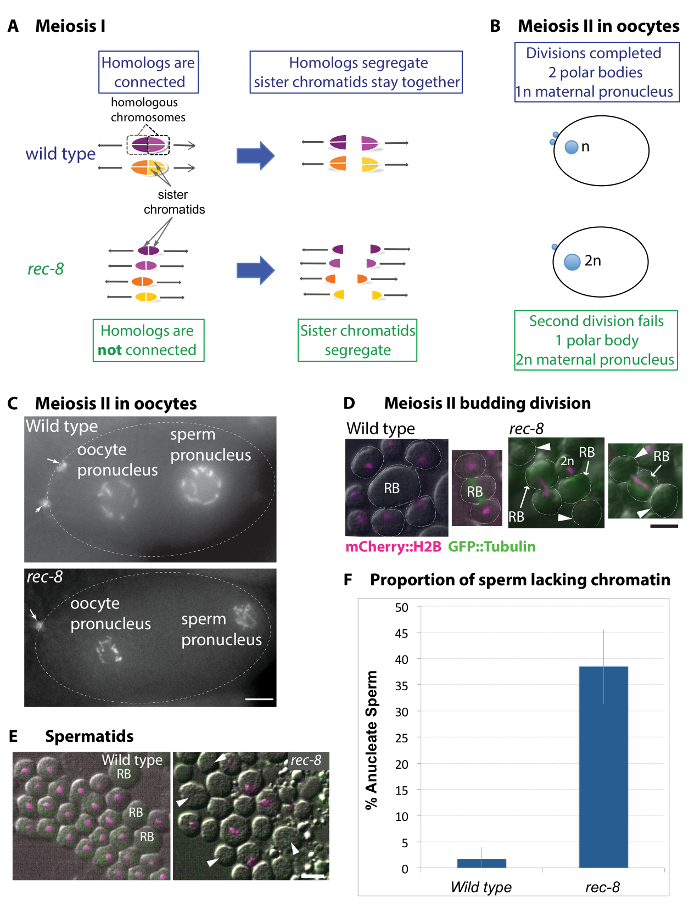
Resim 1: Rec-8 mutant Gametogenesis istikrarlı polyploid lekeleri oluşturmak için olası mekanizmalar ima ediyor. (A)diyagram vahşi türü ve rec-8 mutant segregasyonun bölünmeler kromozom organizasyon ve segregasyon desen. Vahşi türü mayoz homolog kromozomlar ilk segregasyonun kategorisinde ayırın. Kardeş chromatids her homolog aynı Milli direk doğru yönlendirmek ve birlikte ikinci bölümü kadar kalır. Rec-8 mutantlar, homologs kesişim oluşturmaz ve böylece takılmamıştır. Buna ek olarak için vahşi türü, chromatids uzak bir başka yönlendirmek ve ilk segregasyonun bölümde ayrı rec-8 kız kardeşi. Vahşi türü ve mutant yumurtalar kadın pronucleus ve haddelenmiş kutup organları (erkek pronucleus değil tasvir) gösterilen (B) diyagramı. Vahşi türü yumurta, iki kutup ceset ekstrüzyon içinde iki asimetrik segregasyonun bölünmeler neden. Rec-8 mutantlar ancak diploit bir oosit sonuçlanan ikinci kutup vücut ekstrüzyon başarısız olur. (C) görüntülerini vahşi türü ve rec-8 mutant yumurta mCherry::histone H2B ifade. Oklar, vahşi türü oosit iki kutup gövdelerinde ve rec-8 mutant birinde gösterir. Ölçek çubuğu 5 µm. (D ve E) canlı görüntüleri spermatids mCherry::histone H2B (macenta) ifade vahşi türü ve rec-8 mutant hayvanlar üzerinden olduğunu. Ok uçları anucleate spermatids gösterir. Ölçek çubuğu (tomurcuklanma) lig vahşi türü ve rec-8 mutant geçiren 2 µm. (D) Spermatocytes olduğunu. Vahşi türü spermatocytes simetrik bölümler dört tomurcuklanma spermatids, her bir haploit kromozom tamamlayıcı ile sonuçlanan tabi. Rec-8 mutant spermatocytes, kromozom ayrımı da ikinci bölümde bozulmuş. En sık Kromatin tek bir kitle spermatids ikinci segregasyonun bölümü kalıntı vücuttaki (RB) veya bir iki kız kardeşi kalır. Bu anucleate rec-8 mutant sperm (ok uçları tarafından belirtilir) veya diploit sperm açmaktadır. (E) canlı görüntüleri sonrası erken spermatids vahşi türü ve rec-8 mutantlar fark girişim kontrast (DIC) ve floresan mikroskopisi kullanılarak görüntülenir. Vahşi türü spermatids tüm benzer Kromatit kitleler var. Rec-8 mutant spermatids anucleate sperm oluştururlar. (F) miktar vahşi türü ve rec-8 mutant anucleate sperm. Rec-8 mutantlar anucleate sperm vahşi yazın daha az % 1.6 karşılaştırıldığında % 38.5 üretti. Fisher'ın tam test bir rec-8 mutant anucleate sperm (p ≤0.0001) vahşi türüne göre anlamlı olarak daha yüksek insidansı sahip olduğunu gösterir. Hata çubukları standart sapmalar gösterir. Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
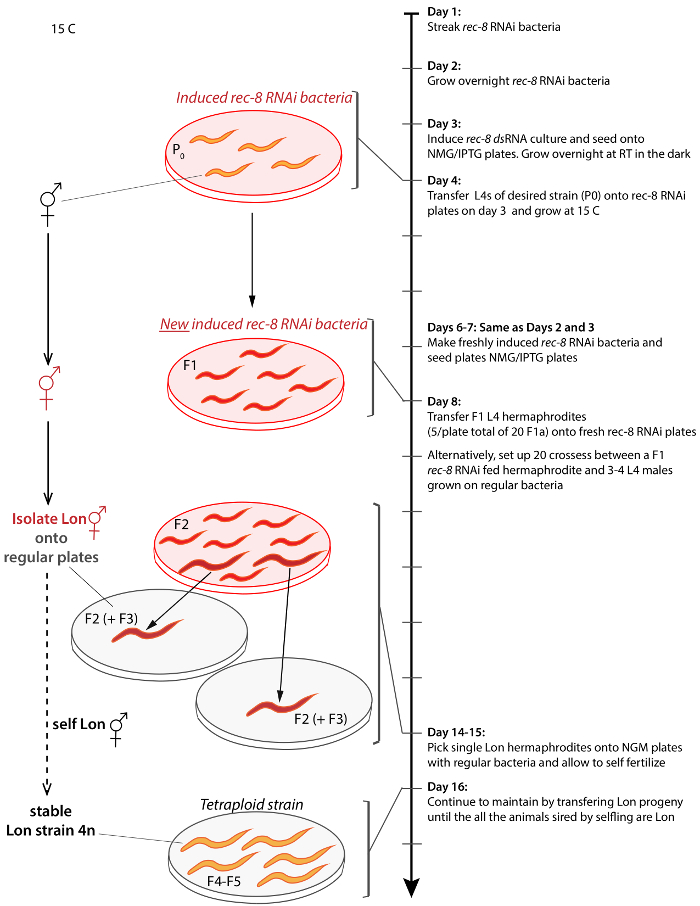
Resim 2: oluşturma ve Yalıtma tetraploid C. elegans herhangi bir zorlanma düzeni. Sağındaki oku zaman çizelgesi gün 1'den başlayarak ve gün 17'ye ilerliyor Protokolü'nün temsil eder. Geçiş hünsa gün 9 tedavi edilmezse erkekler için benzer sonuçlar elde edilebilir. Parantez bir adım tasviri çizelgesine bağlanın. Tedavi edilmemiş hayvan turuncu, kırmızı tedavi hayvanlardır, boyutu büyük Lon hayvanlardır, şeffaf pilakalar ve kırmızı arka plan şeffaf ve düzenli OP50 bakteri tasvir gibi şeffaf gri bakteri ifade rec-8 dsRNA tasvir edilir arka plan tabaklar. Yordam 15 ° C'de aksi belirtilmedikçe yapılır. Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.

Şekil 3: Tetraploid örnekler. (A)parlak alan görüntüsünü bir tetraploid (MSC2) hayvan ve diploit zorlanma (AV740) elde edildi. Tetraploid C. elegans diploid daha genel olarak daha büyük ve daha uzun (Lon) vardır. Vücut büyüklüğü bu farklılığı hareketli tetraploid gövdesini ek bir sinüs eğrisi sonuçları ve tetraploid türevleri için ekran için ölçüt olarak kullanılabilir. Ölçek çubuğu 0,1 mm. (B, C) floresan diploid (AV740) ve görüntülerini tetraploid (MSC1) en olgun döllenmemiş yumurta nulcei, önce segregasyonun bölümler var. İkincil tarama kurulan Lon suşlarının, Mcherry::H2B ve GFP::β-tübülin germline içinde ifade bir MSC1 zorlanma için film 1 gösterildiği gibi döllenmemiş yumurta içinde kromozom çiftlerinin sayısı gözlemci tarafından gerçekleştirilir. Ölçek çubuğu genellikle normaldir mayoz tasvir tetraploid oosit segregasyonun yapılanması zaman atlamalı (Movie 2) üzerinden 5 µm. (D) resim var. Ok uçları kutup ceset işaretlemek ve noktalı bir çizgi spermatheca içinde yumurta korteks işaretler ve sperm tarafından çevrili; t = zaman dakika içinde lapsed. Ölçek çubuğu var. 10 µm Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
| Genotip | Tetraploid türev (ayarlar Autosomes: # X-chromosomes) * | Ebeveyn zorlanma (diploid) |
| meIs16 [pasta-1p::mCherry:: O'nun-58 + unc-119(+)]; | MSC1 (4A:4 X) | MSC0 |
| ruIs57 [pasta-1p::GFP::b-tübülin + unc-119(+)] | MSC2 (4A:3 X) | |
| MSC3 (4A:4 X) | ||
| MSC5 (4A:3 X) | ||
| MSC6 (4A:4 X) | ||
| MSC8 (4A:4 X) | ||
| UNC-119(ed3) III; ddIs6; ddIs6 [tbg-1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; pasta-1p::mCherry::HIS-58 + unc-119(+)] IV | MSC14 (4A:3 X) | TMR17 |
| MSC15 (4A:3 X) | ||
| MSC16 (4A:4 X) | ||
| DPT-11 (me44) / nT1 IV; +/ nT1 [qIs51 [myo-2::gfp Ppes-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [pasta-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [pasta-1p::mCherry:: O'nun-58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [pasta-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; IV) | AV826& | AV695 |
| mIn1 [dpy-10(e128) mIs14 [myo-2::gfp pes-10::gfp]] / | AV810& | DR2078 |
| Bli-2(e768) unc-4(e120) II | ||
| ruIs32 [pasta-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. briggsae - mfIs42 [Cel-sid-2 + Cel-myo-2::DsRed] | AV824& | JU1018 |
Tablo 1: oluşturulan Tetraploid suşları. * Erkek çocuğu oranının yanı sıra segregasyonun bölümler önce yumurta sayısı bivalents (bağlı homolog çiftleri) ve univalents (bireysel homologs) puanlama tarafından çıkarılabilir.
Film 1: tarama istikrarlı Lon suşları tam olup veya kısmi tetraploids onaylamak için. Bölge vurgulayarak vahşi türü cinsiyetli bir diyagram ile film başlar (döllenmemiş yumurta) kromozom çiftleri sayarak tetraploids tanımlamak için görüntüsü. Aşağıdaki diyagramda, Z-yığın film ve tahminler bir dizi gonads diploit ve tetraploid hayvan sabit ve lekeli DAPI gösterme veya Mcherry::H2B Histon ifade suşları görüntülerini canlı. Tarama döllenmemiş yumurta bağlı homolog kromozom çiftleri sayısını sayarak yapılır. MCherry veya DAPI sayım lekeli organları yapılıyor döllenmemiş yumurta spermatheca ("-1 yumurta") depolama sperm yakın. Bu yumurta içinde kromozomlar en yoğun ve birbirinden ayrılmış sayıları daha doğru homolog çiftleri için izin. Zorlanma başına 10'dan fazla hayvanlar-1 yumurta kromozom sayıları doğru olduğunu emin olmak için gösterildi. Yığın kalınlığı 0.2 µm. burayı tıklayın bu videoyu izlemek için olduğunu. (İndirmek için sağ tıklatın.)
Movie 2: Tetraploid oosit bölümler normal görünür. Zaman atlamalı oosit tetraploid zorlanma Mcherry::H2B Histon ve GFP::β-tübülin ifade bölme. Zamanlama ve bölünmeler paterni normal görünüyor. Her 2.5 dk. lütfen çekilen görüntüleri bu videoyu izlemek için tıklayınız. (İndirmek için sağ tıklatın.)
Tartışma
Haploit (n) gamet üretim gübreleme, diploid (2n) zigot oluşturma anahtarıdır. Bu azalma genom kopyası bir tek genom tekrarından sonra iki ardışık hücre tümen ile mayoz sırasında gerçekleştirilir. Haploid oluşturmak için gamet, C. elegans, ile en diğer metazoans gibi maternally ve paternally-kaynaklı homologs ilk bölümünde ise ayırmak chromatids her homolog dan ayırmak da ikinci bölümde kardeş. Bir şekilde o tüm genom poliploidi doğada doğar yarım genom büyüklükleri mayoz sırasında başarısız gamet nesil geçer.
Bu o tetraploid 50 yılı aşkın zamandır C. elegans nematodlar uygun ve verimli. Nigon23ve daha sonra Madl ve Herman22, oluşturulan ve C. elegans tetraploids bir avuç segregasyonun kromozom segregasyon kesintiye tarafından tanımlanan ve ısı-şok tedavileri kullanarak genetik işaretler, anılan sıraya göre. Tek bir ek C. briggsae tetraploid zorlanma elde edilen 30 yılı aşkın bu iletişim kuralını kullanan daha sonra24. Bu tetraploids nasıl C. elegans belirlemek olup erkek veya hermafrodit, büyüme ve boyut Ploitlik düzenleyen nasıl olmak ve eþleþtirme ve mayoz25,26, synapsis çözümlemek için araştırmak için kullanılmıştır 38 , 39 , 40. henüz bunlar ve belirli tetraploids veya triploid suşları kullanımı gerektiren diğer çalışmalarda bu yöntemle tetraploid suşları üreten zorluk Antlaşmasına neredeyse uygundu.
Burada açıklanan protokol istikrarlı tam 4A, 4 X nesil sağlar ve kısmi 4A, 3 X tetraploid Caenorhabditis nematodunun suşları herhangi diploit genetik arka plan ilk veya genetik işaretler kullanmadan karyotip.
Tetraploidy C. elegansbir mekanizma daha tarafından ortaya çıkabilir:
Madl ve Herman onlar büyük olasılıkla oluşturulan tetraploid suşları triploid bir ara durumundan türetilmiş önerdi. Onların suşları seçim birden çok kuşaklara veya sözde triploid diploit erkek22ile ara geçiş yoluyla elde edilmiştir. Ekranlarda verir yükselişi diploit yumurta ve sperm için rec-8 mutantlar bölümleme kromozom bulunan başka bir olası mekanizma hangi rec-8 ile RNAi düzeni27tetraploid hayvan çıkabilecek öneririz.
Rec-8 tedavi RNAi hünsa diploit yumurta ve döllenme üzerine tetraploid hayvan çıkmasına spermatocytes üretmek olabilir. Klonlanmış F2 hünsa bazıları artış istikrarlı Lon suşları için öneriyor sonraki nesilde klonlanmış Lon F2 hünsa verdiğini bu imkanı ile tutarlıdır zaten tetraploid nerede. Geçişi düzeninde rec-8 tedavi RNAi hünsa ilk nesil tedavi edilmezse erkek ile geçti. Diploit spermatocytes hala haç rec-8 dsRNA ifade bakteri varlığında yapılır ve böylece, erkeklerde en az 3 gün boyunca çiftleşme sırasında rec-8 ' e RNAi maruz kalır çünkü erkeklerde çıkabilecek. Bu nedenle, Lon polyploids cross-fertilizing düzeni de diploit yumurta döllenme diploit sperm tarafından oluşmuş. İstikrarlı tetraploid suşları ya döllenme diploit gametler arasında veya değişken Ploitlik yumurta haploit sperm üreten diploit hayvanlarla içeren triploid hayvanlar trafik kavşağından ortaya çıkabilir.
Dikkat edilmesi gerekenler:
Öz-karşılıklı etkileşimlere düzenleri karşı:
Rec-8 RNAi kendi kendine gübreleme düzeni F1 hünsa tedavi ve tedavi edilmezse erkekler tedavi hünsa in içeren düzeni doğuran 4A, 4 X ve 4A, 3 X tetraploid suşları. Daha fazla polyploids kendi kendine Gübreden düzeninden başlangıçta izole olmasına rağmen polyploid bu hayvanların daha fazla steril ve dolayısıyla her iki düzenleri tetraploid istikrarlı suşları üretir benzer şekilde verimli. Artan başarı ve kendi kendine Gübreden düzenindeki kısırlık nedeni bilinmemektedir. Her iki düzenleri benzer şekilde verimli olmasına rağmen kendi kendine Gübreden düzeni bu çiftleşme için erkek yalıtım gerektirmez gibi daha kolay olur. Buna ek olarak, faiz suşu verimsiz veya çiftleşme, hatalı olduğunda, kendi kendine Gübreden düzeni tercih olacaktır. Cross-fertilizing düzeni tek bir kromozom ikiden fazla sürümlerini içeren karmaşık tetraploids üretmek için kullanılabilir.
Değişiklikler ve sınırlamalar:
Şu anda, bu iletişim kuralı dsRNA için rec-8 gen ifade bakteri besleyerek rec-8 RNAi tedavi gerektirir. Böylece, bu iletişim kuralını Caenorhabditis türlerin RNAi için yanıt vermeyen besleme ya da mutantlar RNAi çevresel veya sistemik formada doku41,42,43arasında arızalı does değil iş. Bu sorun büyük olasılıkla RNAi tedavi ilgi dsRNA direkt enjeksiyon tarafından doğrudan germline tanıtarak çözülmüş olabilir.
Triploid hayvanlar bu düzeni istikrarlı triploid suşları44,45oluşturmaz çünkü onu türetildiği, diploit bir hayvan için bir tetraploid crossing tarafından oluşturulan gerekir. Yumurta sadece % 15 triploids kapağı tarafından çocuğu ve onların döl çoğunlukla steril döl anöploidi nedeniyle vardır. Ayrıca, kaç hayatta kalan verimli döl birkaç kuşak içinde tam ya da diploitler olma eğilimindedirler. Yumurtalar kısmen Trizomi ilk segregasyonun bölümü kutup vücuda üçüncü kromozom yavru tarafından düzeltmekte olduğunuz bu büyük olasılıkla, en azından kısmen, çünkü.
Bir aşılamaz bu protokolü bu bileşenleri RNAi makine RNAi tedavi46için dayanıklı oldukları için etkileyen mutant tetraploids yapmak için işe yaramazsa kısıtlamasıdır.
Sorun giderme:
Rec-8 RNAi:
Birkaç değerlendirmeler bu iletişim kuralı için başarılı olmak büyük önem taşımaktadır. İlk indüksiyon rec-8 (W02A2.6) klon taşıyan bakteri HT115 bakteri rec-8 dsRNA üretim için taze IPTG ve taze yapılmış IPTG NMG plakaları kullanmaktır. IPTG ışığa duyarlı ve hafif levha azaltmak önemlidir. IPTG plakaları için karanlıkta 4 ° C'de bir ay saklanabilir. İkinci olarak, rec-8 (W02A2.6) RNAi bakteriyel HT115 suşlarının Ahringer Library (Kamath ve Ahringer 2003) diğer kullanılabilir rec-8 ' den daha güçlü bir rec-8 fenotip HT115 klonlar vermiştir.
Tetraploid zorlanma bakım:
Tetraploid suşları çok yavaş büyür ve üretimi47başına en az 50 ettiklerinizden üretmek. Tüm tanımlı tetraploid suşları nispeten sabit, ama yıkmak ve diploit ne zaman (Jonathan Hodgkin kişisel iletişim ve yayınlanmamış gözlemlerimiz) vurguladı olmak. Bu nedenle, bu tetraploid suşları 25 ° C'de, ısı-şok, hasret, yetiştirilen veya dondurulmuş ve fetişlerin, onlar hızla diploidy için bu suşlar defrost Lon hayvan almaya devam etmek önemlidir bu yüzden ya da ne zaman dönebilirsiniz unutmamak önemlidir Bu suşların dönmek neden olabilir stresli koşulların ortaya.
Olası uygulamaları:
Etkisinin araştırılması veya tüm genom polyploidization evrim, hücre döngüsü, gen ekspresyonu ve çok hücreli organizmalar gelişiminde rolü arasında karşılaştırmalar dayanıyordu: farklı Ploitlik, aynı hücreyi içeren hücreleri bir canlı türlerinde yakından farklı Ploitlik bu türe veya evrimsel son polyploidization olaylar ve fiziksel izolasyon3,5,6,7,8 uğramıştır türler ile ilgili ,11,18,19,20,48,49,50. Tetraploids Zebra balığı ve fare modeli sistemlerden elde edilebilir olsa da, onların döl steril veya embryonically öldürücü16,17yaşındasın. Buna ek olarak, bu model sistemleri uzun ömürleri C. elegans, için karşılaştırıldığında var ve karmaşık ve verimsiz polyploid hayvanları üretmek için kullanılabilir yöntemleri. Bu nedenle, bu yöntemle elde edilen C. elegans suşları etkileri ve tüm genom çok hücreli organizmalarda poliploidi rolleri hakkında herhangi bir soruşturma sürdürmek için vesile olacak.
Bir triploid bir tetraploid orijinal diploid tetraploid crossing tarafından elde edilebilir, diploitler, triploids ve sadece genom kopya sayısı farklı tetraploids arasında bir karşılaştırma için benzersiz ve benzeri görülmemiş bir fırsat sağlar farklı genom büyüklüğündeki (veya gen doz) hayvanlar/organ/hücre eşdeğer değerlendirin. Esneklik ve kolay burada tanımlanan düzenini tetraploid suşları onlarca farklı genetik diploit arka planlar veya karyotypes oluşturmak bize izin verdi. Bu suşların bazıları zaten mayoz27sırasında homolog kromozom çifti ve synapsis sorgu mekanizmaları için kullanılmıştır.
Flüoresan işaretler taşıyan vahşi türü ve mutant tetraploid suşları soruşturma hücre içi/cep/organ ve tüm hayvan ölçekleme, tüm genom genom büyüklüğü ve nükleer/sitozol oranına arasındaki ilişkileri anlamak için yeni yollar sağlar adaptasyon, Türleşme, gen doz ve ifade ve doku ve organ kalkınma polyploidization. Biyolojik ölçekleme eğitime ek olarak, tetraploid suşları üretimi önemli ölçüde daha fazla sorgular ilgili ekstraselüler sinyal, genom istikrarsızlık, endoreduplication, tüm genom temel biyolojik sorulardan olacak çoğaltma, gen dozaj, onaylandığı stres, ilaçlar ve mekanizma Türleşme direnci gelişimi.
Açıklamalar
Yazarlar ifşa gerek yok.
Teşekkürler
Biz Caenorhabditis genetik Merkezi (Ulusal Sağlık Enstitüsü (NIH) Office, araştırma altyapı programları P40 OD010440 tarafından finanse edilir) suşlar için teşekkür ederim. Yazarlar Baptiste Roelens ve Eli Lessman, bize yapıcı geribildirim ve CCNY, CUNY filme bölümü için ve onların yardım için kendi laboratuvar kullanımı için Mano laboratuarda sunmak için teşekkür etmek istiyorum. Bu eser bir PSC CUNY Ödülü TRADB-46-113 tarafından desteklenen ve NIH 1SC2GM118275-01 vermek. M.S. kısmen Sağlık (CIHR) doktora sonrası bursu bir Kanada Enstitüsü tarafından desteklenen ve E.K. NIH/NIGMS RISE tarafından desteklenen GM062981 verin.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Diseksiyon Mikroskobu | Motik Mikroskopi | SMZ171 | |
| Name | Company | Katalog Numarası | Yorumlar |
| NGM agar plakaları | |||
| 60 mm x 15 mm Petri Kapları, Steril | Tritech Araştırma | T3305 | |
| 35 mm x 15 mm Petri Kapları, Steril | Tritech Research | T3500 | |
| Bakteriyolojik Agar, 5 kg | VWR | 89140-850 | |
| Sodyum Klorür, Biyoteknoloji Sınıfı | VWR | 97061-278 | |
| Peptone, BD Bacto | VWR | 90000-368 | |
| Ampisilin Trihidrat | VWR | 97062-300 | |
| IPTG, dioksan içermeyen | Thermo Scientific | R0391 | |
| İsim | Company< | strong>Katalog Numarası | Comments |
| Büyüme Kültürü | |||
| LB Lennox Et Suyu | IBI Scientific | 89126-176 | |
| İsim | Company | Katalog Numarası | Comments |
| LB Agar plakaları | |||
| LB Agar Lennox | IBI Scientific | 89126-182 | |
| Name | Company | Katalog Numarası | Comments |
| Antibiyotikler | |||
| Ampisilin Trihidrat | VWR | 97062-300 | |
| Tetrasiklin Hidroklorür | Fisher Scientific | BP912-100 | |
| Name< | strong>Company | Katalog Numarası | Comments |
| Staining | |||
| Hoechst 33258, Pentahydrate | Biotium | 40045 | |
| DAPI | Biotium | 40011 | |
| Name< | strong>Company | Katalog Numarası | Yorumlar< / güçlü > |
| < güçlü > Etanol Fiksasyonu< / güçlü > | |||
| Etanol, Saf, 190 Kanıt (% 95), USP | Koptec, VWR | 89125-166 | |
| < güçlü > Adı < / güçlü > | < güçlü > Şirket< / güçlü | > < güçlü >Katalog Numarası< > | Yorumlar< / güçlü > |
| M9 Tampon< / güçlü > | |||
| Sodyum klorür, Biyoteknoloji Sınıfı | VWR | 97061-278 | |
| Potasyum fosfat, Monobazik Susuz Sınıf | VWR | 97062-346 | |
| Sodyum fosfat, monobazik dihidrat | Fisher Scientific | AC271750025 | |
| İsim< / strong> | Company< / strong> | Katalog Numarası | Comments |
| RNAi Klonları | |||
| HT115 rec-8 dsRNA eksprese eden bakteri | Kaynak: Bioscience | W02A2.6 | |
| HT115, rec-8 dsRNA | Dharmacon | RCE1182-202299820 |
Kaynaklar
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
Yeniden basım ve izinler
