Bu iletişim kuralı açıklar tek zinciri MHC sınıf ı insan CD8 + T hücre aktivasyonu moleküler etkileşimlerde araştırmaya kompleksleri: mühendislik antijen sunan tek zincir ifade hücreleri nesil oluşturur, kültür insan CD8 + T hücre klonu ve T hücre aktivasyonu deneyler.
Yöntem makalesi
Tek zincir MHC Co-agonism insan CD8 + T hücre aktivasyonu içinde araştırmak için teknoloji kullanımı
Bu makalede
Özet
Özet
Sigara uyarıcı kendini peptid MHC (pMHC) kompleksleri T hücre aktivasyonu ve efektör fonksiyonları teşvik değil ama agonist pMHC, co-agonism olarak adlandırılan bir süreç için T hücre yanıt geliştirebilirsiniz. Bu iletişim kuralı bir deneysel açıklar insan MHC ifade ederek insan CD8 + T hücre aktivasyonu sırasında co-agonism araştırmak için sistem sınıf ı molekülleri önceden belirlenmiş peptidler olarak sunan tek polipeptitler (tek zincir MHC) bir xenogeneic hücre satırı. Tek zincir MHCs nerede agonist tek zincir p-MHC kompleksi seviyesinin düşük ve yüksek düzeyde uyarıcı olmayan tek zincir p-MHC kompleksi ifade edildi koşullar altında dile getirdi. Bu deneysel sistemini uyarıcı pMHC içinde CD8 + T hücre yanıt-e doğru agonist pMHC karşılaştırmak izin verdi. Hücre satırı transfection protokolünü açıklar tek zincir MHC yapıları, nesil istikrarlı hücre hatları, kültür Hepatit B virüs özgü insan CD8 + T hücreleri ve T hücre aktivasyonu deneyler aynı anda sayısal sitokin üretim ve degranulation. Sunulan yöntemleri CD8 + T hücre aktivasyonu, farklı özellikleriyle ilgili araştırma insan T hücre sistemlerinde bilinen peptid MHC özgüllük ile kullanılabilir.
Giriş
MHC sınıf ı (MHC-ben) molekülleri kısa (8-10 amino asitler) peptidler her hücre tarafından sentezlenen protein elde mevcut. MHC-ben molekülleri sağlıklı hücreleri üzerinde mevcut öz peptidler endojen proteinler türetilmiş. Viral enfeksiyon yol olmayan kendine virüs kaynaklı peptidler sunuya üzerinde MHC- ama bile enfekte hücreleri mevcut olmayan kendine peptidler kendini peptid-MHC (pMHC) büyük miktarda huzurunda. MHC-T hücre reseptör (TCR) ve CD8 co reseptör T hücreleri tarafından tanınır. CD8 bağlama peptid bağımsız ise TCR bağlama benzeşme peptid pMHC için sunulan peptidler, dizi son derece bağlıdır. Olmayan kendine agonist pMHC karmaşık TCR bağlama T hücre aktivasyonu ve efektör fonksiyonları için yol açar. Sigara uyarıcı kendini pMHC kompleksleri T hücre aktivasyonu ve efektör fonksiyonları teşvik değil ama agonist pMHC, co-agonism1,2,3olarak adlandırılan bir süreç için T hücre yanıt geliştirebilirsiniz. Co-agonism fare CD4 + T hücreleri4,5,6 yanı sıra fare ve insan CD8 + T hücreleri7,8,9,10, gözlenen 11 , 12 , 13. fizyolojik koşullar altında T hücreleri üzerinde uyarıcı pMHC kompleksleri, o co-agonism katkıda bulunduğu için en uygun T düşündüren yüksek düzeyde işbirliği sunan hücreler (ZPT) sunulması antijen agonist pMHC sınırlı miktarlarda tanımak gerekir hücre yanıt içinde vivo. Toplam hücre yüzey MHC sınıf ı düzeyleri sık sık viral enfeksiyonlar14 sırasında ve tümör15downregulated bulunmaktadır. Bu bağışıklık kaçırma strateji agonist pMHC sunu azaltır, ancak aynı zamanda co agonist pMHC miktarını azaltır ben T hücre harekete geçirmek geliştirme için kullanılabilir. Ayrıca, yüksek hücre yüzey ifade düzeyleri MHC sınıf ı molekül HLA-C ilişkilendirmek için toplam MHC sınıf için kritik bir rol öne geliştirilmiş HIV kontrolü ile16, ben T hücre aktivasyonu ifadede gösterilmiştir. Co-agonism fizyolojik öneme rağmen onun moleküler mekanizma hala eksik olarak anlaşılmaktadır. Bu deneysel agonist pMHC sabit tutarken sunulan co agonist pMHC denetlenmesini büyük ölçüde teknik zorlukları kaynaklanmaktadır.
Bir deneysel geliştirdiğimiz sistem insan MHC ifade ederek insan CD8 + T hücre aktivasyonu sırasında co-agonism araştırmak için sınıf ı molekülleri tek polipeptid olarak önceden belirlenmiş peptid sunulması (tek zincir MHC-ben şekil 1A) xenogeneic hücrede 9,10satır. Tek zincir (sc) agonist pMHC hamster kaynaklı T-REx CHO hücre satırında tetrasiklin önleyici ifade tetrasiklin-indüklenebilir organizatörü kontrolü altında ifade edildi; Bu yokluğunda tetrasiklin ve yüksek sc agonist pMHC ifade sonra tetrasiklin (şekil 1BC) eklenmesi, sc agonist pMHC çok düşük "sızan" ifade sağlar. Sc agonist pMHC ifade T-REx CHO hücreleri sonra sigara-uyarıcı, co agonist sc pMHC ile supertransfected vardı-ben bir yapısal etkin organizatörü (şekil 1BC) kontrolü altında. Bu deneysel sistemini uyarıcı pMHC yüksek düzeyde ve CD8 + T hücre yanıt-e doğru agonist pMHC karşılaştırmak izin verdi. Eleştirel, beri peptid ve MHC-ben ağır zincir kovalent bağlı scMHC-ben format, bu önceden belirlenmiş peptidler sunumu MHC molekülleri içine mutasyonların tanıtımları sağlar. ScMHC kullanımı-Ben teknoloji böylece bize özellikle agonist veya eş agonist pMHC TCR ve CD8-bağlama özelliklerini modüle izin.
Co-agonism CD8 + T hücre aktivasyonu içinde gözlenen arıtılmış MHC kullanarak-ben agonist ve co agonist peptidler heterodimers11,şeklinde sunulması kompleksleri17 veya üzerinde sunulan kuantum nokta12,13. Co-agonism CD8 + T hücre aktivasyonu agonist pMHC tanıma APC Tarih içinde belgili tanımlık bağlam içinde erken çalışma TAP2-eksik hücre hatları ZPT kullanılır. DOKUNUN peptid taşıyıcısından sitoplazma endoplazmik retikulum için gereklidir ve DOKUNUN-eksikliği ciddi kullanılabilir MHC sınıf ı-bağlama peptidler havuzu azaltır. Peptidler yokluğunda, doğmakta olan tesisin MHC sınıf ı ağır zincir ve β2- Mikroglobulin kararsız, çok düşük MHC sonuçlanan-yüzey ifade hücre. Başlangıçta, karşılaştırma DOKUNUN yeterli ve - eksik fare RMA ve RMA-S hücre hatları, antijen ile uyarılan T hücrelerinin anılan sıraya göre ZPT, co-agonism için herhangi bir delil sırasında fare T hücre harekete geçirmek18olmadığını göstermiştir. Ancak, bu deneysel sistemini uyarıcı öz pMHC bağımsız olarak sunulan agonist pMHC miktarı üzerinde tam denetim izin vermedi. Ayrıca, bu iki hücre satırları ayrıca ligandlar T hücre co-stimulatory veya inhibitör reseptörleri gibi T hücre aktivasyonu modüle diğer molekülleri veya adezyon molekülleri ifade farklı olabilir.
Daha sonra biz sabit bir miktar olan agonist pMHC sunumu uyarıcı pMHC içinde izin vermek için eksojen peptidler hücrelerle TAP2-eksik RMA-S yükleme için bir iletişim kuralı geliştirilmiştir. Bu aracılığıyla aşağıdaki sağlanır: kuluçka TAP2-eksik RMA-s hücreleri boş MHC dengelemek için daha düşük sıcaklıklarda (28 ° C, yerine her zamanki 37 ° C) sınıf ı ağır zinciri/β2 Mikroglobulin kompleksleri19; Kuluçka eksojen agonist peptid ile 28 ° c; Kuluçka eksojen uyarıcı peptid olup içinde 28 ° c; ve kuluçka 37 ° C'de boş MHC hücre yüzey ifade azaltmak için sınıf ı kompleksleri8,9. Bu deneysel kurulum kullanımı olmayan uyarıcı pMHC varlığı fare timositleri, saf periferik CD8 + T hücreleri ve CTL8harekete geçirmek gelişmiş saptandı. Mechanistically, uyarıcı pMHC varlığı yokluğunda bile T hücre: APC bağışıklık synapse için CD8 alımı agonist pMHC tetikleyebilir ve uyarıcı pMHC TCR etkileşim CD8 coreceptor7,8ile geliştirebilirsiniz. Ancak, bu deneysel sistem harekete geçirmek geliştirme MHC sınıf ı-cekti TCR veya CD8 bağlama değiştiren herhangi bir değişiklik olarak arabuluculuk agonist ve co agonist pMHC TCR ve CD8 coreceptor bağlamaya göreli katkılarıyla test izin vermez sunulan peptid ne olursa olsun tüm MHC molekülleri etkiler. Biz bu nedenle bu sorunun üstesinden gelmek için zinciri teknoloji tek MHC sınıf kullanılır.
Ben format tek zincir (sc) MHC sınıf daha önce antijenik pMHC tanıtımı için tedavi stratejileri geliştirmek ve TCR ve NK hücre reseptör etkinleştirme mekanizmaları temel sorulara cevap ve20,21 işlev kullanılmış . scMHC-peptit, β2- Mikroglobulin ve MHC oluşur-ben ağır zincir, iki esnek serin/glisin-zengin vurgulamaktadır (şekil 1A) tarafından katıldı birkaç farklı Bağlayıcı sıraları edilmiştir geliştirilmiş ve test22. scMHC-ben kat karmaşık DOKUNUN bağımsız olarak ve refakat geleneksel pMHC karmaşık derleme20için gerekli proteinler. scMHC-doğru22 boyama conformation özgü antikor kullanılarak belirlenen ve x-ışını kristalografisi23yapısıyla sc çözme tarafından katlayın göstermiştir. Temel scMHC-ben tasarım bağlama düşük benzeşme peptidler24,25artırmak için modifiye edilmiştir.
Bu iletişim kuralı insan scMHC açıklar-ben co-agonism sırasında insan CTL araştırmak için klon harekete geçirmek. Protokol insan CTL klon Hepatit B virüsü (HBV) bir epitope için belirli için optimize edilmiştir. HBV ve kronik HBV enfeksiyonu ile enfekte 350 milyon kişi Hepatosellüler karsinom (HCC) gelişmesine neden olabilir olarak orada HBV bir ciddi sağlık dünya çapında, yüktür. HBV enfeksiyonu sonucu HCC hücreleri genellikle HBV kaynaklı epitopları sunabilir ve belirli insan T hücreleri tarafından kabul edilebilir. HBV ve HCC izni insan T hücre yanıt-e doğru26tarihinde dayanır ama HCC hastalar genellikle T hücre bitkinlik ve azaltılmış T hücre yanıt-e doğru27muzdarip. HBV özgü TCR giriş HBV T hücrelerinin içine kronik HBV enfeksiyonu28ortadan kaldırmak için bir potansiyel immünoterapi strateji olarak çalıştı. Ancak, o bilinmeyen ise bu yöntem yüzey MHC düşük düzeyde bir klinik ortamda etkili olacak-ben insan tetkikine29. Bu nedenle, coagonism mekanizması anlama alternatif bakış açıları HBV, immünoterapi için muhtemelen T hücre co-agonism-aracılı yanıt-e doğru uyarmak için endojen pMHC sunumunu güçlendirerek sağlayabilir. Araştırma için tüm gerekli adımları insan co-agonism tarihinde protokol kapsar: transfection T-REx CHO hücre agonist ve co agonist sc pMHC, istikrarlı T-REx CHO hücre hatları üretimi, kültür HBV özgü insan CTL CD8 + T hücre kültürünü ve CTL etkinleştirme sitokin üretim ve degranulation yanıt olarak T-REx CHO hücrelerin miktarının deneyler. Her ne kadar biz sc MHC kullanarak odak sınıf ı co-agonism HBV T hücre aktivasyonu sırasında araştırmak için teknoloji, sunulan yöntemleri kolayca insan T hücre sistemleri ile bilinen pMHC T hücre aktivasyonu diğer yönleri üzerinde araştırma için adapte edilebilir olduğunu belirtmek gerekir-Ben özgüllüğü.
Bu iletişim kuralı bir insan CD8 + CTL satırı özel HBV kaynaklı peptid E183-91 için kullanır (FLLTRILTI: "E183") HLA-A2 üzerinde sunulan30 . sc HLA molekülleri, insan B2-Mikroglobulin sinyal serisinden oluşan HLA-A2 bağlama peptid ilgi, glisin/serin bağlayıcı, bir insan B2-Mikroglobulin, glisin/serin bağlayıcı ve ağır zincir ticari olabilir bir A2 (şekil 1A sentezledim. ). ScA2 yapıları agonist E183 peptid veya coagonist HIV GAG (SLYNTVATL)31 peptidler kodlama plazmid yazarlardan istek üzerine mevcuttur. Peptid sıra yönetmen sitesi-mutagenesis kullanılarak değiştirilebilir. Tetrasiklin-indüklenebilir vektör pcDNA5/kime E183 peptid (sc E183-HLA-A2) ile agonist tek zincir HLA-A2 ifade etmek için kullanılmıştır. Tetrasiklin önleyici, pcDNA5 huzurunda/plazmid için sadece çok düşük, "sızan" ifade ilgi protein sağlar; yüksek ifade tetrasiklin (şekil 1BC) eklenmesi tarafından indüklenen. Tetrasiklin-indüklenebilir ifade sistemini hücre yüzey agonist pMHC ifade miktarı üzerinde kontrol sağlar. Bir bünye ifade plazmid pcDNA3.1 coagonist scA2 GAG peptid (sc GAG-HLA-A2) ile ifade etmek için kullanılmıştır. Tetrasiklin düzenlenir ifade (T-REx) CHO hücre satırı (hamster hücre satırı, endojen hiçbir insan MHC) agonist ve co agonist sc-HLA-A2 yapıları ifade etmek için kullanılmıştır. Bu deneysel sistem pMHC sunum (şekil 1 c) üzerinde tam denetim sağlar: yok pMHC Tanıtım (untransfected T-REx), ortak agonist pMHC sunum (kurucu sc GAG-HLA-A2 ifade) yüksek miktarda, agonist pMHC düşük miktarda Tanıtım (sc E183-HLA-A2 yokluğunda tetrasiklin,), agonist pMHC sunum (sc E183-HLA-A2 tetrasiklin varlığında) yüksek miktarda, agonist pMHC tanıtımı ve yüksek ifade ortak agonist pMHC düşük miktarda (sc E183-HLA-A2 Devamsızlık tetrasiklin ve kurucu sc GAG-HLA-A2 ifade). Bu deneysel sistem kullanımı agonist ve coagonist pMHC hücre yüzey miktarda hassas kontrol sağlar.
Protokol
Not: Tüm adımları içeren canlı, sabit olmayan hücreleri kullanımı-meli var olmak kılınmak Biyogüvenlik kukuIeta ve herhangi bir biyolojik atık yerel sağlık ve güvenlik yönetmeliklerine göre iptal edilecek.
1. CHO hücre Transfection ve istikrarlı CHO hücre hatları nesil
-
CHO hücre transfection
Not: CHO hücre transfection polyethylenimine (PEI) kullanarak bu bölümde açıklanmaktadır. CHO hücreleri piyasada bulunan lipid transfection reaktifler kullanarak transfect nispeten kolay olarak ancak, alternatif yöntemler kullanılabilir.- Kültür CHO hücreleri içinde tam F12 (cF12, tetrasiklin önleyici ifade korumak için %5 FBS, 100 U/mL penisilin, 100 μg/mL streptomisin ve 10 µg/mL blasticidin ile desteklenmiş F12). Hücreleri her 3-4 günde bir 1:10 geçiş oranı.
- Bir gün önce transfection, CHO hücre süspansiyon hazırlamak. PBS (5 mL PBS T25 şişesi için bir T75 şişesi için PBS için 10 mL) kullanarak şişeye yıka CHO hücrelerde. % 0.05 eklemek Trypsin/0.02% EDTA içinde PBS şişeye (bir T75 şişesi, bir T25 şişesi için 1 mL için 2 mL) ve 5-10dk oda sıcaklığında (RT) için kuluçkaya. Hafif bir mikroskop kullanarak, hücreleri bağlantısız ve trypsinization cF12 (bir T75 şişesi, bir T25 şişesi için 4 mL için 8 mL) flask ekleyerek durdurmak emin olun.
- CF12 (için bir T75 şişesi, bir T25 şişesi için 5 mL 10 mL) yeniden askıya ve bir hemasitometre kullanarak saymak 15 mL tüp ve 4 ° C veya RT. Kaldır süpernatant 5 min için 300-400 x g , santrifüj CHO hücre süspansiyon transfer.
- Hücre konsantrasyonu 60.000-100,000 CHO hücre/ml ayarlayın. CHO hücre süspansiyon (300.000 500.000 CHO hücreleri) 5 mL 6 iyi plaka bir kuyu başına ekleyin. Gecede 37 ° C, % 5 CO2kuluçkaya.
- Transfection günü, 1,5 mL tüp 400 μL F12 medya serum ücretsiz veya düşük serum ortam ekleyin. Plazmid 3 μg medya 400 μL için ekleyin. Pipetting tarafından mix. 6 μg PEI eklemek (1 mg/mL PEI çözüm 6 μL) medya/DNA mix ve hemen 10 için girdap s.
- RT at medya/DNA/PEI mix 10-15 dk için kuluçkaya. Bu kuluçka sırasında CHO hücre ortamı 6 iyi plaka 5 mL taze cF12 medya ile değiştirin.
- Medya/DNA/PEI çözüm CHO hücrelere ekleme. Çözüm dropwise ve eşit iyi ekleyin. Gecede 37 ° C, % 5 CO2kuluçkaya.
-
İstikrarlı CHO hücre hatları nesil
- Bir gün transfection sonra medya kuyulardan kaldırın ve her şey için uygun seçim antibiyotik içeren 5 mL cF12 de ekleyin. 0.3 mg/mL hygromycin pcDNA5TO tabanlı plazmit ve 1 mg/mL geneticin pcDNA3 tabanlı plazmid için kullanın.
- Hücreleri ulaşmak daha fazla % 90 confluency 24 h transfection deftere naklederseniz, hücreleri trypsinize.
- Wells PBS 1 mL de başı ile yıkayın, 1 mL %0,05 trypsin/0.02% EDTA PBS içinde ekleyin ve RT. kullanma vasıl 5-10 dk hafif mikroskop kuluçkaya, hücreleri bağlantısız ve trypsinization cF12 de başına 3-4 mL ekleyerek durdurmak kontrol.
- CF12 10 mL yeniden askıya alma ve bir 15 mL tüp ve 4 ° C veya RT. Kaldır süpernatant 5 min için 300-400 x g , santrifüj CHO hücre süspansiyon transfer. Hücre süspansiyon iyi başına 5 mL 6 iyi plaka ekleyin. İki kuyu transfected hücreleri verimi en üst düzeye çıkarmak için kullanın.
- 37 ° c, % 5 CO26 iyi plakaları kuluçkaya. Hücre ölümü ve büyüme dayanıklı kolonileri hafif bir mikroskop kullanarak izleyin. Medyayı çıkarın ve 4-5 gün sonra veya önemli hücre ölümü gözlenen uygun antibiyotik içeren taze medya ile değiştirin.
- Sonra hücreleri % 70 izdiham, daha dayanıklı hücreleri ulaşmak trypsinize açıklandığı gibi 1.2.2. adımda ve T25 şişesi genişleme için transfer. Antibiyotik seçimi 1-2 hafta sürer.
- T25 şişeye antibiyotik dirençli CHO hücrelerde % 70-80 izdiham ulaştığınızda, ilgi yapıları, hücre yüzey ifade doğrulamak için antikor boyama gerçekleştirmek. 1.2.2. adımda açıklandığı gibi hücreleri antikor boyama önce bir gün trypsinize ve 200.000 hücre/ml hücre toplama ayarlamak ve hücre süspansiyon 1 mL 12 iyi plakasına ekleyin. Tetrasiklin-indüklenebilir yapıları sınama, 50-60 ng/mL tetrasiklin ekleyin. Gecede 37 ° C, % 5 CO2kuluçkaya.
- Hücre kazıyıcı kuyunun hücrelerden CHO ayırmak için kullanın. Epitope hasar nedeniyle proteolitik bölünme riskini azaltır gibi bu yöntem trypsinization için tercih edilir.
- 1 mL tüp bir FACS CHO hücrelere içeren medya aktarın. Spin aşağı vasıl 300-400 x g, 4 ° C'de 5 dakika süreyle yeniden askıya alma 100 μL içinde FWB içinde seyreltilmiş anti-HLA antikor. Buz üzerinde 4 ° C'de 30 dk kuluçkaya. Bu toplam A2 hücre yüzey ifade düzeyleri tespit etmek için anti-A2 antikor ve TCR benzeri antikor ile A2 için agonist pMHC tespit etmek için E183 peptid ile kompleks içinde belirli boyama gerçekleştirmek-yüzey ifade seviyeleri hücre.
- Sonra MHC ifade, FACS-sıralama pozitif hücrelerinin doğrulama ve medya transgene kaybını azaltmak için antibiyotik ile sıralanmış hücreleri korumak. Agonist pMHC ifade CHO hücreleri tek hücre sıralama, karşılaştırılabilir agonist pMHC ifade ve supertransfection ile ortak agonist pMHC olmadan sağlamak için önerilir. 2-3 hafta tek hücre sıralama takip CHO hücre büyümesi için gereklidir.
2. HBV özgü CTL kültür
-
PBMCs HBV özgü insan CTL yeniden uyarılması için hazırlık olarak besleyiciler
Not: A2 E183 özel CTL clone için yeniden stimülasyon çözdürülen PBMCs, yerine taze izole PBMCs ile en iyi sonucu verir.
Uyarı: Tüm gerekli etik onayları için kan bağış Gönüllüleri işe önce edinin. Bu eser amacıyla PBMC sağlıklı gönüllülerden NUS IRB tarafından onaylanmış Protokolü altında toplanan. Aydınlatılmış onam tüm bağış elde edildi. Gerekli tüm önlemleri ile insan kan hastalıkları kaynaklı kan iletimini riskini azaltmak için çalışırken izleyin.- Ve başlamadan önce 19-20 ° C'de santrifüj sıcaklığı ayarlamak RT. yoğunluğu degradeye (örneğin, Ficoll) önceden ısıtmak
- Oda sıcaklık yoğunluk değişimi 15 mL 50 mL tüp için ekleyin. 19-20 ° C'de 5 min için 400 x g , santrifüj Hiçbir yoğunluk gradient tüp tarafında olduğundan emin olmak için bu.
- 20 mL kan iz ile sağlıklı bir gönüllü bağış toplamak. PBS 15 mL 50 mL tüp kan 20 mL ekleyin. Yukarı ve aşağı pipetting tarafından karıştırın.
- Yavaş yavaş, kan yoğunluk gradient adım 2.1.2 15 mL üstüne PBS içinde seyreltilmiş 35 mL ekleyin. Kan ve yoğunluk gradient değil karışık emin olun. 19 ° c, 1200 x g frenler ile 20 dk için tüpler santrifüj kapasitesi kapalı.
- Plazma katmanın yaklaşık % 70'i kaldırın. Dikkatle PBMC (açık yoğunluğu degrade katman üzerinde bulutlu Katmanı) içeren katmanı Aspire bir Pasteur kullanarak pipet ve yeni bir 50 mL tüp içinde yerleştirin.
- PBS 50 mL toplam hacmi elde etmek için PBMCs ekleyin. Tüp 4 ° c, 300-400 x g santrifüj kapasitesi 10 dk. dikkatli bir şekilde çıkarın için vakum Aspiratörü ve steril cam Pasteur pipet kullanarak süpernatant veya decanting tarafından.
- PBS 50 mL hücrelerde yeniden askıya alma. Tüp 4 ° c, 300 x g santrifüj kapasitesi 10 dk. dikkatli bir şekilde çıkarın için vakum Aspiratörü ve steril cam Pasteur pipet kullanarak süpernatant veya decanting tarafından.
- Tam insan T hücre medya (serum boş ortam % 2 insan serumu ile desteklenmiş) 2 mL hücrelerde yeniden askıya alma. Hemasitometre kullanarak hücreleri saymak. Bu iletişim kuralı ortalama 1-2 x 10⁶ PBMCs kullanılan kan 1 mL başına verir.
-
CTL yeniden stimülasyon PBMCs besleyici hücreler kullanma
- PBMCs, nükleer silahların yayılmasına karşı yanıt olarak sonraki stimülasyon etkisizleştirmek için 30 Gy ışınlatayım.
Dikkat: yeterli eğitim ve laboratuvar ile uyum irradiator kullanırken Güvenlik gerekliliklerini sağlamak. - Radyoaktif PBMCs 2 x 10⁶ hücre/mL, tam insan T hücre medyada yeniden askıya alma. Sitokinler ve lektin Phaseolus vulgaris (PHA) CTL yeniden uyarımı 2 x konsantrasyon PBMC süspansiyon içine de ekleyin. Son sitokin ve PHA konsantrasyonları şunlardır: 20 U/mL rekombinant insan IL-2, 10 ng/mL rekombinant 7, Il-10 ng/mL rekombinant insan IL-15 ve 1.5 mg/mL PHA.
- 37 ° C su banyosu donmuş CTL şişede çözülme. Çözdürülen hücreleri 10 mL tam insan T hücre medya ile 15 mL tüp içine aktarın. 300-400 x g 4 ° c de 5 dk. dikkatli bir şekilde çıkarın için vakum Aspiratörü ve steril cam Pasteur pipet kullanarak süpernatant veya decanting tarafından spin aşağı.
- CTL'ler 2 mL tam insan T hücre medya yeniden askıya alma. Hemasitometre kullanarak hücreleri saymak. 106 hücre/mL konsantrasyonu hücre elde etmek için tam insan T hücre medya ekleyin.
- Bir 24 iyi tabak içinde ışınlanmış PBMCs 0.5 mL ekleyin (106 hücreleri) 2 x cytokines ve PHA (Adım 2.2.2) ve CTL (0.5 x 10⁶ hücreler) 0.5 mL iyi ücret ile. Kuyu yapımı used CTL'ler veya PBMCs mevcut toplam sayısına bağlıdır. 37 ° C, % 5 CO2kuluçkaya.
- 4-5 gün, ne zaman CTL patlamaların görülebilir ve medya sarıya dönüşür, sonra kültürler 6 iyi kalıplara aktarmak ve ilk 1 mL Cilt 4 mL 20 U/mL IL-2, 10 ng/mL 7 Il ve 10 ng/mL IL-15 (PHA) ile tam insan T hücre medya ile ek.
- 2-3 gün sonra kültürler T75 şişesi aktarmak, sitokinler (Adım 2.2.2, hiçbir PHA) ile tam insan T hücre medya 40 mL ekleyin ve dik bir pozisyonda kültür.
- CTL'ler bir konsantrasyon 1-2 x 10⁶ hücre/mL, sitokinler (Adım 2.2.2, hiçbir PHA) ile takıma taze medya ekleyerek bir ses seviyesinde olan kültür birimi eşit her geçen gün korumak. CTL'ler 7-14 gün sonra yeniden stimülasyon deneyler için kullanılabilir.
- PBMCs, nükleer silahların yayılmasına karşı yanıt olarak sonraki stimülasyon etkisizleştirmek için 30 Gy ışınlatayım.
3. T hücre harekete geçirmek deneyler
Not: Tipik bir deney birçok farklı T-RExCHO satır gerektirir: untransfected T-REx CHO hücreleri (negatif kontrol), T-REx CHO hücreleri ifade uyarıcı pMHC sadece (scA2-GAG; negatif kontrol), T-REx CHO hücreleri düşük miktarda ifade agonist pMHC-ben () scA2-ENV tetrasiklin, deneysel örnek olmadan), T-REx CHO agonist pMHC düşük miktarda ve uyarıcı co agonist pMHC (scA2-ENV ve scA2-GAG, tetrasiklin, deneysel örnek olmadan), yüksek miktarda ifade hücreleri ve T-REx CHO hücreleri agonist pMHC yüksek miktarda ifade-ı scA2-ENV tetrasiklin, pozitif kontrol ile), şekil 1 cDgösterildiği gibi.
-
CHO hücreler antijen sunan hücreler olarak kaplama
- 1.1.1. adımda açıklandığı gibi T75 şişesi, kültür CHO hücreleri. Hücreleri % 70-90 izdiham en iyi sonuçlar için kullanın. Bir gün önce T hücre aktivasyonu deneme, hücreleri 1.1.2 bölümünde anlatıldığı gibi trypsinize. Trypsinization sonra bir 15 mL tüp, 5 min 4 ° C veya RT için 400 x g , santrifüj içine hücre süspansiyon transfer, pipetting veya decanting süpernatant kaldırmak.
- Hücre Pelet 5 mL cF12 yeniden askıya alma. Bir hemasitometre kullanarak CHO hücreleri saymak.
- Hücre konsantrasyonu için 2 x 10⁵/mL cF12 kullanarak ayarlayın. 50-60 ng/mL tetrasiklin agonist için sadece örnekleri agonist pMHC yüksek miktarda ikna etmek için eklemek-ben ifade olarak olumlu denetim (şekil 1 c). CHO hücreleri 15 mL tüplerde yerleşeceğiz... yani pipetting veya vortexing kaplama önce mix onları emin olun.
- T hücre etkinleştirme yöntemi, CHO hücre süspansiyon iyi başına 100 μL U-alt 96 iyi plakasına eklemek ve triplicates CHO hücre satır başına kullanın. CHO anti-MHC hücre boyama, hücre süspansiyon 1 mL 12 iyi plakasına eklemek ve triplicates hücre satır başına kullanın. Gecede 37 ° C, % 5 CO2kuluçkaya.
-
T hücre harekete geçirmek tahlil
Not: T hücre degranulation (CD107a boyama, T hücre sitotoksisite ölçüsü) ve sitokin üretim eşzamanlı miktar bu T hücre harekete geçirmek tahlil sağlar.- Deneme, önceki gün 400 x g 5 min için 4 ° C'de CTL'ler hücreleri santrifüj kapasitesi, hemasitometre kullanarak saymak ve hücreler sitokinler veya PHA olmadan tam insan T hücre medyada 106 hücre/mL, yeniden askıya alma. 37 ° C, % 5 CO2kuluçkaya. Biz en fazla harekete geçirmek içinde yanıt-e doğru bu adım olmadan antijen düşük miktarda gözlemledim gibi bu geri kalan adımın amacı CTL duyarlılık, azaltmaktır.
- Denemenin, santrifüj T hücreleri 400 x g 4 ° c 5 min için de gün süpernatant decanting veya pipetting kaldırmak ve 2 mL tam serum-Ücretsiz medya (sitokinler ve PHA) olmaksızın hücrelerde yeniden askıya alma. Bir hemasitometre kullanarak canlı T hücreleri saymak ve T hücre konsantrasyonu 106 canlı hücreler/tam insan T hücre medya (olmadan sitokinler veya PHA) kullanarak ml ayarlayın.
- 1: 100 seyreltme (son konsantrasyon 2.5 μg/mL) Anti-insan CD107a antikor ekleyin, 1: 1000 seyreltme (son konsantrasyonu 1 μg/ml) brefeldin A ekleyin.
- Medya 96 iyi plaka CHO hücrelerden cam Pasteur pipet ile alıyorum plaka flicking kaldırmak veya. İyi, T hücre süspansiyon (0.2 x 10⁶ hücreler) içeren anti-CD107a ve brefeldin A. ortak kültür T hücrelerinin 3-4 h için CHO hücreler 200 μL ekleyin.
- Ortak kültür sonunda, T hücre yüzey antijeni boyama gerçekleştirmek. Spin aşağı 96 300-400 x giyi plaka, 4 ° C'de 5 min ve süpernatant alıyorum veya flicking kaldırın. CD3 2.5 μL ve CD8 antikorların 2.5 μL % 0.5 BSA PBS (akış yıkama arabellek, FWB) içinde 50 μL iyi hücre yüzey antijeni boyama için ücret ekleyin. Örnekleri 30 dk içinde belgili tanımlık karanlık için buz üzerinde kuluçkaya.
- Örnekleri FWB 150 μL iyi başına ekleyerek yıkayın. Spin aşağı 96 300-400 x giyi plaka, 4 ° C'de 5 min ve süpernatant alıyorum veya flicking kaldırın.
- Bir fiksasyon/permeabilization kit kullanarak fiksasyon/permeabilization adımları gerçekleştirin. Pipetting tarafından mix, fiksasyon/permeabilization çözüm (fiksasyon/permeabilization kitinden) iyi başına 100 µL ekleyin. 20 dk için buz üzerinde kuluçkaya.
- 300-400 x g ve 4 ° C'de 5 dakika santrifüj kapasitesi ve süpernatant alıyorum veya flicking kaldırın. 1 perma/yıkama arabellek x 200 μL ekleyin (10 x perma/yıkama seti kullanmadan önce hisse senedi arabelleğinden seyreltik) iyi başına. Bu adımı yineleyin.
- Hücre Pelet 50 μL 0.3 μg/mL adlı anti-IFN-γ antikor içeren 1 x perma/yıkama arabelleği yeniden askıya. 30 dk içinde karanlık için buz üzerinde kuluçkaya.
- 1 x perma/yıkama arabelleği 150 μL ekleyin. 300-400 x g için 5 min için 4 ° C'de, santrifüj kapasitesi ve süpernatant alıyorum veya flicking kaldırın. 1 perma/yıkama arabellek, x 200 μL 300-400 x g için 5 min için 4 ° C'de santrifüj kapasitesi ve süpernatant kaldırmak alıyorum veya flicking ekleyin.
- Her örnek yeniden FWB 200 μL içinde askıya alma. Akış sitometrik analizi ile devam edin.
-
CHO hücre MHC sınıf ı boyama
Not: scMHC doğrulamak için önemlidir-hücre hatları transgene ifade kaybetmek gibi her deney üzerinde kullanılan hücre yüzey düzeyde hücre. 96 iyi plaka T hücre uyarılması için hazırlanırken, CHO hücre boyama için 12 iyi plaka 3.1.4 bölümünde belirtildiği gibi ayarlayın.- Bir hücre kazıyıcı kuyunun hücrelerden CHO ayırmak için kullanın. Epitope hasar nedeniyle proteolitik bölünme riskini azaltır gibi bu yöntem trypsinization için tercih edilir.
- 1 mL FACS tüp CHO hücrelere içeren medya aktarın. Spin aşağı 300-400 x g 5 dakika süreyle yeniden askıya alma 100 μL içinde FWB içinde seyreltilmiş anti-HLA antikor, 4 ° C'de de. Buz üzerinde 4 ° C'de 30 dk için kuluçkaya.
- Bu toplam A2 hücre yüzey ifade düzeyleri tespit etmek için anti-A2 antikor ve TCR benzeri antikor ile A2 için karmaşık ile E183 peptid32 agonist pMHC algılamak için özel boyama gerçekleştirmek-yüzey ifade seviyeleri hücre.
- FWB 1 mL CHO örnekleri ekleyin, 300-400 x g' de, 4 ° C, 5 dk, spin aşağı ve sonra örnek yeniden 0.3 mL FWB askıya alma. Akış Sitometresi Analizi ile devam edin.
Sonuçlar
MHC sınıf ı burada kullanılan teknoloji sc MHC sınıf hücre yüzey ifade hassas kontrol sağlar ben T hücre aktivasyonu ikna etmek için bilinen, kovalent bağlı peptidler ile. Co agonist pMHC (şekil 1 d, E) içinde agonist pMHC seviyesinin düşük sunumunu sağlayan bir mühendislik xenogeneic APC sistemi (şekil 1A, B, C) oluşturmuş. Eleştirel, bu sunum E183-HLA-A2 co agonist sc GAG-HLA-A2 (şekil 1E) ortak ifade tarafından değiştirilmez agonist SC göstermek için için HLA-A2 sunan E183 peptid TCR benzeri antikor belirli bir kullandık. Ancak, bu E183-HLA-A2 belirli TCR benzeri antikor HLA-A2 sunan GAG peptid (şekil 1E) için bazı bağlama gösterir belirtmek gerekir. Hücre sistemleri sunan benzer mühendislik antijen farklı özelliklerine ile insan T hücrelerinde TCR ve/veya coreceptor etkileşimleri için moleküler gereksinimlerini araştırmak için farklı peptidler ya da MHC molekülleri kullanarak oluşturulabilir.
Bu mühendislik ZPT bir E183 HLA-A2 özel insan CD8 + T hücre klon uyarmak için kullanılır. Üç negatif denetim kullanılmıştır: T hücreleri tek, untransfected T-REx CHO hücreleri ve T-REx CHO hücreleri (untransfected T-REx CHO ifade herhangi bir moleküller tarafından co agonist sc için potansiyel T test etmek için GAG-HLA-A2 yüksek miktarda ifade T-REx CHO hücreleri hücre harekete geçirmek hücreler yalnızca T hücre ile karşılaştırıldığında) ve T hücre aktivasyonu sc-GAG-HLA-A2 (sc-GAG-HLA-A2 untransfected T-REx CHO hücreleri ile karşılaştırıldığında yüksek düzeyde ifade T-REx CHO hücreleri) tarafından için. Untransfected T-REx CHO hücreleri veya sc-GAG-HLA-A2 ifade T-REx CHO hücreleri harekete geçirmek E183 HLA-A2 özel CD8 + CTL klonu, IFN γ üretimi ve degranulation işaret CD107a ifadesi T hücre bir ölçüsü olarak miktarının tarafından belirlenen neden değil sitotoksisite (şekil 2AB). Agonist sc E183-HLA-pozitif kontrolü, indüklenen çok verimli IFN γ üretimi ve degranulation (şekil 2AB), kullanılan sc HLA-A2 yapı tarafından belirli bir TCR etkinleştirmek için tanınabilir gösteren A2, yüksek düzeyde ifade T hücre efektör fonksiyonları. Sc E183-HLA-A2 düzeyi düşük ifade düzeyi düşük IFN γ üretimi ve degranulation indüklenen ve bu ortak agonist sc GAG-HLA-A2 (şekil 2AB) varlığı ile geliştirilmiş oldu. CD107a + T hücreleri çok yüksek oranlarda bile antijenik pMHC (şekil 2B), önceki raporlar miktarı için agonist pMHC T hücre indüksiyon için nispeten düşük gereksinimleri ile tutarlı seviyesinin düşük yanıt olarak gözlendi edilmelidir sitotoksisite33. Bir tek hücre olarak degranulation miktarını gösteren CD107a MFI daha iyi bir Dinamik Aralık (şekil 2B) sağlar. Kullanılan T hücre harekete geçirmek tahlil eşzamanlı miktar iki büyük efektör fonksiyonları sağlar: sitokin üretim ve sitotoksisite ve çok hassas okuma iyi dinamik ile hizmet sunmaktadır.
Tek zinciri teknoloji TCR bağlama co agonist pMHC için ortak agonist pMHC bağımlı harekete geçirmek geliştirme için gerekli olup olmadığını sınamak için kullanılan. Bu mutasyon TCR bağlama için HLA-A234kaldırılması için rapor olarak biz glutamik asit V152E mutant, oluşturmak için Valin HLA-A2 peptid bağlama groove (şekil 3B) konumunu 152 kenarında, mutasyona uğramış. Eğer V152E mutasyon TCR bağlama Bu mutasyon agonist sc E183-HLA-A2 içine tanıtımı ve T-REx CHO hücrelerde mutant agonist sc yapı ifade tarafından kullanılan E183-HLA-A2 CTL klon için kaldırılması sonra test ettik. Vahşi türü ancak değil V152E, sc E183-HLA-A2 kullanılan E183 HLA-A2 özel CTL klonu (şekil 3A) Etkinleştirme indüklenen. Herhangi bir TCR-bağlama mutasyon MHC sınıf üzerinde ayrı ayrı, mutasyon etkisini TCR ve pMHC karmaşık hassas moleküler Hofstede bağlı olacaktır ve bunlar arasında değişir gibi kullanılan her bireysel TCR/T hücre klon için test edilecek ihtiyacı belirtmek gerekir farklı TCRs. Örneğin, sekiz mutasyon test ettik, ya daha önce TCR-bağlama mutasyonlar veya peptid bağlama HLA-A2 içine abrogating olmadan TCR bağlama bozmaya tahmin mutasyonlar bildirdi. Bunlar V152E10E183 özgü T hücre klon aktivasyonu kaldırıldı tek mutasyon kullanılan oldu. Daha sonra V152E mutasyon co agonist sc GAG-HLA-A2 içine tanıtıldı ve WT veya V152E sc GAG-HLA-A2 agonist sc E183-HLA-A2 düzeyi düşük ile ortak dile getirdi. WT ve V152E sc TCR bağlama co agonist pMHC için ortak agonist pMHC bağımlı CD8 + T hücre harekete geçirmek geliştirme için gerekli değildir ima IFN γ üretimi ve degranulation (şekil 3 cD), GAG-HLA-A2 gelişmiş. Tek zincir MHC sınıf ı teknoloji, burada sunulan, TCR ve/veya bağlama MHC sınıf ı ile bilinen peptid coreceptor T hücre Antijen tanıma ve harekete geçirmek için moleküler gereksinimlerini araştırmak için değiştirmek için kullanılabilir.
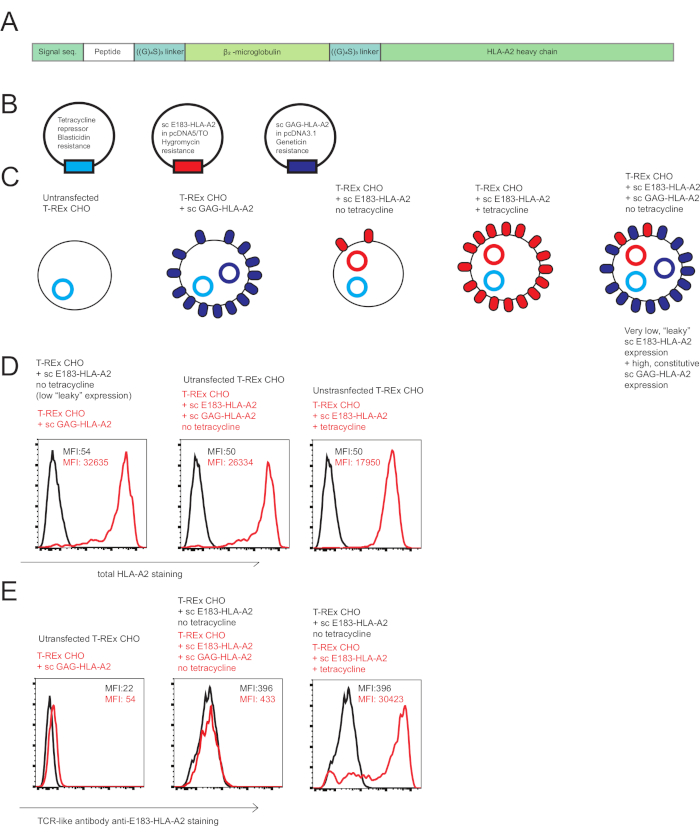
Şekil 1: tek insan CD8 + T hücre aktivasyonu co agonist araştırmak için kullanılan HLA-A2 oluşturur zinciri. Erimiş insan Beta2 Mikroglobulin, seçim, esnek glisin-serin bağlayıcı (GGGGSGGGGS GGGGS), insan Beta2 Mikroglobulin, esnek peptid kovalent sinyal serisinden oluşan bir scHLA-A2 yapısı(a)şematik diyagramı Glisin-serin bağlayıcı ve HLA-A2 ağır zincir. (B) co-agonism insan CD8 + T hücre aktivasyonu içinde araştırmak için hücreleri sunulması mühendislik antijen üretmek için kullanılan plazmid şematik Diyagramı: tetrasiklin önleyici, agonist sc E183-HLA-A2 tetrasiklin-indüklenebilir organizatörü, kontrol altında uyarıcı co agonist sc GAG-HLA-A2 yapısal etkin organizatörü kontrolü altında. (C) co-agonism araştırmak için kullanılan hücre sunan işlenmiş antijen şematik Diyagramı: T-REx CHO hücreleri (insan yok MHC ifade), T-REx CHO hücreler yapısal yüksek düzeyde sc GAG-HLA-A2 (uyarıcı co agonist pMHC), ifade T-REx CHO hücreleri "sızan" seviyesinin düşük: sc E183-HLA-A2 yokluğunda tetrasiklin (düşük düzeyde agonist peptid), ifade, sc E183-HLA-A2 tetrasiklin (agonist peptid yüksek düzeyde), huzurunda yüksek düzeyde ifade T-REx CHO hücreler T-REx CHO hücreleri. sc E183-HLA-A2 düzeyi düşük ve sc GAG-HLA-A2 (düşük düzeyde agonist peptid) ve co agonist peptid yüksek seviyede yüksek düzeyde ifade ediyorum. (D) hücre yüzey anti-HLA-A2 antikor kullanarak hücre satırları sunulması mühendislik antijen boyama. Gösterilen numaraların MHC leke canlı hücre kapısında MFI değerlerini gösterir. Veri 5 bağımsız deneyler (E) hücre yüzey karşı HLA-A2 sunan E183 peptid TCR benzeri antikor özel kullanarak hücre satırları sunan işlenmiş antijen boyama temsilcisi. Gösterilen numaraların MHC leke canlı hücre kapısında MFI değerlerini gösterir. Veri 5 bağımsız deney temsilcisi. Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
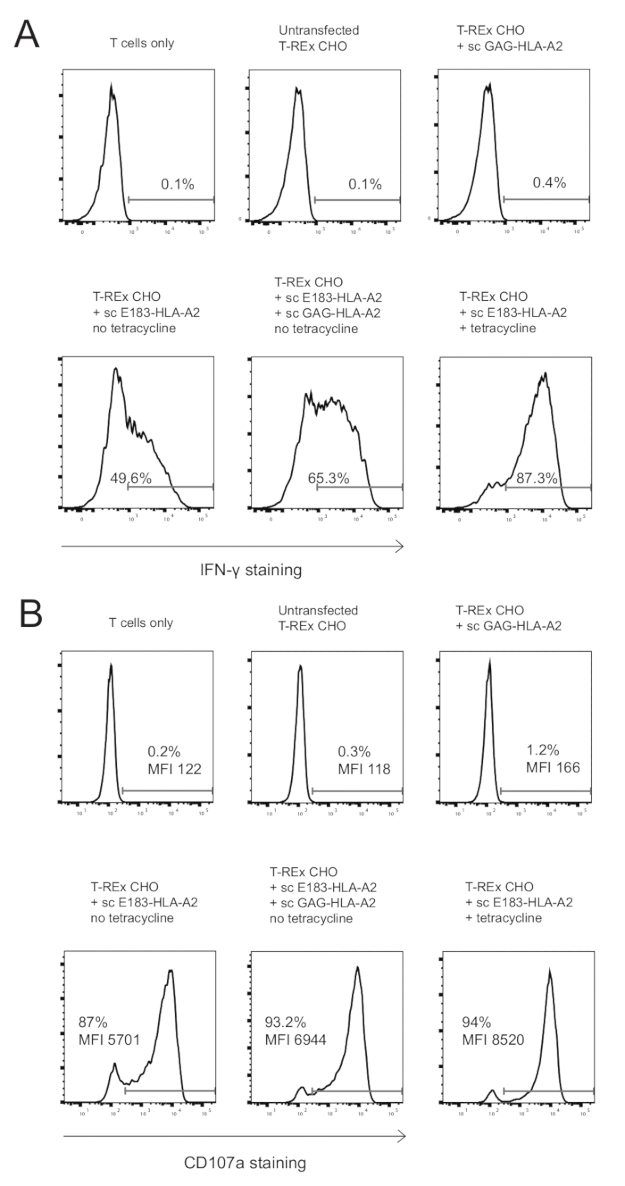
Şekil 2: ortak agonist pMHC varlığı gelişmiş sitokin üretim ve degranulation E183 HLA-A2 özel insan CD8 + CTL klonu. Hücre içi IFN γ-(a)HLA A2 özel insan CD8 + CTL klonu 3 h stimülasyon ile belirtilen sonra boyama mühendislik antijen sunan hücreler. Gösterilen numaraların IFN γ boyama için yüzde pozitif göstermek. Veri 3 bağımsız deney temsilcisi, her teknik triplicates ile gerçekleştirilen. (B) hücre yüzey 3 h stimülasyon ile belirtilen hücreleri sunulması antijen mühendislik sonra CD107a HLA A2 özel insan CD8 + CTL klonu boyama. Gösterilen numaralarının yüzde CD107a boyama için olumlu veya CD107a MFI CD8 + T hücre nüfus için göstermek. Veri 3 bağımsız deney temsilcisi, her teknik triplicates ile gerçekleştirilen. Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
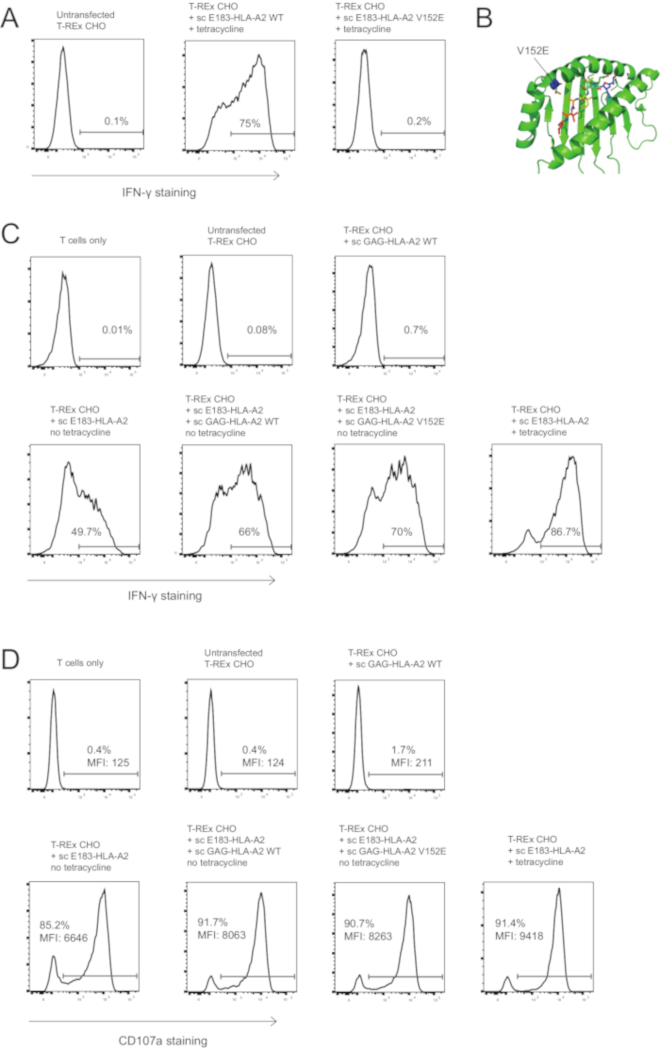
Şekil 3: co agonist-aracılı T hücre harekete geçirmek geliştirme eş agonist pMHC karmaşık TCR bağlama gerektirmez. (A)V152E mutasyon SC E183-HLA-A2 onuntemsilcilerini E183 HLA-A2 özel insan CD8 + CTL klon aktivasyonu. T-REx CHO hücreleri yüksek düzeyde (tetrasiklin indüksiyon) WT veya V152E mutant sc E183-HLA-A2 ifade E183 HLA-A2 özel insan CD8 + CTL klonu 3 h için uyarmak için kullanılmıştır. T hücre aktivasyonu hücre içi IFN γ boyama kullanarak sayısal. Gösterilen numaraların IFN γ boyama için yüzde pozitif göstermek. Veri 3 bağımsız deney temsilcisi, her teknik triplicates ile gerçekleştirilen. HLA-A2 peptid bağlama oluk içinde V152E mutasyon (B) konumu. (C) V152E mutasyon sc GAG-HLA-A2 co agonist pMHC karmaşık agonist-bağımlı harekete geçirmek geliştirme kaldırılması değil. Hücre içi IFN γ HLA A2 özel insan CD8 + CTL clone-in 4 h stimülasyon ile belirtilen sonra boyama antijen sunan hücreler mühendislik. Gösterilen numaraların IFN γ boyama için yüzde pozitif göstermek. Veri 3 bağımsız deney temsilcisi, her teknik triplicates ile gerçekleştirilen. (D) V152E mutasyon sc GAG-HLA-A2 co agonist pMHC karmaşık agonist-bağımlı harekete geçirmek geliştirme kaldırılması değil. 3 h stimülasyon ile belirtilen hücreleri sunulması antijen mühendislik sonra yüzey CD107a HLA A2 özel insan CD8 + CTL klonu boyama hücre. Gösterilen numaralarının yüzde CD107a boyama için olumlu veya CD107a MFI CD8 + T hücre nüfus için göstermek. Veri 3 bağımsız deney temsilcisi, her teknik triplicates ile gerçekleştirilen. Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
Tartışma
Sunulan Protokolü moleküler etkileşimleri soruşturma sırasında insan CD8 + T hücre aktivasyonu için güçlü bir araç sağlar. Co-agonism soruşturma sırasında insan T hücre aktivasyonu için önemli bir adım agonist pMHC sunu veya eş agonist pMHC ifade olmadan ZPT üzerinde eşit agonist sağlamak için hücre yüzey ifade pMHC üzerinde kontrol var. Deneysel sistemimizde bu bir tek hücre klon agonist pMHC supertransfection tarafından TCR benzeri antikor10, kullanarak bir ortak agonist pMHC yapý ve agonist pMHC miktar ile takip, düşük miktarda ifade kullanarak elde edilir 32. agonist sc pMHC ifade zamanla değişebilir, o agonist pMHC yüzey ifade TCR benzeri antikorları kullanarak her deneyde kullanılan ZPT üzerinde ölçmek için önemlidir. Hiçbir spesifik TCR benzeri antikor kullanılabilirse, agonist scMHC-floresan protein füzyon olarak ifade edilebilir ve hücre yüzey ifadesini sonra toplam iç yansıma Floresans mikroskobu gibi bir hassas mikroskopi yöntemi kullanarak sayısal 35 , 36. Ayrıca, ortak agonist pMHC hücre yüzey ifade metilasyonu bağlı ve - bağımsız CMV organizatörü37, susturmak nedeniyle, zaman içinde azalır ve ile antikor boyama ve Akış Sitometresi Analizi, kullanarak takip edilmelidir tekrarlanan FACS-gerektiğinde sıralama. Biz 5 hafta sc pMHC ifade nispeten sınırlı kaybı için CHO hücreler kültürlü. Biz çok kısa bir süre sonra seçimi/hücre bilinen sc MHC ifade ile güvenilir bir hisse senedi sağlamak için sıralama CHO hücreleri dondurma öneririz.
Ekipman durumu bağlı olarak veya özel araştırma amaçları bağlı olarak sunulan iletişim kurallarının birkaç adım değiştirilebilir. Örneğin, PBMC nükleer silahların yayılmasına karşı potansiyel olmak Inhibe (Adım 3.2.1) kullanarak bir gama (X-) değil istemek ya da alternatif yöntemler irradiator, mitomycin C38ile tedavi gibi. 3.3.1. adımda kazıma hücre yerine metal şelatörlerin39 içeren bir enzimatik olmayan hücre ayrılma arabellekleri kullanılabilir. Ayrıca, sistem sunulması antijen için insan CTL klonlar ifade farklı TCRs. CHO hücreleri hızlı hamster MHC sınıf ı molekülleri ve burada okudu CTL satırı için alakasız olmakla birlikte bunlar daha uygun yapmak için değiştirilebilir (şekil 2A ve Şekil 3A, biz gözlenen untransfected CHO hücreler hiçbir T hücre yanıt), diğer insan TCRs bazı xenoreactivity gösterebilir bir olasılık. Buna durumda, hamster MHC ifade sınıf hamster B2-microglubulin knocking tarafından azaltılabilir veya CRISPR/Cas9 kullanarak DOKUNUN; veya CRISPR/Cas9-aracılı B2-microglubulin veya DOKUNUN nakavt sonra insan bir APC satırı kullanılabilir.
Burada sunulan deneysel sistem önceden tanımlanmış peptidler sunumu MHC molekülleri ile TCR ve CD8 etkileşimlerin hassas kontrol sağlar. Örneğin, biz daha önce CD8 bağlama40 coagonist pMHC kaldırılması mutasyonlar fare ve insan CD8 + T hücreleri9,10, coagonist-aracılı harekete geçirmek donanım ortadan TCR abrogating ise göstermiştir Co agonist pMHC ile etkileşimi harekete geçirmek coagonist-aracılı geliştirme10üzerinde bir etkisi vardı. Ancak, tek zincir MHC yapıları kullanımı bazı sınırlamaları vardır. Örneğin, bu zaman ve bu birden fazla plazmid sc MHC farklı peptidler ve sonraki transfections ve hücre sıralama ile kodlama nesil içerir gibi birden çok eş agonist peptid sınamak için emek tüketen bu deneysel sistem kullanarak dizileri. Daha önce biz fare DOKUNUN-eksik hücre kültürünü RMA-S birden çok eş agonist peptidler fare T hücre harekete geçirmek8,9sınamak için kullanılan, ancak bu yaklaşım DOKUNUN-eksik insan T2 hücre satırı10ile büyük olasılıkla başarısız oldu DOKUNUN bağımsız peptidler41tanıtımı nedeniyle. Başka bir kısıtlamadır deneysel sistemimizin bu ortak agonist pMHC T hücre aktivasyonu tetiklemek için gerekli kritik miktarı belirlenmesi amacıyla ortak agonist pMHC molekülleri miktarını değiştirme için hızlı bir yöntem sağlamaz. Değişen tetrasiklin konsantrasyon HLA-A2 pozitif hücrelerinin oranını değiştirir gibi Ayrıca, kullanılan tetrasiklin-indüklenebilir sistemi titrasyon agonist pMHC miktar tek hücre düzeyinde tetrasiklin konsantrasyon değiştirerek izin vermez, Hücre başına olarak HLA-A2 düzeyleri yerine. Şu anda araştırıyoruz alternatif bir yaklaşım co-agonism fare CD4 + T hücre harekete geçirmek4 sırasında araştırmak için daha önce kullanılan desteklenen lipid bilayers42, kullanmak veya sunan sabit tutar olan agonist pMHC boncuk Co agonist pMHC değişen miktarlarda varlığı. UV yarilabilir peptid teknoloji4,43ile birlikte kullanıldığında, bu alternatif deneysel sistemleri hızlı birden çok eş agonist peptid dizileri yanı sıra eş agonist pMHC farklı miktarda test izin vermelidir .
Tek zincir MHC sınıf II moleküller sunulması peptidler başarıyla memeli hücre yüzeyleri44ifade edilmiştir önceden belirlendiği gibi sc MHC teknoloji aynı zamanda co-agonism CD4 T hücrelerinde, insan veya fare incelenmesi için geçerli olabilir. Ayrıca, sc MHC teknoloji kullanımı gibi HLA-E. klasik olmayan MHC molekülleri incelenmesi için Genişletilebilir SC HLA-E daha önce açıklanan ve onun ifade insan T hücre harekete geçirmek45inhibe olduğu gösterilmiştir. Başka bir klasik olmayan MHC ilgi lipidler peptidler46yerine sunar CD1 moleküldür. Sc yapıları CD1 ağır zincir ve B2-Mikroglobulin oluşan hücre yüzeyinde ifade edilecek ve ilgili lipid ligandlar47bağlamak için gösterilmiştir. Tek zincir MHC teknoloji moleküler etkileşimleri T ve NK hücre aktivasyonu sırasında araştıran bir araştırma aracı olarak büyük bir potansiyele sahiptir.
Açıklamalar
Yazarlar hiçbir rakip ilgi bildirin.
Teşekkürler
Bu araştırma Singapur Sağlık Bakanlığı'nın Ulusal Tıbbi Araştırma Konseyi altında oluştur altında R571-002-012-592 için Pam., Ulusal Araştırma Vakfı Investigatorship R571-000-272-281 Pam için tarafından N.R.J.G. için onun CBRG/0064/2014 tarafından desteklenmiştir . ve AB için bir Singapur translasyonel araştırma (STaR) Araştırmacı Ödülü (NMRC/STaR/013/2012) tarafından Uzman hücre sıralamak için NUS İmmünoloji program akışı çekirdek tesisten Dr Paul Hutchinson ve Bay Teo Guo Hui için minnettarız. Elijah Chen için el yazması eleştirel okuma için minnettarız.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Aim-V (serumsuz ortam) | Gibco | 12055091 | |
| Blasticidin | Gibco | R21001 | |
| Cytofix/Cytoperm (fiksasyon/permealibizasyon kiti) | BD | 554714 | |
| F12 | Gibco | 10565-018 | |
| Fetal sığır serumu (FBS) | HyClone | SH3007103 | |
| Geneticin | Gibco | ||
| GolgiPlug (Brefeldin A) | BD | 555029 | |
| İnsan serumu | Sigma-Aldrich | H4522 | |
| Higromisin | Gibco | 10687010 | |
| Phaseolus vulgaris'ten lektin (PHA) | Sigma-Aldrich | L4144 | |
| Opti-MEM (düşük serum ortamı) | Bibco | 31985070 | |
| 10x PBS | Vivantis | PB0344 & 1L | |
| Penisilin / Streptomisin | HyClone | SV30010 | |
| Polietilamin (PEI) | Sigma-Aldrich | 408727 | |
| Rekombinant insan IL2 | R& D Systems | 202-IL | |
| Rekombinant insan IL7 | R& D Systems | 207-IL | |
| Rekombinant insan IL15 | Ar-Ge D Sistemleri | 247-ILB | |
| Tetrasiklin | Sigma-Aldrich | T7660 | |
| T-REx CHO hücre hattı | Thermo Fisher Scientific | R71807 | |
| 10 x Tripsin / EDTA | Gibco | 15400054 | |
| Antikorları | |||
| CD3 | BD | 347347 | Klon SK7, RRID: AB_400287 |
| CD8 ve alfa; | BD | 563795 | Klon RPA-T8, RRID:AB_2722501 |
| CD107a | BD | 566261 | Klon H4A3, RRID:AB_2739639 |
| HLA-A2 | eBioscience | 17-9876-41 | Klon BB7.2, RRID:AB_11151522 |
| IFN-&gama; | eBioscience | 12-7319-41 | Klon 4S. B3, RRID:AB_1311250 |
Kaynaklar
- Gascoigne, N. R. Do T cells need endogenous peptides for activation? Nature Reviews. Immunology. 8 (11), 895-900 (2008).
- Gascoigne, N. R., Zal, T., Yachi, P. P., Hoerter, J. A. Co-receptors and recognition of self at the immunological synapse. Current Topics in Microbiology and Immunology. 340, 171-189 (2010).
- Krogsgaard, M., Juang, J., Davis, M. M. A role for "self" in T-cell activation. Seminars in Immunology. 19 (4), 236-244 (2007).
- Krogsgaard, M., et al. Agonist/endogenous peptide-MHC heterodimers drive T cell activation and sensitivity. Nature. 434 (7030), 238-243 (2005).
- Ebert, P. J., Jiang, S., Xie, J., Li, Q. J., Davis, M. M. An endogenous positively selecting peptide enhances mature T cell responses and becomes an autoantigen in the absence of microRNA miR-181a. Nature Immunology. 10 (11), 1162-1169 (2009).
- Lo, W. L., et al. An endogenous peptide positively selects and augments the activation and survival of peripheral CD4+ T cells. Nature Immunology. 10 (11), 1155-1161 (2009).
- Yachi, P. P., Ampudia, J., Gascoigne, N. R., Zal, T. Nonstimulatory peptides contribute to antigen-induced CD8-T cell receptor interaction at the immunological synapse. Nature Immunology. 6 (8), 785-792 (2005).
- Yachi, P. P., Lotz, C., Ampudia, J., Gascoigne, N. R. T cell activation enhancement by endogenous pMHC acts for both weak and strong agonists but varies with differentiation state. The Journal of Experimental Medicine. 204 (11), 2747-2757 (2007).
- Hoerter, J. A., et al. Coreceptor affinity for MHC defines peptide specificity requirements for TCR interaction with coagonist peptide-MHC. The Journal of Experimental Medicine. 210 (9), 1807-1821 (2013).
- Zhao, X., et al. Nonstimulatory peptide-MHC enhances human T-cell antigen-specific responses by amplifying proximal TCR signaling. Nature Communications. 9 (1), 2716(2018).
- Juang, J., et al. Peptide-MHC heterodimers show that thymic positive selection requires a more restricted set of self-peptides than negative selection. The Journal of Experimental Medicine. 207 (6), 1223-1234 (2010).
- Anikeeva, N., et al. Quantum dot/peptide-MHC biosensors reveal strong CD8-dependent cooperation between self and viral antigens that augment the T cell response. Proceedings of the National Academy of Sciences of the United States of America. 103 (45), 16846-16851 (2006).
- Anikeeva, N., Gakamsky, D., Scholler, J., Sykulev, Y. Evidence that the density of self peptide-MHC ligands regulates T-cell receptor signaling. PloS One. 7 (8), e41466(2012).
- Schuren, A. B., Costa, A. I., Wiertz, E. J. Recent advances in viral evasion of the MHC Class I processing pathway. Current Opinion in Immunology. 40, 43-50 (2016).
- Bubenik, J. MHC class I down regulation, tumour escape from immune surveillance and design of therapeutic strategies. Folia Biologica. 51 (1), 1-2 (2005).
- Apps, R., et al. Influence of HLA-C expression level on HIV control. Science. 340 (6128), New York, N.Y. 87-91 (2013).
- Cebecauer, M., et al. CD8+ cytotoxic T lymphocyte activation by soluble major histocompatibility complex-peptide dimers. The Journal of Biological Chemistry. 280 (25), 23820-23828 (2005).
- Sporri, R., Reis e Sousa, C. Self peptide/MHC class I complexes have a negligible effect on the response of some CD8+ T cells to foreign antigen. European Journal of Immunology. 32 (11), 3161-3170 (2002).
- Ljunggren, H. G., et al. Empty MHC class I molecules come out in the cold. Nature. 346 (6283), 476-480 (1990).
- Kotsiou, E., Brzostek, J., Gould, K. G. Properties and applications of single-chain major histocompatibility complex class I molecules. Antioxidants & Redox Signaling. 15 (3), 645-655 (2011).
- Hansen, T. H., Connolly, J. M., Gould, K. G., Fremont, D. H. Basic and translational applications of engineered MHC class I proteins. Trends in Immunology. 31 (10), 363-369 (2010).
- Yu, Y. Y., Netuschil, N., Lybarger, L., Connolly, J. M., Hansen, T. H. Cutting edge: single-chain trimers of MHC class I molecules form stable structures that potently stimulate antigen-specific T cells and B cells. Journal of Immunology. 168 (7), Baltimore, Md. 3145-3149 (2002).
- Mitaksov, V., et al. Structural engineering of pMHC reagents for T cell vaccines and diagnostics. Chemistry & Biology. 14 (8), 909-922 (2007).
- Truscott, S. M., et al. Disulfide bond engineering to trap peptides in the MHC class I binding groove. Journal of Immunology. 178 (10), Baltimore, Md. 6280-6289 (2007).
- Truscott, S. M., et al. Human major histocompatibility complex (MHC) class I molecules with disulfide traps secure disease-related antigenic peptides and exclude competitor peptides. The Journal of Biological Chemistry. 283 (12), 7480-7490 (2008).
- Bertoletti, A., Ferrari, C. Innate and adaptive immune responses in chronic hepatitis B virus infections: towards restoration of immune control of viral infection. Postgraduate Medical Journal. 89 (1051), 294-304 (2013).
- Boni, C., et al. Characterization of hepatitis B virus (HBV)-specific T-cell dysfunction in chronic HBV infection. Journal of Virology. 81 (8), 4215-4225 (2007).
- Gehring, A. J., et al. Engineering virus-specific T cells that target HBV infected hepatocytes and hepatocellular carcinoma cell lines. Journal of Hepatology. 55 (1), 103-110 (2011).
- Gehring, A. J., et al. The level of viral antigen presented by hepatocytes influences CD8 T-cell function. Journal of Virology. 81 (6), 2940-2949 (2007).
- Bertoni, R., et al. Human histocompatibility leukocyte antigen-binding supermotifs predict broadly cross-reactive cytotoxic T lymphocyte responses in patients with acute hepatitis. The Journal of Clinical Investigation. 100 (3), 503-513 (1997).
- Goulder, P. J., et al. Patterns of immunodominance in HIV-1-specific cytotoxic T lymphocyte responses in two human histocompatibility leukocyte antigens (HLA)-identical siblings with HLA-A*0201 are influenced by epitope mutation. The Journal of Experimental Medicine. 185 (8), 1423-1433 (1997).
- Sastry, K. S., et al. Targeting hepatitis B virus-infected cells with a T-cell receptor-like antibody. Journal of Virology. 85 (5), 1935-1942 (2011).
- vanden Berg, H. A., et al. Cellular-level versus receptor-level response threshold hierarchies in T-cell activation. Frontiers in Immunology. 4, 250(2013).
- Moots, R. J., Matsui, M., Pazmany, L., McMichael, A. J., Frelinger, J. A. A cluster of mutations in HLA-A2 alpha 2 helix abolishes peptide recognition by T cells. Immunogenetics. 34 (3), 141-148 (1991).
- Crites, T. J., Chen, L., Varma, R. A TIRF microscopy technique for real-time, simultaneous imaging of the TCR and its associated signaling proteins. Journal of Visualized Experiments. (61), (2012).
- Axmann, M., Schutz, G. J., Huppa, J. B. Single Molecule Fluorescence Microscopy on Planar Supported Bilayers. Journal of Visualized Experiments. (105), e53158(2015).
- Mariati,, Koh, E. Y., Yeo, J. H., Ho, S. C., Yang, Y. Toward stable gene expression in CHO cells. Bioengineered. 5 (5), 340-345 (2014).
- Matsushita, S., Tanaka, Y., Matsuoka, T., Nakashima, T. Clonal expansion of freshly isolated CD4T cells by randomized peptides and identification of peptide ligands using combinatorial peptide libraries. European Journal of Immunology. 31 (8), 2395-2402 (2001).
- Heng, B. C., Cowan, C. M., Basu, S. Comparison of enzymatic and non-enzymatic means of dissociating adherent monolayers of mesenchymal stem cells. Biological Procedures Online. 11, 161-169 (2009).
- Smith, K., et al. Sensory adaptation in naive peripheral CD4 T cells. The Journal of Experimental Medicine. 194 (9), 1253-1261 (2001).
- Wei, M. L., Cresswell, P. HLA-A2 molecules in an antigen-processing mutant cell contain signal sequence-derived peptides. Nature. 356 (6368), 443-446 (1992).
- Vardhana, S., Dustin, M. Supported Planar Bilayers for the Formation of Study of Immunological Synapses and Kinapse. Journal of Visualized Experiments. (19), (2008).
- Bakker, A. H., et al. Conditional MHC class I ligands and peptide exchange technology for the human MHC gene products HLA-A1, -A3, -A11, and -B7. Proceedings of the National Academy of Sciences of the United States of America. 105 (10), 3825-3830 (2008).
- Rhode, P. R., et al. Single-chain MHC class II molecules induce T cell activation and apoptosis. Journal of Immunology. 157 (11), Baltimore, Md. 4885-4891 (1996).
- Crew, M. D., Cannon, M. J., Phanavanh, B., Garcia-Borges, C. N. An HLA-E single chain trimer inhibits human NK cell reactivity towards porcine cells. Molecular Immunology. 42 (10), 1205-1214 (2005).
- Van Kaer, L., Wu, L., Joyce, S. Mechanisms and Consequences of Antigen Presentation by CD1. Trends in Immunology. 37 (11), 738-754 (2016).
- Im, J. S., et al. Direct measurement of antigen binding properties of CD1 proteins using fluorescent lipid probes. The Journal of Biological Chemistry. 279 (1), 299-310 (2004).
Yeniden basım ve izinler
