Membran protein saflaştırma ve peptidiskler içine reconstitution birleştiren bir yöntem tek bir kromatografik adımda salıyoruz. Biyotinylated iskeleler biyolayer interferometri ile protein-ligand etkileşimlerinin doğrudan yüzey eki ve ölçümü için kullanılır.
Yöntem makalesi
PeptiQuick, Aerodinamik Protein Bağlayıcı Tahliller için Biyotinylated Peptidiskler içine Membran Proteinlerin Bir Adım Dahil
Bu makalede
Özet
Özet
Taşıyıcılar, kanallar ve reseptörler de dahil olmak üzere membran proteinleri hücresel proteomun yaklaşık dörtte birini ve mevcut ilaç hedeflerinin yarısından fazlasını oluşturmaktadır. Ancak, akademik veya endüstriyel ortamlarda ki karakterizasyonu ve sömürülmesinin önündeki en büyük engel, biyokimyasal, biyofiziksel ve ilaç tarama stratejilerinin çoğunun bu proteinlerin suda çözünebilir durumda olmasını gerektirmesidir. Laboratuvarımız yakın zamanda membran protein çözünürlüğü sorununa "her şeye uygun bir" yaklaşım sunan bir membran mimetik olan peptidiski geliştirdi. Burada protein saflaştırma ve peptidisk reconstitution tek bir kromatografik adımda birleştiren aerodinamik bir protokol salıyoruz. PeptiQuick olarak adlandırılan bu iş akışı, polistiren boncuklarla diyaliz ve kuluçkayı atlayarak deterjana, protein denatürasyonuna ve numune kaybına maruz kalmanın büyük ölçüde azaltılmasına olanak sağlar. PeptiQuick biyotinylated iskeleler ile yapıldığında, hazırlık doğrudan streptavidin kaplı yüzeylere takılabilir. Membran protein hedefini biyotinyle etmeye veya değiştirmeye gerek yoktur. PeptiQuick burada membran reseptörü FhuA ve antimikrobiyal ligand kolikin M ile, biyolayer interferometri kullanarak etkileşimlerinin kesin kinetik belirlemek için sergilenir. PeptiQuick'in deterjansız bir ortamda bir gün içinde membran protein-ligand etkileşimlerini hazırlamak ve analiz etmek için uygun bir yol olduğu sonucuna varılır.
Giriş
Membran proteinleri genellikle ilaç veya antikor keşif araştırma programları lipid iki katmanlı ortamın dışında toplamak için membran proteinlerinin eğilimi nedeniyle dışlanır, özellikle deterjanların varlığında1. Bu nedenle, son yıllarda, membran proteinlerinin tamamen deterjansız bir ortamda (yani nanodiskler, SMALP'ler, amfipodlar, vb.) izolasyonu ve sorgulanmasını kolaylaştırmak için çeşitli membran mimetikler (scaffolds olarak adlandırılmıştır) geliştirilmiştir. 2,3,4,5,6. Ancak, bu mimetiklerde membran proteinlerinin yeniden yapılandırılması genellikle zaman alan ve genellikle protein gerikazanımkaybı7 ile birlikte olan kapsamlı optimizasyon gerektirir 7,8. Bu sınırlamaları aşmak için, laboratuvarımız son zamanlarda peptidisk9olarak bilinen bir "tek boyutlu-fit-all" formülasyonu geliştirdi. Peptidisk bir tasarımcının birden fazla kopya oluşur 4.5 kDa amphipathic bihelical peptid bir hedef membran proteinhidrofobik yüzeye bağlı. Peptidiskde stabil yeniden yapılanma, deterjanların çıkarılmasıyla ortaya çıkar, hem endojen lipidleri hem de çözünür zar proteinlerini suda çözünen parçacıklara hapseder. Bu stabilize parçacıklar artık çok sayıda downstream uygulamaları için uygun.
Peptidisk yöntemi çeşitli avantajlar sunar; örneğin, peptidisk iskelenin hedefe bağlanması protein şablonunun kendisi tarafından yönlendirilen 9,10olduğundan, yeniden yapılanma basittir. Peptit stoiyometrisi de kendi kendini belirlenir ve eksojen lipidlerin eklenmesi gerekli değildir. Peptidisk oluşumu basit deterjan seyreltme, diyaliz veya polistiren boncuklar üzerinde adsorpsiyon üzerinde önemli bir avantaj oluşur, genellikle non-spesifik yüzey ilişkisi ve toplama nedeniyle düşük protein verimi neden11,12 ,13. Son peptidisk montajı son derece termokararlı ve her zaman farklı tamponlar veya divalent katyonlar (örneğin, Ni2 +varlığında çözünür). İskelenin saflığı ve yapısal homojenliği de yüksektir (örn. endotoksin içermez) ve peptid farklı konumlara yerleştirilen fonksiyonel gruplarla özelleştirilebilir.
Burada peptiquick adlı bir laboratuvar iş akışı, ayrıca on-boncuk reconstitution olarak bilinen sunuyoruz9. Bu protokol membran protein saflaştırma ve peptidisk reconstitution tek bir adım ve aynı kromatografik destek birleştirir. Adından da anlaşılacağı gibi, PeptiQuick diğer reconstitution yöntemleri ile karşılaştırıldığında hızlı, ve aynı zamanda ciddi deterjan maruz kalma süresini azaltır. Protein unfolding ve toplama gibi negatif deterjan etkileri genellikle zamana bağlı bir şekilde ortaya çıkar; bu nedenle, deterjan maruziyetini en aza indirmek yerli protein konformasyonu korumak için önemlidir14,15. Bu, protein etkileşimleri ve ligand bağlayıcı yakınlıklar hakkında rapor yöntemlerin doğruluğu için çok önemlidir.
Bu protokolü geliştirirken, biyo-peptidisk olarak adlandırdığı peptidisk iskelesinin biyotinylated versiyonunu sıyoruz. Biotin fonksiyonel grupları, hedef membran proteininin streptavidin kaplı yüzeylere bağlanmasını sağlar. Biotin etiketleme iskele ile sınırlı olduğundan, hedef membran proteininin bağlayıcı alanları değişmeden kalır. Biyo-Peptidisk kullanılarak, bakteri membran reseptörü FhuA ve antimikrobiyal peptid kolikin M (ColM) bağlayıcı kinetik16belirlenir. Bu yakınlık biyokatman interferometrisi (BLI) ile ölçülür ve bu da bir sensör ucundan yansıyan beyaz ışık girişim desenlerine dayanarak etkileşimleri gerçek zamanlı olarak analiz eder.
Bu protokol kullanılarak, deterjanlar etkileşimleri bozabileceğinden, BLI analizi sırasında deterjan ihtiyacı ortadan kalkar ve bu önemli bir gelişmedir. Bağlayıcı yakınlıklar bu yöntemle hızla ölçülebilir ve sonuçlar daha önce nanodiskler ve izotermik titrasyon kalorimetresi (ITC) kullanılarak bildirilenlerle karşılaştırılabilir16. PeptiQuick iş akışındaki kritik adımlar, protein hazırlama, deterjan seyreltme, peptit ilavesi ve yeniden yapılanma gibi kritik adımların yanı sıra BLI analizinde ligand ve analit bağlamayı giderme ipuçları nı gösterir ve tartışır. PeptiQuick iş akışı kullanılarak, membran proteinlerinin peptidisklerde yakalandığı ve etkileşimlerinin bir gün içinde ölçülebileceği saptakedilir.
Protokol
1. Membran reseptörü FhuA'nın hazırlanması ve çözünürasyonu
- Express Onun6etiketli FhuA Escherichia coli zorlanma AW740. M9 ortamlarında 37 °C'de 18 saat boyunca hücreleri büyütün (Tablo 1). Ayrıntılı bir ifade protokolü için Mills ve ark.16'ya bakın.
- Hücreleri santrifüj (5.000 x g,10 dk, 4 °C) ile hasat eder ve 50 mL Tris-salt-glycerol (TSG) tamponu içinde yeniden askıya alır (Tablo 1). Yeniden askıya alınan hücreleri kurutun ve feniltantanısülfonilflorür (PMSF) 1 mM'lik son konsantrasyona ilave edin.
DİkKAT: PMSF toksik ve aşındırıcıdır. - Hücreleri 15.000 psi'de mikroakışkanlaştırıcı (üç pasaj) veya 8.000 psi'de bir Fransız basını (üç pasaj) kullanarak lyse. Pelet düşük hızlı santrifüj (5.000 x g, 10 dk, 4 °C) tarafından unlysed hücreleri ve diğer çözünmez malzeme.
- Ultracentrifuge supernatant (200.000 x g, 40 dk, 4 °C) ham membran fraksiyonu izole etmek. Supernatant atın, TSG tampon minimum miktarda membran pelet resuspend, ve homojenlik sağlamak için bir cam veya metal douncer aparatı kullanarak dounce.
- Resuspended ham membran protein konsantrasyonu kontrol etmek için bir Bradford tsay gerçekleştirin. Solubilizasyon dan önce TSG tamponu kullanarak ham membranı 3 mg/mL'lik son konsantrasyona seyreltin.
- Bakteriyel iç zarı seçici olarak 4 °C'de 1 saat boyunca hassas bir şekilde hassaslaştırmak için %1'lik (v/v) son konsantrasyonuna deterjan Triton X-100 ekleyin. Pellet çözünmez malzeme (dış membran fraksiyonu) ultracentrifugation (200.000 x g, 40 dk, 4 °C).
- Çözünür membraniçeren supernatant atın ve 3 mg / mL son konsantrasyona TSG pelet resuspend. Resuspended dış membran fraksiyonuna %1 (v/v) konsantrasyonuna lauryldimethylamamin oksit (LDAO) ekleyin ve 4 °C'de yumuşak sallanan 1 saat solubilize olun.
- Tüm çözünmez malzeme (200.000 x g, 40 dk, 4 °C) pelet için son bir santrifüj adımı gerçekleştirin.
NOT: Ortaya çıkan supernatant, hedef etiketli FhuA da dahil olmak üzere çözünür dış membran proteinleri içerir.
2. PeptiQuick iş akışını kullanarak FhuA'nın saflaştırılması ve yeniden yapılandırılması
- Önceden paketlenmiş bir Ni-NTA sütunu (5 mL reçine hacmi) iki kolon hacmi hareketsiz metal afinite kromatografisi (IMAC) yıkama tamponu ile önceden dengeleyin(Tablo 1).
- TSG kullanarak çözünür dış membranı %1 LDAO'dan %0.04 LDAO'ya seyreltin. Daha sonra, 5 mM son konsantrasyoniçin imidazol ekleyin.
DİkKAT: İmidazol toksik ve aşındırıcıdır. - Çözünen dış membran proteinlerini Ni-NTA reçine yükleyin ve akışı toplayın. FhuA'nın reçine bağlanmasını artırmak ve ikincil akışı toplamak için reçine akışı yeniden yükleyin.
NOT: Daha sonra sodyum dodecyl sülfat poliakrilamid jel elektroforez (SDS-PAGE) analizi için referans olarak çözünmüş malzemeden 20 μL aliquot saklayın. - Reçiyiyi 250 mL IMAC yıkama tamponu ile yıkayın ve ilk 50 mL eluate'yi toplayın. Yıkama tamponu reçine yatak hacminin yüksekliğine drenaj ve sütun üzerinde stopcock kapatın.
- Kolonun üzerine konsantre 10 mg/mL Bio-Peptidisk peptid çözeltisi(Tablo 1)1 mL ekleyin. TSG'ye 50 mL seyreltik 1 mg/mL Bio-Peptidisk peptid çözeltisi ekleyin ve TSG'deki boncukları yeniden askıya almak için rezoriyi cam çubukla karıştırın.
- Peptidisk bindirmesini takiben, rezorin yerleşmesine ve fazla 1 mg/mL Bio-Peptidisk çözeltisini rezorin üzerinden boşaltmasına izin verin.
- Ni-NTA ekli peptidisk partiküllerini 50 mL TSG ile yıkayın. TSG'de 600 mM imidazol içeren 15 mL IMAC elüsyon tamponu(Tablo 1)ile peptidisk partiküllerini eute. 1 mL kesirleri toplayın ve leached nikel iyonlarını çitlemek için hemen 0,5 M EDTA'nın 10 μL'sini ekleyin.
DİkKAT: EDTA bir tahriş edici.
3. PeptiQuick yeniden anayasadeğerlendirilmesi
- SDS-PAGE analizi
- Başlangıç malzemesinin 10 μL aliquots yükleyin, akış, yıkama(es) ve PeptiQuick reconstitution bir% 12 SDS-denaturing jel ve elektroforez üzerine eluted fraksiyonları 30 dakika boyunca sabit bir akım 60 mA.
- Coomassie mavi boya ile jel leke, jel leke ve bir tarayıcı üzerinde görselleştirmek.
- Boyut dışlama kromatografisi (SEC)
- PeptiQuick reconstitution% 12 SDS-PAGE analizine dayanarak, izole ve ilgili kesirler havuz ve 30 kDa cut-off santrifüj konsantratörü kullanarak konsantre.
NOT: Eşlik eden videoda, F3-F7 kesirleri bir araya getirilmiştir ve 1 mL'nin (SEC cihazındaki enjeksiyon döngüsü hacmi) altında yoğunlaşmıştır. - TSG tamponunda 0,25 mL/dk akış hızında bir jel filtrasyon S200 (300/10) sütunüzerine havuzlu IMAC elüsyon fraksiyonlarının ~1 mL enjekte edin. 1 mL kesirleri toplayın ve hangi SEC fraksiyonlarının havuza girip konsantre olduğunu belirlemek için %12'lik bir SDS jeli üzerinde çalıştırın.
NOT: Eluted PeptiQuick fraksiyonları konsantrasyon olmadan havuzlanmış olabilir ve bir aliquot reconstitution kalitesini kontrol etmek için SEC üzerine enjekte edilebilir. Bu santrifüj konsantrasyonu sırasında agregasyonpotansiyel olarak duyarlı membran proteinleri için önemli bir kontroldür.
- PeptiQuick reconstitution% 12 SDS-PAGE analizine dayanarak, izole ve ilgili kesirler havuz ve 30 kDa cut-off santrifüj konsantratörü kullanarak konsantre.
4. Biyokatman interferometrisi
- BLI deneysel kurulum
- 96 kuyu plakasını elle ayarlayın.
NOT: Tüm kuyular 200 μL'lik son bir hacme kadar doldurulur. - Sütun 1'de, A−E satırları, uçların bir temel sinyali dengelemesine ve oluşturmasına izin vermek için 200 μL kinetik arabelleği yükleyin.
- Ligandı (Bio-Peptidisk'teki FhuA) kinetik tamponda 2,5 μg/mL konsantrasyona seyreltin (Tablo 1). Bu seyreltmenin 200 μL'sini sütun 2'deki A−D satırlarına yükleyin.
- Sadece E2'ye (referans sensörü) 200 μL kinetik tampon ekleyin.
- Sütun 3'e 200 μL kinetik arabellek ekleyin, fazla FhuA'yı uçtan yıkamak için A−E satırları.
- 4. sütunda, a4'ten D4'e kadar olan tablanın (ColM) iki kat seri seyreltmelerini gerçekleştirin. D4'te A4 ile 3,5 nM (1*Kd) arasında 28 nM (8*Kd) ile başlayın.
- Spesifik olmayan bağlama (kullanılan en yüksek ColM konsantrasyonu) ölçmek için E4'e 28 nM ColM ekleyin.
- Sütun 5'e 200 μL kinetik arabellek ekleyin, A−E satırları.
NOT: Burada, ColM uçtan ayrılacaktır ve ayrışma ölçülür. - Kurulum plakasını BLI aletine yerleştirin.
- Sensör uç tepsisini BLI cihazına yerleştirin.
- BLI veri toplama yazılımını açın ve yazılım sihirbazında Yeni Kinetik Deneyi'ni seçin.
- 96 kuyu plakasının düzenini yazılıma girmek için plaka tanım sekmesini kullanın.
NOT: Ligand, FhuA içeren kuyular "Yük" olarak giriş yapılır. Arabellek içeren kuyular yalnızca "Arabellek" olarak giriş yapılır. Analit, ColM içeren kuyular "Örnek" olarak girişlenir. - Denemedeki her adım için zaman ve plaka döndürme hızının uzunluğunu tanımlamak için test tanımı sekmesini kullanın.
NOT: Deneysel adımlar olarak ayarlanır: 1) taban çizgisi: 60 s; 2) yükleme: 250 s; 3) taban çizgisi2: 300 s; 4) dernek: 450 s; ve 5) ayrışma: 900 s. varsayılan olarak sarsıntı hızı bırakın (1,000 rpm). Yukarıdaki adımlar, istenen adımı seçerek 96 kuyu plakasındaki her sütuna ayrı ayrı atanır ve her sütunda Assay Adımı Ekle'yi sağ tıklatın. - İlk sütuna sağ tıklayarak ilk adımı atayın ve Yeni Teşriyi Başlat'ıseçin. Taban çizgisi adımının sağ alt pencereyi kullanarak doğru şekilde atandığından emin olun ve gerektiğinde açılır menüyle değiştirin.
- Plaka boyunca sağ tıklayarak ve Assay Adımı Ekle'yiseçerek sonraki adımları her sütuna atayın. Bunları adım 4.1.13'te ayarlanan uygun sütuna atayın.
- Sekizli aletin sensör tepsisindeki doğru konumdan BLI pinleri aldığını sağlamak için sensör atama sekmesini kullanın.
NOT: Sensör atama sekmesinde, yalnızca A1−E1 mavi vurgulanmalıdır. Bu konumlarda sensör tepsisinde bir sensör ucu olduğundan ve F1−H1'in boş olduğundan emin olun. - Ekranda F1−H1'i vurgulayın, ardından bunları boş olarak işaretlemek için sağ tıklatın ve Kaldır'ı seçin. Kullanılan sensörleri korumak için kullanımdan sonra tepsideki sensörleri değiştir'i işaretleyin.
- Yürütmeden önce denemenin son genel görünümünü sağlayan inceleme deneme sekmesinde, tüm kurulumun doğru olduğundan emin olmak için deney adımlarını gözden geçirin.
- Denemeyi çalıştır sekmesinde, yöntem dosyalarını kaydetmek için bir dosya konumu seçin.
- Plaka sıcaklığını oda sıcaklığına değiştirin.
- Denemeyi çalıştırmak için GO'yu seçin.
- 96 kuyu plakasını elle ayarlayın.
- BLI veri analizi
- Octet BLI veri analizi yazılımını açın.
- Denemeyi bulmak ve deneme özetini kontrol etmek için veri seçimi sekmesini kullanın. Proje dosyasını adım 4.1.19 sırasında tanımlanan kaydet konumundan içeri aktarın.
- Her deney için sensör bilgilerini seçerek analit (burada, ColM) konsantrasyonlarını girdi.
- İpucunu E1'de referans ipucu olarak atayın.
- Referans sinyalini (E1) deneysel verilerden çıkarmak için işleme sekmesini kullanın. Nonspesifik analit bağlama için referans ucundaki ham verileri kontrol edin. Hiçbir gözlenmezise, devam edin.
NOT: Bu önemli bir negatif denetimdir. Spesifik olmayan bağlama gözlenirse, bu adım 4.2.7'de muhasebelenecektir. - Y eksenini ikinci taban çizgisi adımına hizala. Adım lar arası bağlantıyı işaretlemeyin. Savitzky-Golay filtreleme'yi seçin. İşlem Verilerini Seçin!
- Analiz sekmesinde, referans sensöründen gelen sinyalle ilişkilendirme ve ayrışma eğrilerini görmek için çizimin altındaki tablodaki deneysel verileri seçin.
- 1:1 bağlama modelini seçin ve kısmi bir eğri sığdırmayı seçin. Fit Eğrileri'ni seçin!
- Eğri uydurmasını kontrol etmek için artık görünüm çizimini analiz edin.
- Hesaplanan Kd'yigörmek için tabloda ilerleyin.
- Kurulumu, ham ve çözümlenmiş verilerin çizimlerini ve hesaplanan çözümleme sabitlerini ayrıntılı olarak açıklayan bir elektronik tablo belgesini kaydetmek için Raporu Kaydet... seçeneğini belirleyin.
Sonuçlar
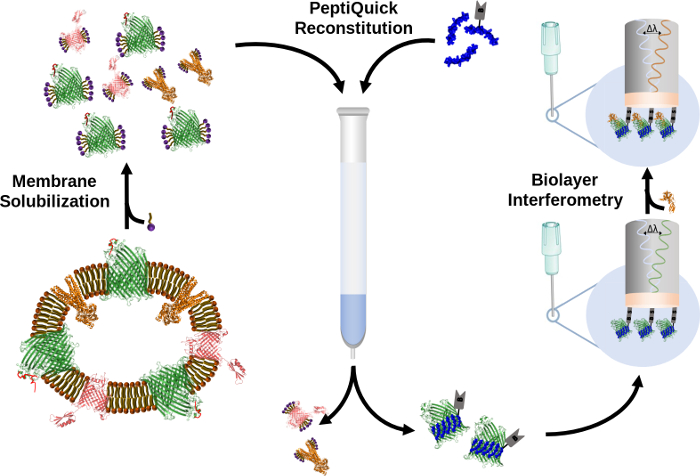
Membran reseptörü FhuA bir laboratuvar E. coli suşu ile ifade edilir. Dış membran fraksiyonu santrifüj ile hasat edilir ve proteinler iki adımlı deterjan ekstraksiyonu kullanılarak çözünür. Çözünür membran proteinleri plastik bir kolonda paketlenmiş Ni-NTA agarose boncuküzerine yüklenir, ardından protokolde sunulan PeptiQuick iş akışı. Boyut dışlama kromatografisi kullanılarak kalite kontrolünden sonra, Biyo-Peptidisk parçacıkları streptavidin kaplı iğneler üzerine hareketsiz hale getirilir. BLI analizi FhuA ve ColM arasındaki etkileşimlerin kinetik ölçmek için yapılır. Bu deneyin şematik genel bakışı Şekil 1'desunulmuştur.
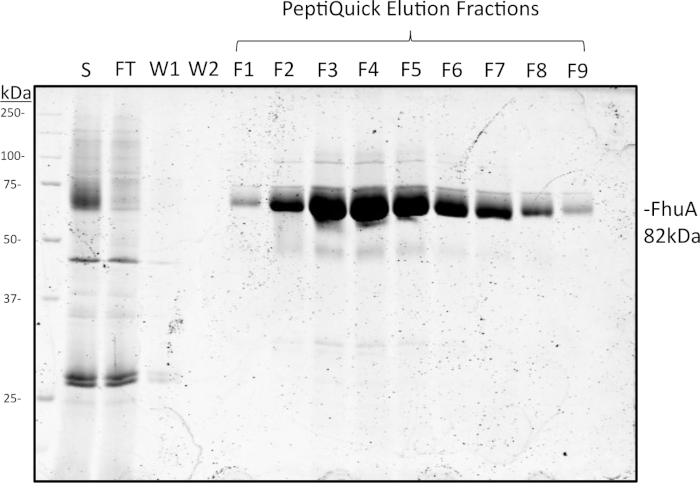
Bir SDS jel IMAC sütunundan FhuA Biyo-Peptidisk parçacıklarının elution sonra reconstitution kalitesini belirlemek için çalıştırılır(Şekil 2). PeptiQuick yönteminin başarısını değerlendirmek için başlangıç, akış, yıpranma ve elüsasyon fraksiyonlarına karşılık gelen kesirlerin aliquots SDS-jel üzerine yüklenir. FhuA'nın fraksiyonyoluyla akıştaki tükenmesi, elüsyon fraksiyonlarında bir zenginleştirme ile ilişkilidir, bu da proteinin saflaştırılmasının etkili olduğunu gösterir. Eluted fraksiyonlarında küçük kirletici protein bantları gözlenir. SDS jel analizi, SEC analizinden önce hangi fraksiyonların biraraya edilmesi gerektiğini belirlemek için kullanılır. Eluted FhuA Bio-Peptidisk parçacıkların bir yerli jel de FhuA çözünürlüğü onaylamak için çalıştırılır (Ek Şekil 1). Yeniden yapıya giren proteinin yerli jele geçişi, deterjansız bir ortamda protein çözünürlüğünü gösterir.
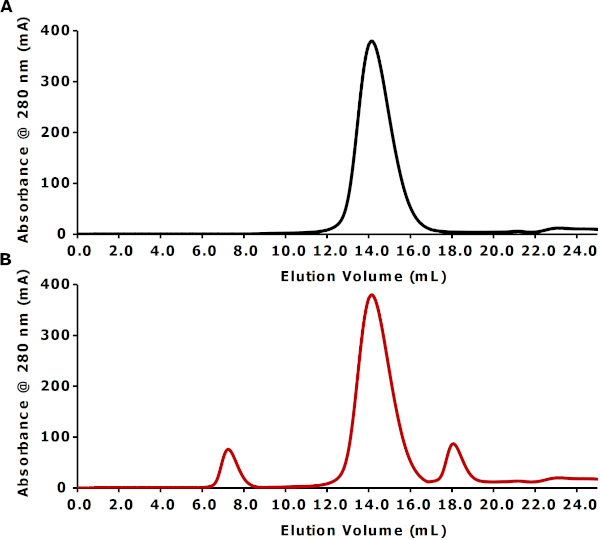
Sec analizi peptidisk parçacıkların çözünürlüğünü değerlendirmek için yapılır. Şekil 3A'da sunulan kromatogram, jel filtrasyon S200 10/300 sütununda 8.0 mL'lik boşluk hacmini 6 mL'de tek, simetrik bir tepe noktası gösterir. Bu tepenin konumu, boşluk hacmi geçmiş, FhuA Bio-Peptidisk parçacıkların çözünürlüğünü doğrular. Referans olarak, Şekil 3B teorik suboptimal peptidisk preparatlarını göstermektedir. Bu durumda, kromatogram, protein agregalarının varlığını gösteren, boşluk hacminde eluting daha büyük bir protein tepe gösterir. Ana peptid tepesini sadece geçerek daha küçük bir tepe eluting aşırı peptidisk peptidlere karşılık gelir.
FhuA'nın analit ColM ile etkileşimi, peptidisklerin streptavidin kaplı sensörlere bağlanmasından sonra belirlenir. Sensör uçları önce kinetik tamponda dengelenir, daha sonra FhuA Bio-Peptidiscs içeren tampona aktarılır. FhuA Bio-Peptidisklerin konsantrasyonu ve ucu ile kuluçkaya yatırılan süre bu deneyden önce optimize edilmiştir(Ek Şekil 1). Yükleme ve yıkama adımlarını takiben, ilişkilendirme adımı yüklenen ipuçları ile kolikin M'nin dört farklı konsantrasyonu arasındaki etkileşimleri ölçer. İpuçlarının tampona geri dönmesi, uçtan yansıyan beyaz ışığın dalga boyu kayması ile ölçülen kopma ile sonuçlanır.
Şekil 4A, bu deneydeki ham veri sensörü gram çıktısını görüntüler. Tüm izlemeler, sarı renkteki başvuru izlemedışında yükleme ve temel adımlarında düzgün görünür. Referans ipucu hiçbir ligand yüklü ama önemli bir negatif kontrol olan nonspesifik bağlama için test etmek için analit maruz kalır. Sonuçların daha ayrıntılı analizi için, referans ipucundan gelen sinyal, spesifik olmayan bağlayıcılığı hesaba katmak için deneysel ipuçlarının izlerinden çıkarılır. Veriler, Şekil 4B'degösterildiği gibi doğrudan görsel karşılaştırmaya izin vermek için ilişkilendirme adımının başlangıcına hizalanır. Bu karşılaştırma kolikin M konsantrasyonları artan dalga boyu kayması bir artış gösterir. Eğri verilere uygundur ve klasik 1:1 bağlama modeli sergiler.
Montaj ve deneysel veriler arasındaki farkları açıklayan artık görüş çizimi(Şekil 4B, alt), ColM'un (28 nM) en yüksek konsantrasyonuna uyumun üç düşük konsantrasyona göre zayıf olduğunu gösterir. Eğrinin profili, tipik bir bağlama deneyinde bağlayıcı alan doygunluğu özelliği olan bağlayıcı eğri platosundan yoksundur. Plato eksikliği heterojen bağlanmayı düşündürmektedir, ki bu da muhtemelen yüksek ColM konsantrasyonunun bir objesidir. Bu nedenle en yüksek ColM konsantrasyonu analizden indirimli dir ve diğer üç konsantrasyon dissosilasyon sabitini belirlemek için kullanılır(Şekil 4C,D).

Tartışma
Deterjanlar membran proteinlerini ayıklamak ve arındırmak için en basit yöntem olarak kalırken, bu yüzey aktif maddeler protein stabilitesi, fonksiyonu ve downstream analizleri üzerinde birçok istenmeyen etkiye sahip olabilir1,2,3, 4,5,6,7,8,9. Bu zorluklar, deterjanların varlığını en aza indirmek ve mümkün olduğunca doğal membran ortamı çoğaltmak için çalışıyoruz membran mimetik, gelişimini motive var2,3,4 ,5,6. Ancak, yeniden yapılanma yöntemlerinin çoğunluğu, yeniden yapılanma koşullarının önemli ölçüde optimizasyonu gerektirir ve genellikle nihaiverimiazaltmak ek arıtma adımları gerektirir 7,8. Peptidisk spontan hedef membran proteinine uyum sağlar ve nispeten, biraz optimizasyon ve downstream saflaştırma gerektirir9,10. Bu protokolde, PeptiQuick downstream protein-protein etkileşim analizi için yeniden yapılanma protokolünü düzene sokmak için basit bir araç olarak sunulmuştur.
Basit olmasına rağmen, başarısız yeniden anayasaya yol açabilecek birkaç deneysel uyarı vardır. Bunlar arasında en sık protein agregasyonu nedeniyle. Bu nedenle yeniden yapılanma sürecini izlemek için boyut dışlama kromatografisi yapmak çok önemlidir. Örneğin, boşluk hacminde oluşan bir boyut dışlama zirvesi protein agregalarının göstergesidir (Şekil 3B)17,18. Membran protein agregaları genellikle yeniden yapılanma öncesinde en uygun olmayan deterjan koşullarına uzun süre maruz kaldıktan sonra oluşur. Özellikle deterjandaki membran proteinlerinin santrifüj cihazlarda ultrafiltrasyon ile konsantre olduklarında agrega oluşturma eğiliminde olduğu bulunmuştur. Bu durumda, hassas membran proteinleri vakum ultra filtrasyon, filtre proteinlerin adsorpsiyon azalmış beri konsantrasyon daha nazik ve daha homojen bir yöntem kullanılarak konsantre olabilir.
Genel olarak, protein konsantrasyonu önlemek için, eluted IMAC fraksiyonları havuzlu olmalıdır, ve bir aliquot bir boyut dışlama sütun üzerine reconstitution kalitesini kontrol etmek için enjekte. Unutulmamalıdır ki, anonim serbest peptid ana peptid pikten hemen sonra(Şekil 3B). Ücretsiz iskele mutlaka aşağı deneyler ilerlemiyor. Ancak, gerekirse, bu fazlalık boyut dışlama kromatografisi ile kaldırılabilir. Alternatif olarak, yeniden yapılanma sırasında yıkama hacmini artırmak ve IMAC reçinesinden elution önce, etkili serbest peptid peptid çoğu kaldırmak için yeterlidir. Bu nedenle, boyut dışlama kromatografisi reconstitution kalitesini kontrol etmek için hızlı ve basit bir araç olarak tavsiye edilir.
BLI deneyi hem ligand hem de analit konsantrasyonlarının dikkatli optimizasyonu gerektirir. Ligand bağlama net bir sinyal elde etmek için yeterli olmalıdır, ancak aşırı yükleme sinyal doygunluğu neden olur, hangi uç yüzeyinde aşırı kalabalık ve steric engel veri eserler neden olur. Bu nedenle, hem ligand konsantrasyonu hem de ucun ligand çözeltisinde geçirdiği sürenin uzunluğu her protein örneği için optimize edilmelidir(Ek Şekil 2). Analit konsantrasyonu da optimize edilmelidir. Dissociation sabiti biliniyorsa, konsantrasyon aralığı yaklaşık olarak görülebileceğinden bu adım daha kolay olur. Bu analiz için iyi bir başlangıç noktası 0.1- ve 20 kat arasında protein konsantrasyonları beklenen Kd19kullanıyor.
BLI veri toplama sonrasında, yanlış yorumlamayı önlemek için dikkatli veri analizi yapılmalıdır. Dissosilasyon sabitinin hesaplanması bağlayıcı eğrinin sığdırılmasına bağlıdır. Bağlayıcı stoiyometri önceden bilinmediği sürece, ilk montaj için klasik 1:1 bimoleküler etkileşim modeli kullanılmalıdır. Heterojen bir bağlama eğrisinin genellikle karmaşık bir bağlama modeli olarak yanlış yorumlanabilen yüksek analit konsantrasyonunun neden olduğu eserler ve ideal olmayan davranışların sonucu olduğu unutulmamalıdır. Bu nedenle, sensorgram profili 1:1 bağlayıcı stoiyometri görüntüleyene kadar analit konsantrasyonu düşürmek heterojen bağlamayı daha karmaşık etkileşimlerden ayırt etmeye yardımcı olabilir. Daha sonra şekil 420'degösterildiği gibi artık heterojen bağlama verileri iskonto edilir.
Bu raporda, FhuA-ColM etkileşimi için 2.28 ± 0.74 nM'lik bir dissosilasyon sabiti ölçüldü. Bu değer, daha önce itc veya MST kullanılarak grubumuzda belirlenen ayrışma sabiti ile tutarlıdır (Şekil 4E)16. Bu tutarlılık etkileşim kinetik belirlemek için bir araç olarak peptidisk reconstitution ve BLI analizi hakkında güven sağlar. Daha da önemlisi, proteinlergenellikle e. coli biotin ligase BirA21kullanarak biotin kimyasal çapraz bağlama veya siteye özgü ek yoluyla streptavidin biyosensörleri üzerinde hareketsiz olduğu unutulmamalıdır. Belli ki, peptidisk iskelebiyotinilting, hedef membran protein yerine, birçok avantajı vardır. İskele biyotinylasyonu zamandan tasarruf sağlar ve önemli protein bağlama bölgelerini bozma potansiyelini en aza indirir. Ayrıca PeptiQuick'in G-protein-birleşen reseptörler (GPPCR), iyon kanalları ve β-varil membran proteinleri gibi çok çeşitli protein hedef sınıfları için de geçerli olduğunu bulduk. Genel olarak, membran proteinlerinin ilk deterjan ekstresinin agregasız bir duruma alınmasının kritik öneme sahip olduğu ve peptidiskte hemen yeniden yapılanmanın aşağı agregasyon problemlerini azalttığı unutulmamalıdır. Sadelik göz önüne alındığında, PeptiQuick diğer streptavidin tabanlı bağlayıcı tahliller, yüzey plazmon rezonans (SPR), ELISA tahlilleri ve afinite pull-downs streptavidin boncuklar kullanılarak uzatılacak öngörülmektedir.
Açıklamalar
FD, peptidisk peptidleri akademik topluma dağıtmak için Peptidisc Biotech'in kurucusudur. Peptidisc Biotech ayrıca endüstriyel biyoteknoloji ve ilaç şirketleri ile keşif iş akışları peptidisk uygulamak için ortaklık olduğunu. Bu makalenin Açık Erişim yayın FortéBio sponsorluğunda oldu.
Teşekkürler
Kanada Doğa Bilimleri ve Mühendislik Araştırma Konseyi'ne teşekkür ederiz. JS, CGS-M CIHR bursuna sahiptir. LT Biyoteknoloji ve Biyolojik Bilimler Araştırma Konseyi tarafından finanse edilen Güney Batı Biyobilimler Doktora Eğitim Ortaklığı [eğitim hibe referans BB/M009122/1] tarafından desteklendi. FD, Seviye II Kanada Araştırma Başkanıdır.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 30 kDa kesme santrifüj yoğunlaştırıcı | Millipore Sigma | C7715-Ampisilin | |
| BioShop | 69-52-3 | Sodyum Tuzu | |
| Biyo-Peptidisc Peptit | Peptidisc Biotech | https://peptidisc.com-Sığır | |
| Serum Albümini (BSA) | Sigma | 9048-46-8 | Liyofilize toz |
| CaCl2 | Fisher Kimyasal | 10035-04-8 | Sertifikalı ACS |
| EDTA | BioShop | 6381-92-6 | Biyoteknoloji Sınıfı |
| Ettan LC (AKTA) | Amersham Pharmacia Biotech | 18-1145-58-Glikoz | |
| BioShop | 50-99-7 | Susuz, Reaktif Sınıfı | |
| Gliserol | Fisher Kimyasal | 56-81-5 | Sertifikalı ACS |
| İmidazol | BioShop | 288-32-4 | Biyoteknoloji Sınıfı |
| Laurildimetilamin oksit (LDAO) | Sigma | 101822204 | 2< / sub>O |
| MgSO4< / sub> Fisher | Chemical'da | 10034-99-8 | Sertifikalı ACS |
| Mikroakışkanlaştırıcı | Mikroakışkanlar | M-110L | F20Y 75 ve mikro yönlendirme odası ile uyumlu |
| Ni-NTA Reçine | Altın Biyoteknolojisi | H-320-50-Bağlayıcı | |
| olmayan 96well BLI Plate | Greiner Bio-one | 655076 | Mikroplaka, PS, 96 kuyulu, F-Alt (baca kuyusu), Siyah, Fluotrac, Med. Bağlama |
| Sekizli Kırmızı96 | Fort é Bio | OCTET RED96E-GxP | Octet RED96e cihazı, Octet CFR yazılımı, masaüstü bilgisayar, LC monitör, aksesuar kiti, IQ/OQ kiti, PQ Kitleri ve bir yıl garanti |
| Fenilmetansülfonilflorür (PMSF) | Sigma | P-7626-Protein | |
| Tahlil Boyası - Reaktif Konsantresi | Bio-Rad | 5000006 | Bradford testinde protein konsantrasyonunu belirlemek için kullanılır - 5x konsantrasyon |
| Sodyum Klorür (NaCl) | BioShop | 7647-14-5 | Biyoteknoloji Sınıfı |
| Streptavidin (SA) Biyosensörler | ForteBio | 18-5019 | Kantitasyon, tarama veya kinetik uygulamalar için streptavidin ile kaplanmış 96 biyosensörden oluşan bir tepsi. |
| Superdex S200 (300/10) | Amersham Pharmacia Biotech | 175175-01-Tiamin | |
| Merck | 69271-Tris-HCl | ||
| BioShop | 77-86-1 | Reaktif Sınıfı | |
| Triton X-100 | BioShop | 900998-1 | Biyoteknoloji Sınıfı |
| Tween-20 | BioShop | 56-40-6 | Reaktif Sınıfı |
| Ultra santrifüj | Beckman Coulter | 365668 | - |
Kaynaklar
- Rawlings, A. E. Membrane proteins: always an insoluble problem. Biochemical Society Transactions. 44 (3), 790-795 (2016).
- Popot, J. L. Amphipols, Nanodiscs, and Fluorinated Surfactants: Three Non Conventional Approaches to Studying Membrane Proteins in Aqueous Solutions. Annual Review of Biochemistry. 79, 737-775 (2010).
- Lee, S. C., et al. A Method for Detergent-Free Isolation of Membrane Proteins in their Local Lipid Environment. Nature Protocols. 11, 1149-1162 (2016).
- Frauenfeld, J., et al. A Saposin-Lipoprotein Nanoparticle System for Membrane Proteins. Nature Methods. 13, 345-351 (2016).
- Bayburt, T. H., Grinkova, Y. V., Sligar, S. G. Assembly of Single Bacteriorhodopsin Trimers in Bilayer Nanodiscs. Archives of Biochemistry and Biophysics. 450, 215-222 (2006).
- Denisov, I. G., Grinkova, Y. V., Lazarides, A. A., Sligar, S. G. Directed Self-Assembly of Monodisperse Phospholipid Bilayer Nanodiscs with Controlled Size. Journal of the American Chemical Society. 126, 3477-3487 (2004).
- Denisov, I. G., Sligar, S. G. Nanodiscs for Structural and Functional Studies of Membrane Proteins. Nature Structural, Molecular Biology. 23, 481-486 (2016).
- Hagn, F., Etzkorn, M., Raschle, T., Wagner, G. Optimized Phospholipid Bilayer Nanodiscs Facilitate High-Resolution Structure Determination of Membrane Proteins. Journal of the American Chemical Society. 135, 1919-1925 (2013).
- Carlson, M. L., et al. The Peptidisc, A Simple Method for Stabilizing Membrane Proteins in Detergent-Free Solution. eLife. 7, 34085(2018).
- Carlson, M. L., et al. Profiling the E. coli Membrane Interactome Captured in Peptidisc Libraries. eLife. 8, 46615(2019).
- Serdakowski, A., et al. A novel method to determine residual detergent in biological samples post endotoxin reduction treatment and evaluation of strategies for subsequent detergent removal. International Immunopharmacology. 37, 16-22 (2016).
- Smith, S. M. Strategies for the Purification of Membrane Proteins. Protein Chromatography. 681, 485-496 (2011).
- Lin, S. H., Guidotti, G. Purification of Membrane Proteins. Methods in Enzymology. 463, 619-629 (2009).
- Wolfe, A. J., Gugel, J. F., Chen, M., Movileanu, L. Kinetics of Membrane Protein-Detergent Interactions Depend on Protein Electrostatics. Journal of Physical Chemistry B. 122 (41), 9471-9481 (2018).
- Montigny, C., et al. Slow Phospholipid Exchange between a Detergent-Solubilized Membrane Protein and Lipid-Detergent Mixed Micelles: Brominated Phospholipids as Tools to Follow Its Kinetics. PLoS ONE. 12 (1), 0170481(2017).
- Mills, A. T., Le H, T., Coulton, J. W., Duong, F. FhuA Interactions in a Detergent-Free Nanodisc Environment. Biochimica et Biophysica Acta - Biomembranes. 1838 (1), 364-371 (2014).
- Hong, P., Koza, S., Bouvier, E. S. P. Size-Exclusion Chromatography for the Analysis of Protein Biotherapeutics and their Aggregates. Journal of Liquid Chromatography Related Technologies. 35 (20), 2923-2950 (2012).
- Mahler, H. C., Friess, W., Grauschopf, U., Kiese, S. Protein aggregation: Pathways, induction factors and analysis. Journal of Pharmaceutical Sciences. 98 (9), 2909-2934 (2009).
- FortéBio. Octet System Data Acquisition User Guide, Release 7.1. . , Available from: http://www.biophysics.bioc.cam.ac.uk/wp-content/uploads/2014/01/Data-Acquisition-Octet.pdf (2014).
- FortéBio. Octet System Data Analysis User Guide, Release 7.1. . , Available from: http://www.biophysics.bioc.cam.ac.uk/wp-content/uploads/2011/02/Data-Analysis-Octet.pdf (2011).
- Trinkle-Mulcahy, L. Recent advances in proximity-based labeling methods for interactome mapping. F1000Research. 8, 135(2019).
Yeniden basım ve izinler
