Protokol, hücresel canlılığı verimli bir şekilde belirlemek için hızlı, yüksek verimli, güvenilir, ucuz ve tarafsız bir testi tanımlar. Bu tahlil özellikle hücrelerin mitokondrisi hasar gördüğünde yararlıdır, bu da diğer tahlilleri bozar. Hoechst 33342 ve propidium iyodür - Tsay iki nükleer boya ile boyanmış hücrelerin otomatik sayma kullanır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Mitokan Sitotoksisitesinin Doğru Tayini için Otomatik Diferansiyel Nükleer Boyama Denemesi
* These authors contributed equally
Bu makalede
Özet
Özet
Mitokondrinin onkojenik dönüşüme katkısı geniş ilgi ve aktif bir çalışma konusudur. Kanser metabolizması alanı daha karmaşık hale geldikçe, mitokondri hasar (sözde mitokanlar) inflict çeşitli bileşikler kullanarak mitokondri hedefleme hedefi oldukça popüler hale gelmektedir. Ne yazık ki, tetrazolyum tuzları veya resazurin dayalı olanlar gibi birçok mevcut sitotoksisite tahlilleri performansları için fonksiyonel mitokondriyal enzimler gerektirir. Mitokondriyi hedef alan bileşiklerin verdiği hasar genellikle bu tahlillerin doğruluğunu tehlikeye attırıyor. Burada, biri hücre permeant (Hoechst 33342) diğeri (propidium iyodür) olmayan iki floresan boyaile diferansiyel boyama ya da reisial boyama dayalı değiştirilmiş bir protokol açıklıyoruz. Boyama farkı yaşayan ve ölü hücrelerin ayrımcılığa uğramasını sağlar. Tahlil, otomatik mikroskopi ve görüntü analizine açıktır, bu da iş bilgililiği artırır ve önyargıyı azaltır. Bu aynı zamanda 96-iyi plakalar kullanarak yüksek iş yapma moda kullanılacak töz sağlar, uyuşturucu keşif çabaları için uygun bir seçenek yapma, özellikle söz konusu ilaçlar ın mitotoksisite bazı düzeyde var. Daha da önemlisi, Hoechst/PI boyama tahtına göre elde edilen sonuçlar, hem trypan mavisi dışlama sonuçlarıyla hem de tahkikat diğer yöntemlerle karşılaştırıldığında biyolojik kopyalar arasında artan tutarlılık göstermektedir.
Giriş
Etkili kanser tedavilerini belirlemek için ilk adım, tedavinin etkisini incelemek için kullanılabilecek sağlam, tarafsız sitotoksisite tetkik seçimidir. Düşük iş elde deneyleri için ortak bir seçim canlı hücrelerden trypan mavi boya dışlanmasıdır. Hücre sağkalım ölçmek için nispeten tarafsız bir yöntem sağlar, çünkü bu yöntem tercih edilir. trypan mavi pasif olan membranlar tehlikeye hücrelere yayılır, ancak etkili sağlıklı hücrelere girmesini engellenir1. Canlı hücrelerin ve toplam hücrelerin bölümü tedavinin etkinliğini gösteren yüzde canlılığı temsil eder. Trypan mavi sataştının en önemli dezavantajı, yüksek iş elde yöntemleri için uygun olmadığıdır. Nispeten düşük sinyal-gürültü oranına sahiptir ve uzun süreli boyama canlı hücrelerin boyanması nedeniyle eserlere neden olabilir. Sonuç olarak, trypan mavi dışlama genellikle, ama her zaman değil2, manuel sayma için küme. Bu çok yavaş yapar ve araştırmacının öznel yargı nedeniyle önyargı güçlü bir olasılık ortaya çıkarır (kör edici veya bağımsız sayımlar kullanılmadığı sürece, hangi daha fazla laboratuvar iş büyümesini azaltmak). Genel olarak, bu tayın elde edilmesi modern uyuşturucu keşfi için yeterli değildir.
Genellikle çok daha yüksek bir iş bilgili canlılık denemeleri, araştırmacıların bu sınırlamayı atlatmasına izin verir, ancak önemli uyarılarla birlikte gelir (bkz. Tablo 1). Bu yöntemler genellikle iki gruba ayrılır. Bir grup hücresel redoks enzimlerinin işlevine dayalı kolorimetrik tahliller oluşur. Renksiz veya floresan olmayan yüzeyler, spektrofotometre kullanılarak ölçülebilen canlı ürünlere dönüştürülür. Klasik örnekler tetrazolyum tuzları (MTT, WST-1, XTT, vb) ve resazurin içerir. Bu kategori de ATP düzeyini değerlendirmek için luciferin kullanan Parlak tahliller içerir. Bu tip tahliller hücre metabolizmasını ölçtükleri için altta yatan bir sınırlamaya sahiptir, ki bu da tek başına hücresel canlılık değildir. Bu olumsuz koşullar altında quiescent olmak hücreleri için oldukça yaygındır, ama yine de3bölmek için yeteneğini korumak,4,5. Örneğin, kanser kök hücreleri genellikle nispeten metabolik quiescent6,7,8,9, ve bu teknikleri kullanarak tsay zor olması muhtemeldir. Mitokondriyal fonksiyona zarar veren tedavilerin etkinliği, çoğu mitokan gibi, aynı zamanda önemli ölçüde abartılmış olması muhtemeldir.
Alternatif bir metodoloji, biyolojik membranları geçmelerini ya da geçmemelerini sağlayan çeşitli maddelerin kimyasal özelliklerinden yararlanır. Bir örnek SYTOX veya propidium iyodür (PI) gibi nükleer lekeler vardır. Bu kategori de kavram olarak benzer ama işlevi farklı tahliller içerir, laktat dehidrogenaz gibi (LDH) tahlil, hücresel nekroz bir göstergesi olarak hücre dışı ortama LDH salınımını ölçer(Şekil 1, Tablo 1). Bu tahliller metabolik olarak inaktif ve ölü hücreleri ayırt etme yeteneğine sahiptir.
| Assay/boya | Hücre ölümünün türü(ler) tespit | Gerekli ekipmanlar | Temel özellikler |
| MTT, CKK-8, Alamar Mavisi (resazurin) | Apoptosis/Nekroz | Spektrofotometre | Ucuz, hızlı; uç nokta tsası; enzimlerin aktivitesine bağlıdır (MTT durumunda münhasıran mitokondriyal) ve hücre ölüm modları arasında ayrım yapmaz1,10 |
| LDH sürümü | Nekroz | Spektrofotometre | Hızlı, mitokondriyal enzimlerin aktivitesinden bağımsız; yüksek iş ortası testleri için pahalı; kompromized plazma membranı ile nekrotik hücreleri algılar11,12 |
| Trypan Mavi (TB) | Apoptosis/Nekroz | Mikroskop | Hücre impermeant; hücre ölüm modları arasında ayrım yapmaz; zahmetli ve yüksek iş gücü taraması için uygun olmayan; yapışık hücrelerle kullanımı daha zordur; kullanıcının öznel yargıyatkın, ancak standart hücre canlılık ölçüm yöntemi13 olarak kabul edilir |
| Acridine portakal (AO) | Apoptosis/Nekroz/ | Floresan mikroskobu | Benzersiz spektral özelliklere sahip bir nükleik asit boyası, apopoz ve nekroz/nekroz arasında ayrım yapabilir14 |
| Necroptosis | |||
| Hoechst 33342, DAPI | Apoptozis | Floresan mikroskobu veya akış sitometresi | Hücre geçirilebilir; hücre ölümünü izlemek için kendi başına uygunsuz; ortak boyama için yararlıdır; erken apoptozda kromatin yoğuşması ve çekirdek parçalanmasını değerlendirmek için kullanılabilir; nekroz dan apoptoz ayırt etmek için propidium iyodür ile eşleştirilmiş olabilir15,16 |
| Propidium İyodür (PI) | Geç apoptoz/Nekroz | Floresan mikroskobu veya akış sitometresi | Hücre imperkastinin interkalatör; hücre ölümü hem geç apoptoz ve nekroz modları algılar17. Uzun kuluçka sürelerinde toksik ve geçirbilebilir18 |
Tablo 1. Sitotoksisite tahlillerinin listesi. Sitotoksisite tahlilleri, bazıları bu çalışmada kullanılan, onların temel özellikleri kısa açıklaması ile birlikte listelenmiştir.
Son çalışmalar, mitokondriyal metabolizmabazı kanserlerde19,20,21,22,23,24,25değişmiş olduğunu göstermiştir. Örneğin, akut miyeloid lösemiler (AML) onların mitokondriyal kitle, mtDNA içeriği ve mitokondriyal solunum enerji taleplerini karşılamak için upregulate gösterilmiştir19,26,27. Öte yandan, bazı katı tümörler mitokondriyal disfonksiyon ile karakterizedir, daha doğrusu "metabolik yeniden programlama", OXPHOS dahil mitokondriyal proteinlerin downregülasyonu veya azalmış mtDNA içeriği gibi, tümör invazivliği ile ilişkili olmuştur, metastatik potansiyel ve apoptoz indükleyici ilaçlara direnç28,29. Ayrıca, son zamanlarda, mitokondriyal fonksiyonu etkileyen mekanistik çeşitli bileşikler kullanarak artan bir ilgi olmuştur (genellikle mitokanlar denir30), belirli kanserler için potansiyel tedaviler olarak. Bu ilaçlar atp sentezi hedef, mitokondriyal DNA, OXPHOS, ve ROS üretimi, yanı sıra mitokondri ile ilişkili pro-apoptotic ve anti-apoptotik proteinler30,31. Çeşitli çalışmalar bu yaklaşımın önemli bir söz olduğunu göstermiştir19,32,33,34. Ancak, kanser hücre biyolojisi veya mitokondri hedefleme tedavilerde bu metabolik sapmalar önemli ölçüde mitokondriyal işlevselliğe dayalı geleneksel canlılık tahlilleri etkileyebilir.
Burada diferansiyel nükleer boyama testini için optimize edilmiş bir protokol tanımlanmıştır. Protokol mitokanların sitotoksisitesinin veya diğer bileşiklerle kombinasyonlarının hızlı ve doğru bir şekilde belirlenmesini sağlar. Hoechst 33342, dna lekelemek için hücre zarlarını kolayca geçen ve toplam hücre sayısının elde edilmesine olanak tanıyan hücre içi bir nükleer boyadır. Sadece ölü hücrelerin çekirdeklerine giren PI ile birlikte boyanarak, canlıların (yalnızca Hoechst) ve ölü (her ikisiyle de lekelenmiş) hücrelerin oranı doğru bir şekilde belirlenebilir. Bu protokol, boya konsantrasyonunun optimizasyonu için bir adım ekleyerek (ortogonal trippan mavi yöntemi ile çapraz referans sonuçları ile) ve görüntüleme den önce plakanın santrifüjü ile yayınlanan tahkikat35'i geliştirir. Birçok hücre hattı yarı yapışık veya askıya alındığından, santrifüj görüntülenmiş hücrelerin oranını artırır ve doğruluğu güçlü bir şekilde artırır. Tama, boyama nın ortam veya yıkamayı gerektirmediği de dahil olmak üzere çeşitli avantajları vardır. Boya karışımı da ucuz, hazırlanması kolay ve çok kanallı /robotik boru lama sistemleri ile uyumludur.
Hücreler lekelendikten sonra otomatik bir mikroskopla görüntülenirler. Bu, daha sonra yeniden analiz edilebilen görüntülerin kalıcı bir kaydını oluşturma avantajına sahiptir ve belirli bileşiklerin etkileri yakalanan görüntülerin görsel incelemesi ile yeniden değerlendirilebilir. Görüntüler elde edildikten sonra hücreler, hem ücretsiz (örn. ImageJ, CellProfiler, vb.) hem de ticari yazılımlar (örn. Metamorf, Gen5, vb.) dahil olmak üzere çeşitli yazılım paketlerinden herhangi biri kullanılarak elle veya herhangi bir yazılım paketi kullanılarak sayılabilir. Düzgün geliştirilmiş otomatik hücre sayma boru hatları manuel sayımlara göre daha doğru ve daha az önyargılı olduğundan otomatik hücre sayma genellikle tercih edilir. Ayrıca hücre enkazını veya çözünmez kompleksleri daha etkili bir şekilde göz ardı ederler. Bu boru hatlarının geliştirilmesi genellikle basittir ve kullanılan lekelerin verimliliği ile basitleştirilir. Ölü hücrelerin gerçek sayısı toplam hücre sayısına göre otomatik olarak hesaplandığı ve algılamanın sıkılığını artırmak veya azaltmak için farklı eşikler uygulanabileceğinden çıktı niceldir35. Kolaylık sağlamak için, Gen5 v. 3.00 yazılım uyumlu Cytation 5 Hücre Görüntüleme Multi-Mode Reader kullanarak hücreleri saymak için optimize edilmiş parametreler dahildir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
1. Sitotoksisite Tsay: Kurulum
- Uygun ortamda istenilen konsantrasyonlarda (serumsuz veya 1, 2,5 veya %5 FBS RPMI-1640) ilgi bileşiklerinin çözümlerini hazırlayın.
- Tek bir bileşiğin sitotoksisitesini ölçmek için (örn. etkili dozları belirlemek için), bileşikleri 2x son konsantrasyonda hazırlayın.
- Bileşik kombinasyonların sitotoksisitesini ölçmek için, bileşikleri 4x son konsantrasyonda hazırlayın.
- Aynı miktarda çözücüile uygun ortama karıştırılarak yalnızca çözücü kontrollerini hazırlayın. Örneğin, DMSO ve metanolde çözünmüş bileşikleri test ediyorsanız, her çözücü için yalnızca çözücü kontrolü yapın.
- 15 mL konik tüp içine kültür çanak veya şişe hücreleri toplamak.
- 10 μL hücre süspansiyonu mikrosantrifüj tüpüne aktarın ve 0,4 trypan mavisi ile leke. Her hücre kaynağı için canlı ve canlı olmayan hücreleri saymak için bir hemositometre kullanın.
- Pelet hücreleri 200 g 5 dk. Aspire veya decant supernatant.
- 3*105 hücre/mL hücre yoğunluğunda taht-ı muhatap ortamlarda hücre peletini (serumsuz veya 1, 2,5, %5 FBS RPMI-1640) yeniden askıya alın.
NOT 1: 3*105 hücre/mL hücre yoğunluğu 15.000 hücre/kuyu tohumlama yoğunluğu sağlar. Tohumlama yoğunluğu önemli bir parametredir ve ideal olarak deneyden önce önceden tanımlanmış olmalıdır. Tohumlama yoğunluğu dikkate almalıdır 1) hücre büyüklüğü - genellikle büyük hücreler daha düşük bir yoğunlukta tohumlu; 2) tedavi süresi - hücreler genellikle daha uzun sürecek deneyler için daha düşük bir yoğunlukta tohumlu; ve 3) hücre bölünme hızı – bölünme oranı daha yüksek olan hücreler daha düşük yoğunlukta tohumlanır. Optimize edilmiş tohumlama yoğunluklarına özel örnekler: K562 hücreleri, daha büyük, 24 saat süre – 10.000 hücre/kuyu; MOLM-13 hücreleri, orta boy, 24 saat tedavi – 15.000/well; MOLM-13 hücreleri, 48 h tedavi – 8.000/well; küçük sağlıklı periferik kan mononükleer hücreleri (PBMCs), 24 saat tedavi – 50,000/well; primer AML hücreleri, 24 saat tedavi – 15.000-20.000/well.
NOT 2: Medyada FBS varlığı bileşiklerin etkinliğini etkileyebilir. FBS konsantrasyonunun azaltılması taht sonuçlarını yorumlamayı kolaylaştırabilir, ancak aynı zamanda fizyolojik doğruluğu da azaltır. - Çok kanallı bir pipet kullanarak 96 kuyulu bir plakanın her kuyunun içine adım 1,5'ten 50°L hücre süspansiyonu yerleştirin.
- Aşağıdaki gibi bileşikler ekleyin:
- Tek bileşik tahliller için, her kuyuya 50 μL 2x bileşik çözelti ekleyin. Solvent kontrollü kuyular için, çözücüiçeren 50 μL'lik test ortamını 2 x konsantrasyonda ekleyin.
- Kombinasyon tahlilleri için, her bir kuyuya her bir bileşiğin (4x çözeltisi) 25°L'sini ekleyin. Tek bileşik kontrol kuyuları için 25 μL 4x bileşik çözeltisi ve 25 μL test ortamı ekleyin. Solvent kontrollü kuyular için, çözücü içeren 50 μL test ortamı veya test ortamı ekleyin.
NOT 1: DMSO'nun son konsantrasyonu %0.5'i geçmemelidir.
NOT 2: Düşük hacimnedeniyle her kuyunun duvarına dokunan pipetile bileşikleri içeren ortamların eklenmesi önerilir.
- Kuyuların içeriğinin karıştırılmasını sağlamak için plakaya hafifçe dokunun.
- 37 °C'de, nemlendirilmiş %5 CO2 atmosferinde uygun bir süre için 24 saat kuluçkaya yatırın.
2. Sitotoksisite Tsay: Hoechst 33342 ve propidium Iodide ile boyama
- 10x boyama çözeltisi hazırlayın. Bu çözüm her deneyden önce taze olarak hazırlanmalıdır, depolanamaz. Son boya konsantrasyonları deneyden önce belirlenmelidir.
- Lösemi hücre hatları ve primer lösemi hücreleri için 1 mL 10x boyama tamponu 10 μL 20 mM Hoechst 33342 ve 50 μL 1 mg/mL propidium iyodür içerir steril PBS (son konsantrasyonlar: Hoechst 33342 20 μM, PI 5 μg/mL).
- Sağlıklı PBMC'ler için 1 mL 1mL 10 μL 20 mM Hoechst 33342 ve steril PBS'de 1mg/mL propidium iyodür (son konsantrasyonlar: Hoechst 33342 20 μM, PI 1 μg/mL) içerir.
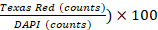
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Söz konusu protokol, temsili akut miyeloid lösemi hücre hattı olarak alınan OCI-AML2 hücreleri kullanılarak geliştirilmiştir. AML kemik iliğinde farklılaşmamış ve fonksiyonel olmayan hematopoetik hücrelerin anormal çoğalması ile karakterizedir26. AML hedefli tedavideki son gelişmelere rağmen, bakım standardı birkaç on yıl boyunca değişmeden kalmıştır ve indüksiyon tedavisi (genellikle antrasikline üç gün oluşur, örneğin, daunorubicin, idarubicin, veya antranedione mitoksantah, ve sitarabine 7 gün)...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Hoechst/PI sitotoksisite tahkizi protokolü sağlam olmasına ve nispeten az uygulamalı zaman gerektirmesine rağmen, doğru sonuçları sağlamak için çok önemli olan birkaç deneysel ayrıntı vardır. İlk olarak, DMSO konsantrasyonunun %0,5'in (v/v) altında kaldığından emin olmak önemlidir. Genellikle DMSO bile düşük dozlarda maruz önemli ölçüde morfolojisi ve hücrelerin eki değiştirebilir ve önemli ölçüde hücre döngüsü ilerlemesini geciktirmek kabul edilir39,40.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarların açıklayacak bir şeyi yok.
Teşekkürler
NVK, Kanser Araştırma bir CPRIT bilim adamı, teşekkür Kanser Önleme ve Araştırma Enstitüsü Texas (CPRIT) onların cömert destek için, CPRIT hibe RR150044. Bu çalışma aynı zamanda Welch Vakfı Araştırma Hibe C-1930 tarafından desteklendi ve Ulusal Sağlık Enstitüleri R35 GM129294 tarafından NVK verildi. Fon layıcıların çalışma tasarımı, veri toplama ve analiz, makalenin yayımlama kararı veya hazırlanmasında hiçbir rolü yoktu.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 2-Deoksi-D-glikoz / 2-DG | Chem-Impex | 50-519-067 | |
| 3-bromo-piruvat | Alfa Aesar | 1113-59-3 | |
| 96 Kuyucuklu plakalar | Greiner Bio-One | 655090 | Siyah veya şeffaf düz tabanlı 96 oyuklu plakalar |
| Alamar mavisi HS hücre canlılık reaktifi (100mL) | Thermo Fisher | A50101 | |
| Kontes II otomatik hücre sayacı | Thermo Fisher | ||
| Cytation 5 Hücreli Görüntüleme Çok Modlu Okuyucu | BioTek | ||
| Hoechst 33342 | Thermo Fisher | 62249 | 20 mM çözelti; nihai konsantrasyon 1: 1.000 < br / > |
| HyClone fetal sığır serumu | GE Sağlık | # 25-514 | |
| m-klorofenilhidrazon / CCCP | Sigma Aldrich | C2759 | |
| PBS tabletleri | Thermo Fisher | BP2944100 | 1 tablet + 200 mL steril su = 1x PBS çözeltisi |
| Penisilin-Streptomisin-Glutamin (100X) | Gibco | 10378016 | |
| Pierce LDH test kiti | Thermo Fisher | 50-103-5952 | |
| Propidyum İyodür | Thermo Fisher | 50-596-072 | Kuru toz; PBS'de 1 mg / mL stok; son konsantrasyon 5 ve mikro; g / mL (lösemi hücreleri), 1 & mikro; g/mL (normal PBMC'ler) |
| Rotenone | Ark Pharm | AK115691 | |
| RPMI-1640 Orta L-glutamin ve sodyum bikarbonatlı, sıvı, steril filtreli, hücre kültürüne uygun | Sigma Aldrich | R8758-500ML | |
| Tiazolil mavi tetrazolyum bromür | ACROS Organics | AC158990010 | |
| Tripan mavisi leke (%0,4) | Gibco | 15250-061 | |
| Hücre hatları< / güçlü > | |||
| K562 | ATCC | CCL-243 | CML hücre hattı |
| MOLM-13 | ATCC | AML hücre hattı | |
| MOLT-4 | ATCC | CRL-1582 | TÜM hücre hattı |
| OCI-AML2 | ATCC | AML hücre hattı |
Kaynaklar
- Ramirez, C. N., Antczak, C., Djaballah, H. Cell viability assessment: toward content-rich platforms. Expert Opinion on Drug Discovery. 5 (3), 223-233 (2010).
- Melzer, S., et al. Trypan blue as an affordable marker for automated live-dead cell analysis in image cytometry. Scanning. 38 (6), 857-863 (2016).
- Sikora, E., Mosieniak, G., Sliwinska, M. A. Morphological and Functional Characteristic of Senescent Cancer Cells. Current Cancer Drug Targets. 17 (4), 377-387 (2016).
- Coppé, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Pathology. 5, 99-118 (2010).
- Castro-Vega, L. J., et al. The senescent microenvironment promotes the emergence of heterogeneous cancer stem-like cells. Carcinogenesis. 36 (10), 1180-1192 (2015).
- Weihua, Z., Lin, Q., Ramoth, A. J., Fan, D., Fidler, I. J. Formation of solid tumors by a single multinucleated cancer cell. Cancer. 117 (17), 4092-4099 (2011).
- Osisami, M., Keller, E. T. Mechanisms of Metastatic Tumor Dormancy. Clinical Medicine. 2 (3), 136-150 (2013).
- Zhang, S., et al. Generation of cancer stem-like cells through the formation of polyploid giant cancer cells. Oncogene. 33 (1), 116-128 (2014).
- Mittal, K., et al. Multinucleated polyploidy drives resistance to Docetaxel chemotherapy in prostate cancer. British Journal of Cancer. 116 (9), 1186-1194 (2017).
- McKeague, A. L., Wilson, D. J., Nelson, J. Staurosporine-induced apoptosis and hydrogen peroxide-induced necrosis in two human breast cell lines. British Journal of Cancer. 88 (1), 125-131 (2003).
- Kaja, S., et al. An optimized lactate dehydrogenase release assay for screening of drug candidates in neuroscience. Journal of Pharmacological and Toxicological Methods. 73, 1-6 (2015).
- Chan, F. K., Moriwaki, K., De Rosa, M. J. Detection of necrosis by release of lactate dehydrogenase activity. Methods in Molecular Biology. 979, 65-70 (2013).
- Piccinini, F., Tesei, A., Arienti, C., Bevilacqua, A. Cell Counting and Viability Assessment of 2D and 3D Cell Cultures: Expected Reliability of the Trypan Blue Assay. Biological Procedures Online. 19, 8(2017).
- Plemel, J. R., et al. Unique spectral signatures of the nucleic acid dye acridine orange can distinguish cell death by apoptosis and necroptosis. Journal of Cell Biology. 216 (4), 1163-1181 (2017).
- Galluzzi, L., et al. Guidelines for the use and interpretation of assays for monitoring cell death in higher eukaryotes. Cell Death & Differentiation. 16 (8), 1093-1107 (2009).
- Cummings, B. S., Schnellmann, R. G. Measurement of cell death in mammalian cells. Current Protocols in Pharmacology. , Chapter 12, Unit 12.18 (2004).
- Brauchle, E., Thude, S., Brucker, S. Y., Schenke-Layland, K. Cell death stages in single apoptotic and necrotic cells monitored by Raman microspectroscopy. Scientific Reports. 4, 4698(2014).
- Chiaraviglio, L., Kirby, J. E. Evaluation of impermeant, DNA-binding dye fluorescence as a real-time readout of eukaryotic cell toxicity in a high throughput screening format. Assay and Drug Development Technologies. 12 (4), 219-228 (2014).
- Panina, S. B., Baran, N., Brasil da Costa, F. H., Konopleva, M., Kirienko, N. V. A mechanism for increased sensitivity of acute myeloid leukemia to mitotoxic drugs. Cell Death & Disease. 10 (8), 617(2019).
- Caro, P., et al. Metabolic signatures uncover distinct targets in molecular subsets of diffuse large B cell lymphoma. Cancer Cell. 22 (4), 547-560 (2012).
- Lagadinou, E. D., et al. BCL-2 inhibition targets oxidative phosphorylation and selectively eradicates quiescent human leukemia stem cells. Cell Stem Cell. 12 (3), 329-341 (2013).
- Senft, D., Ronai, Z. A. Regulators of mitochondrial dynamics in cancer. Current Opinion in Cell Biology. 39, 43-52 (2016).
- Vazquez, F., et al. PGC1α expression defines a subset of human melanoma tumors with increased mitochondrial capacity and resistance to oxidative stress. Cancer Cell. 23 (3), 287-301 (2013).
- Caino, M. C., Altieri, D. C. Cancer cells exploit adaptive mitochondrial dynamics to increase tumor cell invasion. Cell Cycle. 14 (20), 3242-3247 (2015).
- Ralph, S. J., Rodríguez-Enríquez, S., Neuzil, J., Saavedra, E., Moreno-Sánchez, R. The causes of cancer revisited: "mitochondrial malignancy" and ROS-induced oncogenic transformation - why mitochondria are targets for cancer therapy. Molecular Aspects of Medicine. 31 (2), 145-170 (2010).
- Kreitz, J., et al. Metabolic Plasticity of Acute Myeloid Leukemia. Cells. 8 (8), (2019).
- Sriskanthadevan, S., et al. AML cells have low spare reserve capacity in their respiratory chain that renders them susceptible to oxidative metabolic stress. Blood. 125 (13), 2120-2130 (2015).
- Guerra, F., et al. Mitochondrial Dysfunction: A Novel Potential Driver of Epithelial-to-Mesenchymal Transition in Cancer. Frontiers in Oncology. 7, 295(2017).
- Guerra, F., Arbini, A. A., Moro, L. Mitochondria and cancer chemoresistance. Biochimica et Biophysica Acta. 1858 (8), 686-699 (2017).
- Neuzil, J., Dong, L. F., Rohlena, J., Truksa, J., Ralph, S. J. Classification of mitocans, anti-cancer drugs acting on mitochondria. Mitochondrion. 13 (3), 199-208 (2013).
- Ubah, O. C., Wallace, H. M. Cancer therapy: Targeting mitochondria and other sub-cellular organelles. Current Pharmaceutical Design. 20 (2), 201-222 (2014).
- Yamaguchi, R., et al. Efficient elimination of cancer cells by deoxyglucose-ABT-263/737 combination therapy. PLoS One. 6 (9), 24102(2011).
- Hahn, T., et al. Use of anti-cancer drugs, mitocans, to enhance the immune responses against tumors. Current Pharmaceutical Biotechnology. 14 (3), 357-376 (2013).
- Panina, S. B., Pei, J., Baran, N., Konopleva, M., Kirienko, N. V. Utilizing Synergistic Potential of Mitochondria-Targeting Drugs for Leukemia Therapy. Frontiers in Oncology. 10, 435(2020).
- Lema, C., Varela-Ramirez, A., Aguilera, R. J. Differential nuclear staining assay for high-throughput screening to identify cytotoxic compounds. Current Cellular Biochemistry. 1 (1), 1-14 (2011).
- Döhner, H., et al. Diagnosis and management of acute myeloid leukemia in adults: recommendations from an international expert panel, on behalf of the European LeukemiaNet. Blood. 115 (3), 453-474 (2010).
- Heinz, S., et al. Mechanistic Investigations of the Mitochondrial Complex I Inhibitor Rotenone in the Context of Pharmacological and Safety Evaluation. Scientific Reports. 7, 45465(2017).
- Fan, T., et al. Tumor Energy Metabolism and Potential of 3-Bromopyruvate as an Inhibitor of Aerobic Glycolysis: Implications in Tumor Treatment. Cancers (Basel). 11 (3), (2019).
- Pal, R., Mamidi, M. K., Das, A. K., Bhonde, R. Diverse effects of dimethyl sulfoxide (DMSO) on the differentiation potential of human embryonic stem cells. Archives of Toxicology. 86 (4), 651-661 (2012).
- Tunçer, S., et al. Low dose dimethyl sulfoxide driven gross molecular changes have the potential to interfere with various cellular processes. Scientific Reports. 8 (1), 14828(2018).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
