Protein-protein etkileşimleri, hedef proteinlerin işlevini aydınlatmak için önemlidir ve ko-immünopresipitasyon (co-IP), PPI'leri kolayca doğrulayabilir. Epitop etiketli bir proteini kodlayan bir plazmiti HEK-293 hücrelerine geçici olarak transfekte ettik ve iki hedef proteinin bağlanmasını kolayca doğrulamak için bir immünopresipitasyon yöntemi geliştirdik.
Yöntem makalesi
Protein-Protein Etkileşimlerini İncelemek için Anti-Epitop Etiket Afinite Jeli ile İmmünopresipitasyon
Bu makalede
Özet
Özet
Protein-protein etkileşimleri (PPI'ler), hücresel organizasyon, hücre içi sinyal iletimi ve transkripsiyonel düzenleme gibi biyolojik olaylarda çok önemli bir rol oynar. Bu nedenle, PPI'leri anlamak, hedef proteinin işlevinin daha fazla araştırılması için önemli bir başlangıç noktasıdır. Bu çalışmada, memeli ekspresyon vektörlerini polietilenimin yöntemi kullanılarak HEK-293 hücrelerine sokarak, hücreleri ev yapımı protein lizis tamponunda parçalayarak ve hedef proteinleri bir epitop etiket afinite jeli üzerinde aşağı çekerek iki hedef proteinin bağlanmasını belirlemek için basit bir yöntem öneriyoruz. Ek olarak, çeşitli epitop etiketi kaynaşmış proteinler arasındaki PPI, epitop etiketi afinite jeli yerine her bir etikete karşı afinite antikorları kullanılarak doğrulanabilir. Bu protokol, diğer hücre hatlarından nükleer ekstraktlar da dahil olmak üzere çeşitli PPI'leri doğrulamak için de kullanılabilir. Bu nedenle, çeşitli PPI deneylerinde temel bir yöntem olarak kullanılabilir. Proteinler, uzun süreli seyri ve tekrarlanan donma-çözülme döngüleri ile bozunur. Bu nedenle, hücre lizisi, immünopresipitasyon ve immünoblotlama mümkün olduğunca sorunsuz bir şekilde gerçekleştirilmelidir.
Giriş
Proteinler, bilgi işleme, metabolizma, taşıma, karar verme ve yapısal organizasyon dahil olmak üzere tüm hücresel işlevlerde önemli bir rol oynar. Proteinler, diğer moleküllerle fiziksel olarak etkileşime girerek işlevlerine aracılık eder. Protein-protein etkileşimleri (PPI'ler), sinyal iletimine aracılık etmek, çevreyi algılamak, enerjiyi fiziksel harekete dönüştürmek, metabolik ve sinyal enzimlerinin aktivitesini düzenlemek ve hücresel organizasyonu sürdürmek gibi hücresel işlevlere aracılık etmek için önemlidir1. Böylece, ÜFE'ler bilinmeyen işlevleri aydınlatmak için kullanılabilir2. ÜFE'leri tespit etme yöntemleri üç tipte sınıflandırılabilir: in vitro, in vivo ve in silico. İn vitro PPI tespiti için ko-immünopresipitasyon (co-IP), afinite kromatografisi, tandem afinite saflaştırması, protein dizileri, faj gösterimi, protein fragmanı tamamlaması, X-ışını kristalografisi ve nükleer manyetik rezonans spektroskopisi kullanılmıştır3. Bu yöntemler arasında co-IP, basitliği nedeniyle yaygın olarak kullanılmaktadır.
Füzyon etiketi FLAG, bir enterokinaz bölünme bölgesi de dahil olmak üzere sekiz amino asitten (AspTyrLysAspAspAspAspLys: DYKDDDDK) oluşur ve immünoaffinite kromatografisi4 için özel olarak tasarlanmıştır. DYKDDDDK etiketli proteinler, bir anti-DYKDDDDK antikoru kullanılarak tanınır ve yakalanır. Bu nedenle, spesifik proteinlere bağlanmalarını basit bir şekilde doğrulamak için DYKDDDDK bağlayıcı agaroz boncukları5 kullanılarak verimli bir şekilde aşağı çekilirler. İmmünopresipitasyon çeşitli hücrelerde gerçekleştirilebilir ve ilgilenilen proteine karşı antikorlar kullanılarak çok çeşitli PPI'ler doğrulanabilir. Anti-DYKDDDDK agaroz boncukları ile immünopresipitasyon ve peptit elüsyonu daha önce bildirilmiştir5.
Burada, DYKDDDDK etiketli bir proteini kodlayan bir plazmitin, ilgilenilen iki proteinin ilişkisini doğrulamak için HEK-293 hücrelerine geçici olarak sokulduğu basit bir immünopresipitasyon yöntemi sunuyoruz. Bazı DYKDDDDK antikorları, füzyon proteinlerinin hem N-terminaline hem de C-terminaline bağlanabilir, ancak diğerlerinebağlanamaz 6. Bu nedenle, karışıklığı önlemek için, hem N- hem de C-terminaline kaynaşmış etiketi tanıyan antikor seçilmelidir. Bir epitop etiketi yerleştirirken, epitop etiketi ile hedef protein arasına 3 ila 12 baz çifti ekleyerek proteindeki konformasyonel değişikliklerden kaçınmak mümkün olabilir. Bununla birlikte, eklenen dizi, çerçeve kaymasını önlemek için 3'ün katları olan bir baz çifti olmalıdır.
Protokol
Şekil 1 , protokole genel bir bakış sunar.
1. Çözeltilerin ve tamponların hazırlanması
- Protein lizis tamponu: Daha önce yayınlanmış bir rapor7'yi takiben protein lizis tamponunu hazırlayın (Tablo 1).
- Protein lizis tamponu + proteaz inhibitörü (PI): Yukarıda hazırlanan tampona proteaz inhibitörü ekleyin (Malzeme Tablosuna bakınız) (adım 1.1). -20 °C'de saklayın.
- Numune tamponu: 900 μL 4x Laemmli numune tamponunu (Malzeme Tablosuna bakınız) ve 100 μL 2-merkaptoetanolü karıştırın. -20 °C'de saklayın.
- Polioksietilen (20) sorbitan monolaurat (PBS-P) ile fosfat tamponlu salin (PBS): 1.998 L PBS ve 2 mL polioksietilen (20) sorbitan monolauratı karıştırın (bkz. Oda sıcaklığında saklayın.
- 1x Tris/Glisin/SDS tamponu: 450 mL DDW ve 50 mL 10x Tris/Glisin/SDS'yi karıştırın. Kullanım günü oda sıcaklığında hazırlayın.
2. Plazmit transfeksiyonu
- HEK-293 hücrelerini, 10 cm'lik kollajen kaplı bir tabakta, Dulbecco'nun %10 fetal sığır serumu ve %1 penisilin-streptomisin (10.000 ünite / mL penisilin G ve 10.000 μg/mL streptomisin) içeren modifiye kartal ortamını kullanarak alt birleşime (%80-95) kadar kültürleyin (bkz.
- Tabak başına transfekte edilecek 1-10 μg plazmit7 hazırlayın ve bir transfeksiyon karışımı yapın. Tabak başına 250 μL'lik son hacme 150 mM NaCl ekleyin. Karışımı girdaplayın ve döndürün.
- Tabak başına 60 μL 1 mg / mL Polietilenimin (PEI, Malzeme Tablosuna bakınız) ekleyin, ardından 250 μL PEI çözeltisinin nihai hacmine 150 mM NaCl ekleyin.
- Karışık bir çözelti elde etmek için PEI çözeltisini transfeksiyon karışımına ekleyin. Hemen girdap yapın (3-5 saniye boyunca en yüksek hızda, daha sonra aynısını yapın) ve aşağı döndürün.
- Oda sıcaklığında 15-30 dakika inkübe edin. Bu süre zarfında, HEK-293 hücrelerinin ortamını değiştirin.
- HEK-293 hücrelerinin her yerine 500 μL / tabak karışık çözelti serpin ve gece boyunca (13-14 saat) inkübe edin.
- Ertesi gün orta değişim gerçekleştirin.
3. Hücre lizisi ve numune hazırlama
NOT: Protein bozulmasını önlemek için, sonraki adımlar numuneyi mümkün olduğunca korumadan veya donmadan-çözülmeden gerçekleştirilmelidir.
- Transfeksiyondan yaklaşık 48 saat sonra, hücreleri buz gibi soğuk PBS ile üç kez yıkayın, 500 μL / tabak protein lizis tamponu + PI ekleyin ve hücreleri hücre sıyırıcı ve buz üzerinde düşük protein adsorpsiyonu olan bir tüpte bir pipet ile toplayın.
- Her 5 dakikada bir vorteksleyin ve numuneleri 10 dakika buz üzerinde inkübe edin.
- 4 ° C'de 10 dakika boyunca 16.400 x g'da santrifüjleyin. Süpernatanı toplayın ve düşük protein adsorpsiyonu olan 1.5 mL'lik taze bir tüpe aktarın. Numuneler -80 °C'de saklanabilir.
- Numunelerin protein konsantrasyonunu, üreticinin protokolüne göre bir protein konsantrasyonu ölçüm kiti ile belirleyin (bkz. Malzeme Tablosu).
- Her numunede aynı miktarda proteinden 200-1000 μg ayırın, ardından toplam hacmi 500-1000 μL'ye ayarlamak için protein lizis tamponu + PI ekleyin.
NOT: Aşağıdaki adımlar buz üzerinde gerçekleştirilir.
4. Bulamacın hazırlanması
NOT: İmmünopresipitasyondan bir gün önce veya o gün 1: 1 oranında bir protein G jeli ve epitop etiketi afinite jeli bulamacı hazırlayın.
- Bir protein G jelinin hazırlanması
- Ucu kesilmiş bir uç kullanarak, iyice karıştırın ve ardından protein G jelini ( Malzeme Tablosuna bakınız) numune başına 20 μL boncuk hazırlanacak şekilde ayırın.
- 4 ° C'de 20 saniye boyunca 12.000 x g'da santrifüjleyin ve boncukların düzleşmesini sağlamak için boncukları 1 dakika boyunca buzun üzerine koyun. Süpernatanı bir pipet kullanarak atın.
- Adım 4.1.2'de hazırlanan protein G jeline 1 mL protein lizis tamponu + PI ekleyin ve hafifçe vurarak ve ters çevirerek karıştırın. 4 ° C'de 20 saniye boyunca 12.000 x g'da santrifüjleyin, boncukların düzleşmesini sağlamak için boncukları 1 dakika boyunca buzun üzerine yerleştirin ve süpernatanı atın.
- Adım 4.1.3'ü üç kez tekrarlayın.
- 1: 1 protein G jel bulamacı yapmak için protein G jeline eşit hacimde protein lizis tamponu ekleyin. Protein G jel bulamacı 4 ° C'de yaklaşık 1 gün saklanabilir.
- Bir epitop etiket afinite jelinin hazırlanması
- Ucu kesilmiş bir uç kullanarak, iyice çalkalayın ve ardından epitop etiket afinite jelini ayırın ( Malzeme Tablosuna bakınız) numune başına 10-15 μL boncuk hazırlanacak şekilde.
- 4 °C'de 30 saniye boyunca 5.000 x g'da santrifüjleyin ve boncukların düzleşmesi için buz üzerinde 1 dakika bekleyin. Süpernatanı bir pipet kullanarak atın.
- Adım 4.2.2'de hazırlanan epitop etiketi afinite jeline 1 mL protein lizis tamponu + PI ekleyin ve hafifçe vurarak ve ters çevirerek karıştırın. 4 ° C'de 30 saniye boyunca 5.000 x g'da santrifüjleyin, boncukların düzleşmesini sağlamak için boncukları 1 dakika buzun üzerine koyun ve süpernatantı bir pipetle atın.
- Adım 4.2.3'ü iki kez tekrarlayın.
- Adım 4.2.4'te hazırlanan epitop etiketi afinite jeline 500 μL 0.1 M glisin (pH 3.5) ekleyin ve hafifçe vurarak ve ters çevirerek karıştırın. Bu adım, serbest epitop etiket antikorlarını çıkarmak için gerçekleştirilir. Glisin ilavesinden sonraki 20 dakika içinde, 4 ° C'de 30 saniye boyunca 5.000 x g'da santrifüjleyin, boncukların düzleşmesini sağlamak için boncukları 1 dakika boyunca buzun üzerine yerleştirin ve süpernatanı atın.
- Adım 4.2.5'te hazırlanan epitop etiketi afinite jeline 500 μL protein lizis tamponu + PI ekleyin ve hafifçe vurarak ve ters çevirerek karıştırın. 4 ° C'de 30 saniye boyunca 5.000 x g'da santrifüjleyin, boncukların düzleşmesini sağlamak için boncukları 1 dakika buzun üzerine koyun ve süpernatanı atın.
- Adım 4.2.6'yı üç kez tekrarlayın.
- 1: 1 epitop etiket afinite jeli bulamacı hazırlamak için epitop etiketi afinite jeline eşit hacimde protein lizis tamponu ekleyin. Epitop etiketi afinite jeli bulamacı yaklaşık 1 gün boyunca 4 ° C'de saklanabilir.
5. Protein G jeli ile ön temizleme ve epitop etiket afinite jeli ile protein komplekslerinin yakalanması
- 1:1 protein G bulamacını (4. adımda hazırlanan) kesik uçlu bir pipetle karıştırın ve numuneye bir seferde 40 μL ekleyin.
- Numuneyi bir döndürücü üzerinde 1 saat döndürün ( Malzeme Tablosuna bakın) soğutulmuş bir odada (30 ° C) döngü başına yaklaşık 4 s'de.
- 4 ° C'de 20 saniye boyunca 12.000 x g'da santrifüjleyin ve boncukların düzleşmesini sağlamak için boncukları 1 dakika boyunca buzun üzerine koyun.
- Süpernatanı toplayın ve düşük protein adsorpsiyonu olan 1.5 mL'lik yeni bir tüpe aktarın.
- Giriş için numuneyi adım 5.4'teki numuneden ayırın ve yeni bir 1.5 mL'lik tüpe aktarın.
- Numuneye 20-30 μL 1: 1 epitop etiket jel bulamacı ekleyin.
- 30 saat boyunca soğutulmuş bir odada (4 ° C) döngü başına yaklaşık 2 saniye döndürücü üzerinde döndürün.
- 4x'e seyreltmek için adım 5.5'te hazırlanan girişe numune tamponu ekleyin ve 98 °C'de 10 dakika ısıtın. Giriş -80 °C'de saklanabilir.
NOT: Donma ve çözülme nedeniyle protein bozulması olasılığı nedeniyle, sonraki adımlar proteini mümkün olduğunca korumadan gerçekleştirilmelidir.
6. Çökelmiş proteinlerin yıkanması ve ayrıştırılması
- Isı bloğunun sıcaklığını 98 °C'ye ayarlayın.
- 4 °C'de 30 saniye boyunca 5.000 x g'da santrifüjleyin ve boncukların düzleşmesi için buz üzerinde 1 dakika bekleyin. Süpernatanı bir pipet kullanarak atın.
- 1 mL protein lizis tamponu + PI ekleyin ve dokunarak ve ters çevirerek karıştırın. Soğutulmuş bir odada (30 ° C) döngü başına yaklaşık 4 saniye boyunca bir döndürücü üzerinde 5 dakika döndürün. 4 ° C'de 30 saniye boyunca 5.000 x g'da santrifüjleyin, boncukların düzleşmesi için buz üzerinde 1 dakika bekleyin ve süpernatanı atın.
- Adım 6.3'ü 5-10 kez tekrarlayın.
- Adım 6.4'te hazırlanan numuneye 10 μL numune tamponu ekleyin. 98 °C'de 10 dakika kaynatın.
- 30 saniye boyunca 4 ° C'de 5.000 x g'da santrifüjleyin.
- Düşük protein adsorpsiyonuna sahip yeni bir tüpe bir kolon yerleştirin ve kesilmiş uçlu bir pipet kullanarak jeli kolona aktarın. Jelin kirlenmesini önlemek için bir sütun kullanılır.
- 4 ° C'de 1 dakika boyunca 9.730 x g'da santrifüjleyin. Akışı toplayın. Numune -80 °C'de saklanabilir.
NOT: Numune bozulması söz konusuysa, aşağıdaki immünoblotlama işlemi dondurulmadan yapılmalıdır.
7. İmmünoblotlama
NOT: İmmünoblotlama prosedürleri önceki raporlara dayanmaktadır 7,8.
- Tüm numuneleri bir sodyum dodesil-sülfat poliakrilamid jel üzerine yükleyin (SDS-PAGE, bkz. Malzeme Tablosu).
NOT: Gerekirse, tüm numunenin aktarılabileceği şekilde büyük kuyulu jeller kullanın. Burada 50 μL'lik kuyucuklu jeller kullanıldı. - Jelleri elektroforez odasına yerleştirin ve jellerin etrafındaki uygun hacme kadar 1x Tris/Glisin/SDS tamponu ( Malzeme Tablosuna bakınız) ekleyin.
- 100 V ve 400 mA'da elektroforez jelleri.
- Poliviniliden florür (PVDF, Malzeme Tablosuna bakınız) membranlarına aktarın.
- PVDF membran lekelerini oda sıcaklığında 1 saat boyunca PBS-P'de %5 yağsız sütle bloke edin.
- Membranı PBS-P ile bir çalkalayıcı üzerinde 5 dakika boyunca en yüksek hızda üç kez yıkayın. Daha sonra yıkarken de aynı işlemi uygulayın.
- Birincil antikor ile bir çalkalayıcı üzerinde gece boyunca inkübe edin (Malzeme Tablosuna bakınız) 4 ° C'de.
- Ertesi gün membranı PBS-P ile üç kez yıkayın.
- İkincil antikor ile oda sıcaklığında bir çalkalayıcı üzerinde 1 saat inkübe edin.
NOT: Hedef proteinin moleküler ağırlığı, yaklaşık 50 kDa'lık bir moleküler ağırlığa sahip olan IgG ağır zincirine yakınsa, hedef bandın IgG ağır zinciri ile örtüşmesini önlemek için hafif zincire özgü bir ikincil antikor kullanılabilir. Bu çalışmada, IP tespit reaktifi olarak hafif zincire özgü antikorlar7 veya Veriblot kullanılmıştır (bkz. Malzeme Tablosu). - Peroksidaz ışıldayan substratları ile protein bantlarını tanımlayın. Membran, PBS-P ile iki kez yıkandıktan sonra PBS'de saklanabilir.
- Bir sıyırma solüsyonu ile 10 dakika soyun ( Malzeme Tablosuna bakın).
- Üç kez yıkayın ve PBS-P'de% 5 yağsız süt ile bloke edin. Bundan sonraki protokol, adım 7.6'dan sonraki ile aynıdır.
Sonuçlar
Kahverengi ve bej adipositler olarak da bilinen termojenik adipositler, potansiyel anti-obezite ve anti-glukoz intoleransı etkilerine sahiptir. PR (PRD1-BF1-RIZ1 homolog) alan içeren 16 (PRDM16), termojenik adiposit kimliğininbelirlenmesinde önemli rol oynayan bir transkripsiyon kofaktörüdür 9,10.
GLP olarak da bilinen EHMT1 (ökromatik histon-lizin N-metiltransferaz 1), esas olarak S-adenosil metiyonin 11 kofaktörünü kullanarak histon H3'ün (H3K9) lizin9'unun mono- ve dimetilasyonunu katalize eder. Önceki bir rapor, EHMT1'in PRDM16 kompleksinde, histon metilasyonu12,13 yoluyla termojenik yağ hücresi kaderini kontrol eden temel bir metiltransferaz olduğunu göstermiştir. Ayrıca, PRDM16 ve EHMT1'in ekspresyon seviyelerinin, insan perirenal kahverengi yağ dokusundaki (BAT) termojenik genlerinkilerle önemli ölçüde ilişkili olduğunu daha önce bildirmiştik, bu da hem PRDM16 hem de EHMT1'in insan BAT gelişiminde önemli roller oynadığını düşündürmektedir8.
PPI'leri doğrulamak için bir yöntem olarak bu protokolün etkinliğini göstermek için, DYKDDDDK-PRDM16 ve HA-EHMT1'i HEK-293 hücrelerine transfekte ettik ve yukarıdaki protokolü kullanarak DYKDDDDK-PRDM16'yı immünopresipe ettik. DYKDDDDK etiketli PRDM16 ve HA etiketli EHMT1, memeli ekspresyon vektörü pcDNA3.1'in klonlama bölgelerine yerleştirildi (bkz. İmmünoblotlama, DYKDDDDK-PRDM16 ve HA-EHMT1 ile transfekte edilen gruplarda DYKDDDDK-PRDM16 ve HA-EHMT1 arasındaki ilişkiyi doğruladı (Şekil 2).
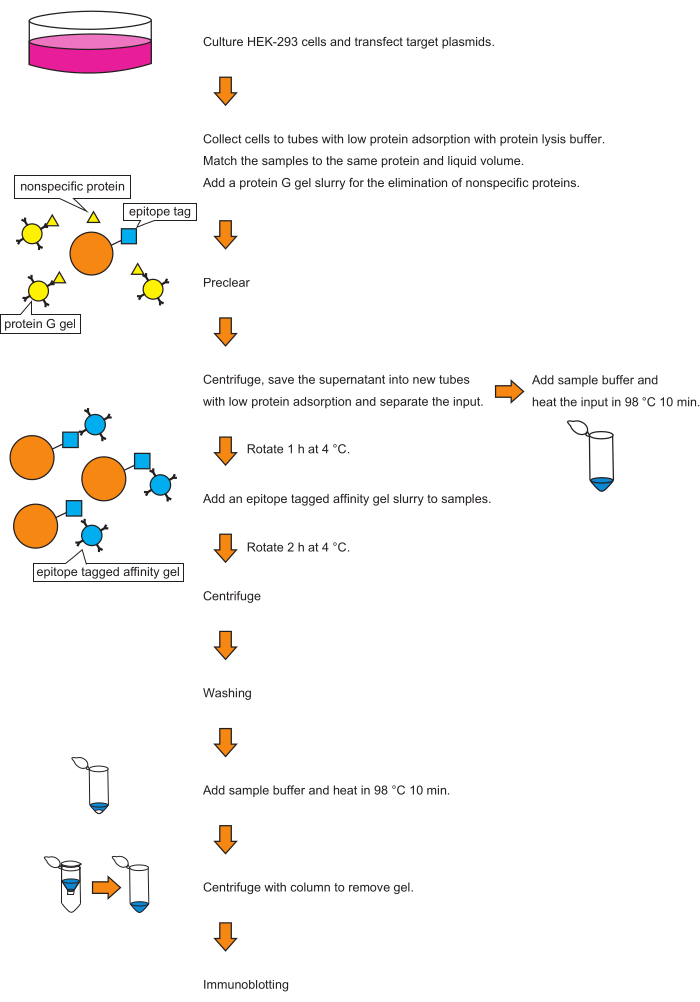
Şekil 1: Ko-immünopresipitasyonun şematik gösterimi. Protokolün şeması burada gösterilmiştir. Sağ taraf protokolün iş akışını gösterir; Sol taraf, reaksiyonların grafiksel bir temsilini gösterir. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
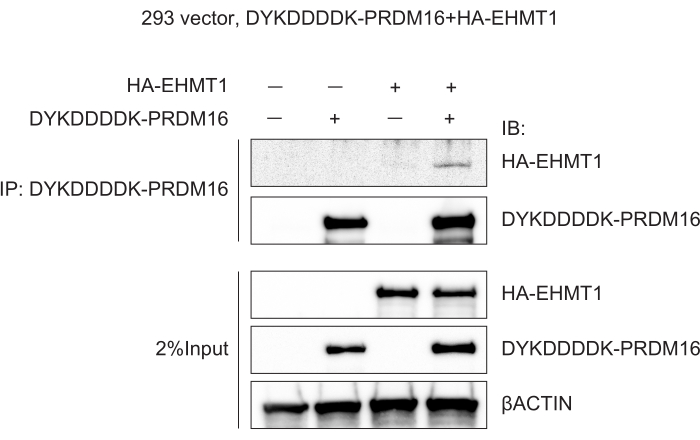
Şekil 2: PRDM16, EHMT1 ile ilişkilidir. HEK-293 hücreleri vektör (negatif kontrol), DYKDDDDK-PRDM16 veya DYKDDDDK-PRDM16 ve HA-EHMT1 ile transfekte edildi. Ko-immünopresipitasyon daha sonra bir DYKDDDDK etiket afinite jeli kullanılarak gerçekleştirildi ve ardından immünoblotlama yapıldı. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
| Protein lizis tamponu 250 mL (0.22 μm filtrasyon, 4 °C'de saklayın) | ||
| Ml | Son konsantrasyon | |
| 1 m tris pH 8.0 | 12.5 | 50 milyon |
| 5 milyon NaCl | 7.5 | 150 milyon |
| 0.5 M Etilendiamintetraasetik asit | 0.5 | 1 milyon |
| Gliserol | 25 | 10% |
| Polioksietilen(10) Oktilfenil Eter | 2.5 | 1% |
| DDW (Türkçe) | 202 | |
| Toplam | 250 | |
Tablo 1: Protein lizis tamponunun bileşimi.
Tartışma
Bu protokol neredeyse daha önce bildirilen 5,7,14,15 protokolleri gibidir. Bu protokolün önemli noktası, deneyi hücre lizis basamağından immünopresipitasyon basamağına kadar asla durdurmamamızdır. Protein bozulması ÜFE tespitini engeller. Uzun süreli seyri ve tekrarlanan donma-çözülme döngüleri proteinleri bozar. SDS-PAGE'deki elektroforez, sadece protein yıkımını en aza indirmek için değil, aynı zamanda PPI tespitini en üst düzeye çıkarmak için immünopresipitasyonun aynı gününde de yapılmalıdır.
Termojenik adipositlerde, EHMT1 ve PRDM16 arasındaki etkileşim önceki bir çalışmadabildirilmiştir 13. EHMT1 - PRDM16 kompleksi, kahverengi adiposit hücre kaderini ve termojenez13'ü düzenler. EHMT1, PRDM16 - Amiloid protein bağlayıcı protein (APPBP) 2,16'nın etkileşimini keserek PRDM16'yı stabilize eder. Bu PRDM16 stabilizasyonu, cullin(CUL) 2-APPBP2 ve EHMT116 tarafından düzenlenir.
Bu çalışmada, HEK-293 hücreleri rekombinant proteinlerin üretiminde yaygın olarak kullanıldığı için HEK-293 hücreleri kullanılmıştır17. Cos-7 hücreleri ve Hela hücreleri gibi plazmitlerle transfekte edilmesi kolay olan diğer hücre hatları kullanılabilir. Transfeksiyon için PEI kullanıldı çünkü PEI, konvansiyonel lipofeksiyona kıyasla daha ekonomik ve daha basitti.
Ön temizleme, bir epitop etiket afinite jelinde döndürme ve yıkama bu yöntemde özellikle önemli adımlardır. Ön temizleme, jele spesifik olmayan bir şekilde bağlanan proteinleri çıkarabilir. Ek olarak, epitop etiket afinite jeli ile rotasyon süresi önemlidir, çünkü aşırı zaman spesifik olmayan protein tespitine neden olabilir ve yetersiz zaman hedef proteinlerin tespitini engelleyebilir.
Aşağıdaki noktalara dikkat edilmelidir. HEK-293 hücreleri kolayca ayrılır; Bu nedenle numuneler hazırlanırken kollajen kaplı tabaklar kullanılmalıdır. PEI çözeltisi sitotoksiktir; Bu nedenle, ortam, hücrelerden uzun süre ayrılmadan transfeksiyondan sonra değiştirilmelidir. PPİ'ler gözlenmezse, transfekte edilen plazmit miktarı yetersiz olabilir ve/veya IP'ye getirilen protein miktarı düşük olabilir. Ek olarak, yıkama sayısı fazla ise, etkileşimler gözden kaçabilir. Bunları ele almak için aşağıdakiler göz önünde bulundurulabilir: HEK-293 hücrelerine verilen plazmit miktarının arttırılması, IP için kullanılan protein miktarının arttırılması ve yıkama sayısının azaltılması. Ayrıca, son yıkamada çok fazla süpernatan kalırsa, sodyum dodesil sülfat-poliakrilamid jelin kuyularından taşacaktır. Spesifik olmayan bantlar gözlenirse, IP için kullanılan plazmid/protein miktarı çok yüksek olabilir veya yıkamaların sayısı veya yoğunluğu yetersiz olabilir. Bunlar, IP için kullanılan plazmid/protein miktarını azaltarak, yıkama sayısını artırarak veya yıkama tamponundaki tuz konsantrasyonunu artırarak yıkama gücünü artırarak ele alınabilir.
Polioksietilen (10) oktilfenil eter gibi yaygın olarak kullanılan deterjanlar, işlevsel olarak önemli PPI'larıbozabilir 18. Daha hafif deterjanlar, işlevsel olarak önemli komplekslerin geri kazanımını artırabilirken, eksik çözünme nedeniyle kabul edilemez düzeyde spesifik olmayan etkileşimler sağlayabilirler. Bu çalışmada kullanılan protein lizis tamponu% 1 polioksietilen (10) oktilfenil eter içerir. Bu tampon, sitoplazmik proteinleri, transfekte edilmiş plazmitler tarafından aşırı eksprese edilen yüksek miktarda protein ile parçalar. Çekirdek ve sitoplazmanın ayrılmasıyla hazırlanan numuneler üzerinde immünopresipitasyon gerçekleştirildiğinde, arka plan tam hücre lizizi ile hazırlanan numunelere kıyasla azalır ve net hedef bantlar tanımlanabilir17. Çekirdekteki proteinlerle immünopresipitasyon yapılırsa, nükleer proteinler ticari bir nükleer ekstraksiyon kiti kullanılarak veya deterjan içeren düşük tuz tamponu ile sitoplazmanın yok edilmesi ve uzaklaştırılması ve ardından yüksek tuz tamponu19 ile nükleer proteinlerin ekstrakte edilmesiyle ekstrakte edilebilir. İmmünoblotlamada gelişme süresi sadece arka plandan kaçınmak için değil, aynı zamanda belirli bantları tespit etmek için de ayarlanmalıdır.
Bu yöntemin birkaç sınırlaması vardı. İlk olarak, tespit etmesi beklenen bir ÜFE kullandık. İkincisi, her bir genin ekspresyonu plazmitlerin kombinasyonuna bağlı olduğundan, yetersiz protein elde edilebilir ve bu nedenle etkileşim tespit edilemeyebilir.
Özetle, bu yöntem kullanılarak PPI'lar, kütle spektrometresine kıyasla ekonomik ve kolay bir şekilde doğrulanabilir. Çeşitli epitop etiketi kaynaşmış proteinler arasındaki ÜFE, epitop etiketi afinite jeli yerine her bir etikete karşı afinite antikorları kullanılarak da doğrulanabilir. Benzer immünopresipitasyon yöntemleri, DYKDDDDK etiketine kaynaşmış herhangi bir proteini ifade eden bir plazmid eklenerek diğer hücre tiplerinde de gerçekleştirilebilir. Ayrıca, bir epitop etiket afinite jeli yerine endojen antikorların kullanılması, çeşitli hücre tiplerinde endojen PPI'lerin doğrulanmasını mümkün kılar.
Açıklamalar
Yazarların hiçbirinin bu çalışma ile ilgili herhangi bir çıkar çatışması olmadığını beyan ederiz.
Teşekkürler
Bu çalışma, Japonya Bilimi Teşvik Derneği (JSPS) KAKENHI Hibe Numarası 19K18008 (GN), JSPS KAKENHI Hibe Numarası 22K16415 (GN), JSPS Kakenhi Hibe Numarası 22K08672 (H.O.), Japonya Diyabet Derneği Genç Araştırmacılar için Araştırma Bursu (GN) ve MSD Yaşam Bilimleri Vakfı Genç Araştırmacılar için Araştırma Bursu (GN) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.5 M EDTA (pH8.0) | Nippon geni | 311-90075 | |
| 10 Mini-PROTEAN TGX Prekast Protein Jelleri, 10 oyuklu, 50 ve mikro; L | Biorad | 4561034 | |
| 10x Tris/Glisin/SDS | Biorad | 1610772 | |
| ANTI-FLAG M2 Afinite Jeli | Sigma | A2220 | |
| Anti-Fare IgG, HRP Bağlantılı Bütün Ab Koyunu | GE Healthcare | NA931-1ML | |
| Anti-Tavşan IgG, HRP Bağlantılı Bütün Ab Eşek | GE Healthcare | NA934-1ML | |
| Hücre Kazıyıcı M | Sumitomo Bakalit | MS-93170 | |
| Kollajen I Kaplama Kabı 100 mm | IWAKI | 4020-010 | |
| cOmplete, EDTA İçermeyen Proteaz İnhibitörü Kokteyl | Roche | 4693132001 | |
| DMEM/F-12, GlutaMAX takviyesi | Invitrogen | 10565042 | |
| D-PBS (-) | FUJIFILM Wako | 045-29795 | |
| Gliserol | FUJIFILM Wako | 072-00626 | |
| Glisin | FUJIFILM Wako | 077-00735 | |
| HA-Tag (C29F4) Tavşan mAb # 3724 | Hücre Sinyalizasyonu | C29F4 | |
| Laemmli Numune tamponu | Bio-Rad Laboratories | 161-0747 | |
| Mikro Bio-Spin Kromatografi Sütunları | Biorad | 7326204 | |
| Mini Prekast Jeller için Mini-PROTEAN Tetra Hücresi | Biorad | 1658004JA | |
| Farede üretilen monoklonal ANTI-FLAG M2 antikoru | Sigma | F3165 | |
| NaCl | FUJIFILM Wako | 191-01665 | |
| pcDNA3.1-FLAG-PRDM16 | Bu makale | N/A | |
| pcDNA3.1-HA-EHMT1 | Bu makale | N/A | |
| pcDNA3.1-vektör | Bu makale | N/A | |
| PEI MAX - Transfeksiyon Sınıfı Doğrusal Polietilenimin Hidroklorür | PSI | 24765 | |
| Penisilin-streptomisin çözeltisi | FUJIFILM Wako | 168-23191 | |
| Pierce BCA Protein Test | Kiti Thermo scientific | 23227 | |
| Polioksietilen (10) Oktilfenil Eter | FUJIFILM Wako | 168-11805 | |
| Polioksietilen(20) Sorbitan Monolaurat | FUJIFILM Wako | 167-11515 | |
| Protein G Sepharose 4 Hızlı Akış Laboratuvar Paketleri | Cytiva | 17061801 | |
| Protein LoBind Tüpleri | eppendorf | 30108442 | |
| ROTATOR RT-5 | TAITEC | RT-5 | |
| yağsız süt | Morinaga | 0652842 | |
| Sıyırma Çözümü | FUJIFILM Wako | 193-16375 | |
| Trans-Blot Turbo Mini PVDF Transfer Paketi | Biorad | 1704156B03 | |
| Trans-Blot Turbo Sistemi | Biorad | N/A | |
| Trizma tabanı | Sigma | T1503-1KG | |
| USDA Test Edilmiş Fetal Sığır Serumu (FBS) | HyClone | SH30910.03 | |
| Veriblot | Abcam | ab131366 | |
| β-Aktin (13E5) Tavşan mAb #4970 | Hücre Sinyalizasyonu | 4970S |
Kaynaklar
- Braun, P., Gingras, A. History of protein-protein interactions: from egg-white to complex networks. Proteomics. 12 (10), 1478-1498 (2012).
- Yanagida, M. Functional proteomics; current achievements. Journal of Chromatography B-Analytical Technologies in the Biomedical and Life Sciences. 771 (1-2), 89-106 (2002).
- Rao, V. S., Srinivas, K., Sujini, G. N., Kumar, G. N. S. Protein-protein interaction detection: methods and analysis. International Journal of Proteomics. 2014, 147648(2014).
- Hopp, T. P., et al. A short polypeptide marker sequence useful for recombinant protein identification and purification. Nature Biotechnology. 6 (10), 1204-1210 (1988).
- Gerace, E., Moazed, D. Affinity pull-down of proteins using anti-FLAG M2 agarose beads. Methods in Enzymology. 559, 99-110 (2015).
- Einhauer, A., Jungbauer, A. The FLAG peptide, a versatile fusion tag for the purification of recombinant proteins. Journal of biochemical and biophysical methods. 49 (1-3), 455-465 (2001).
- Egusa, G., et al. Selective activation of PPARα maintains thermogenic capacity of beige adipocytes. iScience. 26 (7), 107143(2023).
- Nagano, G., et al. Activation of classical brown adipocytes in the adult human perirenal depot is highly correlated with PRDM16-EHMT1 complex expression. PLoS One. 10 (3), e0122584(2015).
- Seale, P., et al. Transcriptional control of brown fat determination by PRDM16. Cell Metabolism. 6 (1), 38-54 (2007).
- Kajimura, S., et al. Regulation of the brown and white fat gene programs through a PRDM16/CtBP transcriptional complex. Genes and Development. 22 (10), 1397-1409 (2008).
- Shinkai, Y., Tachibana, M. H3K9 methyltransferase G9a and the related molecule GLP. Genes and Development. 25 (8), 781-788 (2011).
- Able, A. A., Richard, A. J., Stephens, J. M. TNFα effects on adipocytes are influenced by the presence of lysine methyltransferases, G9a (EHMT2) and GLP (EHMT1). Biology. 12 (5), 674(2023).
- Ohno, H., Shinoda, K., Ohyama, K., Sharp, L. Z., Kajimura, S. EHMT1 controls brown adipose cell fate and thermogenesis through the PRDM16 complex. Nature. 504 (7478), 163-167 (2013).
- Bian, W., et al. Protocol for establishing a protein-protein interaction network using tandem affinity purification followed by mass spectrometry in mammalian cells. STAR Protocols. 3 (3), 101569(2022).
- Cristea, I. M., Chait, B. T. Affinity purification of protein complexes. Cold Spring Harbor Protocols. 2011 (5), (2011).
- Wang, Q., et al. Post-translational control of beige fat biogenesis by PRDM16 stabilization. Nature. 609 (7925), 151-158 (2022).
- Holden, P., Horton, W. Crude subcellular fractionation of cultured mammalian cell lines. BMC Research Notes. 2, 243(2009).
- Yang, L., Zhang, H., Bruce, J. E. Optimizing the detergent concentration conditions for immunoprecipitation (IP) coupled with LC-MS/MS identification of interacting proteins. Analyst. 134 (4), 755-762 (2009).
- Herrmann, C., Avgousti, D. C., Weitzman, M. D. Differential salt fractionation of nuclei to analyze chromatin-associated proteins from cultured mammalian cells. BIO-PROTOCOL. 7 (6), e2175(2017).
Yeniden basım ve izinler
