Bu protokol, tarla ortamlarında 'yeşil çakıl' tekniğinin başarısını ve sınırlamalarını ele almak için restorasyon denemelerinde kullanılmak üzere gölgelik oluşturan dev yosun ile tohumlanmış substratların tarlada toplanmasını ve düzenli laboratuvar bakımını açıklar.
Yöntem makalesi
Restorasyonu kolaylaştırmak için gölgelik oluşturan dev yosunun saha koleksiyonu ve laboratuvar bakımı
Bu makalede
Özet
Özet
Kanopi oluşturan yosunlar, biyolojik çeşitliliği destekleyen ve yıllık 500 milyar ABD dolarından fazla değere sahip ekosistem hizmetleri sağlayan temel temel türlerdir. İklim kaynaklı ekolojik stres faktörleri nedeniyle dev yosun ormanlarının küresel olarak azalması, yenilikçi restorasyon stratejilerine duyulan ihtiyacın altını çiziyor. 'Yeşil çakıl' olarak bilinen yeni bir restorasyon tekniği, genç yosunları geniş alanlarda yoğun su altı işçiliği olmadan tohumlamayı amaçlıyor ve maliyet etkinliği ve ölçeklenebilirlik nedeniyle umut verici bir restorasyon aracını temsil ediyor. Bu video makalesi, dev yosun Macrocystis pyrifera'yı kültürlemek için bir protokol ve araçları göstermektedir. Ayrıca, bu yöntemin saha ortamlarındaki başarılarını ve sınırlamalarını ele almak için daha ileri çalışmalar için bir kaynak sağlar. 'Yeşil çakıl' tekniğini kullanarak erken yaşam evreleri ile tohumlanmış substratları toplamak, sporlamak, aşılamak, yetiştirmek, bakımını yapmak ve izlemek için saha ve laboratuvar tabanlı yöntemleri özetliyoruz. Protokol, araştırmacıları, yöneticileri ve paydaşları yosun koruma hedeflerine ulaşmada desteklemek için bu alandaki mevcut restorasyon uygulamalarını basitleştirir ve merkezileştirir.
Giriş
Kanopi oluşturan yosunlar (Laminariales takımındaki kahverengi makroalgler), ılıman ve Arktik denizlerde kıyı kayalık resiflerine hakim olan, küresel olarak önemli temel türlerdir1. Bu yosunlar, taksonomik olarak çeşitli deniz topluluklarını destekleyen yosun ormanları olarak bilinen yapısal olarak karmaşık ve oldukça verimli biyojenik habitatlar oluşturur2. Dünya çapındaki yosun ormanları, ticari balıkçılık üretimi, karbon ve besin döngüsü ve rekreasyon fırsatları dahil olmak üzere insanlara yılda toplam tahmini değeri 500 milyar ABD doları olan birçok ekosistem hizmeti sunmaktadır3.
Önemli değerlerine rağmen, yosun ormanları birçok bölgede artan antropojenik baskılarla karşı karşıyadır3. İklim değişikliği, sıcaklık anormalliklerininartan sıklığı ile birlikte uzun vadeli okyanus ısınması nedeniyle yosunlar için en önemli tehditlerden birini sunmaktadır 3,4,5,6,7. Artan okyanus sıcaklıkları, besin sınırlaması8 ile ilişkilendirilirken, fizyolojik eşiklerin üzerinde ısı stresine maruz kalmak ölüm oranınaneden olabilir 9. Değişken bölgesel yerel stres faktörleri7 ile birlikte, yosun popülasyonları küresel olarak yılda yaklaşık% 2 oranında azalmaktadır10 önemli kayıplar ve belirli bölgelerdeki alternatif topluluk devletlerine kalıcı kaymalar 6,11,12,13,14. Yosun popülasyonlarının doğal olarak geri kazanılması, mevcut ve öngörülen kayıplarınkapsamını tersine çevirmek için tek başına yeterli olmayabilir 15,16,17,18, bu da aktif restorasyonun önemini vurgulamaktadır.
Mevcut yosun restorasyon çabaları, kıyı kayalık resiflerinde bu önemli temel türleri yeniden kurmak için metodolojilerin bir kombinasyonunu kullanabilir 3,19. Sahaya özgü endişeleri ele almak için seçilen metodolojiler coğrafi bağlama, yosun geri kazanımının önündeki belirli engellere ve sosyal-ekolojik bağlamabağlıdır 11. Sosyal-ekolojik sistemlerin bağlantılarını ve karşılıklı bağımlılığını anlamak anahtardır ve yerel kurumları devreye sokan ve yerel topluluklardan destek alan müdahaleler, başarılı restorasyon çabalarının olasılığını artırır20.
İklim değişikliğine ek olarak, otobur baskısı veya türler arası rekabet, toparlanmayı yönlendirir, azaltır veya bastırır (örneğin, deniz kestaneleri13, otçul balıklar 21,22, çim algleri 9,23 veya istilacı algler24). Restorasyon, bu biyotik stres faktörlerinin25 uzaklaştırılmasına odaklanabilir, ancak bu yöntemler önemli kaynaklar ve sürekli bakım gerektirir11. Yosun türlerinin toparlanmasını katalize etmek için, doğrudan bir tohumlama yaklaşımına yönelik çabalar olmuştur, örneğin, verimli yosun bıçaklarıyla dolu ağ torbaları, zoosporları çevreye salan benthoslaratartmak 26. Bununla birlikte, bu yöntem zaman alıcıdır ve teknik su altı kurulumu ve sökülmesini gerektirir. Diğer vakalar, yakından ilişkili ve savunmasız donör popülasyonlarını tehlikeye atabilen ve sürekli transplantasyona güvenme nedeniyle genellikle küçük ölçeklerle sınırlı olan büyük miktarlarda tam yetişkin donör bitkilerin nakline odaklanır27.
Yosun sporu sınırlamasının, habitat parçalanması nedeniyle yosun ormanı toparlanmasını engelleyebileceği bölgeler için, 'yeşil çakıl' tekniği adı verilen nispeten yeni bir yosun restorasyon yaklaşımı getirildi. Teknik, Norveç'in güneyindeki Flødevigen Araştırma İstasyonu'nda başarıyla denendi28 ve maliyet etkinliği ve ölçeklenebilirlik nedeniyle restorasyon için umut verici bir seçenek sundu. Bu tekniğin iş akışı aşağıdaki gibidir: (1) tarladaki üreme yetişkin yosunlarından toplanan verimli dokudan bir spor çözeltisi oluşturulur ve daha sonra çakıl gibi küçük substratlara ekilir; (2) erken evre yosunlar, substratlar üzerinde laboratuvar kontrollü abiyotik koşullarda yetiştirilir; (3) Görünür sporofitlere sahip substratlar, sporofitlerin büyümeye devam ettiği 'yeşil çakıl' olarak belirli resiflerde sahada konuşlandırılır. Yetişkin bireylerin tipik nakil çabalarının, dalgıçlar tarafından zahmetli ve maliyet engelleyici su altı kurulumu gerektirdiğini ve 'yeşil çakıl' tekniğinin yüzeyden basit bir dağıtım kullandığını unutmayın28.
'Yeşil çakıl' tekniği şu anda farklı ortamlarda ve çeşitli laminer yosun türlerinde29 çok sayıda uluslararası çalışma grubunun üyeleri tarafından denenmektedir. Bu protokol, dev yosun Macrocystis pyrifera kullanılarak bu restorasyon tekniğini tarlada uygulamadan önce doku toplama, sporlama, tohumlama, yetiştirme koşulları, düzenli bakım ve erken evre yosunun izlenmesi için gerekli tesisleri, malzemeleri ve yöntemleri açıklar. Bu protokol, farklı saha ortamlarında M. pyrifera ile bu yöntemin başarıları ve sınırlamaları hakkında fikir vermek isteyen araştırmacılar, yöneticiler ve paydaşlar için değerli bir kaynaktır.
Protokol
Bu protokolde açıklandığı gibi kullanılan yosun dokuları, Kaliforniya Balık ve Yaban Hayatı Departmanı tarafından S-20202004-20205-001 izni altında toplanmış ve denetlenmiştir.
1. Tesislerin ve malzemelerin hazırlanması
- Yosun kültür tesislerinin sıcaklığı (10-15 °C) koruyabildiğinden, tam spektrumlu ışık (0-180 μmol foton m-2 s-1) ve filtre havalandırması (0,2 μm gözenek boyutu) sağlayabildiğinden emin olun. Kablolar ve borular, ışıklar ve bir hava kaynağı için yerleşik bir çıkışa veya erişim portuna sahip inkübatör sistemleri kullanın (Şekil 1). Bir inkübatör sistemi projenin kapsamı, bütçesi veya amaçlanan ölçeği dahilinde değilse, soğuk, doğal deniz suyu veya bir soğutucu ile temperlenmiş su banyoları kullanın (Şekil 2). Belirli ayrıntılar için Malzeme Tablosuna bakın.
- Sıcaklığın 10-18 °C arasında olduğundan emin olmak için büyüme ortamına bir termometre yerleştirin veya bir sıcaklık tabancası kullanın.
NOT: Yetiştirme sıcaklıkları sahaya ve mevsime özgüdür30. - Işık kaynağındaki zamanlama ayarlarını değiştirerek veya mekanik bir zamanlayıcı kullanarak tam spektrumlu ışıkları 12 saatlik bir fotoperiyoda programlayın: 12 saat karanlık. Işık yoğunluğunu, çakılın yakınındaki yüzeyin altında su geçirmez fotosentetik olarak aktif radyasyon (PAR) kuantum metre ile ölçün ve kısılabilir bir ışık kaynağı kullanarak veya selofan katmanlayarak (vejetatif gametofit kültürü durumunda, bkz. Bölüm 9) veya ışık kaynağının üzerine ağ örerek ayarlayın (ışık yoğunluğu ayarlamalarıyla ilgili ayrıntılar için bkz. Bölüm 6.3).
- Sporülasyondan bir gün sonra hava pompalarını31 kullanarak uygun havalandırmayı sağlayın. Hava kaynaklı bakteriyel kontaminasyonu azaltmak için filtreler (0,2 μm gözenek boyutu) kullanın.
NOT: 'Yeşil çakıl' kültürü için, havalandırma basıncı, erken aşamadaki yosunun tohumlanmış substratlara yapışmasını bozmazken, tüm kültür kaplarında suyu dolaştırmak için yeterli olmalıdır. Hacim arttırıcı gametofit biyokütlesi (bakınız Bölüm 9.2) mevcutsa, havalandırma basıncı, gametofitlerin kültür ortamında asılı kalmasını sağlamak için yeterli olmalıdır.
- Sıcaklığın 10-18 °C arasında olduğundan emin olmak için büyüme ortamına bir termometre yerleştirin veya bir sıcaklık tabancası kullanın.
- Malzemeleri ve istasyonları sterilize edin. Bunları önceden hazırlayın (Malzeme Tablosuna bakın).
- Yüzeyleri %70 izopropil alkol kullanarak temizleyin. Mümkünse üreme kurumunu kullanın ve toplama ekipmanını 'yeşil çakıl' fidanlığının dışında temizleyin.
- Aşağıdaki sterilizasyon yöntemlerini kullanın: laboratuvar sınıfı bir deterjan kullanarak durulayın, ardından damıtılmış suyla iyice durulayın, seyreltilmiş bir ağartma solüsyonuna (üretici talimatlarına göre) batırın, ardından damıtılmış suyla iyice durulayın ve uygun ayarları kullanarak otoklavlayın (cam eşyalar veya aletler). Sterilizasyondan sonra malzemeler kapalı bir kapta saklanabilir veya folyo ile sarılabilir.
- Laboratuvar sınıfı bir deterjan kullanarak kültürleme için kullanılacak kapları kapaklarla fırçalayın ve temizleyin, ardından damıtılmış suyla iyice durulayın.
NOT: Kapaklı kültür kapları, büyüme ortamının buharlaşmasını azaltmaya yardımcı olacaktır. Hava değişimine izin vermek için kapakları hafifçe açık bırakın veya havadaki kontaminasyonu azaltmak için bir çek valf kullanın. Kapaklı kaplar mevcut değilse, kültür kaplarını parafin film gibi bir termoplastik ile kapatın ve 2-3 delik açın. Daha büyük tanklar kullanılıyorsa, şeffaf plastikten yapılmış buharlaşma önleyici kapaklar kullanın. - Gametofitlerin yüksek sertliğe sahip alt tabakalarda tutulma olasılığı daha yüksek olduğundan, çakılın dokulu veya hafif çukurlu bir yüzeye sahip olduğundanemin olun 32,33. Toz veya kalıntıları temizlemek için su berraklaşana kadar çakılları fırçalayın ve durulayın. Çakılı en az 24 saat boyunca %10 seyreltilmiş çamaşır suyu çözeltisine batırın ve filtreyle sterilize edilmiş deniz suyuyla durulayın (bkz. Bölüm 2.1). Alternatif olarak, ovma ve durulamadan sonra, çakılları deiyonize (DI) suda 1 hafta bekletin32.
NOT: İdeal olarak, restorasyon alanının kontaminasyonunu azaltmak için yerel olarak hasat edilmiş substrat kullanılır. Alternatif olarak, akvaryum sınıfı çakıl önerilir. Kireçtaşı gibi kireçtaşı gibi kireçli yüzeylerden kaçının, bu da doku ağarmasına ve ardından nakledilen yosunların ölümüne yol açabilir32.
2. Büyüme ortamının hazırlanması
- Deniz suyunu, kaynak mevcudiyetine bağlı olarak aşağıdaki yöntemlere göre filtreleyin ve sterilize edin. Kültür kaplarını her hafta yenilemek için gereken filtreyle sterilize edilmiş deniz suyu hacmini hesaplayın (bkz. Bölüm 7) ve bu filtrasyon/sterilizasyon görevini buna göre planlayın. Filtreyle sterilize edilmiş büyük partiler halinde deniz suyunu karanlık kaplarda 8-10 °C'de 6 aya kadar saklayın. Soğutma mevcut değilse, karanlık ve serin bir yerde saklayın.
- Gözenek boyutu 0,55-1 μm olan bir vakumlu filtrasyon sistemi kullanarak suyu filtreleyin. Filtreye zarar vermemek için tüm su çekilmeden önce vakum kaynağını kapatın ve filtrelenmiş suyu özel bir steril kaba dökün. Daha büyük hacimler için, akışlı bir filtreleme sistemi kullanın. Örneğin, deniz suyunu en büyükten en küçüğe gözenek boyutuna kadar düzenlenmiş üç kıvrımlı filtreden (10 μm, 5 μm ve 1 μm) geçirin.
NOT: Doğal deniz suyuna erişilemiyorsa yapay deniz suyu hazırlanabilir. Alternatif olarak, doğal deniz suyu akvaryum mağazalarından toplu olarak satın alınabilir ve genellikle filtrelenir, sterilize edilir ve pH dengelidir. Bu seçenekler için medya zenginleştirme hala gereklidir. - Filtrelenmiş deniz suyunu UV ve/veya otoklavlama yöntemleri kullanarak sterilize edin. Akış sistemlerini, üretici tarafından önerilen bir akış hızında bir akvaryum UV ışığına bağlayın. Deniz suyunu, hafif açık kapaklı veya folyo ile kaplanmış otoklava dayanıklı cam eşyalarda ve sıvı döngüsünde (121 ° C; 1-2 PSI, sıvı hacmine bağlı olarak 15-30 dakika)otoklavlayın 34.
NOT: Kültürün erken aşamaları için filtrelenmiş deniz suyunun otoklavlanması önerilir.
- Gözenek boyutu 0,55-1 μm olan bir vakumlu filtrasyon sistemi kullanarak suyu filtreleyin. Filtreye zarar vermemek için tüm su çekilmeden önce vakum kaynağını kapatın ve filtrelenmiş suyu özel bir steril kaba dökün. Daha büyük hacimler için, akışlı bir filtreleme sistemi kullanın. Örneğin, deniz suyunu en büyükten en küçüğe gözenek boyutuna kadar düzenlenmiş üç kıvrımlı filtreden (10 μm, 5 μm ve 1 μm) geçirin.
- Filtreyle sterilize edilmiş deniz suyunun besinler ve vitaminlerle zenginleştirilmesi, M. pyrifera büyümesi için kritik öneme sahiptir. Provasoli Zenginleştirilmiş Deniz Suyu ortamı (PES), alg kültürleri için tasarlanmış, yaygın olarak kullanılan bir ortamdır35. Bu medyayı alg kültür merkezlerinden satın alın. PES preparatları ve M. pyrifera büyümesi için ek vitaminler34'te tarif edilmiştir.
- Her 1 L filtrelenmiş deniz suyunu 20 mL PES ile zenginleştirin. Alternatif olarak, endüstriyel düzeyde kültür ortamı kullanın.
- Zenginleştirme çözümlerini üreticinin tavsiyelerine göre saklayın. Zenginleştirme çözeltilerinin bozulmasını önlemek için büyüme ortamına ihtiyaç duyulduğunda filtreyle sterilize edilmiş deniz suyunu zenginleştirin.
3. Saha koleksiyonu
- Yerel M. pyrifera popülasyonlarının doğal üreme döngüsünü taklit etmek için sporofil koleksiyonlarının zamanlamasını belirleyin. Sporofil toplama için uygun zamanlamayı sağlamak için yerel uzmanlara (örneğin, yosun araştırmacıları, yöneticiler, ekolojistler, vatandaş bilim adamları, dalış grupları) danışın.
- Yerel yasa ve yönetmeliklere uygun yosun dokusu toplama için gerekli izinleri alın. Bu, kültürleme sürecinin zaman alıcı bir parçası olabilir ve proje zaman çizelgelerine dahil edilmelidir.
- Bağımsız sualtı solunum cihazı (SCUBA) ile 10-15 fertil M. pyrifera bireyinden 3-5 sporofil bıçağı seçmek için, görünür sori, en az 2 m aralıklı. Mümkünse, çok az kirlenme veya bozulma olmadan temiz ve sağlam sporofiller seçin. Bu noktadan itibaren sporofil bıçaklarını ebeveyn bireye göre ayrı ayrı saklayın.
NOT: Sporofiller, tabanda, yetişkin yosunun tutucusunun üzerinde yoğun bir "etek" içinde büyür ve gazla dolu pnömatokistlerin olmaması ile tanımlanabilir1. Olgun soru dokusu genellikle çevre dokudan daha hafif kabarık ve daha koyu renklidir1. - Güneş ışığına aşırı maruz kalmaktan kaçınmak için sporofil bıçaklarını, bıçakları ıslak tutmak için sahadan minimum deniz suyu ile koyu renkli toplama torbalarında taşıyın ve kültür alanına varana kadar yaklaşık 12 °C'de soğutucularda saklayın. Numunelerin buzla doğrudan temas etmediğinden emin olun.
NOT: Sporofiller başka yerlere veya başka yerlerden gönderilebilir.- Sporofilleri deniz suyuyla durulayın. Tek bir M. pyrifera bireyinden toplanan bıçakları, hafif nüfuz etmesini ve ek kurumayı önlemek için deniz suyuna batırılmış nemli kağıt havlulara ve tekrar alüminyum folyoya sarın36. Bu depolama yöntemi genellikle "börek yöntemi" olarak bilinir.
- Bu paketleri, geri dönüştürülmüş balonlu naylon veya karton gibi koruyucu bir bariyere sahip buzlu bir soğutucuya yerleştirin. Soğutucuyu gece nakliyesi için hazırlayın. Gönderiyi almak için birinin müsait olduğundan emin olun ve paketleri buzdolabında saklayın.
4. Sporülasyon
- Mümkünse, sporofilleri 10-15 °C arasında sıcaklık kontrollü bir ortamda ve diğer kültürlerden uzakta işleyin. Aletleri ve istasyonları önceden hazırlayın ve sterilize edin. Kontaminasyonu azaltmak için yosun dokusunu tutarken koruyucu eldiven giyin.
- İsteğe bağlı olarak sporofilleri buzdolabında 12-48 saat saklayın ve sporun soru dokusundansalınmasını teşvik edin 37. Saklamak için Bölüm 3.3'te açıklanan "börek yöntemini" kullanın.
- Olgun doku seçin ve steril makas kullanarak 25cm2'lik bölümler halinde kesin. Genetik çeşitliliği teşvik etmek için 10-15 ayrı yosun ebeveyninden 1-2 temiz sori bölümü seçin.
NOT: Saklanırsa, isteğe bağlı olarak kağıt havlular üzerinde verimli sorus dokusunun varlığını gösteren kısmi sporülasyon kanıtı bulun. Soru dokusu genellikle çevre dokudan daha hafif kabarık ve daha koyu renklidir. - Temizlemek için, soru dokusunun her iki tarafını yalnızca filtreyle sterilize edilmiş deniz suyuyla nemlendirilmiş steril bir gazlı bezle bir yönde nazikçe ovalayın. Gerekirse, kirlenmeyi tamamen gidermek için soru dokusunu steril bir tıraş bıçağıyla nazikçe kazıyın. Sori bölümünü 30 saniye ila 1 dakika tatlı su banyosuna daldırın ve filtreyle sterilize edilmiş deniz suyuyla durulayın.
NOT: Çapraz kontaminasyonu azaltmak için farklı bireylerden farklı sori bölümlerini tutarken tatlı su banyosunu yenileyin ve kullanılan malzemeleri sterilize edin. - Her bir sori bölümünü, steril bir 50 mL santrifüj tüpü içinde 10-15 ° C'ye temperlenmiş filtre ile sterilize edilmiş deniz suyuna daldırın. Tüpleri 4-12 °C'de karanlıkta en fazla 4 saat spor yapmak için yerleştirin. Buzdolabı yoksa, düşük ışıklı, serin bir yerde saklayın.
NOT: Alternatif olarak, sori bölümleri tek, steril bir kapta sporlandırılabilir. - Bileşik bir mikroskop ve hemositometre kullanarak, her 30 dakikada bir 4 saate kadar 3-4 numunenin spor yoğunluğunu gözlemleyin. Pipet uçlarını numuneler arasında değiştirin. Yoğunluklar en az 10.000 spor mL-1 ise (bkz. Bölüm 5.1.1), bir sonraki adıma geçin. Bir sori bölümü 4 saat sonra spor üretmezse, numuneyi atın. Sporlar serbest bırakıldıktan birkaç saat sonra yerleşebilir, ancak dairesel bir hareketle yüzerken gözlemlenebilir.
- Her bir sori bölümünü steril cımbızla tüplerden çıkarın. Elde edilen spor çözeltilerini tek, sterilize edilmiş bir kapta birleştirin ve nihai birleşik yoğunluğu ölçün.
5. Aşılama
- Aşılama için gereken son spor çözeltisi hacmini hesaplayın. Kültür kaplarında nihai konsantrasyonun yaklaşık 500-1.000 spor mL-1 olduğundan emin olun.
- Hemositometrenin merkez ızgarasının sayımlarından kombine spor örneğinin konsantrasyonunu hesaplamak için, sayımı 10-4 mL'ye bölün (hemositometrede görüntülenen çözelti hacmini temsil eder).
- Her bir kaba eklenecek spor çözeltisinin hacmini belirlemek için, substratları kültür kaplarına daldırmak için gereken büyüme ortamı miktarını belirleyin.
- Her bir kaptaki toplam spor sayısını bulmak için, bu deniz suyu hacmini istenen konsantrasyonla çarpın.
- Eklenecek spor çözeltisinin toplam hacmini belirlemek için, toplam spor miktarını, spor çözeltisindeki mL başına spor konsantrasyonuna bölün.
- Yosun gelişimini izlemek için steril cam slaytları kültür kaplarına yerleştirin. Yeterli izleme için kültür kaplarına rastgele dağıtılmış en az 30 slayt ekleyin ( Bölüm 7'deki ayrıntılara bakın).
- Hesaplanan spor çözeltisi hacmini, büyüme ortamına batırılmış substratlar içeren steril bir pipet ucu kullanarak kültür kabına aşılayın. Kabı kapatın ve sporları dağıtmak için hafifçe karıştırın. Kabı kapatın ve kültür sistemine yerleştirin.
6. Yetiştirme koşulları
- Dağıtım sahasındaki sıcaklığa bağlı olarak sıcaklığı 10-15 °C arasında ayarlayın.
- 1 gün sonra, filtrelenmiş bir hava kaynağı ile hafif havalandırma sağlayın.
- Su bitkileri için tam spektrumlu LED ışıkları 12 saat ışığa ayarlayın: 12 saat karanlık döngü, ışık yoğunlukları 0-180 μmol foton m-2 s-1 arasında değişir:
- Işık yoğunluğunu 0-1 günden 5-10 μmol foton m-2 s-1'e ayarlayın ve 1 haftanın sonuna kadar 20 - 30 μmol foton m-2 s-1'e yükseltin.
- Bu noktadan itibaren, 6 hafta sonunda 180 μmol foton m-2 s-1 ışınımına ulaşana kadar ışınımı her 3-4 günde bir 10-20 μmol foton m-2 s-1 artırın.
- 180 μmol foton m-2 s-1'de 8 haftanın sonuna kadar veya sporofitlerin uzunluğu yaklaşık 1-2 cm'ye ulaştığında kültürleri desteklemeye devam edin.
7. İzleme
- Gelişimi değerlendirmek için ilk iki hafta boyunca her gün/gün aşırı en az iki rastgele cam slaytı izleyin.
- İzlemek için, slaytı sterilize edilmiş cımbızla tutun ve cam slaytı daldırmak için yeterli sterilize edilmiş deniz suyu içeren temiz bir Petri kabına yerleştirin. Çapraz kontaminasyonu önlemek için cam slaytları çıkarıldıktan sonra kültürlere geri koymayın.
- Erken evre yosunları gözlemlemek için 40-400x büyütmede bileşik veya ters mikroskop kullanın. Gelişimi aşağıdaki zaman çizelgesiyle takip edin (gelişimsel yaşam öyküsü aşamalarının örnekleri için Şekil 3'e bakın).
NOT: Yerleşik sporlar 0-1 d'de gözlenir. Sporlar, bir mikrop tüpünün oluşumuyla gösterildiği gibi birkaç saat içinde filizlenebilir. Çimlenme tipik olarak 1-2 günde gözlenir. Erken gametofitler tipik olarak 1-4 d'de gözlenir. Hücrelerin erkek ve dişi gametler oluşturmak için bölünme ve farklılaşma geçirdiği süreç olan gametogenez, tipik olarak ilk iki hafta içinde gözlenir. Dişi hücreler erkeklerden 5-7 kat daha büyüktür. Erkek gametofitler ince, ipliksi dallar büyürken, dişiler daha yuvarlak veya oval şekillidir. Dişiler tipik olarak 2-3 hafta içinde yumurta veya yumurta üretirler. Erkeklerden salınan spermler dişilere yüzer ve yumurtaları dölleyerek diploid zigotların oluşmasına neden olur. Doğru aşılama yoğunluğuna sahip olmak, yakınlıkta başarılı üreme sağlayacaktır38,39. Döllenmiş yumurtalar embriyonik sporofitlere dönüşür. Sporofitler tipik olarak 2-4 hafta içinde gözlenir. Zigot hızlı hücre bölünmesine uğrar ve yaklaşık 6-8 hafta içinde 1-2 cm'lik bıçakların büyümesine neden olur.
- İki hafta sonra, sporofitler 1-2 cm boyuta ulaşana kadar sağlıklı büyüme ve kontaminasyon için haftada 1-2 kez en az iki rastgele cam slaytı izleyin.
NOT: Sağlıklı büyüme, altın-kahverengi (yeşil veya şeffafın aksine) renklenme ile karakterize edilir. Hayatta kalma, çimlenme oranı, vejetatif gelişim, üreme olgunluğu ve doğurganlık ve cinsiyet oranı40 dahil olmak üzere ters mikroskopla cam slaytlarda gözlemlenebilen birkaç nicel metrik vardır. - Bakteriler, mantarlar, siliatlar ve diatomlar tarafından kontaminasyonu mikroskopla değerlendirin. İzole kontaminasyonu giderin. Germanyum dioksit (GeO2) (bkz. Bölüm 8.3) işlemi ile diatom kontaminasyonunun erken belirtilerini kontrol edin.
8. Bakım
- Işık koşullarını Bölüm 6.3'e göre ayarlayın.
- Her hafta, M. pyrifera büyümesi için gerekli besinleri ve mineralleri yenilemek için büyüme ortamını değiştirin.
- Taze büyüme ortamını uygun sıcaklığa soğutun. Bu işlem sırasında sıcaklığın 15 °C'yi geçmediğinden emin olun.
- Tohumlanmış substratların bozulmasını önlemek için ortamı kültür kaplarından sifonlayın. Kap neredeyse boşalana kadar ortamın boşalmasına izin verin. Kurumayı en aza indirmek için ortamı hemen yenileyin. Büyüme kaplarını yeniden doldururken, alt tabakaları minimum düzeyde rahatsız etmek için ortamın kültür kabının yanından aşağı akması için hafifçe eğin.
- Işık ışınımındaki farklılıkları hesaba katmak için haftalık ortam değişiklikleri sırasında kap veya küvet konumlarını rastgele yeniden düzenleyin.
NOT: Macrocystis kültürleri için aktiviteleri ve beklentileri izlemek üzere bir takvim için Ek Dosya 1'e bakın. Işık ve havalandırma ayarlarının zamanlamasını ve haftalık ortam değişikliklerini gösterir.
- İsteğe bağlı olarak, germanyum dioksit (GeO2) işlemiyle diatom kontaminasyonunu kontrol edin. Yaygın diatom kontaminasyonunu azaltmak için tohumlanmış substratlara eklenen her 1 L deniz suyuna 0,3-0,5 mL 250 mg/mL GeO2 ekleyin.
NOT: GeO2 alg gamet üretimini inhibe edebilir. Çimlenmeden sonraki kısa pencerede ve yumurta ve sperm üretiminin zirvelerinden önce (1-7 gün) ve / veya yumurta döllenmesi ve sporofit gözlemlerinden sonra (>21 gün) bir GeO2 tedavisi uygulayın, ardından kimyasalı çıkarmak için 48 saat sonra bir ortam değişikliği yapın. Bu zaman çizelgeleri kültür koşulları göz önüne alındığında değişebilir, bu nedenle yaşam evresi gelişimini mikroskopi ile izlemek, GeO2 uygulamasının zamanlamasını değerlendirmenin en iyi yoludur. Kültür kaplarında diatom kontaminasyonu devam ederse ve erken aşama yosunlarında aşırı büyüme gözlenirse, substratları yeniden tohumlamayı düşünün.
9. Dev yosun vejetatif gametofit kültürü
- Doğal resiften mevsimsel sporofil toplanmasına olan bağımlılığı azaltmak için gametofit kültürlerini yıl boyunca vejetatif koşullarda çoğaltın.
- Gametofit kültürlerini, 12 ışık: 12 karanlık döngüde 5-20 μmol foton m-2 s-1 yoğunluğunda kırmızı ışıkta 4-12 °C'de büyüme ortamı ile dolu şişelerde kaynak popülasyonuna göre saklayın.
- Sürekli havalandırma sağlayın ve her 2-6 ayda bir ortam değiştirin.
- 'Yeşil çakıl' tohumlamada kullanılmak üzere aseksüel olarak büyüyen gametofitlerin biyokütlesini toplamak, gametofitleri askıya almak için havalandırmayı artırmak, ortam değişikliklerinin sıklığını haftalık olarak artırmak ve gametofitleri iki haftada bir parçalamak.
- Gametofit biyokütlesini çalkalayarak veya karıştırarak kültür şişesinde askıya alın ve gerekirse bağlı gametofitleri yerinden çıkarmak için kültür şişesinin kenarlarını steril bir aletle kazıyın.
- Askıdaki gametofitleri steril bir blender veya kahve değirmeni içine dökün ve gametofit solüsyonunu, biyokütle konsantrasyonuna bağlı olarak, topaklanmış kütleler görünmeyene kadar yaklaşık 5-15 kez 1-2 saniye boyunca vurun.
- 'Yeşil çakıl' tohumlaması için üremeyi indüklemek için, yukarıda açıklandığı gibi gametofitleri parçalayın. Ardından, substratı aşılayın ve tam spektrumlu LED ışığını 5-20'den 45-60 μmol foton m-2 s-1'e (foto-iklimlendirme için günlük +10 μmol foton m-2 s-1 ) artırın, ardından 180 μmol foton m-2 s-1 ışınımına ulaşana kadar her 3-4 günde bir 10-20 μmol foton m-2 s-1 artırın.
10. Dağıtım
- 6-8 hafta laboratuvar kültüründen sonra, juvenil sporofitlerin 1-2 cm uzunluğunda ve dağıtıma hazır olduğundan emin olun (Şekil 4). Dağıtımdan 24 saat önce kültür kapsayıcılarındaki büyüme ortamını yenileyin.
- Yerel yasa ve yönetmeliklere uygun çakıl dağıtımı için gerekli izinleri alın. Bu, kültürleme sürecinin zaman alıcı bir parçası olabilir ve proje zaman çizelgelerine dahil edilmelidir.
- Yosunu nemli tutmak için deniz suyuna batırılmış havlularla kaplı tepsilerde 'yeşil çakıl' taşıyın. Tepsileri, buzla doğrudan temas etmediklerinden emin olarak buzlu yalıtımlı soğutuculara yerleştirin. Nakliye sırasında alt tabakaların yuvarlanmasını ve sporofitin ayrılmasını önlemek için 'yeşil çakılın' sıkıca paketlendiğinden emin olun.
NOT: Alan mevcudiyetine bağlı olarak, elleçlemeyi azaltmak için alt tabakalar kültür kaplarında veya küvetlerinde de taşınabilir. - 'Yeşil çakılları' gölgeli bir soğutucuda 6 saate kadar taşıyın. Dağıtım, en doğrudan güneş ışığından kaçınmak için zamanlanmalıdır. Bir tekneden konuşlandırıyorsanız, konuşlandırma işlemi sırasında doğrudan güneşten kaçınmak için gölgeli bir yapı kullanın.
- Yeni alanlarda ve küçük ölçeklerde deneme yaparken yüzeyden aşağıdaki resife veya SCUBA aracılığıyla ' yeşil çakıl' dikkatlice dağıtın.
Sonuçlar
'Yeşil çakıl' restorasyon tekniği hala pilot aşamadadır, diğer türler28 için sınırlı bitki sağkalım verileri ve Macrocystis pyrifera için henüz yayınlanmış veri yoktur. Bu protokolde özetlenen tarla toplama ve laboratuvar bakımını kullanarak, varsayımsal 'yeşil çakıl' dağıtımından önce iki farklı donör yosun popülasyonu için sahaya özgü yetiştirme koşullarının önemini test ettik (Şekil 5). Üreme yosunu dokusu Kaliforniya'da (ABD) daha soğuk K1 (Santa Cruz 36.60167 ° K, 121.88508 ° B) ve daha sıcak K4 (San Diego, 32.85036 ° K, -117.27600 ° B) popülasyonlarından toplandı ve iki sıcaklıkta yetiştirildi: (1) 12 ° C (deniz yosunu yetiştiriciliği için standart kültür sıcaklığı ve K1 için ortalama kış SST'si) ve (2) 20 ° C (K4 için ortalama yaz SST'si, ve K1 için 4 °C'lik bir sıcak hava dalgası). Yosun yaşam evresi gelişimini izlemek için kullanılan tüm cam slaytlar standart bir ızgara ile işaretlendi ve ters çevrilmiş bir mikroskop ve kamera kullanılarak zaman içinde sabit alanların gözlemlenmesini sağlamak için referans olarak bu ızgara kullanılarak yüksek çözünürlüklü görüntüler yakalandı (N = numune başına 5 görüntü, 2.479 mm x 1.859 mm).
Sporülasyondan 24 gün sonra, mikroskop görüntülerinden gametofitler sayıldı (N = 60 örnekten 300 görüntü). Gametofit sayımlarındaki farklılıkları test etmek için, glmmTMB41 paketindeki glmmTMB() fonksiyonu kullanılarak Poisson dağılımı ile genelleştirilmiş doğrusal karma etki modelleri kullanıldı ve R'deki paket emmeans42'den emtrends() ile ikili karşılaştırmalar yapıldı. Sonuçlarımız, gametofitlerin termal değişkenliğe tepkisinin K1 ve K4 popülasyonları arasında farklı olduğunu göstermektedir (t = 2.7, p = 0.007), burada sıcaklığın daha sıcak K4 popülasyonu için bir etkisi yoktur (tahmin = -0.01, standart hata [SE] = 0.01, güven aralığı [CI] = [-0.03, 0.01]), ancak daha soğuk K1 popülasyonu için bir etkisi olmuştur (tahmin = -0.06, SE = 0.02, CI = [-0.10, -0.03]) (Şekil 6A), termal tolerans özelliklerinde olası bir adaptif sapma olduğunu düşündürür. Kelp gametofitleri genellikle43. bir direnç aşaması olarak tasvir edilir, yani strese dayanıklı ve çevresel değişkenliğe nispeten duyarsız olan çok amaçlı bir fenotip üretirler. Bununla birlikte, bu sonuçlar, termal değişkenliğin bu erken aşamada önemli bir baskı oluşturduğunu göstermektedir.
Sporülasyondan 32 gün sonra, her 2.5 cm x 7.5 cm cam slaydın tamamında yaklaşık 1 mm'den daha uzun olan görünür sporofitler sayıldı (N = 72 toplam numune). Görünür sporofit sayımlarındaki farklılıkları test etmek için, glmmTMB paketindeki glmmTMB() fonksiyonu kullanılarak Poisson dağılımı ile genelleştirilmiş doğrusal karışık etki modelleri kullanıldı ve R'deki paket emmeans'den emtrends() ile ikili karşılaştırmalar yapıldı . Sonuçlarımız, sporofitlerin termal değişkenliğe tepkisinin K1 ve K4 farklılaşmış popülasyonları arasında benzer olduğunu göstermektedir (z = 0.92, p = 0.36), burada sıcaklığın daha sıcak K4 popülasyonu için bir etkisi olmuştur (tahmin = -0.66, SE = 0.04, CI = [-0.74, - 0.57]) ve daha soğuk K1 popülasyonu (tahmin = -0.85, SE = 0.13, CI = [-1.10, -0.60]) (Şekil 6B). 20 ° C'de yetiştirilen örnekler, 12 ° C'de yetiştirilenlere kıyasla (ortalama ± SE = 82.4 ± 9.8) daha az görünür sporofit (ortalama ± SE = 0.4 ± 0.2) üretti. Bu sonuç, sporofit üretiminin gametofit aşamasından daha sıcaklığa duyarlı olduğunu ve protokolde belirtildiği gibi sporofit gelişimini sağlamak için sahaya özgü kültür sıcaklıklarının 15 °C'yi geçmemesi gerektiğini göstermektedir.
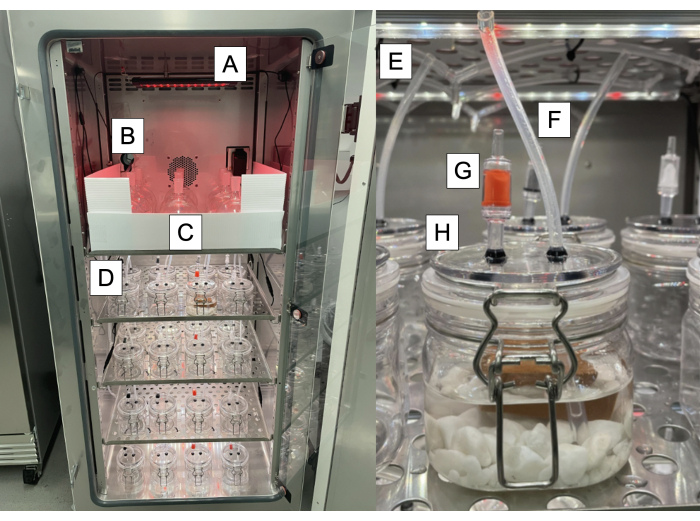
Şekil 1: 'Yeşil çakıl' inkübatör sisteminin şeması. (A) Vejetatif olarak şişirici gametofit kültürleri için kırmızı ışık kaynağı. (B) Harici bir prize giden elektrik kabloları ve borular için erişim portu. (C) Kırmızı ışık bölümünden tam spektrumlu ışığı engelleyen yapı. (D) Bir 'yeşil çakıl' kültür bölümü. (E) tam spektrumlu ışık kaynakları. (F) Harici bir filtrelenmiş hava kaynağına bağlı boru hatları. (G) Havadaki kontaminasyonu azaltmak için çek valfler. (H) Kontaminasyonu en aza indiren bireysel kültür kapları. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
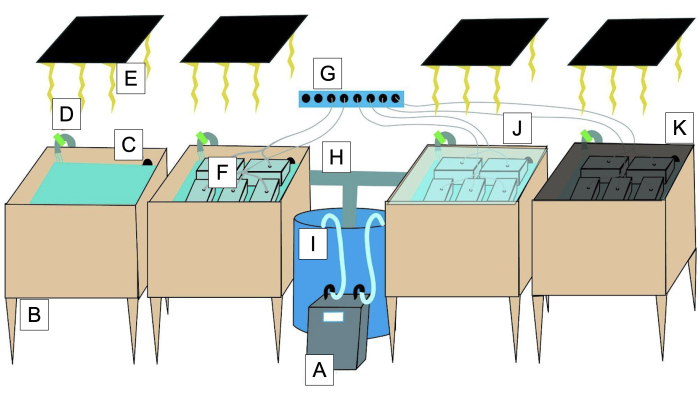
Şekil 2: 'Yeşil çakıl' su banyosu sisteminin şeması. (A) Dalgıç pompalı chiller ( I'de). (B) Su banyosu için 20 galonluk küvet. (C) Su banyosunu yeniden sirküle etmek için boşaltın. (D) Su banyosunun devridaim vanası. (E) Işık kaynağı. (F) Şeffaf kapaklı ve havalandırma açıklığına sahip 2,5 L 'yeşil çakıl' kabı. (G) Havalandırma kaynağı. (H) Dalgıç pompalar kullanarak suyu yeniden sirküle eden borular. (I) Dalgıç pompalı küvetlerden/küvetlere soğutucudan/soğutucuya su banyosu alıcısı. (J) Su banyosu buharlaşmasını en aza indirmek için akrilik kapak. (K) Işık yoğunluğunu ayarlamak için ağ gölgesi. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
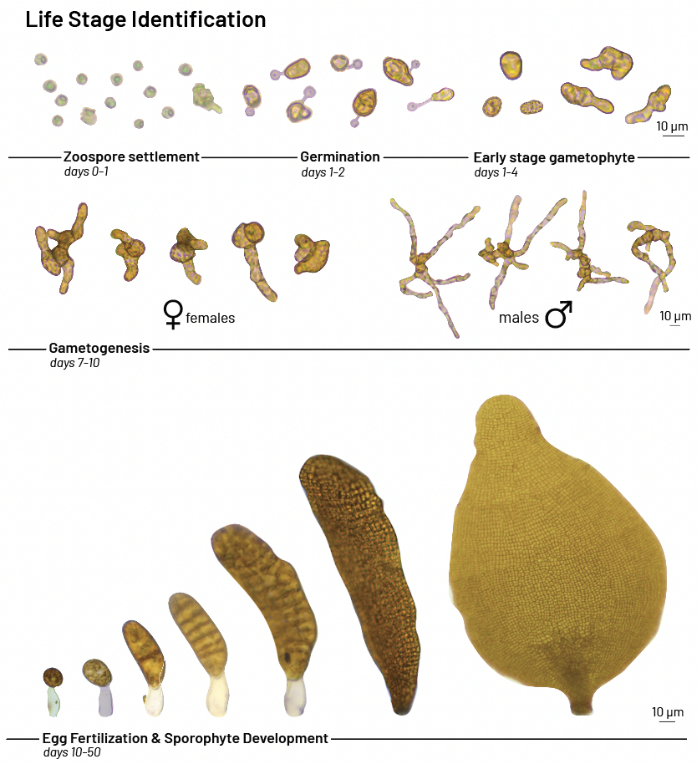
Şekil 3: Macrocystis pyrifera gelişimi. Macrocystis pyrifera'nın gelişimsel yaşam öyküsü aşamaları laboratuvar büyüme denemelerinden. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
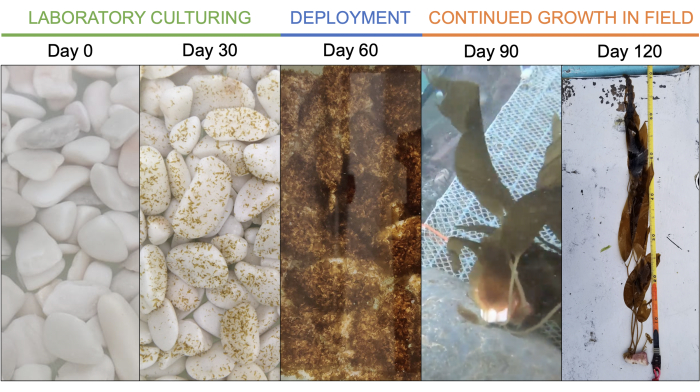
Şekil 4: Macrocystis pyrifera ile tohumlanmış 'yeşil çakıl'. Macrocystis pyrifera ile tohumlanan yeşil çakıl, sporofitler 1-2 cm'ye ulaşana kadar laboratuvarda kültürlenir, daha sonra 'Yeşil çakıl' dağıtılır ve tarlada büyümeye devam eder. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
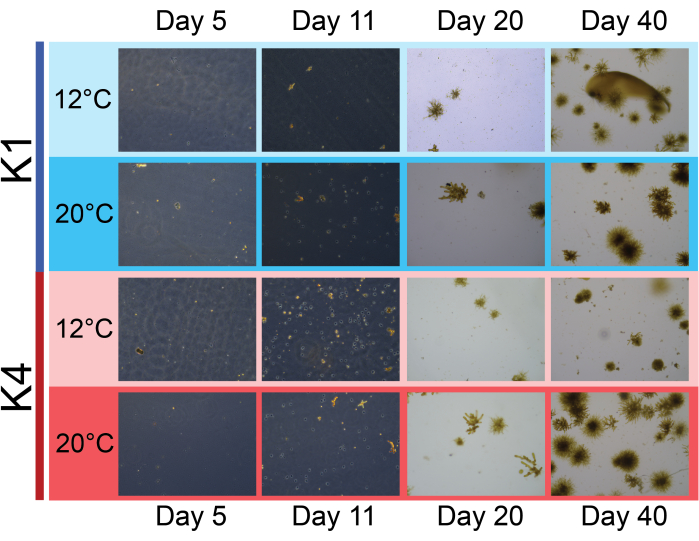
Şekil 5: Deneysel zaman serileri. Kaliforniya'da (ABD) toplanan ve iki farklı sıcaklıkta kültürlenen iki popülasyondan kaynaklanan Macrocystis pyrifera gametofitlerinin ve sporofitlerinin deneysel büyümesini ve gelişimini takip eden bir zaman serisinden örnek görüntüler. K1 = Santa Cruz, K4 = San Diego. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
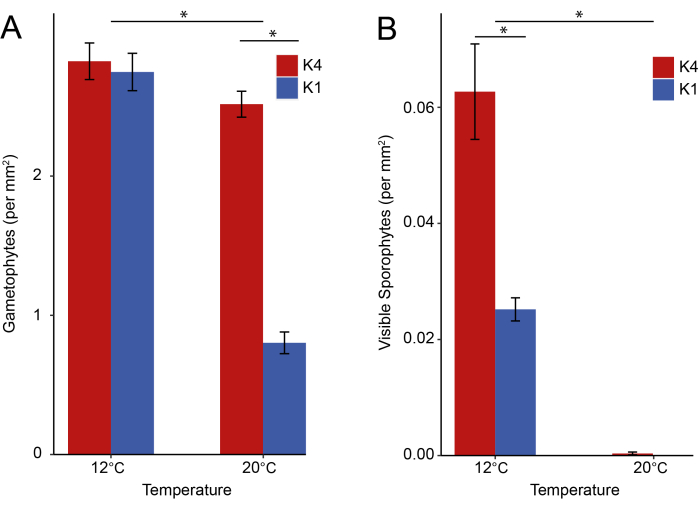
Şekil 6: Temsili Sonuçlar. Macrocystis pyrifera yaşam evreleri, 12 ve 20 ° C'lik sabit termal koşullarda kültürlenen K1 Santa Cruz San Diego K4 Santa Cruz kökenli popülasyonlar için gözlemlenmiştir. Hata çubukları, ortalama ± 1 SE. Yıldız işareti (*) istatistiksel olarak anlamlı farklılıkları gösterir (p < 0.05). (A) 24. günde gametofitler (N = 60 örnekten toplam 300 görüntü). (B) 32. günde görünür sporofitler (N = 72 numune, standartlaştırılmış 2,5 cm x 7,5 cm'lik bir alan içinde). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Ek Dosya 1. Bu Dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Antropojenik iklim değişikliği, dünya okyanuslarının sağlığı için büyüyen bir tehdittir 44,45,46,47,48, büyük rahatsızlıklara ve biyolojik çeşitlilik kaybına neden olur 49,50,51,52. Birleşmiş Milletler, bozulmuş ekosistemlerin restorasyonunu hızlandırmak için 2021'den 2030'a kadar olan dönemi, okyanus sağlığındaki bozulmayı tersine çevirmeyi amaçlayan "BM Sürdürülebilir Kalkınma için Okyanus Bilimi On Yılı" ile aynı zamana denk gelen "BM Ekosistem Restorasyonu On Yılı" ilan etti53. Bu küresel eylem çağrısı doğrultusunda, Kelp Forest Alliance, 2040 yılına kadar 1 milyon hektarı restore etmek ve 3 milyon hektar yosun ormanını korumak için Kelp Ormanı Mücadelesini başlattı54. Deniz restorasyonu küçümsenmiştir55 ve yosun ekosistemleri mercan resifleri, mangrov ormanları ve deniz çayırları56 gibi habitatlardan çok daha az ilgi görmektedir. Bozulmuş ekosistemlerin restorasyonunun deniz ekosistemlerinin yeniden inşasında etkili olduğu gösterilmiştir, ancak hektar başına ortalama 80.000 - 1.600.000 ABD Doları arasında bir maliyete mal olabilir ve medyan toplam maliyetlerin iki ila dört kat daha yüksek olması muhtemeldir57. Mevcut ve öngörülen kayıplar, acil koruma müdahaleleri olarak ölçeklenebilir, uygulanabilir ve uygun maliyetli yosun restorasyon metodolojilerinin geliştirilmesini gerektirir.
Mevcut yosun restorasyon çabaları, yetişkin yosunların nakli, zoosporların ve/veya gametofitlerin doğrudan tohumlanması, otlatıcı kontrolü ve yapay resiflerin kurulması dahil olmak üzere yosun kaybının bölgeye özgü itici güçlerini ele almak için metodolojilerin bir kombinasyonunu kullanır11. Ancak, bu yöntemler önemli kaynaklar gerektirir ve sınırlı ölçeklenebilirliğe sahiptir. Yetişkin yosunların tipik nakli, yapay malzemelerin veya yapıların dalgıçlar tarafından benthos üzerine zahmetli bir şekilde yerleştirilmesini gerektirir. Rakipleri ve otlatıcıları kontrol etmek gibi kıyı kayalık resiflerini yeniden kurmak için aşağıdan yukarıya müdahaleler, bu biyotik stres faktörlerinin manuel olarak su altında çıkarılmasına veya dışlanmasına dayandıkları için işçilik maliyetleri ile de kısıtlanmaktadır11. 'Yeşil çakıl' tekniği, yüzeyden basit konuşlandırma ile bu sınırlamaların üstesinden gelir, su altı kurulumu veya teknik bilgi gerektirmez ve nispeten düşük maliyetlerle ölçeklenebilirlik gerektirir28. Bu yenilikçi yaklaşım, umut verici bir restorasyon aracı sağlar ve tam potansiyelini ortaya çıkarmak için çeşitli konumlarda ve ortamlarda kapsamlı denemeler yapılmasını teşvik eder32.
Norveç'teki korunaklı fiyortlarda şeker yosunu Saccharina latissima26 kullanılarak 'yeşil çakıl' ile başarılı restorasyon çabaları belgelenmiş olsa da, bu teknik hala Doğu Pasifik'teki Macrocystis pyrifera için pilot aşamadadır. M. pyrifera dış bitkilerinin menzili içinde beklenen hayatta kalma oranını ele almak için ek denemelere ihtiyaç vardır. M. pyrifera büyümesine özgü dalgaya maruz kalan koşullarda, daha küçük çakıllar harekete ve aşınmaya daha yatkın olabilir ve bu da hasarlı dış bitkilere yol açabilir. Ayrıca, M. pyrifera'nın gazla doldurulmuş pnömatokistleri tarafından sağlanan pozitif kaldırma kuvveti, 'yeşil çakıl' bitkilerinin restorasyon alanından etkili bir şekilde taşınmasına yol açabilir ve bu nedenle, çakıl boyutu ve ağırlığı bu tür için araştırılması gereken önemli faktörlerdir. Yakın tarihli bir pilot çalışmada (Mayıs 2022; Ensenada, Baja California, Meksika), M. pyrifera ile tarlada ön başarı gözlenmiştir, bu da hapteranın çevredeki alt tabakaya bağlanması ve tarlada iki ay sonra 1.2 m uzunluğa ulaşan yavruların büyümesi ile gösterilmiştir (Şekil 4). Bu, Doğu Pasifik'teki M. pyrifera için 'yeşil çakıl' kullanımında henüz keşfedilmemiş açık bir fırsat olduğunu göstermektedir. Bu video, M. pyrifera ile 'yeşil çakıl' tekniğini sergiliyor ve farklı saha ortamlarındaki başarıları ve sınırlamaları ele alan çalışmaları desteklemek için restorasyonun kültür aşamasında mevcut uygulamaları basitleştiren ve merkezileştiren değerli bir kaynaktır.
'Yeşil çakıl' tekniği ile, yetişkin bitkilerle daha yaygın transplantasyon yaklaşımlarına kıyasla başarı olasılığını artırabilecek bir ölçekte daha küçük, bireysel çakıl birimleri ekilebilir. Bununla birlikte, bu tekniğin ölçeklenebilir yönü, geniş alanların tekneyle restorasyonunu kolaylaştırabilen yüzeyden basit bir şekilde konuşlandırılmasıdır. Küçük çakılların konuşlandırılmasının uygun olmadığı saha ayarları için, bu protokol, daha büyük çakıl ve hatta küçük kayalar, doğal veya konuşlandırılmış su altı ankrajlarına bağlanabilen ipler veya daha açık koşullarda deniz epoksi kullanılarak deniz tabanına cıvatalanabilen veya yapıştırılabilen fayanslar dahil olmak üzere çok çeşitli yüzeylere M . pyrifera'yı nakletmek için uyarlanabilir. Bu dağıtım uyarlamaları, M. pyrifera kültürü için gereken tesisleri değiştirmeyecek, ancak daha sonra dağıtım maliyetini artıracaktır.
Antropojenik rahatsızlıklar ve iklim değişikliği şu anda doğal popülasyonların uyum sağlama kapasitesinin üstesinden geliyor. Bu, ekosistemleri tarihi durumlarına geri döndüren geleneksel koruma çabaları için önemli zorluklar ortaya çıkarmaktadır 58,59,60,61,62,63. Bu nedenle, koruma çerçeveleri, dayanıklılık ve uyum sağlama kapasitesini göz önünde bulundurarak öngörülü yönetimi içerecek şekilde genişlemiştir64. Orman ekosistemlerindeki ağaç türleri için iklim değişikliğini ele almak için öngörülü yönetimuygulanmaktadır 65 ve dış bitkilerin evrimsel potansiyelini artırmak için daha fazla restorasyon çabası için önerilmiştir66,67. Bu stratejilerin karasal ortamlarda manipüle edilmesi doğası gereği daha kolay olsa da, birkaç çalışma deniz ortamlarındaki uygulamalarını keşfetmeye başlıyor 62,68,69,70. Örneğin, mercan resifleri, benzeri görülmemiş düşüşlere neden olan çok sayıda antropojenik stres faktörü tarafından tehdit edilmektedir71,72. Bu önemli temel türlerin kayıplarına yanıt olarak, kalan mercan resiflerini ve bunlarla ilişkili işlevleri korumak için aktif restorasyon ve destekli adaptasyon teknikleri giderek daha fazla savunulmaktadır 62,73,74. Bir teknik, ısı stresine karşı toleransı artırmak için bireyleri mevcut tür dağılım aralıkları içinde yer değiştirmeyiiçerir 75. Kanopi oluşturan yosunların restorasyonu ile ilgili olarak, 'yeşil çakıl', dirençli genotiplerin hassas alanlara translokasyonu, hibridizasyon gibi genetik olmayan manipülasyon veya bireylerin çevresel strese alışması gibi yardımlı adaptasyon tekniklerini keşfetmek için özelleştirilebilir bir çerçeveye sahiptir62 restorasyon programları için daha dirençli suşlar elde etmeyi amaçlayan sonuçlarla76,77.
Restorasyon çabalarını geliştirmek için yerel destekten yararlanmak, yosun ekosisteminin koruma başarısını sürdürmek için çok önemlidir. Yerel paydaşların katılımı, restorasyon ihtiyaçları 6,50 için yerel katılımı artırabilir ve daha sonra yosun ekosisteminin korunmasının finansmanının ve uzun ömürlülüğünün artmasına neden olabilecek kıyı yönetimini teşvik edebilir. Diğer tüm yosun restorasyon metodolojilerinde olduğu gibi, çeşitli ekolojik, sosyo-ekonomik ve koruma hedeflerini entegre eden yapılandırılmış karar verme çerçeveleri, yosun ekosistemleri ve destekledikleri topluluklar için en iyi sonuçların elde edilmesine yardımcı olacaktır11.
Açıklamalar
Yazarların açıklayacak hiçbir şeyi yok.
Teşekkürler
Bu çalışma, JBL ve MESB'ye Kaliforniya Deniz Hibesi Yosun Kurtarma Araştırma Programı R/HCE-17, PDD'ye Ulusal Bilim Vakfı Araştırma Stajyeri ödülü DGE-1735040, The Nature Conservancy, Schmidt Marine Technology Partners, Sustainable Ocean Alliance, Tinker Foundation tarafından AP-L'ye ve The Climate Science Alliance Baja Working Group tarafından RBL ve JL'ye finanse edildi. Kaliforniya Üniversitesi, Irvine'den Steven Allison, Cascade Sorte, Samantha Cunningham, Sam Weber ve Caitlin Yee'ye teşekkür ederiz; Santa Cruz'daki Kaliforniya Üniversitesi'nden Mark Carr, Peter Raimondi, Sarah Eminhizer, Anne Kapuscinski; Walter Heady ve Norah Eddy, The Nature Conservancy'de; Milwaukee'deki Wisconsin Üniversitesi'nden Filipe Alberto ve Gabriel Montecinos; Jose Antonio Zertuche-González, Alejandra Ferreira-Arrieta ve Liliana Ferreira-Arrieta, Universidad Autónoma de Baja California'da; MexCal'den Luis Malpica-Cruz, Alicia Abadía-Cardoso ve Daniel Díaz-Guzmán; MexCalitos dalgıçları Alejandra Reyes, Monica Peralta, Teresa Tavera, Julia Navarrete, Ainoa Vilalta, Jeremie Bauer ve Alfonso Ferreira; ve teknik tavsiye için Nancy Caruso. Instituto de Investigaciones Oceanológicas, Universidad Autónoma de Baja California'ya su banyosu sistemini geliştirmek için kullanılan tesisleri sağladıkları için teşekkür ederiz. Sualtı ve drone video içeriği için Ira Spitzer'e teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.22 ve mikro; m filtreler | Milipore SCGPS05RE | Doğal deniz suyu sterilizasyonu | |
| 1 L cam şişeler | Amazon | B07J6JP4D1 | Doğal deniz suyu sterilizasyonu |
| 1 & mikro; m filtreleri (su + hava) | Amazon | B01M1VWUWL | Doğal deniz suyu sterilizasyonu |
| 1'' PVC 90 Derece Dirsek | Ev Deposu | 203812125 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| 10 & m filtreler | Amazon | B00D04BG56 | Doğal deniz suyu sterilizasyonu |
| 20 & mikro; m filtreler | Amazon | B082WS9NPH | Doğal deniz suyu |
| sterilizasyonu 3x5mm boru | Amazon | B0852HXPN6 | Seçenek 1 Küçük ölçekli - Kuluçka makinesi |
| 4x4 '' Steril Gazlı Bez | Amazon | B07NDK8XM3 Sporülasyon | |
| 4x6mm boru | Amazon | B08BCRV1FY | Seçenek 1 Küçük ölçekli - Kuluçka |
| makinesi 5 ve mikro; m filtreler | Amazon | B082WS9NPH | Doğal deniz suyu sterilizasyonu |
| 50 mL şahin borusu | Amazon | B01M04HGPJ | Sporülasyon |
| 8x10mm boru | Amazon | B01MSM3LLZ | Seçenek 1 Küçük ölçekli - Kuluçka |
| Makinesi Hava filtreleri | Thermo Fisher | MTGR85010 | Seçenek 1 Küçük ölçekli - Kuluçka |
| Makinesi Alkol lambası | Amazon | B07XWD9WWC | Sporülasyon |
| Amonyum demir (II) sülfat hekzahidrat ACS reaktifi,% 99 | Sigma | 215406-100G | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Akvaryum Sınıfı Çakıl | Amazon | B07XRCKFBJ | Seçenek 1 Küçük ölçekli - İnkübatör |
| Biotin tozu, BioReagent, hücre kültürü için uygun, böcek hücre kültürü için uygun, bitki hücre kültürü için uygun,% 99 | Sigma | B4639-100MG | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Borik Asit, %99,8, 10043-35-3, MFCD00011337, BH3O3, 61.83, 500g | Thermo Fisher | 5090113707 | Kimyasalları ile Provasoli' oluşturur. Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Kalsiyum D-Pantotenat,ge98.0% (T),C9H17NO5,137-08-6,25g,D-Pantotenik Asit Kalsiyum Tuzu, P0012-25G 1/EA | Thermo Fisher | P001225G | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Çek valfler | Amazon | B08HRZR4MM | Seçenek 1 Küçük ölçekli - Kuluçka makinesi |
| Şeffaf boru 3/8 '' - 10 ft | Amazon | B07MTYMW13 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| KOBALT (II) SÜLFAT HEPTAH-100G, UYARI - California - Kanser Tehlikesi, 93-2749-100G 1 / EA | Thermo Fisher | 5090114752 | Provasoli'yi oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Kameralı bileşik mikroskop | OMAX | M83EZ-C50S | İzleme |
| Kültürü şişesi | Thermo Fisher | 07-250-080 | Seçenek 1 Küçük ölçekli - Kuluçka |
| Makinesi Kültür ışığı | Amazon | B07RRRPJ63 | Seçenek 1 Küçük ölçekli - Kuluçka |
| makinesi Kültür tıpaları | Amazon | B07DX6J7QD | Seçenek 1 Küçük ölçekli - Kuluçka |
| makinesi Drenaj konektörü | Amazon | B00GUZ6CV0 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| EDTA CAS Numarası: 6381-92-6 Moleküler Formül: C10H14N2O8Na2- 2H2O Molekül Ağırlığı: 372.2 | Thermo Fisher | 50213299 | Provasoli' oluşturmak için kimyasallar s Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Eisco Güvenlik Paketi Dereceli Silindir Setleri Sınıf A, ASTM, Kapasite: 10 mL, 25 mL, 50 mL, Mezuniyetler: 0,2 mL, 0,5 mL, 1,0 mL, Borosilikat 3,3 Cam, Otoklavlanabilir: Evet, Sınıf: A Sınıfı, Mezun: Evet, Tolerans: 0,10 mL, 0,17 mL, 0,25 mL | Thermo Fisher | S81273 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Eisco Güvenlik Paketi Dereceli Silindir Setleri A Sınıfı, ASTM, Kapasite: 50 mL, 100 mL, 250 mL, Mezuniyetler: 1.0 mL, 1.0 mL, 2.0 mL, Borosilikat 3.3 Cam, Otoklavlanabilir: Evet, Sınıf: A Sınıfı, Mezun: Evet, Tolerans: 0.25 mL, 0.50 mL, 1.0 mL | Thermo Fisher | S81275 | Provasoli' oluşturmak için kimyasallar s Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Eisco Güvenlik Paketi Hacimsel Şişe Setleri - Sınıf A, ASTM, Kapasite: 10 mL, 25 mL, 50 mL, Borosilikat 3.3 Cam, Otoklavlanabilir: Evet, Sınıf: A Sınıfı, Kapatma Malzemesi: Cam, Kapatma Boyutu: Tıpa Numarası: 9, 9, 13, Kapatma Tipi: Penny Stopper, Mezun: Ye | Thermo Fisher | S81271 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Filtre tutucu | Amazon | B07LCKBKCT | Doğal deniz suyu sterilizasyonu |
| Fisherbrand Dereceli Silindirler, Kapasite: 500 mL, Mezuniyetler: 5 mL, Borosilikat Cam, Otoklavlanabilir: Evet, Hata Sınırı: +/- 4.0 mL, Önerilen Uygulamalar: Eğitim, Alt Bölüm: 5 mL, S63460 1/EA | Thermo Fisher | S63460 | Provasoli'yi oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| FLEXACAM C1 Kamera | Leica | FLEXACAM C1 | İzleme |
| Folik asit, C19H19N7O6, CAS Numarası59303, m vitamini, pteroilglutamik asit, b9 vitamini, folvit, folasin, folasit, pteroyllglutamik asit, pteglu, folik asit, folat, 25g, 100781, CHEBI:27470, Sarıdan Turuncuya, 2004190, 441.41, OVBPIULPVIDEAOLBPRGKRZSAN | Thermo Fisher | AAJ6083314 | Provasoli'yi oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Serbest Daimi 20 Galon Yardımcı Evye | Amazon | B094TLH19L | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| GERMANYUM DİOKSİT 99.99 10GR | Thermo Fisher | AC190000100 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Cam Dereceli Silindirler, A Sınıfı Yuvarlak Taban, Eisco, Kullanım İçin: Sıvıların Ölçülmesi, Kapasite: 1000 mL, Mezuniyetler: 10 mL Beyaz, CH0344OWT 1/EA Thermo | Fisher | S88442 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Cam kaydıraklar | Amazon | B00L1S93PS | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Gliserol fosfat disodyum tuzu hidrat izomerik karışımı | Sigma | G6501-100G | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Büyüme kapları -3.4 Qt- 3.25 Lt şeffaf kapaklı şeffaf kaplar | Konteyner deposu | #10014828 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Büyüme ışığı | Amazon | B086R14MFW | Seçenek 1 Küçük ölçekli - İnkübatör, |
| Hemositometre | Amazon | B07TJQDKLJ | Sporülasyon |
| Menteşeli plastik kavanozlar | SKS Şişe & ambalaj | 40280125.01S | Seçenek 1 Küçük ölçekli - İnkübatör İnositol |
| araştırma sınıfı, USP / NF Bakteriyoloji için. Optik olarak etkin değil. Doku kültürüne uygunluğu test edilmiştir. Boyut - 100G Depolama Koşulları - +15 C TO +30 C Katalog Numarası - 26310.01 CAS 87-89-8 | Thermo Fisher | 50247745 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Instant Ocean - 50 G | Amazon | B000255NKA | Seçenek 1 Küçük ölçekli - İnkübatör |
| Ters Mikroskop Leica DMi1 | Leica | DMi1 | İzleme |
| Demir(III) klorür heksahidrat ACS reaktifi, %97 | Sigma | 236489-100G | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Licor Ligth Metre Veri Kaydedici | Licor | LI-250A | Işık |
| /sıcaklık İzleme HOBO veri kaydedici | Amazon | B075X2SWKN | İzleme |
| Işıkları 150W | Amazon | B0799DQM9V | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Manganez sülfat monohidrat, USP test spesifikasyonlarını | karşılar Sigma | M8179-100G | Provasoli'yi oluşturmak için kimyasallar s Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Orta boy kayalar 2-3 inç, 20 pound | Home Depot 206823930 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri | |
| Nikotinik Asit, %99, C6H5NO2, CAS Numarası59676, daskil, apelagrin, acidum nicotinicum, akotin, 3karboksipiridin, niasin, 3piridinkarboksilik asit, nikotinik asit, pellagrin, wampocap, 250g, 109591, CHEBI:15940, 1.4, 2004410, 293 derece. C (559 derece. F), 123.11, | Thermo Fisher | AAA1268330 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| p-Aminobenzoik asit %99,82 4-aminobenzoik asit, C7H7NO2, CAS Numarası: 150-13-0, 25g, 0210256925 1/EA | Thermo Fisher | ICN10256925 | Provasoli' oluşturmak için kimyasallar s Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| PCV çimentosu | Amazon | B001D9WRWG | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Plastik su vanası | Amazon | B0006JLVE4 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Plastik su vanası | Amazon | B07G5FY7X1 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Hassas ölçek 1mg | Amazon | B08DTH95FN | Provasoli'yi oluşturmak için malzemeler Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Filtrelenmiş hava pompası | Amazon | B0BG2BT9RX | Seçenek 1 Küçük ölçekli - Kuluçka |
| makinesi PVC boru 1x24'' | Home Depot | 202300505 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Kuantum Işık ölçer | Apogee Instruments | MQ-510 | İzleme |
| Soğutmalı İnkübatör | Thermo Fisher | 15-103-1566 | Seçenek 1 Küçük ölçekli - Kuluçka |
| Kauçuk Grommetler | Amazon | B07YZD22ZP | Seçenek 1 Küçük ölçekli - İnkübatör |
| Tuzluluk refraktometresi | ATC | B018LRO1SU | İzleme |
| Gölge örgü 6x50 ft | Ev deposu | 316308418 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Sodyum Nitrat ge% 99.0 Nitrik Asit, Sodyum Tuzu, NNaO3, CAS Numarası: 7631-99-4, 500g, 1 / EA | Thermo Fisher | BP360500 | Provasoli'yi oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Havalandırma açıklığı için lehimleme | Amazon | B08R3515SF | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Sprey isporopil alkol | Amazon | B08LW5P844 | Sporülasyon |
| Paslanmaz çelik sissorlar | Amazon | B07BT4YLHT | Sporulation |
| Paslanmaz çelik tepsi | Amazon | B08CV33YXG | Sporulation |
| Paslanmaz çelik twizzers | Amazon | B01JTZTAJS | Sporülasyon |
| Karıştırma Çubukları | Amazon | B07C4TNKXB | Provasoli' oluşturmak için malzemeler Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Dalgıç sirkülasyon pompası 400 GPH | Amazon | B07RZKRM13 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Dalgıç Küresel Kuantum | Sensör Valsi | US-SQS/L | İzleme |
| Sıcaklık tabancası | Kızılötesi Termometre 749 | B07VTPJXH9 | İzleme |
| Tiamin hidroklorür BioReagent, hücre kültürü için uygun, böcek hücre kültürü için uygun, bitki hücre kültürü için uygun | Sigma | T1270-25G | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Timin %99 2, 4-Dihidroksi-5-metilpirimidin, C5H6N2O2, CAS Numarası: 65-71-4, 25g, 157850250 1/EA | Thermo Fisher | AC157850250 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Şeffaf Akrilik levha 24x48 inç | Home Depot | 202038048 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Boru su sirkülasyonu 1''x10 ft | Amazon | B07ZC1PSF3 | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| Doğal deniz suyu sterilizasyonu için UV ışığı | Amazon | B018OI7PYS | Doğal deniz suyu sterilizasyonu |
| Vakum pompası | Amazon | B087XBTPVW | Doğal deniz suyu sterilizasyonu |
| B12 Vitamini BioReagent, hücre kültürü için uygun, böcek hücre kültürü için uygun, bitki hücre kültürü için uygun,% 98 | Sigma | V6629-100MG | Provasoli' oluşturmak için kimyasallar s Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Hacimsel Şişeler, A Sınıfı Cam, Eisco, Polipropilen Tıpalı, Dereceli, Beyaz baskılı işaretler, Kapasite: 1000 mL, CH0446IWT 1/EA | Thermo Fisher | S89446 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Hacimsel Şişeler, A Sınıfı Cam, Eisco, Polipropilen Tıpalı, Dereceli, Beyaz baskılı işaretler, Kapasite: 500 mL, CH0446HWT 1/EA | Thermo Fisher | S89445 | Provasoli' oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
| Su Soğutucu 200-600GPM | Amazon | B07BHHP71C | Seçenek 2 - Orta ölçekli - Su banyosu sistemleri |
| 4x6mm boru için Y ayırıcılar | Amazon | B08XTJKFCH | Seçenek 1 Küçük ölçekli - Kuluçka |
| Makinesi Çinko sülfat heptahidrat BioReagent, hücre kültürü için uygun | Sigma | Z0251-100G | Provasoli'yi oluşturmak için kimyasallar Zenginleştirilmiş Deniz Suyu (PES) ve ortam zenginleştirme için vitaminler |
Kaynaklar
- Schiel, D. R., Foster, M. S. The Biology and Ecology of Giant Kelp Forests. , Univ of California Press. (2015).
- Smale, D. A., Burrows, M. T., Moore, P., O'Connor, N., Hawkins, S. J. Threats and knowledge gaps for ecosystem services provided by kelp forests: a northeast Atlantic perspective. Ecol Evol. 3 (11), 4016-4038 (2013).
- Eger, A. M., et al. The value of ecosystem services in global marine kelp forests. Nat Comm. 14 (1), 1894(2023).
- Bennett, S., Wernberg, T., Arackal Joy, B., de Bettignies, T., Campbell, A. H. Central and rear-edge populations can be equally vulnerable to warming. Nat Comm. 6 (1), 10280(2015).
- Jueterbock, A., et al. Climate change impact on seaweed meadow distribution in the North Atlantic rocky intertidal. Ecol Evol. 3 (5), 1356-1373 (2013).
- Rogers-Bennett, L., Catton, C. A. Marine heat wave and multiple stressors tip bull kelp forest to sea urchin barrens. Sci Rep. 9 (1), 15050(2019).
- Krumhansl, K. A., et al. Global patterns of kelp forest change over the past half-century. PNAS. 113 (48), 13785-13790 (2016).
- Zimmerman, R. C., Kremer, J. N. Episodic nutrient supply to a kelp forest ecosystem in Southern California. J Mar Res. 42 (3), 591-604 (1984).
- Rothäusler, E., et al. Physiological performance of floating giant kelp Macrocystis pyrifera (phaeophyceae): Latitudinal variability in the effects of temperature and grazing. J Phycol. 47 (2), 269-281 (2011).
- Wernberg, T., Krumhansl, K., Filbee-Dexter, K., Pedersen, M. F. Chapter 3 - Status and trends for the world's kelp forests. World Seas: An Environmental Evaluation (Second Edition). , 57-78 (2019).
- Eger, A. M., Layton, C., McHugh, T. A., Gleason, M., Eddy, N. Kelp restoration guidebook: Lessons learned from kelp restoration projects around the world. TNCKelp Forest Alliance. , (2022).
- Filbee-Dexter, K., et al. Marine heatwaves and the collapse of marginal North Atlantic kelp forests. SciRep. 10 (1), 13388(2020).
- Filbee-Dexter, K., Scheibling, R. E. Sea urchin barrens as alternative stable states of collapsed kelp ecosystems. Mar Ecol Prog Ser. 495, 1-25 (2014).
- Filbee-Dexter, K., Wernberg, T. Rise of turfs: A new battlefront for globally declining kelp forests. BioSci. 68 (2), 64-76 (2018).
- Assis, J., Araújo, M. B., Serrão, E. A. Projected climate changes threaten ancient refugia of kelp forests in the North Atlantic. Glob Change Biol. 24 (1), e55-e66 (2018).
- Davis, T., Champion, C., Coleman, M. Ecological interactions mediate projected loss of kelp biomass under climate change. Divers Distrib. 28 (2), 306-317 (2021).
- Goldsmit, J., et al. Kelp in the eastern Canadian arctic: Current and future predictions of habitat suitability and cover. Front Mar Sci. 18, 742209(2021).
- Ling, S. D., Cornwall, C. E., Tilbrook, B., Hurd, C. L. Remnant kelp bed refugia and future phase-shifts under ocean acidification. PLoS One. 15 (10), e239136(2020).
- Eger, A. M., et al. Global kelp forest restoration: past lessons, present status, and future directions. Biol Rev. 97 (4), 1449-1475 (2022).
- Waylen, K. A., Fischer, A., McGowan, P. J., Thirgood, S. J., Milner-Gulland, E. J. Effect of local cultural context on the success of community-based conservation interventions. Biol Consv. 24 (4), 1119-1129 (2010).
- Vergés, A., et al. The tropicalization of temperate marine ecosystems: climate-mediated changes in herbivory and community phase shifts. Proc Royal Soc. B. 281 (1789), 20140846(2014).
- Zarco-Perello, S., Wernberg, T., Langlois, T. J., Vanderklift, M. A. Tropicalization strengthens consumer pressure on habitat-forming seaweeds. Sci Rep. 7 (1), 820(2017).
- Worm, B., Lotze, H. K. Chapter 21 - Marine biodiversity and climate change. Climate Change (Third Edition). , 445-464 (2021).
- Félix-Loaiza, A. C., Rodríguez-Bravo, L. M., Beas-Luna, R., Lorda, J., de La Cruz-González, E., Malpica-Cruz, L. Marine heatwaves facilitate invasive algae takeover as foundational kelp. Botanica Marina. 65 (5), 315-319 (2022).
- Miller, K. I., Blain, C. O., Shears, N. T. Sea urchin removal as a tool for macroalgal restoration: A review on removing "the spiny enemies". Fron Mar Sci. 9, 831001(2022).
- Westermeier, R., et al. Repopulation techniques for Macrocystis integrifolia (Phaeophyceae: Laminariales) in Atacama, Chile. J Appl Phycol. 26, 511-518 (2014).
- Layton, C., et al. Kelp forest restoration in Australia. Fron Mar Sci. 7, 74(2020).
- Fredriksen, S., et al. Green gravel: a novel restoration tool to combat kelp forest decline. Sci Rep. 10 (1), 3983(2020).
- Projects of the Green Gravel Action Group. Green Gravel Action Group. (n.d.) . , Available from: https://www.greengravel.org/ (2024).
- Fain, S. R., Murray, S. N. Effects of light and temperature on net photosynthesis and dark respiration of gametophytes and embryonic sporophytes of macrocystis pyrifera. J Phycol. 18 (1), 92-98 (1982).
- Westermeier, R., Patiño, D., Piel, M. I., Maier, I., Mueller, D. G. A new approach to kelp mariculture in Chile: production of free-floating sporophyte seedlings from gametophyte cultures of Lessonia trabeculata and Macrocystis pyrifera. Aquac Res. 37 (2), 164-171 (2006).
- Alsuwaiyan, N., et al. A et al. Green gravel as a vector of dispersal for kelp restoration. Fron Mar Sci. 9, 910417(2022).
- Falace, A., Kaleb, S., De La Fuente, G., Asnaghi, V., Chiantore, M. Ex situ cultivation protocol for Cystoseira amentacea var. stricta (Fucales, Phaeophyceae) from a restoration perspective. PloS One. 13 (2), e0193011(2018).
- Redmond, S., Green, L., Yarish, C., Kim, J., Neefus, C. New England seaweed culture handbook. , (2014).
- Provasoli, L., McLaughlin, J. J. A., Droop, M. R. The development of artificial media for marine algae. Arch Mikrobiol. 25, 392-428 (1957).
- Navarro, D., Navarro, D. E. California Kelp Forest Restoration: Science Activity Guide for Teachers. , (2006).
- Alsuwaiyan, N. A., et al. A review of protocols for the experimental release of kelp (Laminariales) zoospores. Ecol Evol. 9 (14), 8387-8398 (2019).
- Lüning, K., Müller, D. G. Chemical interaction in sexual reproduction of several Laminariales (Phaeophyceae): release and attraction of spermatozoids. Z. Pflanzenphysiol. 89 (4), 333-341 (1978).
- Müller, D. G., Maier, I., Gassmann, G. Survey on sexual pheromone specificity in Laminariales (Phaeophyceae). Phycologia. 24 (4), 475-477 (1985).
- Vieira, V. M., Oppliger, L. V., Engelen, A. H., Correa, J. A. A new method to quantify and compare the multiple components of fitness-a study case with kelp niche partition by divergent microstage adaptations to temperature. Plos One. 10 (3), e0119670(2015).
- Brooks, M. E., et al. glmmTMB balances speed and flexibility among packages for zero-inflated generalized linear mixed modeling. The R Journal. 9 (2), 378-400 (2017).
- Russell, L. emmeans: estimated marginal means, aka least-squares means. R package version. 1 (2), (2018).
- Ladah, L. B., Zertuche-González, J. A. Survival of microscopic stages of a perennial kelp (Macrocystis pyrifera) from the center and the southern extreme of its range in the Northern Hemisphere after exposure to simulated El Niño stress. Mar Biol. 152, 677-686 (2007).
- Halpern, B. S., et al. A global map of human impact on marine ecosystems. Science. 319 (5865), 948-952 (2008).
- Halpern, B. S., et al. Spatial and temporal changes in cumulative human impacts on the world's ocean. Nat Comm. 6 (1), 1-7 (2015).
- Halpern, B. S., et al. Recent pace of change in human impact on the world's ocean. Sci Rep. 9 (1), 11609(2019).
- Micheli, F., et al. Cumulative human impacts on Mediterranean and Black Sea marine ecosystems: assessing current pressures and opportunities. PloS One. 8 (12), e79889(2013).
- Portner, H. -O., et al. IPCC, 2022: Summary for policymakers. IPCC. , (2022).
- Butchart, S. H. M., et al. Global biodiversity: Indicators of recent declines. Science. 328 (5982), 1164-1168 (2010).
- Rocha, J., Yletyinen, J., Biggs, R., Blenckner, T., Peterson, G. Marine regime shifts: Drivers and impacts on ecosystems services. Phil Trans Roy Soc. B. 370 (1659), 20130273(2015).
- Worm, B., et al. Impacts of biodiversity loss on ocean ecosystem services. Science. 314 (5800), 787-790 (2006).
- Worm, B., Lotze, H. K. Marine biodiversity and climate change. Climate Change (Third Edition). , Chapter 21 445-464 (2021).
- Waltham, N. J., et al. UN decade on ecosystem restoration 2021-2030-What chance for success in restoring coastal ecosystems. Fron Mar Sci. 7, (2020).
- Kelp Forest Challenge. Kelp Forest Alliance. , Available from: https://kelpforestalliance.com/ (2024).
- Gordon, T. A. C., Radford, A., Simpson, S. D., Meekan, M. G. Marine restoration projects are undervalued. Science. 367 (6478), 635-636 (2020).
- Morris, R. L., et al. Key principles for managing recovery of kelp forests through restoration. BioScience. 70 (8), 688-698 (2020).
- Bayraktarov, E., et al. The cost and feasibility of marine coastal restoration. Ecol Appl. 26 (4), 1055-1074 (2016).
- Breed, M. F., et al. Priority actions to improve provenance decision-making. BioScience. 68 (7), 510-516 (2018).
- Breed, M. F., et al. The potential of genomics for restoring ecosystems and biodiversity. Nat Rev Genet. 20 (10), 615-628 (2019).
- Gurgel, C. F. D., Camacho, O., Minne, A. J. P., Wernberg, T., Coleman, M. A. Marine heatwave drives cryptic loss of genetic diversity in underwater forests. Curr Biol. 30 (7), 1199-1206 (2020).
- Hobbs, R. J., Higgs, E., Harris, J. A. Novel ecosystems: implications for conservation and restoration. Trends Ecol Evol. 24 (11), 599-605 (2009).
- van Oppen, M. J. H., Oliver, J. K., Putnam, H. M., Gates, R. D. Building coral reef resilience through assisted evolution. PNAS. 112 (8), 2307-2313 (2015).
- Perring, M. P., et al. Advances in restoration ecology: Rising to the challenges of the coming decades. Ecosphere. 6 (8), (2015).
- Coleman, M. A., et al. Restore or redefine: Future Trajectories for Restoration. Fron MarSci. 7, 237(2020).
- O'Neill, G. A. Assisted migration to address climate change in British Columbia: recommendations for interim seed transfer standards. Ministry of Forests and Range, Forest Science Program. , Victoria, B.C. (2008).
- Broadhurst, L. M., et al. Seed supply for broadscale restoration: maximizing evolutionary potential. Evol App. 1 (4), 587-597 (2008).
- Vitt, P., Havens, K., Kramer, A. T., Sollenberger, D., Yates, E. Assisted migration of plants: Changes in latitudes, changes in attitudes. Biol Cons. 143 (1), 18-27 (2010).
- Buerger, P., et al. Heat-evolved microalgal symbionts increase coral bleaching tolerance. Sci Adv. 6 (20), 2498(2020).
- Chakravarti, L. J., van Oppen, M. J. H. Experimental evolution in coral photosymbionts as a tool to increase thermal tolerance. Fron Mar Sci. 5, (2018).
- van Oppen, M. J. H., et al. Shifting paradigms in restoration of the world's coral reefs. Global Change Biology. 23 (9), 3437-3448 (2017).
- Harborne, A. R., Rogers, A., Bozec, Y. -M., Mumby, P. J. Multiple Stressors and the Functioning of Coral Reefs. Ann Rev Mar Sci. 9 (1), 445-468 (2017).
- Hughes, T. P., et al. Climate change, human impacts, and the resilience of coral reefs. Science. 301 (5635), 929-933 (2003).
- Anthony, K., et al. New interventions are needed to save coral reefs. Nat Ecol & Evol. 1 (10), 1420-1422 (2017).
- Darling, E. S., Côté, I. M. Seeking resilience in marine ecosystems. Science. 359 (6379), 986-987 (2018).
- van Oppen, M. J. H., Puill-Stephan, E., Lundgren, P., De'ath, G., Bay, L. K. First-generation fitness consequences of inter-populational hybridization in a Great Barrier Reef coral and its implications for assisted migration management. Coral Reefs. 33 (3), 607-611 (2014).
- Coleman, M. A., Goold, H. D. Harnessing synthetic biology for kelp forest conservation1. J Phycol. 55 (4), 745-751 (2019).
- Liboureau, P., Pearson, G. A., Barreto, L., Serrao, E. A., Kreiner, A., Martins, N. Effects of thermal history on reproductive success and cross-generational effects in the kelp Laminaria pallida (Phaeophyceae). Mar Ecol Prog Ser. 715, 41-56 (2023).
Yeniden basım ve izinler
