Burada, bitki tarihi ve toprak tarihinin, bir bitki çeşitliliği gradyanı boyunca otlak topluluklarının ekosistem işleyişi üzerindeki bağımsız ve etkileşimli etkilerini incelemek için, yer üstünde ve altında kontrollü çevre koşullarına sahip karasal mezokozm odaları olan iDiv Ecotron'da kurulan bir çalışmayı sunuyoruz.
Yöntem makalesi
JenaTron - Bitki Tarihi ve Toprak Tarihinin Otlak Ekosisteminin İşleyişi Üzerindeki Etkilerini İncelemek İçin Deneysel Bir Yaklaşım
Bu makalede
Özet
Özet
Küresel biyoçeşitlilik kaybı, bitki türlerinin zenginliğini deneysel olarak değiştiren ve ekosistem işleyişi üzerindeki sonuçlarını inceleyen birçok çalışmayı motive etmiştir. Bu tür deneyler genellikle yer üstü ve yer altı biyoçeşitliliği ile karasal ekosistemlerin işleyişi arasında pozitif bir ilişki olduğunu göstermektedir. Ayrıca, bu ilişki, çeşitli bitki topluluklarının gelişmiş işleyişi ve düşük çeşitlilikli bitki topluluklarının azalmış işleyişi olarak görülen, zamanla güçlenme eğilimindedir. Yüksek ve düşük çeşitlilikli bitki topluluklarındaki multitrofik topluluk montajı ve biyotik etkileşimlerdeki farklılıkların, tüketici topluluğu yapısını ve işlevini değiştirerek ve bitki topluluklarındaki bitki türlerinin plastik veya mikro-evrimsel tepkilerini yönlendirerek bitki performansını etkilediği varsayılmaktadır. Topluluk tarihinin bu karmaşık etkileşimini çözmek için, bu etkileri bitki ve toprak tarihine ayırdık. Bitki tarihi, topluluklarında yaşanan geçmiş abiyotik ve biyotik seçilim baskılarına bitki düzeyinde verilen tüm tepkileri ifade ederken, toprak tarihi, değişken bitki çeşitliliği altında bitki-toprak etkileşimlerinin bir mirası olarak geliştirilen tüm abiyotik ve biyotik toprak özellikleriyle ilgilidir. Güçlenen biyoçeşitlilik-ekosistem işleyiş ilişkisinin toprak tarihinden, bitki geçmişinden mi yoksa her ikisinin bir kombinasyonundan mı kaynaklandığını test etmek için yer üstü ve yer altı çevresel koşulların kontrol edilmesini sağlayan karasal bir mezokozm tesisi olan Ecotron'da bir biyoçeşitlilik deneyi kurduk. 1, 2, 3 ve 6 çayır bitki türünden oluşan bir bitki çeşitliliği gradyanı oluşturduk ve her bir bitki türü zenginliği seviyesi için toprak tarihi ve bitki tarihi uygulamaları ile faktörel olarak iç içe geçirdik. Temsili sonuçlar, bitki ve toprak tarihinin ilk bitki gelişimi ve nihai bitki büyümesi üzerindeki etkilerini gözlemleyen Ecotron deneyinde hedef tedavilerin başarılı bir şekilde kurulduğunu göstermektedir. Ek olarak, bireysel yanıt değişkenlerinin veri analizi için bir vaka çalışması sunuyoruz. Nihai olarak kapsayıcı hipotezi ele almak için gerekli olan deneysel tedavilere verilen çok işlevli yanıtları kapsamlı bir şekilde değerlendirmek için araştırma hedeflerini ve yöntemlerini ana hatlarıyla belirtiyoruz.
Giriş
Son otuz yılda, biyolojik çeşitlilik kaybıyla ilgili artan endişeler, ekosistem işleyişi üzerindeki etkisini araştırmak için bitki türlerinin zenginliğini deneysel olarak manipüle etmeye odaklanan kapsamlı araştırmalara yol açmıştır 1,2. Deneysel çalışmalar, bitki çeşitliliği ile ekosistem işleyişi1 arasında pozitif bir ilişki olduğunu göstermiştir ve bu ilişki zamanla artma eğilimindedir 3,4,5,6,7,8,9. Bu önemli bir bulgudur, çünkü genç, yakın zamanda kurulan topluluklardan elde edilen deneysel sonuçların, daha yaşlı, tür açısından zengin ekosistemleri korumanın önemini vurgularken, biyolojik çeşitlilik kaybının sonuçlarını muhtemelen hafife aldığını göstermektedir10.
Biyotik ve abiyotik süreçlerde zaman içinde meydana gelen ve yalnızca uzun süreli deneylerde gözlemlenebilen değişiklikler, biyoçeşitliliğin ekosistem işleyişi üzerindeki artırıcı etkilerinin olası bir açıklamasıdır. Yüksek bitki çeşitliliği, toprak karbon ve besin konsantrasyonlarındaki artışlarlailişkilendirilmiştir 3,9,11,12,13, optimize edilmiş kaynak tamamlayıcılığı 3,8,14, bitkiler arasında gelişmiş niş farklılaşması 15, tüm trofik seviyelerde mutualistlerin birikimi10,16ve daha güçlü yukarıdan aşağıya düzenleyici mekanizmalar yoluyla patojenlerden ve otoburlardan gelen tehditlerin azalması 17,18,19. Tersine, düşük bitki çeşitliliği, bitki savunmasına yapılan yatırımın artmasına ve daha az verimli kaynak kullanımına yönelik seçici baskı ile ilişkilendirilmiştir 10,20,21,22. Birlikte ele alındığında, yüksek ve düşük çeşitliliğe sahip bitki topluluklarındaki multitrofik topluluk oluşumu ve biyotik etkileşimlerdeki farklılıkların, tüketici topluluğu yapısını ve işlevini değiştirerek ve ayrıca bitki türlerinin bitki toplulukları düzeyinde plastik veya mikro-evrimsel değişikliklerini yönlendirerek bitki performansını etkilediği varsayılmaktadır 23,24,25,26. Topluluk tarihinin karmaşık etkileşimini çözmek için, bu etkiler iki önemli bileşene ayrıldı: bitki tarihi ve toprak tarihi. Bitki tarihi, kendi topluluklarında yaşanan geçmiş abiyotik ve biyotik seçilim baskılarına karşı tüm bitki tepkilerini ifade ederken, toprak tarihi, bitki-toprak etkileşimlerinin bir sonucu olarak gelişen tüm abiyotik ve biyotik toprak özellikleri ile ilgilidir 23,24,27,28. Her iki bileşen de uzun vadeli biyolojik çeşitlilik etkilerinde giderek daha fazla kilit itici güçler olarak kabul edilmektedir 29,30,31.
Deneysel saha çalışmaları, gerçekçi çevre koşulları altında ve geniş bir mekansal ölçekte toprak ve bitki tarihinin uzun vadeli etkileri hakkında değerli bilgiler sağlar32,33. Bununla birlikte, saha deneyleri, hava dalgalanmaları, doğal rahatsızlıklar ve diğer organizmalarla etkileşimler gibi çeşitli kontrolsüz dış faktörlere tabidir. Buna karşılık, küçük ölçekli mikrokozmos deneyleri, doğal ekosistemlerin karmaşıklığını ve dinamiklerini yakalamada sınırlı olsa da, sıcaklık, ışık ve su gibi abiyotik faktörler üzerinde hassas kontrol sağlar34. Her iki yaklaşımın avantajlarını birleştirmek için, 1990'larda 'Ecotrons' adı verilen yeni deneysel tesisler ortaya çıktı (örneğin, Silkwood'daki Ecotron, UK34; Montpellier, Fransa'daki Ecotron35; Ecotron, Hasselt, Belçika36). Roy ve ark. (2021)37, Ecotron'u, ekosistem süreçlerinin eşzamanlı ve otomatik ölçümünü kolaylaştırırken yer üstü ve yer altı çevresel koşulların gerçekçi simülasyonuna izin veren, ekosistem örneklerini barındırmak için tasarlanmış çoğaltılmış muhafazalardan oluşan deneysel bir tesis olarak tanımlar. Böylece Ecotrons, karmaşık ekosistem süreçlerinin, multitrofik etkileşimlerin ve ekosistem işlevlerinin entegre bir şekilde incelenmesini sağlar. Geniş bir dizi bağımsız mezokozm odasında çoklu trofik seviyelerden çeşitli yer üstü ve yer altı organizmalarını barındırabilirler, bu da hem yer üstü hem de yer altı sistemlerinde çevresel koşulların hassas bir şekilde kontrol edilmesini ve izlenmesini sağlar37,38.
Bu çalışmada, iDiv Ecotron 38,39'da "JenaTron Deneyi" (Şekil 1 ve Şekil 2) olarak adlandırılan bir deney kurduk ve farklı bitki türü zenginliği seviyelerine sahip topluluklardaki biyoçeşitlilik-ekosistem işleyişi (BEF) ilişkilerinin toprak tarihi, paylaşılan bitki tarihi veya her ikisinin birleşik etkisi tarafından modüle edilip edilmediğini test ettik. iDiv Ecotron, karasal ekosistemlerdeki yer üstü ve yer altı etkileşimlerinin ortak araştırılmasına odaklanan multitrofik biyoçeşitlilik deneyleri için özel olarak tasarlanmıştır 38,39,40. 'EkoBirimler' (Şekil 2F,G) olarak adlandırılan, her biri izole bölmelerde dört ayrı ekosistemi barındırabilen (Şekil 2K) 24 özdeş deney biriminden oluşur ve çevresel değişkenliğin etkisini en aza indirirken karmaşık, doğala yakın ekosistemlerin inşasına izin verir. Önemli bir avantaj, kontrollü çevre koşulları altında bozulmamış toprak monolitlerinin (Şekil 2A-C) birden fazla kopyasını oluşturma kapasitesidir, bu da bitki-bitki ve bitki-toprak geri besleme etkileri de dahil olmak üzere karmaşık ekosistem süreçlerinin ölçülmesini sağlar, bu da genellikle küçük ölçekli mikrokozmos deneylerinde yakalanması zor olan38,39.
Avrupa'da, yarı doğal otlaklar, hayati ekosistem hizmetleri sağlayan en biyolojik çeşitliliğe sahip ve karmaşık karasal ekosistemler arasındadır. Bununla birlikte, 20. yüzyılın başlarından bu yana, kapsamlı bir şekilde yönetilen bu otlaklar, arazi kullanımı değişikliğinden kaynaklanan artan tehditlerle karşı karşıya kalmış ve bu da onları biyolojik çeşitliliğin korunması ve araştırılması için kilit bir odak noktası haline getirmiştir. Yaygın olarak yönetilen çayırlar üzerinde dünyanın en uzun süredir devam eden biyoçeşitlilik deneylerinden biri, Almanya'nın Jena kentinde bulunan Jena Deneyi 32,33'tür (50.951 ° K, 11.621 ° D, 139 m a.s.l.; web sitesi: https://the-jena-experiment.de). 2002 yılında kurulan deney, otlak bitki çeşitliliği ile ekosistem işleyişi arasındaki ilişkileri, özellikle besin döngüsü ve trofik etkileşimlere odaklanarak araştırmaktadır32,33. JenaTron Deneyi'nin iDiv Ecotron içine kurulumu için, 2010 yılında başlatılan ve 2021 yılında tamamlanan Jena Deneyi'nin bir bileşeni olan Özellik Tabanlı Deney 41'i (TBE) kullandık. 2022'de, iDiv Ecotron içindeki 24'ten fazla bitki topluluğunu kapsayan, bir ila altı tür arasında değişen bir bitki çeşitliliği gradyanı oluşturmak için TBE'nin 23 parseli seçildi. Bu topluluklar, Jena Deneyi'nin Ana Deneyi ile örtüşen ve üç çim türünü (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) ve üç forb türünü (Leucanthemum vulgare agg., Plantago lanceolata L. ve Ranunculus acris L.) temsil eden altı otlak bitki türünden oluşuyordu; bakınız Tablo 1 Bitki türlerinin bileşimi ve her bitki çeşitliliği seviyesi için kopyalar hakkında ayrıntılar için). Yarı doğal Avrupa otlaklarında yaygın olan ve sıklıkla bir arada bulunan bu türler, ayrıca zamansal kaynak edinme özelliklerinde de farklılık gösterir ve bu da onları bitki fenolojisi gibi zamansal kaynak kullanımına ilişkin kapsamlı çalışmalar için ideal kılar41. 24 bitki bileşimi, tüm EkoBirimlere rastgele atandı (Şekil 1C), her bir EkoBirim, toprak tarihi ve bitki geçmişi işlemlerinin faktöriyel kombinasyonlarını barındırmak için dört bölmeye ayrıldı.
Toprak tarihi (Şekil 1A), Jena Deneyi'nden toplam 96 adet toprak monolitinin kazılmasıyla oluşturulmuştur. Alanın toprağı, tınlı nehir çökeltilerinden32,33 geliştirilen, Eutric Fluvisol olarak sınıflandırılan, besin açısından zengin bir taşkın yatağı toprağıdır. Jena Deneyi toprak profili içindeki toprak pH'ı, toprak dokusundaki değişiklikler ve organik madde ile ilgili ayrıntılı bilgi Lange ve ark. (2023)9. 96 monolitten 48'i, monokültürleri, iki ve üç tür karışımlarını kapsayan 22 TBE parselinin her birinden iki monolit kazılarak elde edildi. Ek olarak, JenaTron Deneyi'nde altı tür karışımı olarak hizmet edecek olan sekiz türlük bir arsadan dört monolit alındı. Bu 48 toprak monolitinin her biri (derinlik: 0,8 m; çap: 0,5 m) 2010'dan beri arsaya özgü bir konut topluluğunu barındırıyordu ve bu nedenle bitki topluluğuna özgü bir toprak tarihini (+SH) temsil ediyordu. Kalan 48 monolit, 2002 yılında Jena Deneyi'nin başlamasından bu yana bitki örtüsünden uzak tutulan dört çıplak zemin parselinden kazıldı, bu nedenle herhangi bir bitki topluluğuna özgü toprak geçmişi (-SH) yoktu. Dört çıplak zeminli parselin her birinden 12 monolit kazıldı. İki toprak geçmişi işlemi (+SH; -SH), TBE'nin bitki topluluğuna özgü bileşimini yansıtan önceden yetiştirilmiş bitkilerin, tek tek bitkilerin 6 cm aralıklarla yerleştirildiği eşit yoğunlukta ekilmesiyle iki bitki geçmişi muamelesi ile faktörif olarak birleştirildi.
Bitki tarihi (Şekil 1B), Jena Deneyi tür havuzundan seçilen bitki türlerinin her biri için iki farklı tohum kaynağı kullanılarak oluşturulmuştur: İlk kaynak, 2010'dan bu yana topluluğa özgü bir tarih yaşamış bitkilerden toplanan tohumlardan oluşuyordu ve toprak monolitlerinin kazıldığı tam Özellik Tabanlı Deney (TBE) parsellerine karşılık geliyordu (+PH). Bu tohumlar, türlerin çiçeklenme fenolojisine bağlı olarak Mayıs-Eylül 2019 tarihleri arasında toplandı ve tür ve arsa başına en az beş bireyin örneklenmesi sağlandı. Toplandıktan sonra tohumlar temizlendi ve JenaTron Deneyi başlayana kadar -20°C'de saklandı. İkinci tohum kaynağı, bölgesel kökenli tohumlar üreten ticari bir tohum tedarikçisinden elde edilen tohumlardan oluşuyordu. Bu tohumlar, 2010 yılında TBE arazilerini oluşturmak için kullanıldı, böylece Jena Deneyi (-PH) içinde topluluğa özgü bir seçim geçmişi olmayan bitkileri temsil etti ve 2010'dan JenaTron Deneyi'nin başlangıcına kadar -20 ° C'de saklandı. Altı çok yıllık bitki türünün her iki geçmişi de Şubat-Mayıs 2022 tarihleri arasında Almanya'nın Leipzig kentinde bulunan iDiv araştırma serasının dört odasında (51.330°K, 12.393°D, 120 m asl) önceden yetiştirildi.
Bitki türü zenginliğinin her bir seviyesinde toprak tarihi (SH) ve bitki tarihinin (PH) faktöriyel kombinasyonu, 24 EkoBirimin her birinde dört muamele ile sonuçlandı: (1) toprak geçmişi ile, bitki geçmişi ile (+SH/+PH), (2) toprak geçmişi ile, bitki geçmişi olmadan (+SH/-PH), (3) toprak geçmişi olmadan, bitki geçmişi ile (-SH/+PH) ve (4) toprak geçmişi olmadan, bitki geçmişi olmadan (-SH/-PH; Şekil 1C). JenaTron Deneyi'nin temel amacı, biyoçeşitlilik ve ekosistem işleyişi arasındaki güçlenen ilişkinin toprak tarihinden mi, bitki geçmişinden mi yoksa her ikisinin bir kombinasyonundan mı kaynaklandığını araştırmaktır. Paylaşılan bitki ve toprak topluluğuna özgü geçmişe sahip bitki topluluklarının en güçlü BEF ilişkisini göstereceğini, oysa toprak tarihinin, bitki tarihinin veya her ikisinin deneysel olarak dışlanmasının bitki çeşitliliği ve ekosistem işleyişinin olumlu ilişkileri üzerinde zararlı etkileri olabileceğini varsayıyoruz. Sonuç olarak, toprak veya bitki tarihi, bitki türlerinin zenginliği ile ekosistem işleyişi arasındaki ilişkiyi değiştirecek olsaydı, bu, yerel olarak korunmuş ve yeni restore edilmiş toplulukların korunması ve izlenmesi için önemli bir husus olarak hizmet edecektir.
Protokol
NOT: Tüm protokol adımlarında uygun kişisel koruyucu ekipmanların (örn. kasklar, eldivenler, yelekler, güvenlik ayakkabıları vb.) sağlandığından emin olun.
1. Topraklar: Hazırlık, kazı, montaj
- Toprak kaynakları, parsel seçimi ve hazırlanması (Şubat 2022)
- Jena Deney sahası sahasından iki toprak kaynağı seçin:
- 1, 2, 3 ve 6 türden oluşan bir bitki çeşitliliği gradyanını kapsamak için 12 yıl boyunca parsele özgü bir topluluğu barındıran 23 TBE arazisini seçin. Bu arazileri "bitki topluluğuna özgü toprak geçmişi ile" (+SH) JenaTron Deneyi tedavisi olarak belirleyin.
- TBE parselleri ile aynı toprak özelliklerine (pH, kum içeriği vb.) sahip, ancak 2002'den beri bitki örtüsü olmadan tutulan 4 çıplak zemin parseli seçin. Bu grafikleri "bitki topluluğuna özgü bir geçmişi olmayan" (-SH) JenaTron Deneyi tedavileri olarak belirleyin.
- Toprak geçmişi işlemlerindeki koşulları eşitlemek için bir mini ekskavatör kullanarak seçilen tüm arazilerden üst 5 cm'lik toprağı nazikçe çıkarın.
- Jena Deney sahası sahasından iki toprak kaynağı seçin:
- Toprak monolit kazısı (Mart 2022)
- Monolit ekstraksiyon cihazını her arsaya kurun, boş bir çelik silindire bir kesme sistemi monte edin ve ekstraksiyon cihazına yerleştirin (Şekil 2A).
- Cihazı açın ve kesme sistemi dış silindir duvarının etrafında dönecektir. Sistem, ekstraksiyon cihazının aynı anda çelik silindiri bastırdığı toprakta bir çentik keser. Paralel olarak, çelik silindirin yan tarafında bir çukur kazmak için bir mini kazıcı kullanın (Şekil 2B).
- Çelik silindir tamamen toprağa gömüldükten sonra, yan çukura tırmanın ve geçici bir alt plaka monte ederek monoliti çelik silindirin alt kenarına klipsleyin ve monolit çıkarma cihazını kazı çukurundan çıkarmak için kullanın (Şekil 2C).
- Kesme sistemini çelik silindirden sökün, çelik silindire geçici bir üst plaka monte edin, mini kazıcıya bağlı bir süspansiyon kullanarak monoliti kaldırın ve ters çevirin.
- Su emiş sisteminin montajı (Mart 2022)
- Alt plakayı sökün, mala ile yaklaşık 5 cm toprak tabakasını çıkarın ve daha sonra kullanmak üzere saklayın.
- Kuvars tozuna bir su emme probu halkası (Polivinil klorür [PVC] hortumlarıyla bağlı 8 mum) gömün, demineralize su (VE) ile nemlendirin ve çelik silindir tabanını daha önce çıkarılmış toprakla yeniden doldurun.
- Su emme probu halkasının PVC uç parçasını alt plakaya bağlayın ve ardından cıvatalayın.
- Mini ekskavatör üzerindeki süspansiyonlu çelik silindiri tekrar dik konuma getirin, ayrı ayrı etiketleyin, silindir duvarlarındaki açıklıkları yapışkan bantla kapatın ve nakliye sırasında koruma için silindiri plastik folyoya sarın.
- Toprak monolitlerini bir kamyonla Almanya'nın Bad Lauchstädt kentindeki Helmholtz Çevre Araştırmaları Merkezi'nin (UFZ) deneysel saha istasyonunda bulunan iDiv Ecotron'a taşıyın (51.392 ° K, 11.876 ° D, 116 m asl).
- Toprak sensörlerinin montajı (Nisan 2022)
- Ambalajı açtıktan sonra, silindir duvarındaki açıklıkları üç farklı derinlikte (9,5 cm, 21,5 cm ve 43,5 cm) kullanarak özelleştirilmiş bir çelik bıçakla toprak monolitinde yatay olarak sensörler için tam olarak uyan delikler açın.
- Toprak sensörlerini deliklere yerleştirin, doğru konuma getirmek için tahta bir kütük kullanın ve açıklıkları özel yapım conta tapalarıyla cıvatalayın.
- Toprak monolitlerinin EcoUnits'e montajı (Nisan 2022)
- Her bir EcoUnit'in teknik ve üst kısmını alt kısımdan dikkatlice kaldırın (Şekil 2G). Alt kısmı, toprak sensörleri ile donatılmış sağlam toprak monolitlerini barındıran çelik silindirlere taşıyın.
- Her bir çelik silindiri bir süspansiyona takın, bir forklift ile kaldırın ve alt plakaya bağlı emme mumu halkasına bir konektör monte edin.
- Dört toprak monolitini 24 EkoBirimin her birinin alt kabına kaldırın (Şekil 2F), ikisi aynı bitki topluluğuna özgü toprak geçmişine (+SH) sahip ve ikisi bitki topluluğuna özgü toprak geçmişine (-SH) sahip değildir. Toprak sensörlerinin kablolarını topraklama kabının açıklıklarından geçirin.
- Çelik silindirleri vidalarla alt kısma sabitleyin ve ardından her silindirin su emme mum halkalarını önceden takılmış konektör aracılığıyla EcoUnit'in su emme sistemine bağlayın.
- Toprak monolitleri ile donatılmış konteyneri bir salona (24 m x 24 m) taşımak için forklifti kullanın.
- Her bir EcoUnit'in teknik ve üst parçalarını (alt birimler arasındaki iç duvarlarla birlikte [Şekil 2K]) dikkatlice alt parçanın üzerine yerleştirin.
- 24 EcoUnit'in tümünü, her biri dört EcoUnit'ten oluşan iki gruptan oluşan ve toplam altı blok oluşturan üç sıra halinde düzenleyin. Her sıradaki bloklar arasında 6 m ve sıralar arasında 8,2 m'lik bir merkezden merkeze mesafe olduğundan emin olun. Her blokta, dört bitki çeşitliliği seviyesini (1, 2, 3 ve 6) rastgele olarak dört EcoUnits'e atayın ve türlerin mümkün olan her yerde tüm EcoUnits'ler arasında eşit bir şekilde dağılmasını sağlayın.
2. Bitkiler: Hazırlama ve yetiştirme kurulumu
- Tür ve tohum materyali seçimi
- Jena Deneyi tür havuzundan aşağıdaki altı bitki türünü seçin: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) ve Ranunculus acris L. (Ranunculaceae).
- Her tür için, iki farklı tohum kaynağından gelen tohum materyali seçin:
- 2010'dan beri Jena Deneyi'nin TBE arazilerinde yetişen bitkilerden elde edilen tohumları kullanın (bitki geçmişi ile +PH).
- 2010 yılında TBE'yi başlatmak için kullanılan ve bölgesel bir tohum üreticisinden alınan orijinal tohum materyalini kullanın (bitki geçmişi olmadan, -PH).
- Yüzey hazırlığı (Şubat 2022)
- Jena Deney sahasında seçilen parsellerin her birinden arsaya özgü toprak toplayın. Toprağı 20 L'lik plastik kutulara doldurun ve bitki yetiştirme için kullanılana kadar 4 °C'de saklayın.
- Her arsaya özgü toprağı 4 mm'lik bir ağ ile eleyin. Elemeden önce dört çıplak zemin parselinden toprağı karıştırın.
- İstenmeyen biyotayı çıkarmak için kuvars kumunu paslanmaz çelik kaplara aktarın ve 200 °C'de 4 saat kurutma fırınında ısıtın.
- Parsele özgü toprak ve kuvars kumu hacimce 3:1 oranında karıştırın ve toprak-kum karışımını plastik bir kürek kullanarak çok saksı plakalarına doldurun (toplam n = 152).
- Her bir çok amaçlı tencere plakasını ayrı ayrı etiketleyin ve gündüz-gece döngüsü 16 saat/18 °C ve 8 saat/12 °C olan, %60-%70 bağıl nem (RH) arasında orta derecede nem sağlayan bir seraya yerleştirin.
- Plakaları talep üzerine sulayın ve toprak tohum bankalarının çimlenmesine izin vermek için iki hafta boyunca çıplak tutun. İstenmeyen fideleri çıkarmak için tüm plakaları iki kez ayıklayın.
- Ekim kampanyası (Mart-Nisan 2022)
- Türe özgü çimlenme süresine göre ekim sırasını aşağıdaki gibi belirleyin:
- Diğer bitkilerden 2 hafta önce R. acris ekin
- P. lanceolata ve L. vulgare'yi A. odoratum, D. glomerata ve H. lanatus otlarından 1 hafta önce ekin.
- R. acris dışındaki tüm türleri, saksı başına iki veya üç tohum olacak şekilde çok saksılı plakalarda doğrudan parsele özgü toprak-kum alt tabakasına (3:1) ekin. Başarılı bir çimlenmeden sonra, yaylı çelik cımbız kullanarak tüm türleri tek fidelere inceltin.
- Petri kaplarındaki R. acris tohumlarını, bir gibberellik asit çözeltisi (1000 mg) ile nemlendirilmiş filtre kağıdı üzerinde ön işlemden geçirin. L−1) uyku halini kırmak için (Şekil 2D). Tohumları 24 saat kuluçkaya yatırın.
- R. acris tohumlarını çimlenene kadar demineralize su (VE) ile nemlendirilmiş filtre kağıdına aktarın. Tohumlar kök aşamasına ulaştığında, fideleri yaylı çelik cımbız kullanarak hazırlanan çok saksı plakalarında arsaya özgü toprak-kum alt tabakasına (3:1) delin.
- Tüm bitki bireylerini talep üzerine deiyonize su ile sulayın ve iDiv Ecotron'a taşınana kadar serada tutun (Şekil 2E-H)
- Türe özgü çimlenme süresine göre ekim sırasını aşağıdaki gibi belirleyin:
- Dikim kampanyası (Mayıs 2022)
- Aşağıdaki özelliklere sahip tüm toprak monolitleri için bireysel dikim şemaları tasarlayın:
- Bitki toplulukları içinde tür başına dengeli sayıda birey sağlayın.
- Her bitki, birey ve komşusu arasında 6 cm'lik bir mesafe bırakın.
- Dikim modelini EcoUnits'te rastgele hale getirin, ancak alt birimler içinde sabit tutun.
- Her bir bitki bireyinin toprak monolitleri üzerindeki tam konumunu işaretlemek için özel yapım bir dikim şablonu kullanın. Her türe belirli bir renk atayarak işaretlemek için farklı renkli plastik kürdan kullanın. İşaretledikten sonra şablonu çıkarın (Şekil 2I).
- Önceden yetiştirilmiş bitkileri, 4 cm çapında (toplam 5280 bitki bireyi; Şekil 2J).
- Aşağıdaki özelliklere sahip tüm toprak monolitleri için bireysel dikim şemaları tasarlayın:
3. Deneyin seyri
- Üç haftalık kuruluş aşaması (Mayıs 2022):
- İlk ekimden sonraki 2 hafta içinde ekim kampanyasından sağ çıkamayan tüm bireyleri değiştirin (n = 124 [% 2.35]).
- Işıkları açın ve aydınlatma rejimini 16/8 saat gündüz-gece döngüsüne ayarlayın. Deneyin başlangıcında ilkbaharın sonlarında ve yaz aylarında bölgesel gün uzunluğunu çoğaltmak için, ışıkları bir saat içinde %100'den %75'e, ardından bir sonraki saat içinde %0'a kısarak alacakaranlığı simüle edin (%100 yoğunluk: ~370 μmol/(m²·s)). Bu karartma düzenini tersine çevirerek şafağı simüle edin.
- Bir toprak nemi ölçüm kiti kullanarak üst toprak nemini hacimce %20'ye (± %3) eşitleyin.
- İlk sulamayı her alt birim için her 12 saatte bir 450 mL'ye ayarlayın.
- Deney boyunca sıcaklık ve nemi izlemek için hava ve toprak sensörlerini bağlayın.
- Deneysel aşama (Haziran-Ekim 2022)
- Doğal mevsimselliği takiben, yaz sonundan sonbahara kadar olan bölgesel gün uzunluklarını hesaba katmak için Ağustos'tan Ekim'e kadar her 2 haftada bir gün uzunluğunu tam bir saat kısaltın.
- Bitkinin su taleplerine göre ayarlayarak ilk sulamayı Temmuz ayında her 12 saatte bir 650 mL'ye ve Ağustos ayında her 12 saatte bir 750 mL'ye yükseltin.
- Toprak yapısındaki rahatsızlığı en aza indirirken bitki yoğunluğunu korumak için cımbız kullanarak kotiledon aşamasında istenmeyen fideleri sürekli olarak ayıklayın.
- Yaygın olarak yönetilen çayırlar için standart yönetime uygun olarak, bitkileri toprak yüzeyinin 3 cm yukarısından makasla keserek iki yer üstü biyokütle hasadı gerçekleştirin.
Sonuçlar
Bitki ve toprak tarihinin biyoçeşitlilik-ekosistem işleyiş ilişkileri üzerindeki bağımsız ve etkileşimli etkilerini test etmede bu yaklaşımın etkinliğine ilişkin ilk bilgileri sağlamak için, ilk olarak JenaTron Deneyi'nin 3 haftalık kuruluş aşamasından sonra iki temsili EkoBirimin fotoğraflarını değerlendirdik, burada tedavi etkileri hızla görünür hale geldi (Şekil 3). Bitki topluluğu boyu ve rengindeki tedaviye özgü farklılıkların yanı sıra (Şekil 3A), R. acris'in çiçeklenme zamanındaki tedaviye özgü farklılıkları da tanıdık. Spesifik olarak, bitki geçmişi olmayan tohumlardan yetiştirilen bitkilerin, Jena Deneyi'nin topluluğa özgü bitki geçmişine sahip tohumlardan yetiştirilen bitkilerden daha erken bir çiçek başlangıcına sahip olduğu görülmüştür (Şekil 3B).
iDiv Ecotron'da yeni kurulan toplulukların orijinal tarla topluluklarını doğru bir şekilde yansıtıp yansıtmadığını değerlendirmek için, JenaTron Deneyi ve TBE grafikleri arasındaki nihai bitki gelişiminin bir göstergesi olarak türe özgü vejetatif bitki boyunun karşılaştırmalı bir analizi yapıldı. JenaTron Deneyi'nde, bitki boyu, Temmuz 2022'nin sonundaki ilk hasat kampanyasından hemen önce, 24 topluluğun her birinde ve tedavi kombinasyonlarının her birinde bitki türü başına üç bireyin en yüksek vejetatif yaprağının ortalama değeri olarak belirlendi. TBE'de, Temmuz 2012'de vejetatif bitki boyu, bitki türü ve parsel başına üç bireyin en yüksek vejetatif yaprağının ortalama değeri olarak belirlenmiştir. iDiv Ecotron'dan alınan bitki boyu ölçümleri, Jena Deneyi saha çizimlerinden elde edilenlerle güçlü bir korelasyon sergilemektedir (Ek Şekil 1).
Veri analizi için daha fazla vaka çalışması sağlamak için, iDiv Ecotron'daki vejetatif bitki boyu daha ayrıntılı olarak araştırılmıştır. Tür ve topluluk düzeyinde analizlere odaklandık ve bitki tarihi, toprak tarihi ve bitki çeşitliliğinin vejetatif bitki büyümesini etkileyip etkilemediğini test ettik. Bunun için doğrusal karma efekt modelleri (LMM) kullandık ve sonuçları ANOVA (tip-I kareler toplamı; ayrıntılı ANOVA sonuçları için Ek Tablo 1'e bakınız) aracılığıyla özetledik. Parsel düzeyinde, yanıt değişkenleri ortalama bitki vejetatif yüksekliği ve bitki boyunun değişim katsayısıydı (CV = sd/ortalama 100). Sabit etkiler arasında bitki çeşitliliği (sayısal), bitki ve toprak tarihi tedavileri ve bunların etkileşimleri yer aldı. Rastgele efektler, Ecotron salon bloğu içinde iç içe geçmiş EcoUnit'i içeriyordu. Tür düzeyinde, ayrıca türleri ve bunların bitki çeşitliliği ve tarih tedavileri ile etkileşimlerini sabit terimlerle dahil ettik. Veri dönüşümleri (bitki boyu için log ve yükseklik için karekök (CV) model varsayımlarının karşılanmasını sağladı. Analizler R (Versiyon 4.3.1)42 ve LMM'ler için nlme paketi43 kullanılarak gerçekleştirilmiştir. Sonuçlar, bitki boyunda önemli tür farklılıkları gösterdi ve otlar forblardan daha uzun sürdü (Şekil 4, Ek Şekil 2). Tüm türler arasında toprak tarihinin bitki boyu üzerinde pozitif etkisi olduğu (F(1,66) = 11.11, P = 0.001), bitki tarihi ve çeşitliliğinin ise anlamlı bir etkisi olmadığı (sırasıyla F(1,66) = 0.22, P = 0.64 ve F(1,17) = 1.52, P = 0.23; Şekil 4). Topluluk düzeyinde, bitki çeşitliliğinin boy üzerinde hiçbir etkisi yoktu (F(1,17) = 0.01, P = 0.91; Şekil 5A) ancak topluluklar içinde bitki boyu CV önemli ölçüde artmıştır (F(1,17) = 14.29, P = 0.002; Şekil 5B). Bitki veya toprak geçmişinin bitki boyu CV üzerinde anlamlı bir etkisi bulunamamıştır (F(1,68) = 0.55; P = 0.46; F(1,68) = 0.09, P = 0.76; Şekil 5). Verileri ve R betiğini Jena Experiment veritabanına (https://doi.org/10.25829/QN9R-J839) yükledik.

Şekil 1: JenaTron deneyinin kurulumu. (A) Toprak Tarihi (SH), Jena Deneyi'nden (JE) 96 sağlam toprak monolitinin kazılmasıyla oluşturulmuştur, bunların yarısı (n = 48) 12 yıl boyunca parsele özgü bir topluluğu barındıran 23 parselden elde edilmiştir (+SH), diğer yarısı (n = 48) ise 2002'deki Jena Deneyi'nin başlangıcından bu yana bitki örtüsü içermeyen dört çıplak zemin parselinden elde edilmiştir (-SH). (B) Bitki tarihi (PH), altı bitki türünün her biri için iki tohum kaynağı kullanılarak oluşturulmuştur: 2010 yılından bu yana, monolitlerin Jena Deneyi'nde kazıldığı aynı parsellerde yetiştirilen bitkilerden toplanan tohumlar (+ PH) ve 2010 yılında bu toplulukları tarlaya ekmek için kullanılan orijinal tohumlar (-PH). (C) Bitki geçmişi ve toprak geçmişi, farklı bitki çeşitliliği seviyelerinde (1, 2, 3 ve 6) her bir bileşim için bağımsız olarak çaprazlandı, bu da iDiv Ecotron'un her bir EcoUnit'inde dört işlemle sonuçlandı: (1) + SH / + PH, (2) + SH / -PH, (3) -SH / + PH ve (4) -SH / -PH. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.

Resim 2: Almanya, Bad Lauchstädt'taki Helmholtz Çevre Araştırmaları Merkezi'nin (UFZ) Araştırma İstasyonunda bulunan iDiv Ecotron. (A) Arazide toprak monolit kazı ekipmanları, (B) Arazide toprak monolit kazısı, (C) Arazide kazı çukuru, (D) Serada gibberellik asit çözeltisi ile nemlendirilmiş filtre kağıdı üzerine petri kaplarda Ranunculus acris tohum materyalinin hazırlanması, (E) Serada çok saksı plakalarında parsele özgü toprak substratına sahip bitkilerin ön yetiştiriciliği, (F) iDiv Ecotron salonundaki EcoUnits, (G) Teknik ekipmana sahip bir deney ünitesinin ("EcoUnit") şematik tasviri (Eisenhauer ve ark. (2019)23 ve Schmidt ve ark. (2021)38), (H) JenaTron Deneyinde dikilecek tüm bireylerin bulunduğu plakalar) iDiv Ecotron'a taşındıktan sonra, (I) Bir dikim şablonu ile yapılmış bir toprak monoliti üzerinde tüm bitki bireyleri için dikim konumlarının türe özgü olarak işaretlenmesi, (J) Bitki bireylerinin ampul ekiciler kullanılarak bir toprak monoliti üzerine dikilmesi, (K) İç duvarlı bir EcoUnit'te dört lizimetre. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.

Şekil 3: Her biri bitki ve toprak tarihinin tüm tedavi kombinasyonlarında bir topluluğu barındıran 24 EkoBirimin iki temsilcisi. (A) Topluluk bitki örtüsü yüksekliği ve renginde tedaviye özgü farklılıklar gösteren 3 tür karışımına (A. odoratum, H. lanatus ve P. lanceolata) sahip Eko Birim. (B) Çiçeklenme zamanındaki bitki tarihine bağlı farklılıkları gösteren R. acris'in monokültürüne sahip EcoUnit. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
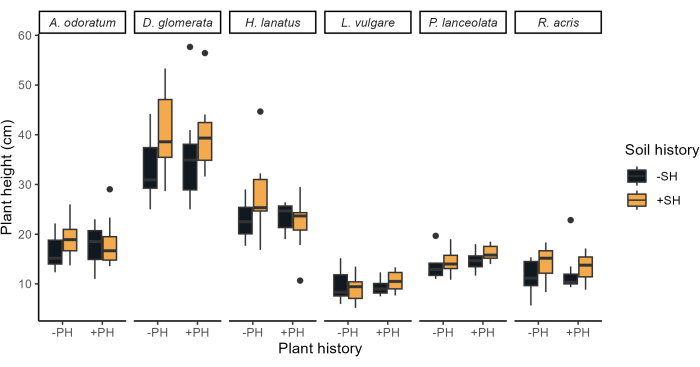
Şekil 4: Temmuz 2022'deki ilk hasattan önce altı otlak bitkisi türünün bitki ve toprak tarihinin vejetatif bitki boyu (cm) üzerindeki etkileri. Türler, fonksiyonel gruplar içinde alfabetik olarak listelenmiştir (otlar ve ardından forbs). Bitki geçmişi işlemleri (+PH/-PH) x eksenindedir ve toprak geçmişi (+SH/-SH) kutu çizimlerinde renk kodludur (sarı/siyah). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
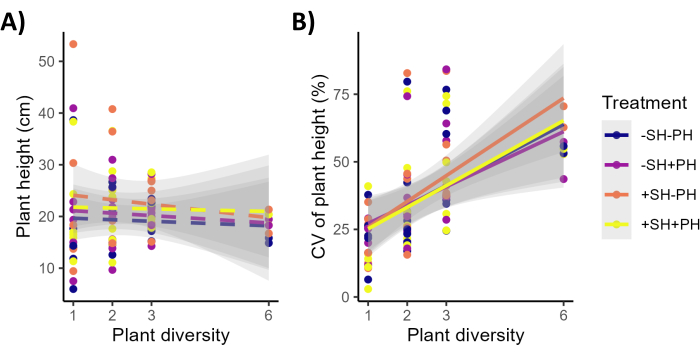
Şekil 5: Tür zenginliğinin komünite ortalaması ve vejetatif bitki boyundaki değişim üzerindeki etkileri. (A) Topluluk ortalaması. (B) Vejetatif bitki boyundaki değişim. Bitki tarihi için (+PH/-PH), toprak tarihi için (+SH/-SH). Bitki boyu değişimi (CV) alt birim başına gösterilir. Kesikli çizgiler önemli olmayanları, düz çizgiler ise bitki çeşitliliği üzerindeki önemli etkileri temsil eder. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tablo 1 JenaTron Deneyindeki bitki toplulukları. Seçilen tüm bitki türlerinin monokültürleri (n = 6); 2-tür karışımları (n = 9); Hepsi farklı bileşimlere sahip 3 tür karışımları (n = 7); ve 6 tür karışımının iki özdeş kopyası (n = 2). Bu Tabloyu indirmek için lütfen buraya tıklayın.
Ek Şekil 1: Türlerin ortalama bitki boyu. (A) JenaTron Deneyi parsellerinde (Temmuz 2022) ve tarlada (B) TBE parsellerinde (Temmuz 2012) türlerin ortalama bitki boyu. Panel A'ya sadece bitki geçmişi ve toprak geçmişi ile yapılan muameleden elde edilen veriler dahil edildi. JenaTron Deneyi'nde bitki boyu ile tarla arazileri arasında anlamlı bir korelasyon vardır (Pearson korelasyonu r(49) = 0.45, p = 0.0008). Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 2: Bitki ve toprak tarihi uygulamalarının, farklı bitki çeşitliliği (SR) seviyelerindeki altı bitki türünün vejetatif bitki boyu (cm) üzerindeki etkileri. Lejant sembolleri +PH ve -PH, bitki geçmişi olan ve olmayan tedavileri temsil ederken, +SH ve -SH sırasıyla toprak geçmişi olan ve olmayan tedavileri ifade eder. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 1: ANOVA, bitki çeşitliliğinin (tür zenginliği, SR), toprak tarihinin (SH) ve bitki tarihinin (PH) hem tür düzeyinde hem de parsel düzeyinde bitki boyu üzerindeki etkilerini değerlendiren doğrusal karma etki modellerinden elde edilen sonuçlardır. Her terim için F değerleri ve p değerleri raporlanır. Not: numDF ve denDF, her model terimi için pay ve payda serbestlik derecelerini temsil eder. 0.05< P değerleri, bitki boyu üzerinde istatistiksel olarak anlamlı bir etkiye işaret etmektedir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2: Yer üstü ve yer altı ölçümleri, yanıt değişkenleri ve yöntemler. Bitki tarihinin ve toprak tarihinin bir bütün olarak ekosistemler için BEF ilişkileri üzerindeki bağımsız ve etkileşimli etkilerini incelemek için JenaTron Deneyi'nde yürütülen yer üstü ve yer altı ölçümleri, yanıt değişkenleri ve yöntemlerden oluşan bir spektrum. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
JenaTron Deneyi ile, BEF ilişkilerine ilişkin mekanik anlayışımızı geliştirmek için Jena Deneyi saha sitesi 32,33'e tamamlayıcı bir deneysel yaklaşım sunuyoruz. Saha Deneyi, toprak tarihinin ve bitki tarihinin gerçekçi çevresel koşullar altında ekosistem işleyişi üzerindeki uzun vadeli etkilerini, uzun yıllar boyunca tekrarlanan ölçümlere izin veren büyük, bozulmamış arazilerle incelememize olanak tanır. Monokültürlerden 60 türe kadar iyi kurulmuş bir bitki çeşitliliği gradyanı boyunca büyük bir tür havuzundan rastgele seçilen bitki türleri kombinasyonları, türe özgü etkileri mümkün olduğunca dışlayarak çeşitlilik etkilerini belirlemeye yardımcı olur32,33. Bununla birlikte, burada açıkça Jena Deneyi'nin bir parçası olarak 'ΔBEF Deneyi'ne atıfta bulunan Saha Deneyi (daha fazla ayrıntı için bkz. Vogel ve ark. (2019)29), toprak tarihini ve bitki tarihini birbirinden ve hava dalgalanmaları, doğal rahatsızlıklar ve diğer organizmalarla etkileşimler gibi çeşitli dış faktörlerin potansiyel etkilerinden tamamen bağımsız olarak araştırmada sınırlıdır29. Bu noktada, Ecotron deneylerini kullanmanın tamamlayıcı yaklaşımı BEF araştırmasının odak noktasına gelmektedir. Ecotron deneyleri, yalnızca birkaçını veya hatta tek bir türü inceleyen ve böylece saha deneylerinin ve hatta gerçek dünyanın yüksek karmaşıklığını azaltan küçük ölçekli, kısa vadeli mikrokozmos deneyleri arasında önemli bir bağlantıyı temsil eder34,38. Bu nedenle, Ecotron deneylerinin temel amacı, doğanın tüm karmaşıklığını taklit etmek değil, basitleştirilmiş ancak biyolojik olarak anlamlı ekosistemler yaratmaktır. Bu, gerçek dünyada meydana gelen biyolojik süreçlerin ve etkileşimlerin hepsini, ancak elbette hepsini olmasa da daha iyi anlamayı sağlar34,37. Ayrıca, bir Ecotron'un kapalı sistemleri, genellikle sahada kolayca incelenemeyen akıların ve süreçlerin incelenmesine izin verir35.
Önceki çalışmalarda deneysel tekniğin çeşitli modifikasyonları kullanılmış ve iDiv Ecotron tesisinin önemli uyarlanabilirliğinin altını çizmiştir. Örneğin, 2018'de gerçekleştirilen "Böcek Armageddon" deneyi44, yer üstü iç duvarların kaldırılması ve yer altı diseksiyonunun çelik silindirlerle yeniden yapılandırılmasını içeriyordu. Bunun yerine, yer altı konteynerleri tamamen bir toprak-kum karışımı ile dolduruldu ve EcoUnit başına 1,5m2'lik bir toprak yüzey alanı boyunca 12 Avrupa bitki türünden oluşan otlak topluluklarının kurulmasını kolaylaştırdı. Bu deneysel tasarım, araştırmacıların omurgasız biyokütle düşüşünün Orta Avrupa otlak ekosistemleri içindeki ekosistem işlevleri ve hizmetleri üzerindeki etkilerini araştırmalarını sağlayarak, yer üstü omurgasızların iki farklı bolluk seviyesinin tanıtılmasına izin verdi. Bir başka açıklayıcı örnek, 2020'de gerçekleştirilen ve gece ışık kirliliğinin bitki çeşitliliği ve performansı45 üzerindeki etkilerini ve ayrıca toprak toplulukları ve işlevleri üzerindeki etkisini araştırmak için ışık rejiminde bir değişiklik gösteren "EcoLux" deneyidir46. İleriye baktığımızda, daha fazla değişiklik potansiyeli önemli olmaya devam ediyor. 2026 için planlanan yaklaşan "ResCUE" deneyi, iklim aşırılıkları altında bitki çeşitliliği ve ekosistem istikrarı arasındaki ilişkileri incelemeyi amaçlıyor26. Bu deney, iDiv Ecotron'da kurulan bir otlak bitki çeşitliliği gradyanı boyunca artan sıcaklıkların yanı sıra azaltılmış yağışları simüle ederek, doğal ortamlarda tekrarlanması zor bir çevresel koşul olan standartlaştırılmış bir sıcak kuraklık uygulayacaktır. Çalışma, kontrollü iklimsel aşırı olay26'ya yanıt olarak çoklu ekosistem işlevlerinin direncini ve geri kazanımını değerlendirmeye odaklanacaktır.
Bununla birlikte, saha deneyleri ve küçük ölçekli mikrokozmos deneyleri arasında köprü kurmak için Ecotron tesislerinin kullanılması, çoğunlukla nispeten küçük bir mekansal ölçek, düşük sayıda kopya, daha düşük biyolojik karmaşıklık ve doğal iklim değişkenliğinin temsil edilmemesi gibi sınırlamaları da beraberinde getirir37. Ayrıca, iDiv Ecotron tesisi, kışlar gibi her türlü iklim senaryosunu simüle edemez ve bu da tek tek bitkileri birkaç nesil boyunca gerçekçi bir yıllık döngüde inceleme yeteneğini sınırlar. Bu nedenle, daha önce de belirtildiği gibi, Ecotron çalışmalarını, diğer deneysel yaklaşımlardan elde edilen sonuçlarla birlikte nihai olarak düşünülmesi gereken tamamlayıcı araştırma yaklaşımları olarak düşünmek çok önemlidir37. Bununla birlikte, iDiv Ecotron tesisi bize, kontrollü çevre koşulları altında bozulmamış toprak monolitlerini incelemek, farklı bitki topluluğuna özgü geçmişleri olan bitkileri, farklı bitki topluluğuna özgü geçmişleri olan topraklarla ortogonal olarak çaprazlamak ve bunların ekosistem işleyişi üzerindeki etkilerini incelemek için eşsiz bir fırsat sunuyor ki bu, tarla koşullarında elde edilmesi zor olan bir bitki çeşitliliği gradyanı boyunca23, 35. Ek olarak, teknik, tarlada kolayca elde edilemeyen kontrollü çevre koşulları altında, hem yer üstünde hem de yer altında bitkilerin bir bütün olarak incelenmesine izin verir. Son olarak, JenaTron Deneyi'nde, her bir türün eşit oranlarda temsil edildiği eşit toplam bitki yoğunluklarını sağlamak için ekilen (ekilmek yerine) bitki toplulukları oluşturulmuştur. Buna karşılık, ekilen topluluklarda, türler genellikle farklı oranlarda kurulur ve bazı hedef türler tamamen kurulamayabilir veya çok düşük bollukta kalabilir.
Sunulan protokolün tekrarlanabilirliğini sağlamak için, uygulama sırasında birkaç kritik adım titizlikle dikkate alınmalıdır: (1) Toprak monolit kazısı: iDiv Ecotron tesisinin önemli bir avantajı, kontrollü çevre koşulları altında önemli sayıda bozulmamış toprak monolitinin kopyasını oluşturabilmesidir. Toprak monolitlerinin bütünlüğünü sağlamak için, toprak monolitinin çıkarılması için optimum tarla koşullarının korunması esastır. Spesifik olarak, aşırı toprak nemi, toprak kolonunun sıkışmasına neden olabilirken, çok kuru veya donmuş topraklar çatlak oluşumuna neden olabilir. Monolitin bu faktörler nedeniyle tehlikeye girdiği durumlarda, kazı işleminin tekrarlanmasını gerektirecek şekilde atılmalıdır. (2) Tür seçimi: Açıklanan protokol, ana deneyle örtüşmeye, otların ve çalılıkların dengeli bir temsiline ve farklı kaynak kullanım stratejilerini (örneğin, bitki fenolojisi) inceleme olasılığına dayalı olarak seçilen TBE'nin altı otlak bitkisi türünü kullanır41. Bir biyoçeşitlilik deneyi için, altı tür düşük bir tür sayısıdır ve diğer özellik kombinasyonlarına sahip diğer türlerin seçimi farklı deneysel sonuçlara yol açabilir ve dikkatlice düşünülmelidir. (3) Bitki yoğunluğu ve tüm türlerin eşit oranları: JenaTron Deneyi düzeneğinin dikkate değer bir avantajı, bitki topluluklarının eşit toplam bitki yoğunlukları ile kurulması ve her türün aynı sayıda bireyle temsil edilmesidir. Tutarlı bitki yoğunluğu ve eşit ekim oranlarının sağlanması, bireysel türlerin farklı bir şekilde kurulmasıyla ilişkili kafa karıştırıcı etkileri önlediğinden, deneysel tekrarlanabilirlik için çok önemlidir. Bu nedenle, deney tasarımını korumak ve güvenilir sonuçlar elde etmek için bitki yoğunluğunun hassas kontrolü esastır.
Bahsedilen en kritik adımların dikkate alınmasına özel önem verilerek protokolün ardından JenaTron Deneyi'nin başlatılmasının ardından, bitki topluluğunun boyu, rengi ve çiçeklenme zamanı üzerindeki fark edilebilir tedavi etkileri hızla ortaya çıktı. JenaTron ve TBE arasındaki türe özgü vejetatif bitki yüksekliklerinin müteakip karşılaştırmalı analizleri, iDiv Ecotron'da kurulan toplulukların gerçekten de sahadaki orijinal topluluklara benzediğini açıkça doğruladı. Veri analizi için daha fazla vaka çalışması sağlamak için, JenaTron deneyindeki vejetatif bitki boyunu daha ayrıntılı olarak analiz ettik. JenaTron'daki türe özgü vejetatif bitki yüksekliklerinin analizleri, tüm hedef türlerin başarılı bir şekilde kurulduğunu doğruladı ve türler ve fonksiyonel gruplar arasında önemli farklılıklar olduğunu ortaya koydu. Jena Deneyi47'deki otların diğer fonksiyonel gruplardan daha uzun büyüdüğü bilindiği için bu sonuç beklenmektedir. Türler arasında toprak tarihinin önemli bir olumlu etkisi tespit edildi, bu da önceki toprak koşullarının Ecotron'da bitki büyümesini şekillendirdiğini, potansiyel olarak daha önce bir bitki topluluğunu barındıran topraklardan (çeşitlilik seviyesinden bağımsız olarak) gelen olumlu geri besleme etkileri ve bitki örtüsü içermeyen topraklardan gelen olumsuz geri bildirimler tarafından yönlendirildiğini gösteriyor. Toprak geçmişlerinin biyotik ve abiyotik özellikleri farklı görünmektedir, bu da bitki topluluğuna özgü geçmişi olan topraklardaki bitkilere, bu ilgili geçmişi olmayan topraklardaki bitkilere göre bir avantaj sağlar, çünkü bitki boyu ışık için rekabet etme yeteneklerinde önemli bir rol oynar ve bu nedenle karbon kazanımı için hayati bir özelliktir48. Buna karşılık, bitki topluluğuna özgü bitki tarihinin ortalama vejetatif boy üzerinde önemli bir etkisi bulunamamıştır, bu da toprak özelliklerinin Ecotron'un çevresel koşulları altında tohum kaynaklarından daha güçlü bir etkiye sahip olabileceğini ima etmektedir. Bununla birlikte, bu hipotezin, JenaTron Deneyi'nde ölçülen çok sayıda ekosistem fonksiyonunu araştırarak bütüncül bir şekilde test edilmesi gerekmektedir.
Ne türe ne de topluluğa özgü analizler, tür zenginliğinin ortalama vejetatif bitki boyunu etkilediğine dair kanıt sağlamadı, Saha Deneyi'nden elde edilen önceki bulgularla karşılaştırıldığında, bitki boyunun daha yüksek türlerlearttığı 49 muhtemelen daha güçlü ışık rekabetinedeniyle 47,50. Daha çeşitli topluluklardaki türler arasında daha fazla tamamlayıcılık, daha yüksek bitki yoğunluklarına51 yol açabilir ve potansiyel olarak ek olarak bitki boyu büyümesini52 artırabilir. JenaTron Deneyi'nde bitki boyu üzerindeki bitki çeşitliliği etkilerinin olmaması, bu nedenle, bitki yoğunluğunda biyolojik çeşitliliğe bağlı varyasyonun olmamasından kaynaklanıyor olabilir, bu da bu mekanizmanın gerçek dünyadaki çeşitliliğe bağlı bireysel bitki performansı için potansiyel önemini gösterir52. Bununla birlikte, tür zenginliğinin bitki boyu CV üzerinde önemli bir etkisi olmuştur, bu da bitki çeşitliliğinin, çeşitliliği daha karmaşık yer üstü kanopilere bağlayan çalışmalarla tutarlı olarak, bitki örtüsünün yapısal karmaşıklığını artırdığını düşündürmektedir 49,50,52,53,54.
Birlikte ele alındığında, sonuçlar JenaTron Deneyi'nin hedef tedavilerinin başarılı bir şekilde kurulduğunu doğrulamakta ve önemli tedavi etkilerinin hızlı bir şekilde ortaya çıkması yoluyla yaklaşımımızın etkinliğine dair ilk bilgileri sağlamaktadır (Şekil 3, Şekil 4 ve Şekil 5). Ek olarak, türe özgü vejetatif bitki yüksekliğinin karşılaştırmalı analizi, iDiv Ecotron'da yeni kurulan toplulukların gerçekten de orijinal saha gözlemlerine benzediğini göstermektedir. Vejetatif bitki boyunun ayrıntılı analizi, veri analizi ve tek yanıt değişkenlerinin görselleştirilmesi için bir vaka çalışması görevi görür. Bununla birlikte, bu vaka çalışması, biyoçeşitlilik ve ekosistem işleyişi arasındaki güçlenen ilişkinin zaman içinde toprak tarihinden, bitki tarihinden veya her ikisinin bir kombinasyonundan kaynaklanıp kaynaklanmadığı, kapsayıcı hipotezi bütünsel olarak ele almada tek bir yanıt değişkenine odaklanmanın sınırlamalarını vurgulamaktadır. Bu, bitki tarihinin ve toprak tarihinin BEF ilişkileri üzerindeki bağımsız ve etkileşimli etkilerini araştırmaya yönelik son derece işbirlikçi yaklaşımımızın önemini vurgulamaktadır23. Jena Deneysel Araştırma Birimi'nin (FOR 5000) on bir alt projesi, JenaTron Deneyi'nde yakın bir şekilde çalışarak, mikrobiyoloji, kimyasal ekoloji, fenoloji, proksimal algılama, genetik, epigenetik, toprak ekolojisi ve besin ağı modellemesi gibi çeşitli araştırma alanlarında çok çeşitli yanıt değişkenlerini ölçtü. Bu bütünleştirici çaba, (1) bitki tarihi etkilerini çoklu trofik seviyeler ve ekosistem işlevleri üzerindeki toprak tarihi etkilerinden ayırmayı, (2) bitki türü zenginliğinin tüm seviyelerinde bitki türüne özgü ve etkileşime özgü etkileri araştırmayı ve (3) BEF ilişkilerinin altında yatan mekanizmaları araştırmayıamaçlamaktadır 23 (Ek Tablo 249, 50,55,56,57,58 ,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Açıklamalar
Yazarların ifşa edecek hiçbir şeyi yok.
Teşekkürler
L. Boockmann, T. Meier, N. Naderi ve L.-M.'ye olağanüstü teşekkürler. Walter'a, JenaTron Deneyi'nin tüm süresi boyunca araştırma görevlisi olarak destekleri için. Umwelt-Geräte-Technik GmbH'nin (UGT) tüm çalışanlarına, Jena Deneyi'ndeki toprak monolit kazısı sırasında gösterdikleri profesyonel ve sıcak işbirlikleri için çok teşekkür ederiz. Ayrıca C. Lauterwasser, H.-C.'ye de teşekkür ederiz. Schulz ve R. Widuwils, toprak monolit kazısında UGT'yi destekledikleri için. Jena Deneyi teknik personeli S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze ve H. Scheffler'e sahadaki destekleri ve iDiv Ecotron'daki dikim kampanyası sırasındaki gayretli yardımları için çok teşekkür ederiz. I. Merbach'a ve Bad Lauchstädt'taki Helmholtz Çevre Araştırmaları Merkezi'nin (UFZ) Araştırma İstasyonu'nun teknik personeline, özellikle O. Bednorz ve K. Kirsch'e hayati destekleri için minnettarız. A.Q. Barth ve R. Altmann'a iDiv serasındaki mükemmel işbirlikleri için teşekkür etmek istiyoruz. S. Haenzel, A. Lochner ve A. Zeuner'e yönetim, organizasyon ve laboratuvar çalışmalarındaki vazgeçilmez yardımları için çok teşekkür ederiz. Mercator Araştırmacıları J. Cavender-Bares, F. Isbell, L. Mommer ve K. Mueller'e, ayrıca yakın işbirlikçileri B. Schmid'e ve Baş araştırmacılar U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth ve J. Wolf'a JenaTron Deneyi'nin tasarlanması, tasarımı ve gerçekleştirilmesine yaptıkları önemli katkılar için teşekkür ederiz. Son olarak, mali destek için Alman Araştırma Vakfı'na (DFG) (FOR 5000) ve Alman Bütünleştirici Biyoçeşitlilik Araştırma Merkezi'ne (iDiv, Alman Araştırma Vakfı [DFG-FZT 118, 202548816] tarafından finanse edilmektedir), Leipzig Üniversitesi'ne, Friedrich Schiller Üniversitesi Jena'ya ve Max Planck Biyojeokimya Enstitüsü'ne finansal ve lojistik destek için teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Ampul ekici ( 4 cm çap) | Kent & Stowe | hırdavatçı | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ kaynak=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE |
| Konektör emme mumu | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Yetiştirme tepsisi ( drenaj olmadan) | Bonsai-alışveriş | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| Demineralize su (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Koli bandı | T-Rex | hırdavatçı | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| Plastik kutular (20 L) | Auer Ambalaj | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Filtre kağıdı (150 mm çap) | Lmutlak | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| Forklift | hirsch | YENİ-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Gibberellik asit ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| Ölçüm sürahileri ( 3000 mL) | Hü nersdorff | hırdavatçı https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ | ; |
| Ölçüm sürahileri ( 5000 mL) | Hü nersdorff | hırdavatçı https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ | ; |
| Metal elekler (4 mm gözenek boyutu) | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| Mini kazıcı | Zeplin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Harç küvetleri ( 90 L) | Gripline | hırdavatçı | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| Multipot plakaları (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| Petri kapları (150 mm çap) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| Dikim şablonu (ısmarlama) | UFZ | n.a. | Almanya'nın Leipzig kentindeki Helmholtz Çevre Araştırmaları Merkezi'nin (UFZ) atölyesi tarafından, özellikle iDiv Ecotron metal silindirlerinin dikilmesi için üretilen dikim şablonu. |
| Plastik folyo | Cargo Point | hırdavatçı | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| Plastik kürekler | Hü nersdorff | hırdavat dükkanı | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| Basınçlı püskürtücü (1500 mL) | Bü rkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| Kuvars tozu | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| Kuvars kumu HQS (0,3 - 0,8 mm boyut) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| Conta tapaları | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Tohum materyali | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| Toprak nemi ölçüm kiti (ML3 ThetaKit) | Delta-T Cihazları | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| Toprak monoliti ekstraksiyonu cihaz | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Toprak sensörleri ( SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| Yaylı çelik cımbız (105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| Paslanmaz çelik bıçak (ısmarlama) | UFZ | n.a.Helmholtz | Çevre Araştırmaları Merkezi (UFZ), Bad Lauchstä atölyesi tarafından üretilen paslanmaz çelik bıçak; dt, Almanya, özellikle iDiv Ecotron metal silindirlerine toprak sensörleri yerleştirmek için. |
| Paslanmaz çelik silindir | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Stick etiketler (12 cm x 2 cm) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| Süspansiyon | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Geçici üst/alt plaka | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Kürdan | Bü Roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096A8AA& storeType=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Iwo-CRoCfWsQAvD_BwE |
| Mala | Kaufmann | hırdavatçı | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& Ağırlık _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& Ağırlık _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| Kamyon | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = tbm& utm_campaign& utm_term & gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& araç Tipi=TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& pikapYe ar=2024& teslim alma=12& pikap Gün=11& bırakmaYıl=2024& bırakma Ay=12& bırakmaGün=18& pickup Saat=10& pickupMinute=00& bırakma Saat=18& dropoffMinute=00& sürücü Yaş=26& countryOfResidence=DE |
| Cımbız | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| Su emme probları | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| Sensör kütüğü için ahşap | Konsta | hırdavatçı | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
Kaynaklar
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Yeniden basım ve izinler
