Burada, SH-SY5Y hücrelerinde okadaik asit kaynaklı Alzheimer hastalığı hücresel modeli oluşturmak ve gastrodinin oksidatif stres ile AKT/GSK-3β yol analizi yoluyla nöroprotektif etkilerini değerlendirmek için bir protokol sunuyoruz.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Araştırma makalesi
Gastrodin, Alzheimer hastalığı hücre modelinde AKT/GSK-3β sinyal değişiklikleriyle ilişkili tau hiperfosforilasyonunu hafifleter
* These authors contributed equally
Bu makalede
Özet
Özet
Alzheimer hastalığı (AD), şu anda sınırlı etkili ilaçları bulunan yaygın bir nörodejeneratif hastalıktır. Gastrodia elata'dan türetilen ana biyoaktif bileşen olarak Gastrodin (GAS), AD tedavisinde net terapötik potansiyel göstermiştir; ancak etkisinin moleküler mekanizması henüz açıklanmamıştır. Bu çalışmada, GAS'ın AD model hücreleri üzerindeki etkisinin mekanizmasını incelemeyi hedefledik. Ağ farmakolojisi, AD'de GAS'ın etkilediği hedefleri ve sinyal yollarını analiz etmek için kullanılır. Bir AD hücre modeli, insan nöroblastoma SH-SY5Y hücrelerinin Okadaik asit (OA) ile indüklenmesiyle oluşturulur. Hücre canlılığı CCK-8 testi kullanılarak değerlendirildi, SOD, MDA ve T-AOC seviyeleri ise ölçüldü. Apoptoz oranı Annexin V-FITC/PI çift boyama ile belirlendi ve apoptozla ilişkili faktörlerin ifadesi, ayrıca AKT, GSK-3β, p-Tau (Ser396) ve p-Tau (Thr181) ile RT-qPCR ve Western blotlama teknikleri kullanılarak analiz edildi. Ağ farmakolojisi analizi, GAS'ın hücresel apoptozu ve ilişkili sinyal yollarını, PI3K/AKT dahil olmak üzere, düzenleme potansiyeline sahip olduğunu göstermektedir. Deneylerimiz, GAS'ın MDA seviyelerini engelleyebileceğini, AD model hücrelerinde T-AOC ve SOD'yu artırabileceğini ve hücre apoptozunu azaltabileceğini göstermektedir. Western blotting sonuçları, GAS'ın OA'nın p-AKT (Ser473) ve p-GSK-3β (Ser9) ekspresyonuna olan inhibitör etkilerini azalttığını göstermektedir. Ayrıca, p-Tau (Ser396) ve p-Tau'nun (Thr181) aşırı ifadesini azaltır, Bax ifadesini bastırır ve Bcl-2 ifadesini artırır. GAS, OA kaynaklı oksidatif stres hasarını hafifletme ve apoptozu azaltma yeteneğini gösterir. GAS, AKT/GSK-3β sinyal yolunda değişikliklerle ilişkili olan Tau hiperfosforilasyonunu baskılayabilir ve böylece potansiyel nöroprotektif etkiler yaratabilir.
Giriş
Alzheimer hastalığı (AD), öncelikle hafıza kaybı ve bilişsel bozuklukla karakterize edilen ilerleyici bir nörodejeneratif bozukluktur ve dünya çapında en yaygın demans türünü temsil eder ve vakaların yaklaşık %60 ila %80'inioluşturur 1. AD'nin temel patogenezi hâlâ karmaşık ve henüz tam olarakaçıklanmamıştır 2. Klinik AD vakalarında gözlemlenen temel patolojik özellikler, beyin içinde Yaşlılık Plakları (SP) ve Nörofibriller Dişlerin (NFT) birikmesidir 3,4. AD'deki iki temel patolojik olayın, β-amiloid proteinin (Aβ) hücre dışı birikimiyle senil plaklar oluşturması ve hiperfosforile olmuş Tau proteininin hücre içi agregasyonu olarak nörofibrillerdüğümler 5,6,7 olduğu iyi kabul edilmiştir. Ayrıca, oksidatif stres ve nöroinflamasyon, AD 8,9,10,11'in alevlenmesine katkıda bulunabilecek ek faktörlerdir.
Küresel nüfus yaşlanma eğilimi yoğunlaştıkça, demans hastası sayısıönemli ölçüde arttı: 12,13. Ancak, AD tedavi seçenekleri sınırlı kalmaktadır ve ağırlıklı olarak memantin, donepezil ve galantamin14 gibi tek hedefli ilaçlardan oluşmaktadır. Ancak, terapötik etkileri öncelikle hastalık değiştirici değil palyatif olup, gastrointestinal bozukluklar, baş dönmesi ve bradikardi gibi bazı yan etkiler bildirilmiştir. Bu nedenle, daha güvenli ve etkili terapötik stratejilerin geliştirilmesi önemli bir araştırma önceliğiolmaya devam etmektedir 15,16. Lecanemab gibi yakın zamanda piyasaya sürülen monoklonal ilaçlar, hafif AD hastaları için yeni umut getirdi. Ancak yüksek maliyetleri ve sınırlamaları, önemli terapötik talebi karşılayamıyor. AD'nin önlenmesi ve tedavisi hâlâ önemli bir zorluk teşkiletmektedir 17,18. Çeşitli çalışmalardan elde edilen bulgular, tıbbi bitkilerin, özellikle geleneksel Çin ilaçlarının, AD gibi nörodejeneratif bozukluklarda yer alan birden fazla yolu hedefleyen çok bileşenli etkiler gösterdiğini göstermiştir. Çalışmalar, Ganoderma lucidum'dan alınan aktif bileşiklerin AD farelerinin beyin dokusundaki oksidatif hasarı hafifletebileceğini, apoptozu engelleyebileceğini, hipokampus nöron nekrozunu azaltabileceğini ve bilişsel bozuklukları iyileştirebileceğinigöstermiştir 19. AD araştırmalarında, Bao ve ark. AD ile ilişkili iltihaplanmada Astragaloside IV'nin temel hedeflerini belirlemek için ağ farmakolojisini kullanmıştır. Bulguları, epidermal büyüme faktörü reseptörü (EGFR) ve interlökin-1β (IL-1β) kritik hedefler olduğunu, nörodejeneratif hastalıkların klinik tedavisi için potansiyel terapötik adaylar ve hastalık hedeflerisağladığını ortaya koymuştur 20. Dartigues ve ark.21, Ginkgo biloba ekstraktını analiz etti ve yaşlı bireylerde demans ve ölüm riskini azaltmada faydalı etkileri olduğunu gösterdi. Ginkgo biloba ekstraktı ile tedavi edilen hastalarda daha düşük ölümoranı 22 gösterdi.
Gastrodia elata, Orchidaceae familyasına ait olup, yenilebilir ve tıbbi olarak kabul edilen geleneksel bir Çin bitkisidir. Gastrodia elata'nın köksapı Gastrodin (GAS), gastrodia polisakkaritleri ve alkaloitlerde bolca bulunur. Son farmakolojik araştırmalar, bu aktif bileşiklerin hafıza ve bilişsel iyileştirme etkilerine, ayrıca nöroprotektif özelliklere ve uykusuzluk ile baş dönmesi tedavisinde etkinliğine sahipolduğunu göstermiştir 23. Gastrodia elata'nın ana biyoaktif bileşiği, yumrudan çıkarılan ve tıbbi özelliklere sahip olan GAS'tır. GAS, aynı zamanda 4-hidroksibenzil alkol 4-O-β-d-glukozit olarak da bilinir, fenolikglikozidler 24 sınıfına aittir. GAS'ın kimyasal yapısı, 286.278 moleküler ağırlığı gösteren Şekil 1'de gösterilmiştir. Glikozidlerin ve monoglikozidlerin nispeten düşük moleküler kütlesi, kan-beyin bariyerinden etkili bir şekilde geçmelerini kolaylaştırır ve böylece GAS'ın nöroprotektif rolünün temel temelinioluşturur 25. Ayrıca, yüksek emilebilirleri etkilerini daha da artırır26. Son yıllarda, AD 27,28,29,30, Parkinson hastalığı (PD)31 ve serebral iskemi32 gibi çeşitli beyin hastalıklarının tedavisinde GAS'ın potansiyelini göstermiştir. GAS, antioksidatif, hipolipidemik, anti-inflamatuar ve yaşlanma karşıtı etkiler dahil olmak üzere geniş farmakolojik özellikleryelpazesine sahiptir 33,34. Etki mekanizması, Nrf2, NF-κB ve AMPK35 gibi birden fazla sinyal yolunu içerir. GAS, Wnt/Nrf2 yolu36'yı modüle ederek Pb kaynaklı nörolojik yaralanmanın fare modelinde nöroprotektif etkiler uygular ve ayrıca Nrf2 sinyal yolu37'nin düzenlenmesiyle nörodejeneratif bozuklukların tedavisinde anti-apoptotik bir etki gösterir. GAS ayrıca protein kinaz/ökaryot başlatma faktörü-2α (PKR/eIF2α) sinyal yolu38 aracılığıyla hipokampal BACE1 ifadesini baskılayarak AD üzerinde faydalı bir etki yaratmıştır. Ayrıca, GAS, TCDD kaynaklı NF-κB sinyal aktivasyonu üzerinde inhibitör etkiler göstererek PC12 nöronlarının apoptozunu ve astrositaktivasyonunu 39 azaltmıştır.
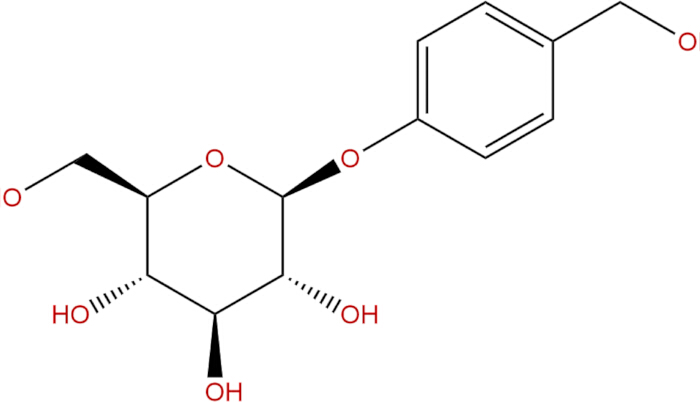
Şekil 1: GAS'ın kimyasal yapısal formülü. Bu şeklin daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Halichondria cinsine ait siyah süngerden türeyen OA, uzun zincirli yağ asitleri sınıfına girer ve İshalli Kabuklu Deniz Ürünleri Zehirinin (DSP) ana bileşeni olarak hizmet eder. Protein fosfatazların, özellikle PP1A ve PP2A'nın aktivitelerini etkili bir şekilde inhibe eder; bu da hücresel hiperfosforilasyona ve hücreselhomeostazın bozulmasına yol açar 40,41. Bu özellik, protein fosforilasyonuyla ilişkili hastalıkların araştırılması için değerli bir araç haline gelir. Bu nedenle, OA'nın kullanımı, Tau protein fosforilasyonunda değişiklikler içeren AD hücre modellerinin oluşturulmasını mümkün kılar. Bu çalışma, Gastrodia elata'nın birincil aktif bileşeni olan GAS'ın OA tarafından indüklenen AD hücre modeli üzerindeki etkisini ve mekanizmasını incelemeyi ve AKT/GSK-3β sinyal yolunu hedefleyerek AD model hücreleri üzerindeki nöroprotektif etkisini netleştirmeyi amaçlamaktadır.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
Tüm ağ farmakoloji işlemleri, Ağ Farmakoloji Değerlendirme Yöntemleri Kılavuzlarına uygun olarak yürütülmüştür. Tüm deneysel prosedürler Zhejiang Bilim Teknolojisi Üniversitesi laboratuvar yönetim yönetmeliklerine uygun şekilde gerçekleştirilmiştir.
Ağ farmakolojisi
GAS'ın potansiyel hedeflerinin tahmini: GAS'ın kanonik SMILES (PubChem CID: 1150) PubChemveritabanı 42'den alındı. SMILES yapısı SwissTargetPrediction veritabanına yüklendi (http://www.swisstargetprediction.ch/)43. Tür parametresi Homo sapiens olarak ayarlandı. Yanlış pozitif tahminleri azaltmak için olasılık değeri 0.1> olan tahmin edilen hedefler tutuldu. Tüm tahmin edilen protein hedefleri, UniProtveritabanı 43 (türler Homo sapiens ile sınırlı) kullanılarak resmi gen sembollerine standartlaştırıldı ve tekrarlanan girişler kaldırıldı.
AD ile ilgili genler, GeneCards veritabanından (https://www.genecards.org/)44,45 ve OMIM veritabanından (https://www.omim.org/)46'dan "Alzheimer hastalığı" kelimesi kullanılarak toplandı. GeneCards'ta, 10 > Relevance Score'a sahip genler seçildi. GeneCards ve OMI'den elde edilen hedefler birleştirildi, kopyalar çıkarıldı ve gen isimleri UniProt kullanılarak standartlaştırıldı.
Tahmin edilen GAS hedefleri ve AD ile ilgili genler, örtüşen hedefler elde etmek için Venny 2.1 çevrimiçi platformuna ithal edildi. Toplam 52 kesişen gen ( Bkz. Ek Tablo 1) AD'de GAS'ın potansiyel terapötik hedefleri olarak tanımlanmıştır.
Kesişen 52 hedef, PPI analizi için STRING veritabanına (https://string-db.org/)47 yüklendi. Tür Homo sapiens olarak ayarlandı ve minimum etkileşim puanı 0.4 (orta güven) olarak belirlendi. Bağlantısı kopuk düğümler gizliydi. Ortaya çıkan etkileşim verileri, Cytoscape yazılımı (sürüm 3.9.1) kullanılarak dışa aktarıldı ve görselleştirildi.
GO ve KEGG zenginleştirme analizi: 52 kesişen hedef, Metascape veritabanına (https://metascape.org/)48 ve Gen Ontolojisi (GO) ve Kyoto Gens ve Genomlar Ansiklopedisi (KEGG) zenginleştirme analizleri için yüklendi. Tür, Homo sapiens olarak belirlenmişti. Zenginleştirme kriterleri p-değeri < 0.01, minimum örtüşme ≥ 3 ve zenginleştirme faktörü > 1.5 olarak tanımlandı. KEGG yolları p-değerine göre sıralandı ve görselleştirme için en iyi 20 önemli zenginleştirilmiş yol seçildi. Zenginleştirme sonuçları çevrimiçi bir biyoinformatik platformu kullanılarak görselleştirildi.
GSK-3β'nun protein yapı dosyası RCSB PDB veritabanından alınmıştır. SDF formatındaki GAS'ın yapı dosyası PubChem veritabanından indirildi ve ardından Open Babel GUI yazılımı kullanılarak Mol2 formatına dönüştürüldü. Yukarıda bahsedilen dosyalar, AutoDock yazılımı kullanılarak hidrojen atomları eklemek, su moleküllerini çıkarmak ve yükler atanmak için işlenmiştir. İşlenen dosyalar daha sonra PDBQT formatında kaydedildi. Ligand moleküllerindeki torsiyon bağları tespit edilip işlendikten sonra, dosyalar PDBQT formatında saklandı. İki molekül arasındaki en düşük bağlanma enerjisi, AutoDock Vina yazılımı kullanılarak moleküler kenetlenme yapılarak elde edildi. Daha sonra, kenetlenme sonuçları görselleştirildi ve PyMOL kullanılarak analiz edildi.
Stok çözelti hazırlığı
OA tozu (25 μg) tamamen 1200 μL %10 dimetil sülfoksit (DMSO) ile steril fosfat-tamponlu tuzlu (PBS) ile çözünerek 25 μM stok çözeltisi oluşturuldu. Stok çözeltisi aliquote edilip -80 °C'de saklandı. Her deneyden önce, OA tam Dulbecco'nun Modifiye Kartal Ortamı (DMEM) ile (bkz. Malzeme Tablosu) istenen çalışma yoğunlaştırmalarına kadar taze seyreltilmiştir. GAS tozu (20 mg), 1,4 mL steril PBS içinde çözünür, sterilizasyon için 0,22 μm bir membrandan filtrelendi ve 50 mM stok çözeltisi olarak hazırlanarak -20 °C'de saklandı. Kullanımdan önce, stok çözeltisi tam DMEM ile belirtilen çalışma konsantrasyonlarına kadar seyreltilmiştir.
AD hücre modelinin inşası
İnsan nöroblastoma SH-SY5Y hücreleri elde edilip bu çalışmada kullanıldı ( bkz. Materyaller Tablosu). SH-SY5Y hücreleri, AD hücre modelini oluşturmak için sırasıyla 12, 24 ve 36 saat sürelerle OA gradyan konsantrasyonlarıyla (0, 10, 20, 40, 80, 160 nM) indüklendi.
Hücre canlılık testi
AD hücre modelini oluşturmak için OA'nın optimal konsantrasyon ve indüksiyon süresini belirlemek amacıyla, SH-SY5Y hücreleri farklı zaman dilimleri (12, 24 ve 36 saat) için OA gradyan konsantrasyonlarıyla (0, 10, 20, 40, 80 ve 160 nM) işlendi ve hücre canlılığı CCK-8 testi49 kullanılarak değerlendirildi. SH-SY5Y hücreleri, 100 μL tam DMEM'de kuyu başına 7,5 × 10⁻³ hücre yoğunluğunda 96 kuyu plakalarına tohumlanmıştır. Plakalar, hücrelerin tutulmasına izin vermek için %5 CO₂ ile 37 °C sıcaklıkta 24 saat boyunca kuluçka altına alındı. 24 saat süreliğine bağlandıktan sonra, her kuyuya 100 μL OA çalışma çözeltisi eklenerek toplam 200 μL hacimde 0, 10, 20, 40, 80 ve 160 nM konsantrasyonları elde edildi. Kontrol grubu (CON) OA olmadan eşit miktarda tam DMEM alırken, OA grubu belirtilen konsantrasyonlarda OA aldı. Hücreler standart kültür koşullarında 12 saat, 24 saat veya 36 saat kuluçka altına alındı. Her yoğunlaşma ve zaman noktası altı replika kuyusu ile ayarlandı. Arka plan düzeltmesi için üç boş kuyusu (sadece ortam) dahil edildi.
Hücresel oksidatif stres indeksinin belirlenmesi
Logaritmik büyüme fazındaki SH-SY5Y hücreleri 6 kuyruklu bir plakaya tohumlanmıştır. Hücre tedavisinden sonra, önceki ortam kuyulardan atıldı. Daha sonra, kuyular 4 °C'de önceden soğutulan PBS ile üç kez yıkandı. Bundan sonra, hücre lizis tamponu eklendi ve hücreler, kitin talimatlarına uygun yöntemle buz üzerinde lizleştirildi. Örneklerdeki protein içeriği, BCA protein test kiti kullanılarak nicelendirildi ( bkz. Materyal Tablosu). T-AOC, SOD ve MDA'nın faaliyetleri, ilgili test kitleriyle birlikte verilen talimatlara göre belirlenmiştir ( bkz. Malzeme Tablosu).
Hücre apoptozu tespiti
Hücre apoptozu, üreticinin talimatlarına göre Annexin V-FITC/PI çift boyama kiti (bkz. Malzemeler Tablosu) kullanılarak değerlendirildi. Kısa süreliğine, hem yüzen hem de yapışkan hücreler toplandı. Yapışkan hücreler, yapay zar hasarını önlemek için EDTA olmadan tripsin kullanılarak sindirildi ve yüzen hücrelerle birleştirildi. Hücreler iki kez soğuk PBS ile yıkanmış ve 500 μL 1× Bağlama Tamponunda 0.5–1 ×10⁻⁶ hücre yoğunluğunda yeniden süspansiyona getirilmiştir.
Daha sonra, her örnekle 5 μL Annexin V-FITC ve 5 μL Propidium İyodid (PI) eklendi, nazikçe karıştırıldı ve oda sıcaklığında karanlıkta 10–20 dakika inkübe edildi. Örnekler buz üzerine konmuş ve 1 saat içinde bir akış sitometresi kullanılarak analiz edilmiştir.
Akış sitometrik analizi için, lekelenmemiş kontroller ve tek boyalı kontroller (sadece Annexin V-FITC ve sadece PI) tazminat parametreleri ve dörtgen kapılar ayarlandı. İlk olarak enkaz ve hücre agregalarını dışlamak için ileri ve yan saçılma (FSC/SSC) kapıları uygulandı. Her örneklem için en az 10.000 olay alındı. Veriler FlowJo yazılımı kullanılarak analiz edildi.
Gerçek zamanlı nicel PCR analizi (RT-qPCR)
AG ters transkripsiyon kiti tarafından sağlanan talimatlara göre, çıkarılan RNA ters transkripsiyona tabi tutularak tamamlayıcı DNA (cDNA) üretildi ve bu DNA şablon olarak kullanılmak üzere steril suyla 10 kat seyreltildi. RT-qPCR reaksiyon sistemi, Green Master Mix (No Rox) kiti protokolüne uygun olarak hazırlandı ve analiz, floresan bir nicel PCR cihazıyla gerçekleştirildi ( bkz. Malzeme Tablosu). Elde edilen Ct değerleri işlendi ve analiz edildi, hedef genlerin ifade seviyeleri 2-ΔΔCt yöntemiyle hesaplandı; burada ΔCt, tedavi grubundaki Ct değerleri ile GAPDH arasındaki farkı, ΔΔCt ise tedavi grubundaki ve kontrol grubundaki ΔCt değerleri arasındaki farkı temsil eder. Başlangıçların listesi Ek Tablo 2'de bulunabilir.
Western blotting analizi
Hücre lizin tamponu, bir proteaz inhibitörü ve bir fosfataz inhibitörü ile birlikte 100:1:1 oranında birleştirildi. Hücreler hücresel proteinleri çıkarmak için lizize edildi. Protein konsantrasyonu BCA test kiti kullanılarak belirlendi. Proteinler (20–30 μg her şerit) %10 SDS-PAGE jellerinde 80 V ve çözücü jel için 120 V çözünürlükte ayrıldı. Proteinler, nemli transfer kullanılarak 90 dakika boyunca 300 mA'da PVDF membranlarına (0,45 μm) aktarıldı. Zar, oda sıcaklığında %5 yağsız sütle 2 saat boyunca tıkandı, ardından 4 °C'de birincil antikor (bkz. Malzeme Tablosu) ile gece boyunca kuluçka yapıldı. İkincil antikorla oda sıcaklığında 1 saat kuluçka geçirildikten sonra, zar TBST ile dört kez 5 dakika boyunca yıkandı. Bantlar, geliştirilmiş kemilyünüminesans (ECL) tespit reaktifleriyle görselleştirildi ( bkz. Materyal Tablosu) ve tespit jel görüntüleme sistemi ile gerçekleştirildi. Gri tonlu değerler, veri içgörüleri için ImageJ yazılımı kullanılarak analiz edildi.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
AD tedavisi için GAS ile ilgili hedef taraması
GAS'ın AD tedavisi hedeflerinin belirlenmesi, veritabanı aramaları ve yazılım analizini içeriyordu. İsviçre Hedef Tahmin Veritabanı 100 potansiyel hedef sunarken, OMIM ve GeneCards (10 Relevance puanı >) AD ile ilgili hedefler için sorgulandı ve toplamda 2376 potansiyel hedef ortaya çıktı. Daha sonra, Venny 2.1 çevrimiçi platformunun kullanılması, AD'de GAS için 52 potansiyel terapötik hedefin belirlenmesini sağladı (
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Son yıllarda, AD yaygınlığında küresel bir artış yaşanmıştır. Bu durum, kronik bir gelişim, geri dönüşü olmayan doğa, engellilik ve yüksek ölüm oranlarıyla karakterize edilir; bu da yaşlanan küresel nüfus bağlamında önemli bir zorluk haline gelir. Öne çıkmasına rağmen, AD'nin etiyolojisi karmaşıktır ve patogenezi ise tam olarak anlaşılmamıştır51.
Geleneksel Çin tıbbı, hastalıkların önlenmesi ve tedavisinde önemli avantajlar sunar; dikka...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarların açıklayacak hiçbir şeyi yok.
Teşekkürler
Bu araştırma, Zhejiang Bilim Teknolojisi Üniversitesi Açık Fonu, Shaoxing Biyotıp Akademisi (SXAB202007) tarafından desteklenmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 7500 Gerçek Zamanlı PCR Sistemi | APExBIO | S0080 | Apoptotik hücrelerin tespiti için kullanılır |
| A450 enzim etiketleme cihazı | Proteintech | 50599-2-Ig | WB, seyrelme 1:1000 |
| Annexin V-FITC apoptoz tespit kiti | Proteintech | 60178-1-Ig | WB, seyrelme 1:1000 |
| Anti-Bax antikoru | Proteintech | 10494-1-AP | WB, seyrelme 1:1000 |
| Anti-Bcl-2 antikor | Abcam | AB32057 | WB, seyrelme 1:1000 |
| Anti-GAPDH antikor | Proteintech | 28866-1-AP | WB, seyrelme 1:1000 |
| Anti-p-Tau (Ser396) antikoru | Biofroxx | 1172 | WB için engelleme tamponu |
| Anti-p-Tau (Thr181) antikor | Vazyme Biotech | A311-01/02 | Hücre yaşama testi için kullanılır |
| Biofroxx yağsız süt tozu | Solarbio Bilimi & Technology | D8371 | Bileşikler için çözücü |
| CCK-8 kiti | Wisent Biyoteknolojisi | 319-105-CL | Hücre kültürü için |
| Dimetil sülfoksit (DMSO) | APExBIO (ABD) | K1231 | WB algılama reaktifi |
| DMEM yüksek glukozlu ortam | Aladdin Biyokimyasal Teknoloji | G111309 | Aktif bileşik |
| ECL kemimilüminesans reaktif | Promega | A6101 | qPCR amplifikasyonu için |
| Akış sitometresi | Solarbio Bilimi & Technology | BC6410 | Lipid peroksidasyon testi |
| Gastrodin (GAS) tozu, saflık & g; 98% | MedChemExpress | HY-N6785 | Tau hiperfosforilasyonunun indükörü |
| Jel görüntüleme sistemi | Beyotime Biyoteknolojisi | C0221A | Hücreleri yıkayın |
| GoTaq qPCR Master Mix | Proteintech | SA00001-1 | WB, seyrelme 1:5000 |
| MDA test kiti (malondialdehit) | Proteintech | SA00001-2 | WB, seyrelme 1:5000 |
| Okadaik asit (OA) | ATCC | CRL-2266 | Hücre |
| PBS | Beyotime Biyoteknolojisi | S0101M | Oksidatif stres testi için |
| İkincil antikor (Keçi anti-fare IgG, HRP ile konjuge) | Solarbio Bilimi & Technology | M.Ö. 1315 | Antioksidan kapasite tespiti |
| İkincil antikor (Keçi anti-tavşan IgG, HRP ile konjuge) | Beyotime Biotechnology | R0016 | RNA çıkarımı |
| SH-SY5Y | Sigma-Aldrich | 9002-07-7 | Hücre sindirimi |
| SOD test kiti (tam süperoksit dismutaz) | Thermo Fisher Scientific | A45072 | Absorbans tespiti için çok fonksiyonlu mikroplaka okuyucu |
| Toplam antioksidan kapasite (T-AOC) kiti | Becton, Dickinson ve Şirketi | 661310 | Çok parametreli tek hücre analizi ve hücre sıralaması için. |
| Trizol reaktifi | Thermo Fisher Scientific | 4351104 | Gen İfadesi Analizi |
| Tripsin | Bio Rad | 1708195 | DNA/RNA/protein jel görüntüleme |
Kaynaklar
- Hu, X., Wang, T., Jin, F. Alzheimer's disease and gut microbiota. Sci China Life Sci. 59 (10), 1006-1023 (2016).
- Qiu, C., Du, Y. A call for action to strengthen research on population interventions against Alzheimer's disease and senile dementia. J Shandong Univ Health Sci. 55 (10), 1-6 (2017).
- Livingston, G., et al. Dementia prevention, intervention,and care: 2020 report of the Lancet Commission. Lancet. 396 (10248), 413-446 (2020).
- Li, T. F., Guo, Z. Q., Wang, Y. Abnormal ß-amyloid metabolism and Alzheimer disease. J Neurosci Ment Health. 22 (12), 904-908 (2022).
- Zheng, J., et al. Oral administration of a fusion protein between the cholera toxin B subunit and the 42-amino acid isoform of amyloid-β peptide produced in silkworm pupae protects against Alzheimer's disease in mice. PLoS One. 9 (12), e113585(2014).
- La Spada, A. R., et al. A Becn1 mutation mediates hyperactive autophagic sequestration of amyloid oligomers and improved cognition in Alzheimer's disease. PLoS Genet. 13 (8), e1006962(2017).
- Aboelwafa, H. R., El-Kott, A. F., Abd-Ella, E. M., Yousef, H. N. The possible neuroprotective effect of silymarin against aluminum chloride-prompted Alzheimer's-like disease in rats. Brain Sci. 10 (9), 628(2020).
- Tobore, T. O. On the central role of mitochondria dysfunction and oxidative stress in Alzheimer's disease. Neurol Sci. 40 (8), 1527-1540 (2019).
- Kawamoto, E. M., et al. Oxidative state in platelets and erythrocytes in aging and Alzheimer's disease. Neurobiol Aging. 26 (6), 857-864 (2005).
- Stancu, I. C., et al. Aggregated Tau activates NLRP3–ASC inflammasome exacerbating exogenously seeded and non-exogenously seeded Tau pathology in vivo. Acta Neuropathol. 137 (4), 599-617 (2019).
- Connolly, K., et al. Potential role of chitinase-3-like protein 1 (CHI3L1/YKL-40) in neurodegeneration and Alzheimer's disease. Alzheimers Dement. 19 (1), 9-24 (2022).
- Yingquan, W., Jing-Hong, L., Ruixia, J. Alzheimer disease in China (2015-2050) estimated using the 1% population sampling survey in 2015. China J Alzheimers Dis Relat Disord. 2 (1), 289-298 (2019).
- Amat-Ur-Rasool, H., Ahmed, M., Hasnain, S., Carter, W. G. Anti-cholinesterase combination drug therapy as a potential treatment for Alzheimer's disease. Brain Sci. 11 (2), 184(2021).
- Cummings, J., Lee, G., Mortsdorf, T., Ritter, A., Zhong, K. Alzheimer's disease drug development pipeline: 2017. Alzheimers Dement (N Y). 3 (3), 367-384 (2017).
- Birks, J. S., Harvey, R. J. Donepezil for dementia due to Alzheimer's disease. Cochrane Database Syst Rev. 6 (6), CD001190(2018).
- Knopman, D. S., et al. Alzheimer's disease. Nat Rev Dis Primers. 7 (1), 33(2021).
- Silva, T., Reis, J., Teixeira, J., Borges, F. Alzheimer's disease, enzyme targets and drug discovery struggles: from natural products to drug prototypes. Ageing Res Rev. 15, 116-145 (2014).
- Liu, X., Yi, W., Xi, B., Dai, Q., Lu, L. Identification of drug-disease associations using a random walk with restart method and supervised learning. Comput Math Methods Med. 2022 (1), 7035634(2022).
- Yu, N., et al. Ganoderma lucidum triterpenoids (GLTs) reduce neuronal apoptosis via inhibition of ROCK signal pathway in APP/PS1 transgenic Alzheimer's disease mice. Oxid Med Cell Longev. 2020 (1), 1-11 (2020).
- Bao, M., et al. Astragaloside IV against Alzheimer's disease via microglia-mediated neuroinflammation using network pharmacology and experimental validation. Eur J Pharmacol. 957, 175992(2023).
- Dartigues, J. F., et al. Ginkgo biloba extract consumption and long-term occurrence of death and dementia. J Prev Alzheimers Dis. 4 (1), 16-20 (2017).
- Savaskan, E., Mueller, H., Hoerr, R., von Gunten, A., Gauthier, S. Treatment effects of Ginkgo biloba extract EGb 761® on the spectrum of behavioral and psychological symptoms of dementia: meta-analysis of randomized controlled trials. Int Psychogeriatr. 30 (3), 285-293 (2017).
- Wang, D., Liu, W., Lu, M., Xu, Q. Neuropharmacological effects of Gastrodia elata Blume and its active ingredients. Front Neurol. 16, 1574277(2025).
- El Menyiy, N., et al. Chemistry, biological activities,and pharmacological properties of gastrodin: mechanism insights. Chem Biodivers. 21 (6), e202400402(2024).
- Yu, H., et al. Research progress on classification of chemical constituents from Gastrodia elata and their pharmacological effects. Chin Tradit Herbal Drugs. 53, 5553-5562 (2022).
- Tang, C., et al. Comparative pharmacokinetics of gastrodin in rats after intragastric administration of free gastrodin, parishin and Gastrodia elata extract. J Ethnopharmacol. 176, 49-54 (2015).
- Fu, X., et al. Antioxidation effects and mechanism of gastrodin in AD rat models. Acta Anat Sin. 41 (4), 485-490 (2010).
- Shi, R., et al. Gastrodin alleviates vascular dementia in a 2-VO vascular dementia rat model by altering amyloid and Tau levels. Pharmacology. 105 (7-8), 386-396 (2020).
- Fasina, O. B., et al. Gastrodin from Gastrodia elata enhances cognitive function and neuroprotection of AD mice via the regulation of gut microbiota composition and inhibition of neuron inflammation. Front Pharmacol. 13, 814271(2022).
- Zheng, Q., et al. MicroRNA-452 promotes tumorigenesis in hepatocellular carcinoma by targeting cyclin-dependent kinase inhibitor 1B. Mol Cell Biochem. 389 (1-2), 187-195 (2014).
- Yan, J., Yang, Z., Zhao, N., Li, Z., Cao, X. Gastrodin protects dopaminergic neurons via insulin-like pathway in a Parkinson's disease model. BMC Neurosci. 20 (1), 31(2019).
- Xiao, H., et al. Gastrodin promotes hippocampal neurogenesis via PDE9-cGMP-PKG pathway in mice following cerebral ischemia. Neurochem Int. 150, 105171(2021).
- Liu, Y., et al. A review on central nervous system effects of gastrodin. Front Pharmacol. 9, 24(2018).
- Fu, J., et al. Gastrodia elata specific miRNA attenuates neuroinflammation via modulating NF-κB signaling pathway. Int J Neurosci. 134 (12), 1652-1662 (2023).
- Wang, Y., et al. Gastrodin: a comprehensive pharmacological review. Naunyn Schmiedebergs Arch Pharmacol. 397 (6), 3781-3802 (2024).
- Liu, C. M., et al. Effects of gastrodin against lead-induced brain injury in mice associated with the Wnt/Nrf2 pathway. Nutrients. 12 (6), 1805(2020).
- De Oliveira, M. R., Brasil, F. B., Fürstenau, C. R. Nrf2 mediates the anti-apoptotic and anti-inflammatory effects induced by gastrodin in hydrogen peroxide-treated SH-SY5Y cells. J Mol Neurosci. 69 (1), 115-122 (2019).
- Zhang, J. S., et al. Gastrodin suppresses BACE1 expression under oxidative stress condition via inhibition of the PKR/eIF2α pathway in Alzheimer's disease. Neuroscience. 325, 1-9 (2016).
- Jiao, M., et al. Effect of the SSeCKS–TRAF6 interaction on gastrodin-mediated protection against 2,3,7,8-tetrachlorodibenzo-p-dioxin-induced astrocyte activation and neuronal death. Chemosphere. 226, 678-686 (2019).
- Cohen, P., Holmes, C. F., Tsukitani, Y. Okadaic acid: a new probe for the study of cellular regulation. Trends Biochem Sci. 15 (3), 98-102 (1990).
- Qin, Y., et al. Okadaic acid detection through a rapid and sensitive amplified luminescent proximity homogeneous assay. Toxins (Basel). 15 (8), 501(2023).
- Kim, S., et al. PubChem 2023 update. Nucleic Acids Res. 51 (D1), D1373-D1380 (2022).
- Daina, A., Michielin, O., Zoete, V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 47 (W1), W357-W364 (2019).
- Stelzer, G., et al. The GeneCards suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54 (1), 1.30.31-1.30.33 (2016).
- Safran, M., et al. Practical guide to life science databases. , Springer Nature. Singapore. (2021).
- Amberger, J. S., Bocchini, C. A., Schiettecatte, F., Scott, A. F., Hamosh, A. OMIM.org: Online Mendelian Inheritance in Man (OMIM®), an online catalog of human genes and genetic disorders. Nucleic Acids Res. 43 (D1), D789-D798 (2014).
- Szklarczyk, D., et al. The STRING database in 2021: customizable protein–protein networks,and functional characterization of user-uploaded gene/measurement sets. Nucleic Acids Res. 49 (D1), D605-D612 (2020).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Tominaga, H., et al. A water-soluble tetrazolium salt useful for colorimetric cell viability assay. Anal Commun. 36 (2), 47-50 (1999).
- Ton, A. M. M., et al. Oxidative stress and dementia in Alzheimer's patients: effects of synbiotic supplementation. Oxid Med Cell Longev. 2020 (1), 2638703(2020).
- Roth, K. A. Caspases, apoptosis,and Alzheimer disease: causation,correlation,and confusion. J Neuropathol Exp Neurol. 60 (9), 829-838 (2001).
- Cheng, M., et al. The effects of Porphyromonas gingivalis on the apoptosis of hippocampal cells in Sprague-Dawley rats and its underlying mechanisms. Int J Clin Exp Med. 13 (1), 300-309 (2020).
- Liu, H., et al. Development of chemical fingerprints for quality control of Xiong Ma Tang and its related preparations by high-performance liquid chromatography. J Chromatogr Sci. 54 (2), 206-215 (2016).
- Liu, S. J., et al. Gastrodin attenuates microglia activation through renin-angiotensin system and Sirtuin3 pathway. Neurochem Int. 120, 49-63 (2018).
- Hu, Y., Li, C., Shen, W. Gastrodin alleviates memory deficits and reduces neuropathology in a mouse model of Alzheimer's disease. Neuropathology. 34 (4), 370-377 (2014).
- Liu, J., et al. Systems pharmacology uncovers the multiple mechanisms of Xijiao Dihuang decoction for the treatment of viral hemorrhagic fever. Evid Based Complement Alternat Med. 2016 (1), 9025036(2016).
- Ran, B., et al. Drug-drug interactions prediction using fingerprint only. Comput Math Methods Med. 2022 (1), 7818480(2022).
- Sharma, V. K., Singh, T. G., Singh, S., Garg, N., Dhiman, S. Apoptotic pathways and Alzheimer's disease: probing therapeutic potential. Neurochem Res. 46 (12), 3103-3122 (2021).
- Zhou, W., Gao, Y., Xu, S., Yang, Z., Xu, T. Purification of a mannose-binding lectin Pinellia ternata agglutinin and its induction of apoptosis in Bel-7404 cells. Protein Expr Purif. 93, 11-17 (2014).
- Goedert, M., Spillantini, M. G., Jakes, R., Rutherford, D., Crowther, R. Multiple isoforms of human microtubule-associated protein tau: sequences and localization in neurofibrillary tangles of Alzheimer's disease. Neuron. 3 (4), 519-526 (1989).
- Hernández, F., Gómez De Barreda, E., Fuster-Matanzo, A., Lucas, J. J., Avila, J. GSK3: a possible link between beta amyloid peptide and tau protein. Exp Neurol. 223 (2), 322-325 (2010).
- Lu, Z., et al. Neuroprotection and mechanism of Gas-miR36-5p from Gastrodia elata in an Alzheimer's disease model by regulating glycogen synthase kinase-3β. Int J Mol Sci. 24 (24), 17295(2023).
- Vossel, K. A., et al. Tau reduction prevents Aβ-induced axonal transport deficits by blocking activation of GSK3β. J Cell Biol. 209 (3), 419-433 (2015).
- Singh, A. K., et al. Berberine: a plant-derived alkaloid with therapeutic potential to combat Alzheimer's disease. CNS Agents Med Chem. 19 (3), 154-170 (2019).
- Belsare, K. D., et al. Soluble TREM2 inhibits secondary nucleation of Aβ fibrillization and enhances cellular uptake of fibrillar Aβ. Proc Natl Acad Sci U S A. 119 (5), e2114486119(2022).
- Matsuda, S., et al. Roles of PI3K/AKT/GSK3 pathway involved in psychiatric illnesses. Diseases. 7 (1), 22(2019).
- Pan, S., et al. Oleanolic acid derivatives induce apoptosis in human leukemia K562 cell involved in inhibition of both Akt1 translocation and pAkt1 expression. Cytotechnology. 67 (5), 821-829 (2014).
- Zhou, F., et al. Network pharmacology-based strategy to investigate pharmacological mechanisms of Tinospora sinensis for treatment of Alzheimer's disease. J Ethnopharmacol. 259, 112940(2020).
- Liu, Z., Wang, Z. Protein tyrosine kinase 2 regulates tau phosphorylation through PI3K/AKT/Gsk3β signaling pathway. Labeled Immunoassays Clin Med. 29 (3), 464-470 (2022).
- Cope, P. J., Ourradi, K., Li, Y., Sharif, M. Models of osteoarthritis: the good, the bad and the promising. Osteoarthritis Cartilage. 27 (2), 230-239 (2019).
- Wang, X., Blanchard, J., Tung, Y. C., Grundke-Iqbal, I., Iqbal, K. Inhibition of protein phosphatase-2A (PP2A) by I1PP2A leads to hyperphosphorylation of tau, neurodegeneration,and cognitive impairment in rats. J Alzheimers Dis. 45 (2), 423-435 (2015).
- Liu, T. T., et al. Gastrodin alleviates Aβ25-35-induced glycolytic dysfunction via activating PI3K/AKT/BACH1 signaling in Alzheimer's disease models. Exp Neurol. 389, 115225(2025).
- Zuo, H. J., et al. Gastrodin regulates PI3K/AKT-Sirt3 signaling pathway and proinflammatory mediators in activated microglia. Mol Neurobiol. 61 (5), 2728-2744 (2024).
- Wang, Y. P., Mandelkow, E. Tau in physiology and pathology. Nat Rev Neurosci. 17, 22-35 (2015).
- Pardridge, W. M. Drug transport across the blood–brain barrier. J Cereb Blood Flow Metab. 32 (11), 1959-1972 (2012).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.