Bu protokol, in vivo elektron paramanyetik rezonans (melanin radikallerini tespit etmek ve analiz etmek için spektroskopi) kullanarak zebrafish ksenograftlarında melanom gelişimini değerlendirmeyi amaçlamaktadır ve preklinik melanom araştırmaları ile terapötik değerlendirme için yeni bir yaklaşım sunmaktadır.
Yöntem makalesi
Zebrafish Melanoma Xenograftlarında Melanin ile İlgili Radikal Değişimlerin Izlenmesi İçin X-Band Elektron Paramanyetik Rezonansı
Bu makalede
Özet
Özet
Bu protokol, zebrafish (Danio rerio) melanoma melanoma ksenograft modellerinde melaninle ilişkili radikal dinamiklerin izlenmesi için X-bandı (9,5 GHz) elektron paramanyetik rezonans spektroskopisinin yeni bir in vivo uygulamasını sunmaktadır. Bu yöntemin amacı, embriyonik gelişim sırasında melaninle ilişkili redoks değişikliklerinin ve fizyolojik olarak ilgili omurgalı modelinde tümör-konak etkileşimlerinin doğrudan, etiketsiz ve nicel olarak değerlendirilmesini sağlamaktır.
Melaninin içsel paramanyetik özelliklerinden yararlanarak, bu yaklaşım yalnızca geleneksel floresans tabanlı görüntüleme kullanılarak elde edilemeyen tamamlayıcı biyokimyasal bilgi sağlar. Önemli olarak, tespit edilen elektron paramanyetik rezonans sinyali melanin polimerinin redoks-aktif fraksiyonunu yansıtır ve bu nedenle toplam pigment bolluğunun doğrudan ölçümü yerine redoks-duyarlı bir okuma işlevi görür.
Yöntem performansı, pigmentli vahşi tip embriyolarda melaninle ilişkili radikallerin seçici olarak tespit edilmesi, albino kontrollerinde sinyal eksikliği, bağımsız biyolojik kopyalar arasında normalize edilmiş elektron paramanyetik rezonans sinyalindeki istatistiksel olarak anlamlı gelişimsel değişiklikler ve alternatif örnek tutucuları ile dondurulmuş örnekler kullanılarak elde edilen karşılaştırılabilir sonuçlarla doğrulandı.
X-bant elektron paramanyetik rezonans spektroskopisini zebrafish ksenograft modelleri ile birleştirerek, bu protokol preklinik melanom araştırmaları, redoks biyolojisi çalışmaları ve melanojenez modüle eden müdahalelerin değerlendirilmesi için ölçeklenebilir, etik açıdan elverişli ve aktarılabilir bir platform sağlar.
Giriş
Bu çalışmanın genel amacı, zebrafish (Danio rerio) embriyolarının xenograft modelinde melanin radikallerinin tespit edilmesi ve nicelendirilmesi için güvenilir bir in vivo yöntemi geliştirmek ve doğrulamak, X-bandı (9,5 GHz) elektron paramanyetik rezonans spektroskopisiyle birleştirilmiştir. Bu yaklaşım, melanoma gelişimi sırasında ve farmakolojik müdahalelere yanıt olarak melaninle ilişkili redoks süreçlerinin doğrudan, nicel olarak değerlendirilmesini sağlamayı amaçlamaktadır.
Melanin, çok çeşitli organizmalarda cilt, saç ve gözlerde pigmentasyondan sorumlu heterojen bir biyopolimer grubudur. Formları arasında eumelanin ve feomelanin biyolojide belirgin roller oynar. Eumelanin antioksidan ve fotoprotektif özellikler sergilerken, feomelanin özellikle UV maruziyeti altında reaktif oksijen türlerinin (ROS) oluşumunuteşvik edebilir 1,2,3. Hem antioksidan hem de prooksidan etkileri melanin radikallerinin oluşumuyla ilişkilidir. Moleküler düzeyde, melanin, tam oksitlenmiş kinon, kısmen indirgenmiş semikinon ve tam indirgenmişhidrokinon gibi 4,5,6 formları dahil olmak üzere birden fazla fizikokimyasal durumda var olabilen indolik ve kinon içeren alt birimlerden oluşan heterojen redoks-aktif bir polimerdir. Semiquinone radikal türlerinin göreceli bolluğu dinamiktir ve oksijen mevcudiyeti, reaktif oksijen türleri (ROS), metal iyon etkileşimleri, pH, polimerleşme derecesi ve melanozom olgunlaşma 7,8,9 gibi yerel fizikokimyasal koşullara bağlıdır.
Bu nedenle, melaninin redoks durumundaki değişikliklerin daha iyi anlaşılması için bu radikal konsantrasyonların nicel olarak değerlendirilmesini sağlayan yöntemlere ihtiyaç vardır. Melanomada, melanositlerde melanogenezin düzensizliği melanomun başlamasına ve ilerlemesine katkıda bulunur. Bu düzensizlik genellikle yerel mikroçevresel koşullara bağlı olarak redoks durum kaymalarıyla ilişkilidir. Bu durum, melanin redoks aktivitesini tümör biyolojisinde önemli bir faktöryapar 10. Bu nedenle, melanoma radikallerinin doğrudan değerlendirilmesini sağlayan yöntemler, melanom patogenezini ve terapötik yanıtı anlamak için gereklidir.
Zebrafish embriyoları, pigmentasyon ve melanom incelemesi için güçlü bir in vivo modeli temsil eder. Döllenmeden 5 gün sonra (döllenmeden 120 saat sonra, hpf), 2010/63/EU Direktifi kapsamında korunan hayvan olarak sınıflandırılmazlar; bu da resmi etik onay olmadan yüksek verimli deneylere izin verir. Hızlı gelişim, optik şeffaflık ve yerleşik protokoller, zebrafishi toksikolojik ve farmakolojik çalışmalar için son derece uygunkılar 11,12. Önemli olarak, bu balık insanlarla önemli genetik ve fizyolojik benzerliklere sahiptir ve melanogenezde yer alan önemli yollarkorunmaktadır 13. Vahşi tip zebrabalıklar ağırlıklı olarak eumelanin üretir ve fizyolojik pigmentasyon için bir model olarak hizmet verirken, eumelanin ve feomelanin üreten melanom hücre hatlarının implantasyonuna dayanan ksenograft modelleri memeli tümörü ilerlemesi ve ilaç yanıtlarının fizyolojik olarak ilgili mikro ortamda incelenmesinisağlar 14,15.
Şu anda floresans tabanlı görüntüleme, zebrafish melanom xenograft çalışmalarında kullanılan standart yöntemdir. Bu yaklaşım, floresan boyalar (örneğin, diklorodihidroflorescein diasetat) veya transgenik hatlar (Grx1-roGFP2, HyPer) gibi floresan boyalar aracılığıyla tümör büyümesi, göçü ve tedavi yanıtının gerçek zamanlı görselleştirilmesini sağlar. Ancak, floresans teknikleri öncelikle morfolojik ve mekansal bilgi sağlar ve biyokimyasal ve redoksla ilgili süreçleri yakalama yetenekleri sınırlıdır. Ayrıca, okumaları fotobeyazlama, boya sızıntısı, floresan ilaç bileşiklerinden kaynaklanan parazit ve etiketleme nedeniyle hücre fizyolojisinde olası değişiklikler nedeniyle etkilenebilir. Kritik olarak, floresans tabanlı yöntemler melanin radikalleri veya dinamik redoks davranışları hakkında doğrudan bilgi sağlamaz.
Elektron paramanyetik rezonans spektroskopisi, stabil melaninle ilişkili radikaller dahil olmak üzere paramanyetik türlerin doğrudan tespit edilmesini ve nicelendirilmesini mümkün kıldığı için benzersiz ve güçlü bir analitik yaklaşım sunar. Hem eumelanin hem de feomelanin, karakteristik elektron paramanyetik rezonans sinyalleri üreten semikinon moietleri içerir ve bu sinyallerin göreli katkısı, pigmentasyon durumu ve melanoma ilerlemesi için bir biyobelirteç olarakincelenmiştir 18,19. Önemli olarak, tespit edilen sinyale doğrudan yalnızca redoks-aktif semikinon fraksiyonu katkıda bulunduğundan, elektron paramanyetik rezonans spektroskopisi, melanin içeriği miktarının ölçülmesi, tirozinaz aktivitesi veya pigmentasyon analizi gibi geleneksel melanogenezle ilgili testlere tamamlayıcı bilgiler sağlar. Buna göre, elektron paramanyetik rezonans sinyal yoğunluğu, toplam pigment bolluğunun doğrudan ölçümü olarak değil, yerel fizikokimyasal koşullardan etkilenen melanin fonksiyonel durumunun redoks-duyarlı bir okuması olarak yorumlanmalıdır.
Çoğu in vivo elektron paramanyetik rezonans çalışmaları L-band sistemleri kullanılarak (özellikle daha derin sinyal nüfuzu gereken daha büyük örneklerde, düşük frekanslı mikrodalgalar (yaklaşık 1–2 GHz) kullanan bir elektron paramanyetik rezonans spektroskopisi türü) kullanılarak yapılmıştır.20— X-bandı elektron paramanyetik rezonansı, küçük hacimli örnekler için daha yüksek spektral çözünürlük ve hassasiyet sağlar, bu özellikle zebrafish embriyoları için uygundur. Ayrıca, çoklu harmonik tespit sistemleri dahil olmak üzere son teknik gelişmeler, sinyal kalitesini önemli ölçüde iyileştirir ve zorlu (küçük ve daha nemli) biyolojik örneklerde güvenilir ölçümler yapılmasınısağlar 21,22. X-bandı rezonatör boyutu, birkaç zebrafish embriyosu için uygun boyuttur; bu, L-band sistemine göre daha yüksek çözünürlükle birleşince, kullanılan hayvan sayısının azalmasına olanak tanır. Bu özellikle xenograft modelleriyle çalışırken önemlidir.
Bu avantajlara rağmen, bu modelde yaşayan zebrafish embriyolarına ve melanom ksenograftlarına X-bandı elektron paramanyetik rezonansının uygulanması büyük ölçüde keşfedilmemiştir. B16F10 gibi melanoma hücre hatlarını kullanan in vitro çalışmalar, melanin radikal özellikleri hakkında değerli bilgiler sağlamıştır; ancak canlı bir organizmanın karmaşık fizyolojik bağlamındanyoksundurlar 23,24. Özellikle, zebrafish mikro ortamı, oksijen gradyanları, hücre-hücre etkileşimleri ve dinamik metabolik aktivite gibi kritik faktörleri ortaya koyabilir ve bu faktörler melanin radikal davranışını önemli ölçüdeetkileyebilir 25,26. Bu nedenle, fizyolojik olarak ilgili koşullarda melanin radikallerinin doğrudan ölçülmesini mümkün kılan in vivo bir metodolojinin geliştirilmesi ve doğrulanması gerektiği açık bir konudur.
Bu çalışmada, B16F10 ve B16F1 melanom hücre hatlarını içeren ksenograft modelleri de dahil olmak üzere, zebrafish embriyolarına X-bandı elektron paramanyetik rezonans spektroskopisi uygulamak için ayrıntılı bir protokol sunuyoruz. Bu yöntem, melanin radikal içeriğinin nicel olarak değerlendirilmesini sağlayarak floresans tabanlı görüntülemeye tamamlayıcı bir yaklaşım sunar ve böylece redoks dinamiğine dair içgörü sağlar. Floresan tekniklerinden elde edilen yapısal ve mekansal bilgiyi elektron paramanyetik rezonansından elde edilen biyokimyasal içgörülerle birleştirerek, bu birleşik strateji preklinik melanom araştırmaları için zebrafish modellerinin analitik gücünü artırır. Önemli olarak, bu protokolde tespit edilen elektron paramanyetik rezonans sinyali melanin polimerinin redoks-aktif fraksiyonunu yansıtır. Buna göre, sinyal yoğunluğu doğrudan toplam melanin içeriğinin ölçümü yerine redoks-duyarlı bir okuma olarak yorumlanmalı ve toplam pigment içeriğiyle birlikte melaninle ilişkili redoks kaymalarının bir göstergesi olarak değerlendirilmelidir. Tüm organizma ölçüm yaklaşımı ve enjekte edilen melanom hücresinin sınırlı sayısı nedeniyle, tespit edilen sinyal öncelikle zebrafish embriyosu/larvası düzeyinde küresel melanin ilişkili radikal değişiklikleri temsil eder; yalnızca ksenografttan kaynaklanan melanoma özgü bir sinyal değil. Bu ayrım, melanin oksidasyon durumundaki değişimlerin genel pigment miktarındaki değişikliklerden bağımsız olarak gerçekleşebileceği dinamik biyolojik sistemlerde özellikle önemlidir.
Protokol
Bu çalışmada zebrafish (Danio rerio) embriyoları döllenme sonrası 5 güne kadar (120 hpf) kullanılmıştır. Bu gelişim aşamasında, embriyolar 2010/63/EU Direktifi kapsamında korunan hayvan olarak kabul edilmez ve bu nedenle deneyler etik komitesi tarafından resmi onay gerektirmez. Buna rağmen, tüm çalışmalar zebra balıklarının bakımı ve kullanımı için iyi laboratuvar uygulamaları ve kurumsal yönergelere uygun olarak yürütülmüştür.
1. Reaktiflerin hazırlanması ve B16F1 ile B16F10 fare melanomu hücre hatlarının bakımı
- Tam ortamın hazırlanması
- 500 mL fetal sığır serumu (FBS) ve 5,5 mL penisillin-streptomisin çözeltisi eklenerek 500 mL Dulbecco'nun Modifiye Kartal Ortamı (DMEM) eklenin.
- Tam ortamı kullanmadan önce 37 °C'ye ısıtın.
NOT: Hücre işleme sırasında termal stresi en aza indirmek için önceden ısıtılmış çözeltiler kullanın.
- Donmuş hücrelerden eritme ve kültüre başlama
- Donmuş şişeyi hücrelerle birlikte 37 °C su banyosunda (~1–2 dakika) hızla çözün.
- Şişenin dışını %70 etanol ile dezenfekte edin. Tüm sonraki adımları aseptik koşullarda gerçekleştirin.
- Hücre süspansiyonu, 9 mL önceden ısıtılmış tam ortam içeren 15 mL konik bir tüpe aktarın. Mikoplazma testi için orijinal süspansiyondan küçük bir aliquot kalın.
- Santrifüj tüpündeki hücreleri 200 × g ile oda sıcaklığında 5 dakika boyunca kullanın.
- Süpernatantı aspire ederek dondurma ortamından kalan dimetil sülfoksit (DMSO) çıkarılır.
- Hücre pelletini 10 mL taze ve önceden ısıtılmış tam ortamda yeniden askıya alın.
- Hücreleri ⌀9 cm Petri kabına aktarın ve hücreleri eşit şekilde dağıtmak için sekiz şekilli bir hareketle nazikçe döndürün.
- Hücreleri gece boyunca 37°C, %5 CO₂ ve %≥95 nemde kuluçka edin.
- Kültür ortamını, 16–24 saat sonra taze, önceden ısıtılmış tam ortamla değiştirin.
- Hücreler %>80 birleşime ulaşana kadar kuluçkaya devam edin. Alt kültüre geçin (bkz. adım 1.3).
NOT: Petri kaplarına alternatif olarak, steril kültür kapları (örneğin, T-termosları) kullanılabilir. Daha küçük kaplar veya şişeler tercih edilirse, hücreleri orantılı olarak bölerek aynı göreceli kültür yüzey alanını koruyun.
- Hücrelerin alt kültürlenmesi
- Kültür ortamını hücre monokatmanından çıkarın. Mikoplazma testi için küçük bir aliquot tutun.
- Kültür kabına 10 mL fosfatla tamponlanmış tuzlu (PBS) ekleyin.
- PBS'nin hücrelerde oda sıcaklığında 3–5 dakika bekletilmesine izin verilerek serum proteinlerinin tamamen alınmasına izin verin.
- PBS'yi nazikçe aspire edin, hücreleri yerinden çıkarmamaya dikkat edin.
- 1 mL hücre dissosiyasyon reaktifi ekleyin ve hücreler yuvarlanıp ayrılana kadar 37°C'de kuluçka yapın (kuluçka süresi 5 dakikayı geçmesin).
- Enzimatik ayrışmayı durdurmak için 1 mL önceden ısıtılmış tam ortam ekleyin.
- Hücre süspansiyonunu birkaç kez yukarı ve aşağı nazikçe pipetleyin ve tek hücreli bir süspansiyon elde edin.
- Hücreleri, önceden ısıtılmış tam ortam içeren yeni bir Petri kabına veya T-şişesine aktarın; bu karışım 1:4 ile 1:10 arasında bölünme oranında gerçekleşir. Hücreleri eşit şekilde dağıtmak için sekiz şeklinde nazikçe döndürün.
- Hücreleri 37 °C, %5 CO₂ ve %≥9095 nemde kuluçka yapın.
NOT: Önceden ısıtılmış çözeltiler (37 °C) kullanın ve tüm işlemleri uygun kişisel koruyucu ekipman takarak Sınıf II biyolojik güvenlik dolabında aseptik koşullarda gerçekleştirin. Alt kültür hücreleri her 2–3 günde bir veya %80–90 birleşimde kullanılır. Düşük geçişli hücreler (
- Hücrelerin kriyo-koruması (Bankalanma)
- Sağlıklı, üstel olarak büyüyen hücreler kullanın (~%70–%80 birleşik).
- Hücreleri 1.3.1–1.3.7 adımlarında tarif edildiği şekilde hasat edin ve hücre süspansiyonunu 15 mL'lik konik bir tüpe geçirin.
- Hücreleri 300 × g'de 2 dakika boyunca santrifüjleyin.
- Süpernatantı çıkarın ve hücreleri 1–5 × 10⁶ hücre/mL olarak kriyo-koruma ortamında yeniden süspansiyona yerleştirin.
- Aliquot hücre süspansiyonu etiketli kriyoviallere (hücre hattı, geçiş numarası, tarih).
- Şişeleri kontrollü hızda dondurma kapı ile gece boyunca -80°C'de dondurun.
- Bunun yerine, iç içe yalıtım yöntemi kullanın: şişeleri 1.5/2.0 mL tüpler için tasarlanmış küçük bir strafor rafa yerleştirin, ardından bu raf daha büyük bir polistiren kutusunun içine yerleştirilir.
NOT: Bu çift katmanlı konfigürasyon, başarılı kriyo-koruma için kritik olan kademeli soğuma hızına ulaşmak için gereken termal tamponlamayı sağlamak üzere tasarlanmıştır.
NOT: Kriyojenik malzemeler yalıtımlı eldiven ve yüz koruyucusu ile ele alınmalıdır. Sıvı azot ve tehlikeli atık işlenmesi için kurumsal yönergelere uyun.
- Bunun yerine, iç içe yalıtım yöntemi kullanın: şişeleri 1.5/2.0 mL tüpler için tasarlanmış küçük bir strafor rafa yerleştirin, ardından bu raf daha büyük bir polistiren kutusunun içine yerleştirilir.
- Gece boyunca -80 °C'de kuluçka yaptıktan sonra, şişeler uzun süreli depolama için sıvı azota aktarılır. Kriyovialler kısa süreli depolama için -80 °C sıcaklıkta saklanabilir.
- Mikoplazma testi
- Erime, alt kültürleme veya kriyo-koruma sırasında küçük bir kültür ortamı veya hücre süspansiyonu alayın bir alektörü.
- Üreticinin talimatlarına göre doğrulanmış PCR tabanlı veya enzimatik mikoplazma tespit kiti kullanarak mikoplazma kontaminasyonunu değerlendirin.
- Deneyler veya hücre hattı bankalanması için mikoplazma-negatif kültürler kullanın.
- Sonuçları kaydedin ve temizlenene kadar kontamine olan kültürleri atınız veya izole edin.
NOT: Düzenli olarak mikoplazma kontaminasyonu testi yapın.
2. Zebrafish larvalarına kanser hücresi nakli
- Kanser hücrelerini nakil için hazırlayın
- Hücreleri ~%80 birleşime kadar büyüt.
- Hücreleri 1.3.1–1.3.7 adımlarında açıklandığı şekilde hasat edin.
- Hücre süspansiyonunu 2 mL'lik bir mikrosantrifüj tüpüne aktarın.
- Hücreleri oda sıcaklığında 2 dakika boyunca 300 × g ile santrifüj yapın.
- Üst yüzeyi çıkarın ve hücre pelletini 1 mL steril PBS ile yıkayın.
- 2.1.4–2.1.5 adımlarını tekrarlayın ve kalan PBS'deki hücreleri yeniden süzüldürün. Daha yoğun süspansiyon daha az tortul sağlar.
- Süspansiyonu hafifçe yukarı aşağı pipetleyin ve homojen tek hücreli süspansiyon elde edilene kadar.
NOT: 200 μL pipet ucu ile önceden ıslanmış, %45 polivinilpirrolidon (PVP) çözeltisi ile kullanılmıştır; bu, enjeksiyon mikroiğnesinde hücre sedimentasyonunu önlemeye yardımcı olur. - Hücre askısını enjeksiyona kadar buzda tutun.
NOT: Hücre topaklanması gerçekleşirse, hücre askısını 35–40 μm hücre süzgecinden geçirin ve/veya hücreleri 0,01–0,05 mg/mL DNaz I ile tedavi edin.
- Zebrafish yumurta üretimi
- Beklenen yumurta toplamadan önceki akşam, yetişkin zebrabalıkları yumurtlama için düzenlenmiş sistem suyu içeren üreme tanklarına yerleştirin.
- Tankları gece boyunca tam karanlıkta tutmak; Bu, ertesi gün ışıklar açıldığında yumurtlamanın tetiklenmesini sağlar.
- Balıklar, ertesi gün ışık başlangıcından sonra yumurtlayacaktır. Yumurtaları tankın suyuna çay süzgeciyi doldurarak toplayın.
- Yumurtaları E3 ortamında iyice durulayın (5 mM NaCl, 0,17 mM KCL, 0,33 mM CaCl2, 0,33 mM MgSO4).
- Döllenmiş yumurtaları 20–25 mL E3 ortamı içeren 9 cm Petri kaplarına aktarın. Her tabağa 50'den fazla embriyo koymayın.
- Embriyoları 28 °C'de kuluçka altına alın ve daha fazla kullanıma kadar kullanın.
NOT: Yumurtaları her zaman nemli tutmaya dikkat edin.
- Zebrafish embriyosu hazırlığı
- Koryonları embriyolardan yaklaşık 36 hpf hızında manuel olarak çıkarın.
- İki çift ultra-fine Jewelry No. 5 penseps kullanın. Bir çiftle, yumurtayı stabilize etmek için koryonu sıkıca ama nazikçe çimdikleyin. İkinci forseps çiftini kullanarak birinci çiftin yanındaki koryonu tutun.
- Pensleri zıt yönlere nazikçe çekerek küçük bir yırtık oluştu. Embriyo kayana kadar açıklığı dikkatlice genişletin.
- Dekoryonlu larvaları taze hazırlanmış trikain çözeltisi ile anestezi edin, yerleşik zebrafishprotokollerine göre 27.
NOT: Koryonsuz embriyolar kırılgan, yapışkandır ve havaya maruz kalması engellenmelidir. Zebra balıkları <3 dpf'de çalışırken cam pipetler ve agarose kaplı Petri kapları kullanın.
- Koryonları embriyolardan yaklaşık 36 hpf hızında manuel olarak çıkarın.
- Mikroenjeksiyon iğneleri hazırlayın
- Filamentsiz cam kapillyarları üreticinin yönergelerine göre parametreleri ayarlanmış bir çekici kullanarak çekin.
- İnce forseps kullanarak, iğne ucunu iki adımda kırın: ilki iğnenin ince ucunda küçük bir kırılma yapın. Sonra, hücrelerin sıkıştığı yerde ikinci bir ara yapın. Bu, hücrelerin geçebileceği kadar büyük olan ve mümkün olduğunca küçük kalan optimal bir açıklık oluşturur.
- İğneyi hücre süspansiyonuyla doldurun, uzun bir mikrolader kullanarak - cam mikrokapiler doldurmak için bir uç. Hava kabarcıklarını sokmaktan kaçının.
- Askı için mümkün olan en yüksek hücre yoğunluğunu (maksimum konsantrasyon) kullanın; Belirli hücre dozu enjektör ayarlarıyla kontrol edilir.
- İğneye sık sık küçük aliquotlar yükleyin, böylece iğne içindeki askı kolonu maksimum 2 mm yükseklikle sınırlandırılır. Bu, iğne içindeki hücre tortulmasını en aza indirerek enjeksiyon sırasında daha homojen bir dağılım ve tutarlı bir teslimat sağlar.
- Yüklü iğneyi mikroenjeksiyon cihazının tutucusuna takın.
- Enjeksiyon basıncını ve darbe süresini, enjeksiyon başına istenen hücre sayısını verecek şekilde ayarlayın (enjeksiyon sırasında toplam hücre süspansiyonunun hacmi, zebrafish embriyosunun gözünün boyutunu aşmamalıdır).
NOT: Zebrafish ksenograft mikroenjeksiyon metodolojisinin ayrıntılı örnekleri daha önce diğeryazarlar tarafından açıklanmıştır 28.
- Mikroenjeksiyon prosedürü
- Hücre süspansiyonunu deneysel tasarıma göre ya sarı kesesine veya dolaşıma enjekte edin.
- Kalibre edilmiş enjeksiyon koşullarında embriyo başına 1000'den fazla hücre verin.
NOT: Fosfatla tamponlanmış tuzlu (PBS) enjekte edilmiş embriyoları negatif kontrol olarak dahil edin.
- Enjeksiyon sonrası taşıma
- Enjekte edilen embriyo/larvaları 28-32 °C sıcaklıkta tutun
- Larva hayatta kalma ve gelişim ilerlemesini her gün disseksiya kapsamında izleyin.
- Tümör hücre çoğalması ve göçünü seçilmiş deneysel zaman noktalarında değerlendirin.
- Bölüm 3.1'de tanımlandığı gibi elektron paramanyetik rezonan (EPR) ölçümüne devam edin veya 2.7'de açıklandığı gibi numuneyi depolayın
NOT: Enjeksiyon travması veya yanlış enjeksiyon olan larvaları atın. Tüm kurumsal biyogüvenlik ve hayvan bakım yönergelerine uyun. Trikain ve biyolojik atıkları güvenlik protokollerine göre ele alın. Tehlikeli maddeleri düzenlemelere uygun şekilde bertaraf et.
- Dondurmak için örnek toplama
- Larvaları en az 3 dakika boyunca soğutulmuş trikain çözeltisine daldırarak ötenazileyin.
- 10 larvadan oluşan grupları 1,5 mL mikrosantrifüj tüplerine aktarılır. Her tüpten fazla ortamı çıkarın.
- Örnekleri elektron paramanyetik rezonans analizine kadar -20 °C'de saklayın.
3. Elektron paramanyetik rezonans spektroskopisiyle melanin radikal algılaması
- Zebrafish larvalarında in vivo melanin radikal tespiti
- X-bandı elektron paramanyetik rezonans spektrometresini açın ve üreticinin talimatlarına göre sistemin stabilizasyonuna izin verin.
- 20–30 zebrafish larvasını (döllenmeden 3–5 gün sonra, dpf) 1,5 mL bir mikrosantrifüj tüpüne aktarın.
- Zebrafish larvaları için düz kapiler kısmını 100 μL E3 ortamı ile doldurun.
- Kapillerin bir ucunu plastik bir kapakla kapatın ve sıvı sütunun flat, odada kaldığından emin olun.
- Birkaç larvayı küçük bir hacim E3 ortamıyla birlikte 100 μL hematokrit kapillerine aktarın.
- Hematokrit kapillerden larvaları düz kısmın üstüne nazikçe bırakın.
NOT: Çözümün sürekliliğini korumaya özen gösterin. Düz kısımda veya düz kısmın üst kısmında hava kabarcıkları olmamalıdır. - Kapillerin dış tübüler bölümündeki fazla sıvıyı çıkarırken düz odada sürekli sıvı teması sağlanır.
- 3.1.5–3.1.7 adımlarını tekrarlayın, ta ki 20–30 larva düz kapillere yüklene.
- Kapillerin tübüler bölümlerinden kalan sıvıyı çıkarın.
- Kapilleri elektron paramanyetik rezonans spektrometresine yerleştirin ve örneği rezonatörün merkezine yerleştirin.
- Spektrometre yazılımında alınım parametrelerini şu şekilde ayarlayın: merkez alan = 335 mT; süpürme genişliği = 10 mT; modülasyon genliği = 500 μT; mikrodalga gücü = 1,6 mW; tarama sayısı = 32; süpürme süresi = 11 saniye; zaman sabiti = 0.
- Elektron paramanyetik rezonans spektrumunu edinin.
- Rezonatörden kapilleri çıkarın ve larvaları bir Petri kabında taze E3 ortamına bırakın.
NOT: Numune yüklemesi sırasında hava kabarcıklarının oluşmasından kaçının, çünkü sıvı sütunundaki süreksizlikler sinyal tekrarlanabilirliğini azaltabilir. Multiharmonik algılama mümkün değilse, modülasyon genliğini azaltın ve sinyal yoğunluğunu spektral bozulma olmadan maksimize etmek için alım parametrelerini optimize edin.
- Donmuş zebrafish larvalarında melanin radikal tespiti
- Oda sıcaklığında 5–10 dakika boyunca 10 ötenanize edilmiş zebrafish larvası içeren donmuş bir örneği eritin.
- Çözülmüş numuneye 100 μL E3 ortamı ekleyin.
- Larvaları ortamla birlikte 100 μL hematokrit kapillerine aktarın.
- Örnek sadece aktif rezonatör hacmini (yaklaşık 1 cm uzunluğunda) kaplayana kadar kapillerden fazla sıvıyı çıkarın.
- Kapilleri bir sızdırmazlık bileşiğiyle kapatın.
- Kapilleri elektron paramanyetik rezonans spektrometresine yerleştirin ve örneği rezonatörün merkezine yerleştirin.
- Spektrometre yazılımında alınım parametrelerini şu şekilde ayarlayın: merkez alan = 335 mT; süpürme genişliği = 10 mT; modülasyon genliği = 500 μT; mikrodalga gücü = 1,6 mW; tarama sayısı = 32; süpürme süresi = 11 saniye; zaman sabiti = 0.
- Elektron paramanyetik rezonans spektrumunu edinin ve kaydedin.
NOT: Sinyal bozulmasını önlemek için numunenin üst kenarının rezonatörün üst kenarının altında kaldığından emin olun. Multiharmonik algılama mümkün değilse, modülasyon genliğini azaltın ve mikrodalga gücünü optimize ederek spektral bozulma olmadan sinyal yoğunluğunu en üst düzeye çıkarın.
- Çok harmonik analizör yazılımından elektron paramanyetik rezonans verilerinin çıkarılması ve spektrumların sonradan işlenmesi
- Çok harmonik analiz yazılımında kaydedilen elektron paramanyetik rezonans spektrumunu açın.
- İki kanal kullan seçeneğini seçerek çift kanallı sinyal işlemeyi etkinleştirin.
- İşlenen harmonik sayısını 30'a ayarlayın.
- Mikrodalga faz parametresini, simetrik absorpsiyon ve dağılım bileşenleri elde edilene kadar ayarlayın.
- Modülasyon fazı/derece parametresini ayarlayın; Kanal 1 saf soğurma sinyali, Kanal 2 ise saf dağılış sinyali göstersin.
- Modülasyon genliği/G parametresini en dar, bozulmamış spektral çizgi elde edilene kadar ayarlayın.
- Yüksek frekanslı gürültüyü azaltacak ve spektral çizgi şeklini koruyacak Düşük geçiş/Hz parametresini ayarlayın.
- Gürültü bastırma sekmesini seçin ve Gürültü bastırmayı etkinleştir seçeneğine tıklayın. Smoothing faktörü ve Dar çizgi iyileştirme parametrelerini, spektral çizgide görünür bozulma olmadan sinyal-gürültü oranı iyileştirilene kadar ayarlayın.
- Artifacts sekmesini seçin ve Outlier düzeltmesi ile Bant Bant Bant Etimi düzeltmesini etkinleştirin.
- Daha fazla analiz için spektrumları, veri analiz yazılımının kullandığı bir formatta kaydedin.
- Uygun veri analiz yazılımında sayısal entegrasyon kullanarak çift entegre sinyal yoğunluğunu hesaplayın.
NOT: Yüksek Q rezonatörlerle çalışırken, bant genişliği düzeltmesi daha yüksek harmonik bileşenlerin yeniden inşasını iyileştirir. Çok harmonik yeniden yapılandırma, aşırı modüle edilmiş ham verilerden bozulmamış spektrumların geri alınmasını sağlar ve düşük yoğunluklu biyolojik örneklerde sinyal-gürültü oranını iyileştirir.
Sonuçlar
Deneysel iş akışının şematik bir genel görünümü Şekil 1'de sunulmaktadır. Zebrafish embriyoları toplandı, B16F10 melanom hücreleriyle nakledildi, kontrollü koşullarda kuluçka edildi ve X-bandı elektron paramanyetik rezonans analizinden önce parlak alan veya floresan mikroskopiyle izlendi. Canlı embriyok daha sonra düz bir kahiller/numune tutucuya yüklenerek tüm organizma elektron paramanyetik rezonans ölçümleri yapıldı ve böylece melaninle ilişkili radikal sinyallerin invaziv olmayan bir şekilde tespit edilmesini sağladı. Elektron paramanyetik rezonans ediniminin ardından, embriyoklar taze E3 ortamına bırakıldı ve böylece aynı biyolojik örneklerde boyuna ölçümler yapıldı.
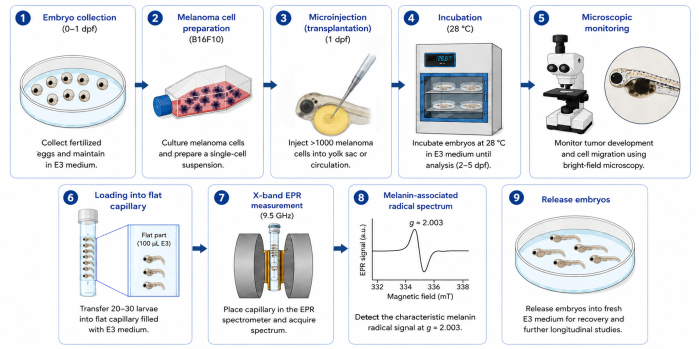
Şekil 1: Zebrafish melanoma ksenograftlarında melaninle ilişkili radikallerin in vivo izlenmesi için X-bant elektron paramanyetik rezonans (EPR) spektroskopisi kullanılarak deneysel iş akışının grafiksel özeti. Zebrafish embriyoları toplanır, melanom hücreleriyle nakledilir, kuluçka altına alınır ve mikroskobik olarak izlenir, ardından tüm organizma EPR ölçümleri için özel düz bir kapillere yüklenir. Melanin ile ilişkili radikal sinyalin (g ≈ 2.003) tespit edildikten sonra, larvalar uzunlamasına takip ölçümleri için serbest bırakılır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Yöntemin özgüllüğünü doğrulamak için, vahşi tip (WT) ve albino zebrafish embriyoları üzerinde ölçümler yapıldı. WT embriyoları yaklaşık 27 hpf seviyesinde görünür pigmentasyon geliştirmeye başlar. Buna karşılık, WT embriyolarından elde edilen elektron paramanyetik rezonans spektrumları, eumelanin teşrekili semiquinone radikalleriyle (örneğin, DHI/DHICA) uyumlu olan g ≈ 2.003 merkezli karakteristik tek hatlı sinyal sergiler. Buna karşılık, fonksiyonel melanin sentezi olmayan albino embriyolar, döllenmeden 5 gün sonra bile aynı spektral bölgede algılanabilir elektron paramanyetik rezonans sinyali göstermez (dpf). Bu, gözlemlenen sinyalin özellikle melanin radikallerinden kaynaklandığını ve yöntem seçiciliğini doğrulama açısından negatif kontrol olduğunu doğrular (Şekil 2).
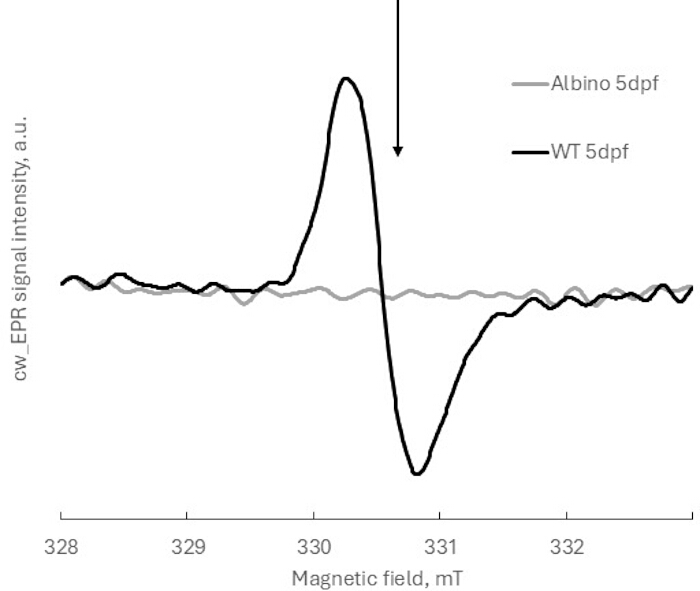
Şekil 2: Vahşi tip (WT) ve albino zebrafish embriyolarının 5dpf seviyesinde temsil eden X-bandı elektron paramanyetik rezonans spektrumları. Ok, 5dpf WT zebrafish embriyolarından melaninle ilişkili radikal sinyalin rezonans konumunu (g ≈ 2.003) gösterir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Bu yöntem, gelişim sırasında melanin radikal oluşumunun nicel olarak izlenmesini sağlar. Pigmentasyon ilerledikçe, elektron paramanyetik rezonans sinyal yoğunluğunda belirgin bir artış gözlemlenir. WT embriyolarının 2 dpf ile 5 dpf karşılaştırılması, embriyoda normalize edilen çift entegre elektron paramanyetik rezonans sinyalinde önemli bir artış göstermektedir. Normalizasyon, çift integral hesaplanmadan önce ham elektron paramanyetik rezonans sinyal yoğunluklarının örnekteki embriyo sayısına bölünmesiyle yapıldı (Şekil 3A).
İstitisel analiz, Kruskal–Wallis testi kullanılarak yapıldı ve ardından Dunn'un çoklu karşılaştırma testi yapıldı. Altı bağımsız biyolojik replikasyon (her biri 7–10 embriyodan oluşan) üzerinde yapılan analizler, gelişim aşamaları arasında normalize edilmiş elektron paramanyetik rezonans sinyalinde istatistiksel olarak anlamlı farklılıklar gösterdi (p < 0.05), bu da yöntemin hassasiyetini doğruladı.
Elektron paramanyetik rezonans spektrumlarının çift integrali, eşleşmemiş elektron spinlerinin sayısına orantılıdır. Dolayısıyla artışı, gelişim sırasında melaninle ilişkili radikallerin nüfusunun arttığını gösterir. Önemli olarak, bu artış muhtemelen sadece pigment birikimi değil, progresif melanogenezle ilişkili melanin redoks dengesindeki değişiklikleri yansıtıyor.
Protokolün tekrarlanabilirliği, aynı gelişim aşamasında (5 dpf) farklı embriyo sayısı (7 v's 10) içeren örneklerden alınan temsilli elektron paramanyetik rezonans spektrumlarının karşılaştırılmasıyla daha fazla değerlendirildi. Beklendiği gibi, ham spektrumlar örnek büyüklüğüne orantılı olarak sinyal genliğinde farklılıklar göstermiştir (Şekil 3B). Her spektrum örnek başına embriyo sayısına normalleştirildikten sonra, spektrumlar neredeyse tamamen örtüştü (Şekil 3C) ve partiler arası değişkenlik %10'un altında kaldı. Bu sonuçlar, embriyo başına normalizasyonun önemini vurgulamaktadır ve karşılaştırmalı çalışmalar için yöntemin sağlamlığını doğrulamaktadır.
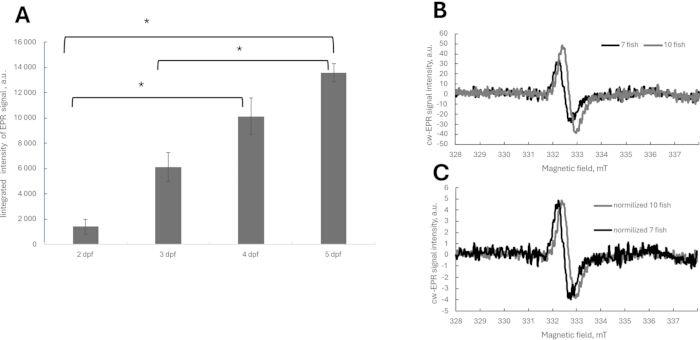
Şekil 3: Gelişimsel melaninle ilişkili radikal dinamiklerin nicel izlenmesi ve elektron paramanyetik rezonans spektrumlarının normalizasyonu. (A) Döllenmeden 2, 3, 4 ve 5 gün sonra vahşi tip (WT) zebrafish embriyolarından elde edilen çift entegre X-bandı elektron paramanyetik rezonans sinyali. Sinyal yoğunluğu, örnek başına embriyo sayısına normalize edildi. Veriler, her biri 7–10 embriyodan oluşan altı bağımsız biyolojik replikanın ortalama ± SD'sini temsil eder. İstatistiksel olarak anlamlı farklar - *p < 0.05. (B) 7 ve 10 embriyodan oluşan örneklerle 5 dpf WT embriyolarından alınan temsil ham elektron paramanyetik rezonans spektrumları. Sinyal genliği, örnekteki embriyo sayısıyla orantılı olarak artar. (C) Normalizasyondan sonra panel B'de gösterilen aynı elektron paramanyetik rezonans spektrumları, yani ham spektral yoğunluklar kapiler içindeki embriyoların sayısına bölünür. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Protokolün in vivo zebrafish ölçümleri için kullanılan özel düz kapillere bağlı olup olmadığını değerlendirmek için, melaninle ilişkili radikal tespit hem özel düz kapiller hem de ex vivo analiz için standart ticari olarak mevcut bir kapiller kullanılarak gerçekleştirildi. Her iki örnek tutucu kullanılarak elde edilen temsil edici elektron paramanyetik rezonans spektrumları, çizgi şekli ve rezonans konumu oldukça karşılaştırılabilir gösterdi (Şekil 4A), bu da melaninle ilişkili radikallerin güvenilir şekilde tespit edilmesinin sadece özel kapiler tasarımla sınırlı olmadığını gösterir. Düz kapilyarlardan gelen sinyaller, embriyo başına normalizasyondan sonra, standart kapillerden yeniden hesaplananlardan 2 kat daha azdı.
Numune kullanımı esnekliğini daha iyi değerlendirmek için, zebrafish embriyoları toplandıktan hemen sonra ve dondurulduktan sonra ölçüldü, ardından standart kapilyarlar kullanılarak ex vivo analiz yapıldı. Altı bağımsız biyolojik replikada taze ve dondurulmuş örnekler arasında istatistiksel olarak anlamlı farklar gözlemlenmemiştir (Şekil 4B). Bu sonuçlar, protokolün yaygın olarak kullanılan elektron paramanyetik rezonans örnek tutucularına uyarlanabileceğini ve gecikmeli ex vivo analizi desteklediğini göstererek, farklı elektron paramanyetik rezonans spektrometreleriyle laboratuvarlar arasında yöntemin erişilebilirliğini, esnekliğini ve tekrarlanabilirliğini önemli ölçüde artırmaktadır.
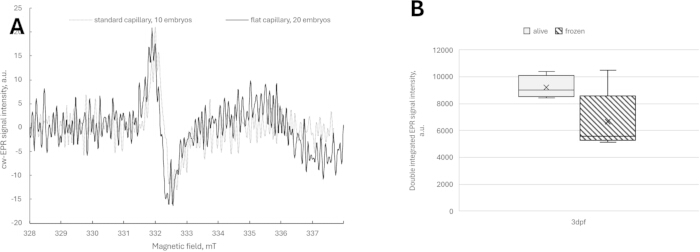
Şekil 4: Protokolün uyumluluğu. (A) 2dpf WT zebrafishinin standart ve düz kapillyarlarında ölçülen ham elektron paramanyetik rezonans spektrumları. (B) Aynı biyolojik kopyaların (3 dpf WT zebra balığı) canlı ve standart kapilyarlarda donmuş olarak karşılaştırılması. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Tespit edilen elektron paramanyetik rezonans sinyalinin doğrudan melanom kökenli melanin radikallerine atfedilip edilmeyeceğini belirlemek için, albino zebrafish embriyoları melanin içermeyen bir arka plan olarak kullanıldı ve B16F10 melanom hücreleriyle enjekte edildi. Elektron paramanyetik rezonans ölçümleri, vahşi tip embriyolarda kullanılan aynı alım koşulları altında döllenme sonrası 4 gün (dpf) içinde gerçekleştirildi. Beklendiği gibi, enjekte edilmemiş albino embriyolarda melanine özgü spektral bölgede algılanabilir elektron paramanyetik rezonans sinyali bulunmamıştır. Önemli olarak, enjekte edilmiş B16F10 hücrelerine sahip albino embriyolarda tespit edilebilir melanin ilişkili elektron paramanyetik rezonans sinyali gözlemlenmemiştir (Şekil 5A), başarılı hücre naksil parlak mikroskopiyle doğrulanmış olmasına rağmen (Şekil 5B).
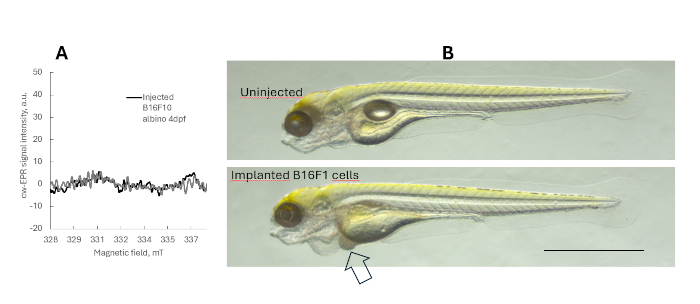
Şekil 5: Albino zebrafish B16F10 ksenograftlarında doğrudan melanom kaynaklı melanin kaynaklı radikal tespitinin değerlendirilmesi. (A) 4df albino ve albino B16F10 ksenograft ölçümlerinde melaninle ilişkili elektron paramanyetik rezonans sinyali, X-bandı elektron paramanyetik rezonans spektrometresiyle ölçülmüştür. Her biri 10 embriyodan oluşan üç biyolojik replika kullanıldı. (B) Kanser hücresi implantasyonundan üç gün sonra 4 dpf albino ve B16F10 ile albino ksenograftın parlak alan görüntüsü. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Bu sonuçlar, mevcut deneysel koşullarda, enjekte edilen melanom hücrelerinin sayısının X-bandı elektron paramanyetik rezonansının doğrudan tespit eşiğinin altında olduğunu göstermektedir. Bu nedenle, tüm organizma ölçümlerinde tespit edilen melanin-ilişkili sinyal, yalnızca ksenografttan kaynaklanan melanoma özgü bir sinyal yerine, zebrafish embriyosu/larvasının melanin redoks durumundaki küresel değişiklikleri yansıtır.
Ksenograft deneylerinde, melanom hücre nakleti ve büyümesinin verimliliği enjeksiyon bölgesine büyük ölçüde bağlıydı. Dolaşıma (kan dolaşımına enjeksiyon) enjeksiyon, tümörün daha tutarlı gelişimini sağlamış ve melanom hücreleriyle ilişkili güvenilir elektron paramanyetik rezonans sinyal algılamasını sağlamıştır. Buna karşılık, sarı kesesine enjeksiyon embriyo gelişiminin bozulmasına ve tümör büyümesinin zayıf olmasına yol açar, bu da zayıf veya tutarsız sinyallere yol açar. Bu nedenle, sağlam ve yorumlanabilir sonuçlar elde etmek için kan dolaşımı enjeksiyonu önerilir (Şekil 6).
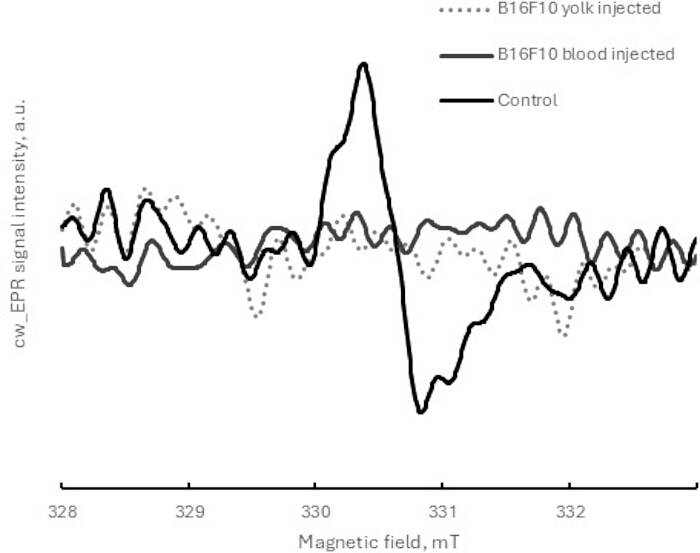
Şekil 6: Melanom hücresi enjeksiyon bölgesinin 2 dpf zebrafish embriyosu ve ksenograft gelişimi üzerindeki etkisi, X-bandı elektron paramanyetik rezonansı ile ölçüldü. B16F10 melanoma hücreleriyle sarı kesesine veya dolaşıma enjekte edilen zebrafish embriyolarından temsil eden elektron paramanyetik rezonans spektrumları. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Yöntemin melanom modellerinde uygulanabilirliğini daha da göstermek için, vahşi tip (WT) zebrafish embriyolarından ve B16F10 melanom hücrelerine enjekte edilen WT embriyolarından elde edilen elektron paramanyetik rezonans sinyalini farklı gelişim zaman noktalarında karşılaştırdık.
WT embriyolarında, elektron paramanyetik rezonans sinyali zamanla kademeli olarak artmış ve gelişim sırasında eumelaninin doğal birikimi yansıtmıştır. Buna karşılık, B16F10 ksenograftları taşıyan embriyolar, WT ile karşılaştırıldığında değiştirilmiş bir elektron paramanyetik rezonans sinyali ile ilgili zaman noktalarında sinyal dinamiklerini değiştirmiştir (Şekil 7). Bu farklılıklar muhtemelen tümör kaynaklı konak melanogenezi ve sistemik redoks durumlarının modülasyonunu yansıtır; yalnızca melanom köklü melanin radikallerinin doğrudan tespiti değil. B16F10 hücreleri çoğunlukla eumelanin ürettiği için feomelanin sinyali tespit edilmemiştir.
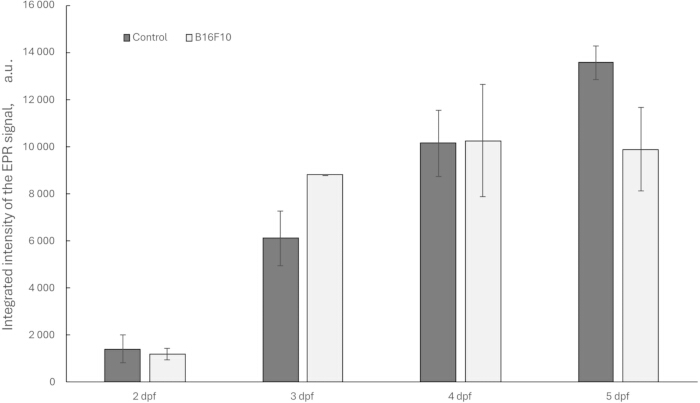
Şekil 7: Kontrol WT ve WT B16F10 taşıyan zebrafish embriyolarında tüm organizma EPR sinyal dinamiklerinin temsil karşılaştırması. Kontrol vahşi tip (WT) zebrafish ve WT B16F10 ksenograft embriyolarından döllenmeden 2, 3, 4 ve 5 gün sonra (dpf) çift entegre X-bandı elektron paramanyetik rezonans sinyali. Sinyal yoğunluğu, örnek başına embriyo sayısına normalize edildi. Veriler, kontrol için altı bağımsız biyolojik replikanın ve B16F10 ksenograftlarının her biri 7–10 embriyodan oluşan üç ksenograftın ortalama ± SD'sini temsil eder. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Genel olarak, bu protokolün başarılı uygulanması şu şekilde gösterilir: (i) pigmentli embriyolarda g ≈ 2 seviyelerinde net tek hatlı elektron paramanyetik rezonans sinyalinin tespiti, (ii) albino kontrollerde sinyal yokluğu, (iii) gelişim aşamasında sinyal yoğunluğunun artması ve (iv) normalleşmeden sonra biyolojik kopyalar arasında tekrarlanabilirlik.
Tartışma
Bu çalışma, zebrafish embriyolarında melaninle ilişkili radikallerin in vivo tespiti için X-bandı elektron paramanyetik rezonans spektroskopisi kullanılarak sağlam ve hassas bir protokol sunmaktadır. Bu yöntem, fizyolojik melanogenez, melanoma ksenograft gelişimi ve farmakolojik müdahale sırasında melanin ile ilişkili redoks değişikliklerinin invaziv olmayan, etiketsiz izlenmesini sağlar. X-bandı elektron paramanyetik rezonans spektroskopisinin yüksek hassasiyetini zebrafish ksenograft platformuyla birleştirerek, bu yaklaşım, mevcut zebrafish melanom modellerinin analitik yeteneklerini geleneksel morfolojik görüntülemenin ötesine doğru, redoks-aktif melanin türlerinin doğrudan biyokimyasal karakterizasyonuna genişletmektedir. Öncelikle yapısal ve mekansal bilgi sağlayan floresans tabanlı görüntülemenin aksine, elektron paramanyetik rezonans spektroskopisi kararlı paramanyetik semikinon radikallerini doğrudan tespit eder ve melanin redoks biyolojisine tamamlayıcı işlevsel içgörü sağlar.
Sunulan iş akışı, pigmentasyon ve melanom araştırmalarında geniş bir uygulama alanına sahiptir. Potansiyel uygulamalar arasında anti-melanom tedavilerinin değerlendirilmesi, ilaç kaynaklı redoks dengesindeki değişikliklerin araştırılması, depigmentasyon veya UV-yanıt ajanları gibi melanogenezi modüle eden bileşiklerin değerlendirilmesi ve tümör-konak etkileşimlerinin in vivo analizi yer almaktadır. Ayrıca, floresans görüntüleme ve diğer fenotipik testlerle entegrasyon, mekânsal, morfolojik ve biyokimyasal bilgileri birleştiren çok modlu bir platform sağlayarak zebrafish modellerinin preklinik araştırma ve terapötik geliştirmede öngörü değerini artırabilir.
Güvenilir sonuçlar elde etmek için birkaç deneysel parametre kritik öneme sahiptir. Ksenograft deneylerinde, dolaşıma enjeksiyon, sarı kesesi enjeksiyonuna göre daha tutarlı enstrtasyon ve tekrarlanabilir elektron paramanyetik rezonans ölçümleri sağlamıştır; bu da önceki çalışmalarlaörtüşmektedir 29,30. Kuluçka sıcaklığı seçimi önemli bir rol oynar. Zebrafish ksenograftları genellikle memeli hücre kinetiklerini desteklemek için 32 °C'detutulabilirken, bu çalışmada kullanılan fare B16F10 melanom hatları 28 °C'de sağlam çoğalma ve göç kapasitesi gösterecek kadar agresif görünmektedir. 32 °C bir ortam, zebrafish gelişimini önemli ölçüde hızlandırabilir—bu da döllenme sonrası beşinci günden önce bağımsız beslenme davranışına yol açabilir—larvaların 28 °C'de tutulması, organizmaların korunmayan gelişimaşamalarında kalmasını sağlar 32. Sonuç olarak, bu sıcaklık seçimi, tümör ilerlemesi ve metastazının başarılı gözlemlenmesini sağlarken, larvalar bağımsız beslenme aşamasına ulaştıklarında onları koruyan hayvan refahı düzenlemelerine uygun kalır. Bir diğer kritik nokta ise, embriyo sayısının doğru normalleşmesi ve tutarlı gelişimsel evremenin biyolojik değişkenliği en aza indirmek için hayati olmasıdır. Yetersiz pigmentasyon, düşük tümör yükü, rezonatör içindeki numune konumunun yetersiz olması veya eksik kapiller dolgu nedeniyle zayıf veya tutarsız sinyaller olabilir. Bu durumlarda, örnek başına embriyo sayısının artırılması, nakil verimliliğinin optimize edilmesi ve aktif rezonatör hacmi içindeki örnek yerleşiminin doğrulanması sinyal algısını iyileştirebilir. Düz bir kapiler içinde in vivo ölçümler için daha fazla embriyo gereklidir; çünkü sulu biyolojik örneklerde dielektrik kayıplar ve tüm organizma ölçümleriyle ilişkili azalmış dolgu faktörü vardır. Yine de bu yöntem standart kılıç damarlarıyla ex vivo kullanılabilir. Bu bulgular, protokolün yaygın olarak mevcut olan X-bandı elektron paramanyetik rezonans spektroskopisi konfigürasyonlarıyla uyumlu olduğunu ve gecikmeli ex vivo analizi desteklediğini, farklı enstrümantasyonlarla laboratuvarlar arasında erişilebilirliği ve tekrarlanabilirliği artırdığını göstermektedir.
Avantajlarına rağmen, yöntemin birkaç sınırlaması vardır. Önemli bir biyolojik husus, tespit edilen elektron paramanyetik rezonans sinyalinin sadece toplam pigment içeriği değil, melanin polimerinin redoks-aktif fraksiyonunuyansıtmasıdır 15,21,33. Buna göre, elektron paramanyetik rezonans sinyal yoğunluğundaki değişiklikler, melanin bolluğunun doğrudan bir vekili olarak değil, melanin ilişkili redoks dengesindeki değişiklikler olarak yorumlanmalıdır. Albino ksenograft deneyleri, mevcut deneysel koşullarda enjekte edilen melanom hücrelerinin sayısının X-bandı elektron paramanyetik rezonans spektroskopisinin doğrudan tespit eşiğinin altında kaldığını ayrıca göstermiştir. Bu nedenle, ksenograft taşıyan larvalarda tespit edilen tüm organizma sinyali, yalnızca ksenografttan kaynaklanan melanoma özgü sinyal değil, tümör-konak etkileşimleriyle indüklenen konak melanin-ilişkili redoks durumunda küresel değişiklikleri yansıtır. Önemli olarak, zebrafish mikro ortamı, dinamik oksijen gradyanları, metabolik etkileşimler ve oksidatif stres koşulları getirir; bu durumlar ayrıca melanin radikal popülasyonlarını in vivo19,20 olarak modüle edebilir. Ksenograft uygulamalarında yöntem şu anda yüksek pigmentli melanom modelleriyle sınırlıdır; çünkü güvenilir sinyal algılanması için yeterli melanin konsantrasyonu gereklidir. Amelanoz veya zayıf pigmentli tümörler tespit edilebilir sinyallerüretmeyebilir 27. Ayrıca, bu çalışmada kullanılan melanom hücre hatları (B16F10) ağırlıklı olarak eumelanin üretir ve bu da tek bir elektron paramanyetik rezonans hattı oluşturur. Önemli feomelanin katkısı olan modellerde, spektral örtüşmegerçekleşebilir 13. Bu durumlarda, eumelanin ve feomelanin sinyallerini ayırt etmek için gelişmiş spektral simülasyon ve dekonvolüsyon gereklidir.
Buna rağmen, sunulan iş akışı melanom biyolojisi, ilaç kaynaklı melanogenez, oksidatif stres ve tümör-konak etkileşimlerini in vivo incelemek için geniş bir potansiyel sunmaktadır. Elektron paramanyetik rezonans spektroskopisinin floresan görüntüleme, genetik raporlayıcılar ve diğer fenotipik testlerle entegrasyonu, zebrafish modellerinin preklinik melanom araştırmaları ve terapötik gelişimde öngörü değerini daha da artırabilir.
Açıklamalar
Yazar Mikołaj Baranowski, bu çalışmada kullanılan spektrometrenin (multiharmonik analizör) bileşenlerini üreten Novilet'te çalışmaktadır. Kalan yazarlar ise rekabet eden çıkarlar belirtmemektedir.
Teşekkürler
" Danio rerio embriyo modelinde melanoma için potansiyel ilaçların preklinik çalışmalarında kullanılmak üzere yeni bir kapiller ve melanin radikalini belirleme yöntemi" FENG.02.07-IP.05-0059/23 projesi, Avrupa Birliği tarafından Avrupa Akıllı Ekonomi Fonları 2021–2027 (FENG) kapsamında ortak finanse edilen Polonya Bilimi Vakfı'nın FENG POC programı kapsamında gerçekleştirilmiştir. Bu araştırma, Avrupa Birliği tarafından Akıllı Büyüme Operasyon Programı kapsamında desteklenmiştir (proje numarası POIR.01.02.00-00-0077/18).
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1.5 mL or 0.5 mL eppendorf tüpleri | Eppendorf | 0030120086, 0030121023 | Zebra balıkları larvalarını kapillerlere taşımak için |
| 3 mL tek kullanımlık Pasteur pipetleri | Medlab Products | 76-1303-2 | Embriyo ve larvaları sıralamak ve taşımak için |
| Masa üstü X-band EPR spektrometresi MiniScope MS200 | Magnettech | Bruker.com | EPR spektrum kaydı |
| Kalsiyum klorür, dihidrat | Chempur | 363-118748706 | E3 ortamını hazırlamak için |
| Hücre sayma slaytları (örn., EVE veya EVE PLUS) | Nanoentek Inc | NC2200445 | Hücre sayacı için |
| CellTracker Green | Thermo Fisher | C2925 | Hücre etiketleme için floresan hücre izleyici boya |
| CM-DiI | Thermo Fisher | C7000 | Hücre etiketleme için floresan hücre izleyici boya |
| CO2 inkübatör ICO240med | Memmert | N/A | Hücre bakımı için, 37°C, %5 CO2, %95 üzeri nemde ayarlanmış |
| Countess II Otomatik Hücre Sayacı | Invitrogen | AMQAX1000 | Hücre saymak ve hücre yoğunluğunu hesaplamak için |
| Kriyojen depolama kutuları CryoKING | Biologix | BGX-ID81 | Ksenografi bulunan zebra balıklarının depolanması için |
| Kriyopreservasyon ortamı CM-1 | Cytion | #800150 | Kanser hücrelerini dondurmak için |
| Dulbecco's Modifiye Edilmiş Kartal Ortamı (DMEM), yüksek glikoz, glutamin, sodyum pirüvatsız | Gibco | #11965-092 | Hücre kültürü bakımı için |
| E3 ortamı | Yerinde | N/A | Zebra balıkları embriyoları/larvaları beslemek için, Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449'a göre hazırlanmış |
| Yumurta inkübatörü | Incubato | 10130024 | Zebra balıkları embriyoları/larvaları için inkübasyon, 28-32°C'de ayarlanmış |
| eSpect+ yazılımı | Novilet | https://novilet.eu/products/espect/ | Multiharmonik analizör için |
| Fetal Boğa Serumu (FBS) | Gibco | A5256701 | DMEM için takviye |
| İnce forseps, seramik kaplamalı, Dumont #5, 11 cm | Dumont SA | 11252-50 | Zebra balıkları embriyolarının deşoriyo-nasyonu için |
| Zebra balıkları için tasarlanmış düz cam kılcal damarlar (Uygulama No.: 21 736) | N/A | N/A | Zebra balıkları embriyolarının EPR ölçümleri için |
| Cam kılcal iğneler | Harvard Apparatus | GB100-10 | Filamentsiz, mikro enjeksiyonlar için |
| Hematokrit kılcal damarlar (BRAND tek kullanımlık BLAUBRAND mikropipetler), 50 ve 100 μL hacim | BRAND | 41121500 | EPR ölçümleri için veya zebra balıkları larvalarını düz kılcal damara taşımak için |
| Magnezyum klorür, heksahidrat | Chempur | 363-116120500 | E3 ortamını hazırlamak için |
| Mikromanipülatör FemtoJet ile mikro enjeksiyon sistemi | Eppendorf | EPE5252000021 | Hücreleri mikron iğnelere yüklemek için |
| İğne yükleme için mikroloader uçları | Eppendorf | #5242956003 | Mikro enjeksiyon sistemi için |
| Mouse melanom hücre hattı B16-F1 | Cytion | CLS-400122 | Ksenografi için |
| Mouse melanom hücre hattı B16-F10 | Cytion | 305157 | Ksenografi için |
| Multiharmonik analizör eSpect+ | Novilet | https://novilet.eu/products/espect/ | EPR spektrometresi için, hassasiyeti artırmak için |
| Penisilin-Streptomisin çözeltisi | Sigma | P0781-50ml | Opsiyonel, DMEM için hücre kültürü takviyesi |
| Petri kabı, 55 mm | Medlab Products | 51-0056-0A-NX | Zebra balıkları yumurtaları, embriyoları ve larvaları için inkübasyon |
| Fosfat Tamponlu Salin (PBS), kalsiyum ve magnezyumsuz | Sigma | D8537-500ml | Hücreleri yıkamak için |
| Potasyum klorür | Chempur | 363-117397402 | E3 ortamını hazırlamak için |
| Hematokrit kılcal damarlar için sızdırmazlık kiti - Critoseal | Noxygen | NOX-A.3-VPC | Zebra balıkları embriyolarının EPR ölçümleri için |
| Sodyum klorür | Chempur | 363-117941206 | E3 ortamını hazırlamak için |
| Statik Depolama Sıvı Azot Kabı | Biobase | YDS-47-127-FS | Hücre kültürlerinin bankalanması için |
| Stereomikroskop | Optatech | SK Serisi | Zebra balıkları embriyolarının gelişimi değerlendirilmesi için |
| Steril 15 mL Falcon tüpleri | SPL Life Sciences | S50015 | Hücre hasadı (santrifüjleme) için |
| Steril 90 nm Petri kabakları | Googlab Scientific | GP508 | Hücre kültürleri için |
| Steril krioviyaller: CryoPure Tüp 1.0 mL | Sarstedt | 72.377 | Hücreleri dondurmak için |
| Dokunma kültürü steril |
Kaynaklar
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında