Bu çalışmada, plumbagin'in prostat kanseri tedavisindeki moleküler mekanizmaları ve yolakları araştırmak için ağ farmakolojisi ve moleküler dinamik simülasyonları kullanılmıştır. Sonuçlar, plumbagin'in AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ve PPARG ile stabil bir şekilde bağlanabileceğini göstermektedir.
Araştırma makalesi
Ağ Farmakolojisi ve Moleküler Dinamik Simülasyonları Kullanılarak Prostat Kanserinde Plumbagin'in Hesaplamalı Analizi
29 görüntülenme
⸱
11 Eylül 2026
* These authors contributed equally
Bu makalede
Özet
Özet
Prostat kanseri, erkekler arasındaki kansere bağlı ölümlerin temel nedenlerinden biridir. Birçok hastaya ancak hastalık lokal olarak ileri veya metastatik bir evreye ilerledikten sonra tanı konulduğu için, küratif tedavi genellikle artık mümkün olmamaktadır. Mevcut çalışmada, plumbagin'in prostat kanserindeki terapötik etkilerinin altında yatan potansiyel moleküler mekanizmaları araştırmak amacıyla ağ farmakolojisi, moleküler kenetleme ve moleküler dinamik simülasyonlarını birleştiren entegre bir hesaplamalı yaklaşım uyguladık. Potansiyel terapötik hedefler entegre veri tabanı analizi yoluyla belirlenmiş; ardından protein-ligand etkileşimlerinin stabilitesini değerlendirmek için protein-protein etkileşim ağı oluşturma, fonksiyonel zenginleştirme analizi, moleküler kenetleme ve moleküler dinamik simülasyonları gerçekleştirilmiştir. Hesaplamalı analizlerimiz; plumbagin'in, AKT serin/treonin kinaz 1 (AKT1) ve östrojen reseptörü 1 dahil olmak üzere birden fazla merkez hedefle stabil etkileşimler kurabileceğini belirlemiştir. (ESR1), BCL2 apoptoz düzenleyici (BCL2), epidermal büyüme faktörü reseptörü (EGFR), tümör nekroz faktörü (TNF), mitojenle aktive olan protein kinaz 3 (MAPK3), ısı şok proteini 90 alfa ailesi sınıf A üyesi 1 (HSP90AA1), SRC proto-onkogeni, reseptör dışı tirozin kinaz (SRC) ve peroksizom proliferatörle aktive edilen reseptör gama (PPARG), prostat kanseri progresyonunda yer alan temel yolakları modüle etme potansiyeline işaret etmektedir. Bu in silico bulgular, plumbagin'in olası moleküler mekanizmaları hakkında yeni bilgiler sunmakta ve gelecekteki deneysel doğrulamalar için bir temel oluşturmaktadır. Bununla birlikte, daha fazla in vitro ve in vivo fonksiyonel aktivitesini ve terapötik etkinliğini doğrulamak için çalışmalar yapılması gerekmektedir.
Giriş
Prostat kanseri, asla agresif malignitelere dönüşmeyebilen asemptomatik tarama ile saptanan lezyonlardan agresif malignitelere kadar değişen klinik belirtileriyle heterojendir ve dünya çapında morbidite ve mortalitenin önde gelen nedenlerinden biridir1,2. Küresel olarak, yeni prostat kanseri vakalarının sayısının 2020'deki 1,4 milyondan 2040'ta 2,9 milyona çıkacağı öngörülürken, yıllık ölüm sayısının 2020'deki 375.0'den 2040'ta yaklaşık 70.00'e yükselmesi beklenmektedir3. Başlangıçta androjen bağımlı bir malignite olarak teşhis edilen prostat kanseri, androjen deprivasyon tedavisi ile tedavi edilebilir. Bununla birlikte, etkili bir başlangıç yanıtına rağmen, hastalık kaçınılmaz olarak androjen bağımsız bir forma ilerler. Hormon refrakter prostat kanseri olan hastalar, klinik olarak anlamlı iskelet lezyonlarına yol açan kemik metastazları geliştirme konusunda önemli ölçüde artmış bir risk altındadır4,5,6,7. Ayrıca, erken evre prostat kanseri cerrahi veya radyoterapi ile tedavi edilebilse de, birçok hasta tanı anında halihazırda lokal olarak ilerlemiş veya metastatik hastalık sergilemektedir ve bunlar için şu anda küratif bir tedavi mevcut değildir8,9. Bu nedenle, prostat kanseri metastazının önlenmesi ve/veya tedavisi için etkili ve yüksek derecede seçici ajanların geliştirilmesine acil ihtiyaç vardır.
Likopen, soya ürünleri, yeşil çay, nar fenolikleri, apigenin ile D ve E vitaminleri gibi çeşitli doğal özütlerin prostat kanseri gelişimini etkili bir şekilde önlediği gösterilmiştir10,1,12,13. Doğada yaygın olarak bulunan ve Plumbago zeylanica'nın ana bileşeni olan doğal bir naftokinon bileşiği olan plumbagin (PLB); anti-enfektif14, anti-inflamatuar15, anti-aterosklerotik16 ve anti-tümör17,18 özelliklere sahiptir. Çalışmalar, PLB'nin meme kanseri, küçük hücreli dışı akciğer kanseri, karaciğer kanseri, pankreas kanseri, kolorektal kanser, over kanseri, prostat kanseri, gliyom ve retinoblastoma dahil olmak üzere çeşitli kanser hücresi türlerinde anti-tümör etkiler gösterdiğini kanıtlamıştır19,20,21. In vitro deneyler, PLB'nin prostat kanseri hücrelerinin proliferasyonunu inhibe ettiğini göstermiştir2,23. PLB ayrıca, prostat kanseri hücrelerinde hücre döngüsü kontrolü, apoptoz, otofaji ve epitel-mezenkimal geçiş dahil olmak üzere birden fazla hücresel davranışı etkileyen mikroprotein ekspresyonunu düzenler24,25. Ek olarak PLB, deri altı ksenogreft fare modellerinde androjen bağımsız kanser hücrelerinin büyümesini geciktir2,26.
Çok sayıda çalışma PLB'nin prostat kanseri hücrelerinin proliferasyon ve invazyonunu inhibe ettiğini göstermiş olsa da, şu an için PLB'nin bu hücreler üzerinde etki ettiği hedef ve yolaklara dair sistematik bir araştırma bulunmamaktadır. Bu çalışma; ağ farmakolojisi, moleküler kenetleme ve moleküler dinamik simülasyonlarını kullanarak, PLB'nin prostat kanserindeki terapötik etkilerinin altında yatan potansiyel hedef ve yolakları aydınlatmayı amaçlamıştır.
Protokol
PLB'nin potansiyel hedeflerinin öngörülmesi ve taranması
PLB'nin kimyasal yapı bilgileri PubChem veri tabanından (https://pubchem.ncbi.nlm.nih.gov/) elde edilmiştir. PLB'nin moleküler hedefleri; SwissTarget (https://swisstargetprediction.ch/index.php), SEA (https://sea.bkslab.org/), TargetNet (http://targetnet.scbdd.com/calcnet/index/), PharmMapper (https://www.lilab-ecust.cn/pharmmapper/index.html), Karşılaştırmalı Toksikogenomik Veri Tabanı (CTD, https://ctdbase.org/), Geleneksel Çin Tıbbı Sistemleri Farmakolojisi Veri Tabanı ve Analiz Platformu (TCMSP, https://www.tcmsp-e.com/index.php) ve HERB (http://herb.ac.cn/) veri tabanları kullanılarak, ligand tabanlı iki boyutlu ve üç boyutlu benzerliğe dayalı olarak tahmin edilmiştir. Veri güvenilirliğini ve tekrarlanabilirliğini sağlamak amacıyla, veri tabanına özgü filtreleme eşikleri şu şekilde uygulanmıştır: TCMSP'de oral biyoyararlanımı (OB) ≥ 30% ve ilaç benzerliği (DL) ≥ 0.18 olan hedefler tutulmuştur; SwissTargetPrediction'da tahmin olasılığı ≥ 0.5 olan girişler korunmuştur; PharmMapper'da normalize edilmiş uyum skoru ≥ 4.0 olan hedefler seçilmiştir; SEA'da yalnızca E-değeri < 0.001 olan hedefler anlamlı şekilde zenginleşmiş olarak kabul edilmiştir; TargetNet'te tahmin olasılığı > 0.5 olan hedefler tutulmuştur; CTD'de yalnızca küratörlü kanıta (kimyasal-gen etkileşimlerinden çıkarılan) ve etkileşim skoru > 0.3'e sahip hedefler dahil edilmiştir; HERB'de ise literatür destekli skoru ≥ 0.4 olan hedefler tutulmuştur. Yukarıdaki veri tabanlarından elde edilen tüm protein tanımlayıcıları, türü Homo sapiens ile sınırlandırılarak UniProt veri tabanı (https://www.uniprot.org/) aracılığıyla resmi insan HGNC gen sembollerine standartlaştırılmıştır. Tüm kaynaklardaki mükerrer girişler çıkarıldıktan sonra, sonraki analizler için toplam 50 benzersiz PLB ile ilişkili hedef elde edilmiştir.
Prostat kanseri ile ilişkili genlerin geri çağrılması
Prostat kanseri ile ilişkili hastalık genleri GeneCards (https://www.GeneCardss.org/), DrugBank (https://go.drugbank.com/), CTD ve HERB'den elde edildi. Veri güvenilirliğini sağlamak amacıyla veri tabanına özel dahil etme kriterleri uygulandı. GeneCards, hastalık sorgusuyla ilişkisini kuran orta ila güçlü kanıta sahip genleri kapsadığı için alaka puanı ≥ 0,5 olan genleri korudu. DrugBank, yalnızca deneysel kanıtı olan girişleri (örneğin, prostat kanseri için FDA onaylı veya araştırma aşamasındaki ilaçlar) dahil etti ve bilgisayar ortamında öngörülen veya teorik etkileşimleri hariç tuttu. CTD, küratörlü kimyasal-gen-hastalık etkileşimlerine dayanarak kanıt düzeyleri "marker" veya "mechanism" olarak sınıflandırılan kayıtları korudu. HERB, yeterli deneysel kanıt veya metin madenciliği kanıtını sağlamak için literatür destekli güven puanı ≥ 0,4 olan hedefleri dahil etti. Tüm gen sembolleri, türler Homo sapiens ile sınırlandırılarak UniProt veri tabanı (https://www.uniprot.org/) aracılığıyla HGNC nomenklatürüne göre standart hale getirildi ve kopyalar kaldırıldı; böylece sonraki analizler için 1.19 benzersiz prostat kanseri ilişkili hedef elde edildi.
Örtüşen hedef tanımlama ve çatışma anotasyonu düzeltmesi
50 PLB hedefi ve 1.19 prostat kanseri hedefi, Venny 2.1 (https://bioinfogp.cnb.csic.es/tools/venny/index.html) kullanılarak standartlaştırılmış HGNC sembolleri aracılığıyla kesiştirilmiş ve 151 örtüşen aday hedef elde edilmiştir. Veritabanları arası anotasyon çelişkilerini gidermek için üç adımlı bir düzeltme hattı uygulanmıştır: (i) gen takma adlarındaki tutarsızlıklar UniProt ID eşleme aracıyla birleştirilmiştir; (ii) paralog yedek genler, > 0.4 sekans benzerliği eşiği ile CD‑HIT kullanılarak hariç tutulmuştur; ve (iii) çelişkili fonksiyonel anotasyonlar yalnızca en az iki bağımsız veritabanı tarafından destekleniyorsa tutulmuş, tek bir kaynaktan gelen benzersiz çelişkili tanımlamalar ise elenmiştir.
Ağ oluşturma ve hub belirleme
Örtüşen hedefler Homo sapiens ile sınırlandırılmış bir arama yapılarak STRING veri tabanına (sürüm 12.0, https://cn.string-db.org/) yüklenmiş ve bir protein-protein etkileşim (PPI) ağı oluşturulmuştur. Yüksek güvenilirlik sağlamak amacıyla yalnızca birleşik güven puanı ≥ 0.70 olan etkileşimler tutulmuş ve herhangi bir bağlantısı olmayan tüm düğümler ağdan çıkarılmıştır. Oluşturulan PPI ağı Cytoscape'de (sürüm 3.10.2) görselleştirilmiş ve topolojik olarak analiz edilmiştir; ardından temel sıralama algoritması olarak MCC (Maximal Clique Centrality) ve yardımcı çapraz doğrulama metriği olarak Derece (Degree) kullanılarak cytoHubba eklentisi aracılığıyla hub genler belirlenmiştir.
Fonksiyonel zenginleştirme analizi
Diferansiyel olarak eksprese edilen genler için Gen Ontolojisi (GO) fonksiyonel anotasyon ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) yolak zenginleştirme analizleri, Biyoenformatik Çevrimiçi Analiz Platformu (https://www.bioinformatics.com.cn, son erişim 4 Mayıs 2026) kullanılarak gerçekleştirilmiştir. Platform, ham P değerlerini hesaplamak için Fisher'ın kesin testi yöntemini kullanmaktadır ve yanlış keşif oranını (FDR) kontrol etmek amacıyla çoklu test düzeltmesi için Benjamini-Hochberg (BH) yöntemi kullanılmıştır. FDR < 0,05 olan GO terimleri (biyolojik süreç, hücresel bileşen ve moleküler fonksiyon) ve KEGG yolakları anlamlı şekilde zenginleşmiş olarak kabul edilmiştir.
Moleküler kenetleme
Aktif konformasyonları temsil eden, seçilen hedef proteinlerin kristal yapıları RCSB Protein Veri Bankası'ndan (https://www.rcsb.org/) elde edilmiştir. Su moleküllerinin ve heteroatomların uzaklaştırılması, gereksiz zincirlerin silinmesi, eksik kalıntıların onarılması, pH 7.4'te hidrojen atomlarının eklenmesi, Gasteiger yüklerinin atanması ve enerji minimizasyonu dahil olmak üzere protein hazırlığı Discovery Studio'da gerçekleştirilmiştir. Bağlanma cebi, tüm kritik substrat-bağlanma kalıntılarını kapsayan bir ızgara kullanılarak, ko-kristalize ligand koordinatlarına göre tanımlanmıştır. PLB'nin moleküler kenetlenmesi, SwissDock web sunucusu (http://www.swissdock.ch/) üzerinden Attracting Cavities modülü kullanılarak yapılmıştır. Afiniteyi değerlendirmek için bağlanma serbest enerjileri hesaplanmış ve her hedef için en düşük enerjili konformasyon, final kenetlenme pozu olarak seçilmiştir. Moleküler kenetlenme simülasyonlarının sonuçları, doğrulamak amacıyla görselleştirilmiştir.
Moleküler dinamik simülasyonu
Moleküler dinamik (MD) simülasyonları GROMACS 202.2 kullanılarak gerçekleştirilmiştir. Proteini tanımlamak için Amber14SB kuvvet alanı kullanılmış ve sistem TIP3P su ile solvate edilmiştir. AM1-BCC kısmi yükleri ve GAFF2 atom tiplerini içeren Plumbagin parametreleri Antechamber kullanılarak oluşturulmuş, ardından ACPYPE ile topoloji dönüşümü yapılmış ve Joung-Cheatham iyon parametreleri atanmıştır. Her protein-ligand kompleksi, protein ile kutu arasında minimum 1.2 nm mesafe olacak şekilde kesik düzgün onikiyüzlü (truncated dodecahedral) bir simülasyon kutusuna yerleştirilmiş, TIP3P su molekülleri ile solvate edilmiş ve 0.15 M Na⁺/Cl⁻ eklenerek nötralize edilmiştir. En dik iniş (steepest descent) algoritması kullanılarak enerji minimizasyonundan (Fmax < 1,0 kJ·mol⁻1·nm⁻1) sonra sistem, 298 K'de her biri 20 ps süren ardışık NVT ve NPT dengelemelerine tabi tutulmuştur. Ardından, Verlet kesme şeması ve 2 fs entegrasyon zaman adımı kullanılarak NPT koşulları altında 20 ns boyunca üretim simülasyonları gerçekleştirilmiştir. Uzun menzilli elektrostatik etkileşimler parçacık ağı Ewald (PME) yöntemi ile hesaplanmış, hem elektrostatik hem de van der Waals etkileşimleri için 1.2 nm'lik bir kesme mesafesi uygulanmıştır. Hidrojen içeren bağları kısıtlamak için LINCS algoritması kullanılmıştır. Sıcaklık Nosé-Hoover termostatı ile 298 K'de, basınç ise Parrinello-Rahman barostatı ile 1 bar'da sabit tutulmuştur. Koordinatlar, sonraki analizler için her 10 ps'de bir kaydedilmiştir. Trajektör analizi ve görselleştirme GROMACS araçları, VMD ve PyMOL kullanılarak yapılmış; uygun olan durumlarda MM-PBSA bağlanma serbest enerjisi hesaplamaları ise gmx_MMPBSA ile gerçekleştirilmiştir.
Moleküler dinamik yörüngelerinin dengelenme değerlendirmesi ve MM-PBSA serbest enerji örnekleme protokolü
Her bir protein–plumbagin kompleksi için GROMACS kullanılarak 20 ns'lik tüm-atom üretim moleküler dinamik simülasyonu gerçekleştirilmiştir. 10 ns zaman noktası denge sınırı olarak belirlenmiştir: 0–10 ns'lik segment, protein ana zincirinin ve ligand bağlama cebinin sürekli konformasyonel ayarlamalar geçirdiği konformasyonel gevşeme fazı olarak tanımlanmıştır; 10–20 ns'lik segment ise RMSD, dönme yarıçapı (Rg), kalıntı bazlı RMSF, ligandın gömülü SASA'sı,le moleküller arası hidrojen bağları ve yalnızca küçük kararlı durum dalgalanmaları gösteren ligand–reseptör etkileşim enerjilerinde tek yönlü sürüklenmenin olmamasıyla kanıtlandığı üzere, termodinamik olarak kararlı plato olarak tanımlanmıştır. Tüm kantitatif kinetik parametreler ve MM/PBSA bağlanma serbest enerjileri, gmx_MMPBSA girdisi için sistem başına 1.00 denge anlık görüntüsü sağlayacak şekilde her 10 ps'de bir düzenli olarak karelerin çıkarıldığı 100–20 ns'lik denge fazından özel olarak hesaplanmıştır. Serbest enerji hesaplamalarındaki konformasyonel sürüklenme kaynaklı etkileri ortadan kaldırmak için gevşeme yörüngelerinin ilk 10 ns'lik kısmı dışlanmıştır.
Prostat kanserinde hedef genlerin prognostik analizi
Prognostik analizler, The Cancer Genome Atlas (TCGA) prostate kanseri veri setleri kullanılarak gerçekleştirilmiştir. RNA dizileme (STAR-counts) verileri ve ilgili klinik bilgiler Genomic Data Commons portalından (https://portal.gdc.cancer.gov) elde edilmiştir. Gen ekspresyon sayımları, milyon başına transkript (TPM) birimine dönüştürülmüş ve log2(TPM + 1) kullanılarak normalize edilmiştir. Klinik bilgileri eksik olan örneklerin çıkarılmasının ardından, analize 498 vaka dahil edilmiştir. Hastaları yüksek ve düşük ekspresyon gruplarına ayırmak için her bir genin medyan ekspresyon seviyesi kullanılmıştır. SRC için genel sağkalım (OS) ve MAPK3 için progresyonsuz sağkalım (PFS) değerlerini değerlendirmek amacıyla, log-rank testi ile Kaplan-Meier sağkalım analizi ve tek değişkenli Cox orantılı riskler regresyonu uygulanmış; hazard oranları (HR'ler) ve %95 güven aralıkları (CI'lar) raporlanmıştır. Öngörücü performans, 1, 3 ve 5. yıllarda zamana bağlı alıcı işletim karakteristiği (ROC) eğrileri oluşturularak daha ayrıntılı şekilde değerlendirilmiştir. İstatistiksel analizler R versiyon 4.0.3 ile yürütülmüş ve P < 0.05 değeri istatistiksel olarak anlamlı kabul edilmiştir.
Sonuçlar
PLB ve prostat kanseri hedeflerinin öngörü sonuçları
PLB'nin PubChem CID'si 10205 olup IUPAC adı: 5-hydroxy-2-methylnaphthalene-1,4-dione, SMILES: CC1=CC(=O)C2=C(C1=O)C=CC=C2O, InChIKey: VCMMXZQDRFWYSE-UHFFFAOYSA-N, InChI: InChI=1S/C1H8O3/c1-6-5-9(13)10-7(1(6)14)3-2-4-8(10)12/h2-5,12H,1H3, molekül ağırlığı: 18.18, molekül formülü: C1H8O3, CAS numarası: 481-42-5'tir. Yinelenenler çıkarıldıktan sonra, bu çalışmada SwissTarget, SEA, TargetNet, PharmMapper, CTD, TCMSP ve HERB veri tabanları kullanılarak 50 potansiyel PLB hedefi öngörülmüştür (Ek Tablo S1). Yinelenenler çıkarıldıktan sonra, GeneCards, DrugBank, TCMSP, CTD ve HERB veri tabanları kullanılarak prostat kanseri için 1.19 potansiyel hedef öngörülmüştür (Ek Tablo S2).
Ağ farmakolojisi ile öngörülen PLB'nin prostat kanserindeki etki mekanizması
Hedeflerin kesişimini analiz etmek için bir Venn diyagramı oluşturulmuş ve 151 örtüşen hedef belirlenmiştir (Şekil 1). Ardından, bu kesişen genler için bir protein-protein etkileşim (PPI) ağı oluşturulmuş (Şekil 2) ve düğüm derecesine göre görselleştirilmiştir; daha koyu kırmızı renk ve daha büyük düğüm boyutları daha yüksek dereceyi temsil etmektedir (Şekil 3). Kesişen genler arasından çekirdek hedef genleri (ilk 20) analiz etmek için Cytoscape yazılımı kullanılmıştır; TP53 12 ile en yüksek dereceyi göstermiş, onu 11 derecesi ile AKT1 takip etmiştir (Şekil 4).
Ardından, kesişen genler, Gen Ontolojisi (GO) ve KEGG yolak zenginleştirme analizleri için DAVID veri tabanına yüklendi. GO analizi sonucunda 4.156 biyolojik süreç (Ek Tablo S3), 292 hücresel bileşen (Ek Tablo S4) ve 562 moleküler fonksiyon (Ek Tablo S5) belirlendi. Her kategorideki en anlamlı zenginleşme gösteren ilk 10 terim görselleştirildi (Şekil 5A-C). KEGG analizine göre, 187 yolak anlamlı derecede zenginleşmişti (Ek Tablo S6) ve en ilgili ilk 10 yolak Şekil 5D'de sunulmuştur. Bunlar arasında prostat kanseri, hepatit B, kanserde proteoglikanlar, EGFR tirozin kinaz inhibitörlerine karşı direnç, lipid metabolizması ve ateroskleroz, insan sitomegalovirüs enfeksiyonu, kolorektal kanser, endokrin direnç, diyabetik komplikasyonlarda AGE-RAGE yolağı ve PI3K-Akt sinyal yolağı ile ilişkili yolaklar yer almaktaydı.
Prostat kanseri tedavisinde PLB'nin temel hedefleri
Ağ farmakolojisi analizi, PLB ve prostat kanseri arasında kesişen 151 gen belirlemiştir. PPI ağına dayanarak, en yüksek bağlanabilirliğe sahip ilk 20 potansiyel çekirdek hedef gen taranmıştır: tümör proteini p53 (TP53), AKT serin/treonin kinaz 1 (AKT1), sinyal iletici ve transkripsiyon aktivatörü 3 (STAT3), östrojen reseptörü 1 (ESR1), BCL2 apoptoz düzenleyici (BCL2), interlökin 6 (IL6), epidermal büyüme faktörü reseptörü (EGFR), katenin beta 1 (CTNNB1), tümör nekroz faktörü (TNF), fosfataz ve tensin homologu (PTEN), kaspaz 3 (CASP3), mitojenle aktive olan protein kinaz 3 (MAPK3), ısı şoku proteini 90 alfa ailesi sınıf A üyesi 1 (HSP90AA1), SRC proto-onkogen, reseptör dışı tirozin kinaz (SRC), peroksizom proliferatör aktive reseptör gama (PPARG), rapamisin mekanistik hedef kinaz (MTOR), ısı şoku proteini 90 alfa ailesi sınıf B üyesi 1 (HSP90AB1), glikojen sentaz kinaz 3 beta (GSK3B), prostaglandin-endoperoksit sentaz 2 (PTGS2) ve matriks metallopeptidaz 9 (MMP9). TP53 en yüksek bağlanabilirliği sergilemiş, onu AKT1 takip etmiştir; bu durum, bunların kilit hedefler olabileceğini düşündürmektedir.
Kenetleme ve moleküler dinamik simülasyonları için nihai hedefleri seçmek amacıyla; AKT1, STAT3, ESR1, BCL2, IL6, EGFR, TNF, MAPK3, HSP90AA1, SRC, PPARG, MTOR, HSP90AB1, GSK3B, PTGS2 ve MMP9 dahil olmak üzere, kristal yapıları mevcut ve bağlanma cepleri tanımlanmış pro-onkogenik proteinleri kodlayan genlere öncelik verdik. Buna karşılık, TP53 dahil olmak üzere tümör baskılayıcı genler, hedef inhibisyonu terapötik stratejisiyle uyumlu olmadıkları için hariç tutulmuştur.
Bu nedenle, ileri moleküler docking çalışmaları gerçekleştirilmiştir. Sonuçlar; PLB'nin AKT1 ile TRP80, SER205, LEU210, LEU264 ve LYS268 aracılığıyla -7.764 kcal/mol bağlama enerjisi (BE) ile etkileşime girdiğini27; PLB'nin STAT3 ile GLU612, SER613, ARG609 ve PRO639 aracılığıyla -5.149 kcal/mol BE ile etkileşime girdiğini28; PLB'nin ESR1 ile LEU346, PHE404, ALA350, LEU387 ve LEU391 aracılığıyla -7.165 kcal/mol BE ile etkileşime girdiğini29; PLB'nin BCL2 ile LYS53, PHE54 ve HIS50 aracılığıyla -5.564 kcal/mol BE ile etkileşime girdiğini30; PLB'nin IL6 ile GLN28, LYS27 ve ARG24 aracılığıyla -4.462 kcal/mol BE ile etkileşime girdiğini31; PLB'nin EGFR ile LEU778, LEU707 ve LEU789 aracılığıyla -6.25 kcal/mol BE ile etkileşime girdiğini32; PLB'nin TNF ile TYR59, GLY121 ve LEU120 aracılığıyla -6.570 kcal/mol BE ile etkileşime girdiğini3; PLB'nin MAPK3 ile ALA69, VAL56, ILE48, LEU124, MET125 ve LEU173 aracılığıyla -7.369 kcal/mol BE ile etkileşime girdiğini34; PLB'nin HSP90AA1 ile LEU107, PHE138, TYR139 ve TRP162 aracılığıyla -8.947 kcal/mol BE ile etkileşime girdiğini35; PLB'nin SRC ile LEU276, TYR343, MET34, ALA296, LEU396 ve VAL284 aracılığıyla -7.469 kcal/mol BE ile etkileşime girdiğini36; PLB'nin PPARG ile LEU30, ARG28, ILE326, MET329 ve ALA292 aracılığıyla -6.538 kcal/mol BE ile etkileşime girdiğini37; PLB'nin MTOR ile ALA2073, SER2069 ve HIS2024 aracılığıyla -4.672 kcal/mol BE ile etkileşime girdiğini38; PLB'nin HSP90AB1 ile TYR134, PHE13, TRP157 ve LEU102 aracılığıyla -6.928 kcal/mol BE ile etkileşime girdiğini39; PLB'nin GSK3B ile VAL70, VAL135 ve ALA83 aracılığıyla -6.79 kcal/mol BE ile etkileşime girdiğini40; PLB'nin PTGS2 ile VAL315, THR561, ARG31 ve ILE58 aracılığıyla -5.081 kcal/mol BE ile etkileşime girdiğini41; PLB'nin MMP9 ile LEU187, ALA189, MET247, TYR248, LEU18, HIS26 ve VAL23 aracılığıyla -7.101 kcal/mol BE ile etkileşime girdiğini42 göstermiştir. IL6 ve MTOR hariç, PLB'nin diğer proteinlerle olan bağlama enerjileri -5 kcal/mol'in altında olup, bu durum PLB'nin bu proteinlere stabil bir şekilde bağlanabileceğini göstermektedir (Tablo 1).
Ardından, PLB'nin bu hedef proteinlerle etkileşimlerini daha ayrıntılı analiz etmek ve bağlanma kararlılığını doğrulamak için moleküler dinamik simülasyonları gerçekleştirilmiştir. Bazı bileşikler docking skorlarında yüksek sıralama alsa da, ön moleküler dinamik simülasyonları birkaç sistemde erken ligand kayması veya ciddi konformasyonel bozulmalar olduğunu ortaya koymuştur. Bu nedenle, kararsız kompleksler hariç tutulmuş ve yalnızca başlangıç relaksasyonundan sonra tutarlı bağlanma pozlarını koruyanlar, genişletilmiş moleküler dinamik simülasyonları için aday olarak seçilmiştir. Nihai olarak tutulan hedefler AKT1 (Ek Dosya 1—Ek Şekil S1), ESR1 (Ek Dosya 1—Ek Şekil S2), BCL2 (Ek Dosya 1—Ek Şekil S3), EGFR (Ek Dosya 1—Ek Şekil S4), TNF (Ek Dosya 1—Ek Şekil S5), MAPK3 (Ek Dosya 1—Ek Şekil S6), HSP90AA1 (Ek Dosya 1—Ek Şekil S7), SRC (Ek Dosya 1—Ek Şekil S8) ve PPARG (Ek Dosya 1—Ek Şekil S9) olmuştur. 20 ns simülasyonun ardından; PLB ile AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ve PPARG kompleks yapılarının RMSD değerleri, simülasyon boyunca kademeli olarak stabilize olmuştur (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel A). Eş zamanlı olarak, Rg (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel B), ortalama kare sapma (RMSF) (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel C), protein ile ligand bağlanma bölgesi arasındaki mesafe (Dock site-ligand) (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel D), gömülü solvent erişilebilir yüzey alanı (Buried SASA) (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel E) ve bağlanma konformasyonu süperpozisyonu (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel F) gibi metrikler simülasyon ilerledikçe kademeli olarak stabilize olmuştur. Bu sonuçlar, protein-ligand komplekslerinin simülasyonlar boyunca yapısal kararlılığını koruduğunu göstermektedir. RMSD, Rg, RMSF, protein-ligand mesafesi ve gömülü SASA değerlerinin kademeli olarak stabil değerlere ulaşması, sınırlı atomik dalgalanmalara sahip kompakt bir komplekse ve bağlanma cebi içerisinde sürdürülen bir ligand doluluğuna işaret etmektedir. Ayrıca, plumbagin ile protein arasındaki temas alanı zamanla nispeten sabit kalmıştır. Van der Waals, hidrofobik ve elektrostatik etkileşimler de simülasyonlar boyunca stabil profiller sergilemiş ve protein-plumbagin komplekslerinin genel kararlılığını daha da desteklemiştir (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel G).
Solvasyon enerjisi göz önünde bulundurularak ve RMSD, Rg, Mesafe, Gömülü SASA ile etkileşim enerjileri kapsamlı bir şekilde değerlendirilerek, MM-PBSA (Molecular Mechanics-Poisson Boltzmann Surface Area) yöntemiyle BE ile ilgili terimleri hesaplamak için kararlı durum kompleks yörüngeleri seçilmiştir. Bildirilen afinite sıralamaları için güvenilirlik ölçümleri sağlamak amacıyla, tüm bağlanma serbest enerjileri, dengelenmiş MD yörüngelerinden alınan anlık görüntülerden hesaplanan ortalama ± SEM olarak bildirilmiştir (Tablo 2). Bunlar arasında AKT1 en negatif bağlanma serbest enerjisini sergilemiş, onu ESR1, HSP90AA1, SRC ve PPARG izlemiştir; bu durum, PLB'nin bu hedef proteinlere kararlı bir şekilde bağlanabileceğini göstermektedir.
Ayrıca, bu çalışma PLB ile hedefler arasındaki etkileşen kalıntıları analiz etmiş (Tablo 3'te detaylandırılmıştır) ve PLB'nin hedef proteinlere öncelikle hidrojen bağları (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel I), hidrofobik etkileşimler ve van der Waals kuvvetleri aracılığıyla stabil bir şekilde bağlandığını bulmuştur. Amino asit bağlanma enerjilerinin katkısı (bkz. Ek Dosya 1—Ek Şekil S1-S9, panel H) ve protein-PLB etkileşimleri analiz edilerek, bu çalışma şunları ortaya koymuştur: AKT1 için PLB bağlanmasındaki anahtar amino asitler TRP80 ve LEU264'tür; burada van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır; ESR1 için anahtar amino asitler LEU346 ve LEU525'tir; van der Waals kuvvetleri ana rolü, hidrofobik etkileşimler ikincil rolü ve elektrostatik etkileşimler tamamlayıcı rolü oynamaktadır; BCL2 için anahtar amino asitler TYR108 ve PHE104'tür; van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır; EGFR için anahtar amino asitler MET102 ve TYR98'dir; van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır; TNF-α için anahtar amino asitler TYR59 ve HIE15'tir; van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır; MAPK3 için anahtar amino asitler TYR53 ve LEU173'tür; van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır; HSP90AA1 için anahtar amino asitler PHE138 ve LEU107'dir; van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır; SRC için anahtar amino asitler LEU276 ve LEU396'dır; van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır; PPARG için anahtar amino asitler LEU30 ve ILE326'dır; van der Waals kuvvetleri ana rolü, elektrostatik ve hidrofobik etkileşimler ise ikincil rolleri oynamaktadır.
BCL2 hariç, bu çalışmada kullanılan tüm protein kristal yapıları bilinen inhibitörlerle birlikte ko-kristalize edilmiştir. Kenetleme yaklaşımımızın güvenilirliğini ve PLB'nin bağlanma potansiyelini daha fazla doğrulamak için, orijinal inhibitör bağlanma bölgelerine dayanarak aktif bağlanma cepleri tanımladık. Hem PLB hem de ilgili doğal inhibitörler aynı ceplere kenetlendi, bağlanma serbest enerjileri hesaplandı ve karşılaştırıldı. Her hedef için, doğal inhibitörün yalnızca kristalografik bağlanma konformasyonunu yakından yeniden üreten kenetleme pozları enerji karşılaştırması için dikkate alındı. Tablo 4'te gösterildiği gibi, PLB'nin kenetleme bağlanma serbest enerjileri sekiz hedefin tamamında ilgili doğal inhibitörlerinkilerle karşılaştırılabilir düzeydeydi; bu durum, PLB'nin bu doğrulanmış aktif bileşiklerle benzer cep-bağlanma afinitesine sahip olduğunu göstermektedir. Bu bulgu, yeni bir iskelet molekül olan PLB'nin, bu onkogenik merkezleri hedefleyen yeni anti-prostat kanseri ajanlarının geliştirilmesi için gelecek vadeden bir kimyasal şablon olarak hizmet edebileceğini göstermektedir.
Prostat kanserinde hedef genlerin prognostik değeri
Temsili hedefler olarak, TCGA veri setlerini kullanarak prostat kanserinde SRC ve MAPK3'ün prognostik önemini değerlendirdik. SRC için gradyan dağılım analizi, daha yüksek SRC ekspresyonunun artan mortalite ve anlamlı derecede daha kısa takip sağkalım süreleri ile ilişkili olduğunu göstermiştir (Şekil 6A). Kaplan-Meier sağkalım analizi (Şekil 6B), yüksek ekspresyon grubunun düşük ekspresyon grubuna göre belirgin şekilde daha kötü genel sağkalıma sahip olduğunu doğrulamıştır (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–7.234). Kümülatif hazard eğrileri, yüksek ekspresyon kohortunda herhangi bir zaman noktasında ölüm olasılığının daha yüksek olduğunu göstermiş ve SRC'nin kötü prognoz için bir risk faktörü olduğunu belirlemiştir. Zamana bağlı ROC eğrileri (Şekil 6C), sırasıyla 1, 3 ve 5. yıllarda 0,9, 0,878 ve 0,829 AUC değerleri sergilemiş olup, tüm değerlerin 0,7'yi aşması hem kısa hem de uzun vadeli sağkalım için mükemmel öngörü performansı olduğunu göstermiştir. Topluca bu bulgular, yüksek SRC ekspresyonunun prostat kanserinde olumsuz prognoz için bağımsız bir moleküler belirteç olarak hizmet edebileceğini düşündürmektedir.
MAPK3 için gradyan dağılımı, yüksek ekspresyonun daha ileri tümör progresyonu ve daha kısa progresyonsuz sağkalım ile ilişkili olduğunu ortaya koymuş ve öncül olarak MAPK3'ü potansiyel bir risk geni olarak önermiştir (Şekil 7A). Kaplan-Meier progresyonsuz sağkalım analizi (Şekil 7B), yüksek ekspresyon grubunun, düşük ekspresyon grubuna göre anlamlı derecede daha kısa progresyonsuz sağkalıma sahip olduğunu (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046–2.391) ve yüksek ekspresyon grubunda medyan progresyonsuz sağkalımın sadece 5,8 yıl olduğunu göstermiştir. Kümülatif hazard eğrileri, herhangi bir zaman noktasında progresyon olasılığının daha yüksek olduğunu daha da doğrulamıştır. Ancak, zamana bağlı ROC eğrileri (Şekil 7C), 1, 3 ve 5. yıllarda sırasıyla yalnızca 0.568, 0.563 ve 0.574 AUC değerleri ortaya koymuştur; tüm bu değerlerin 0.7'nin çok altında olması, MAPK3'ün tek başına prostat kanseri progresyon riski için sınırlı bağımsız öngörü değerine sahip olduğunu göstermektedir. Genel olarak, yüksek MAPK3 ekspresyonu prostat kanserinde daha kötü progresyonsuz sağkalım ile ilişkili olsa da, tek başına bir prognostik gösterge olarak kullanımı mütevazı öngörü doğruluğu nedeniyle sınırlıdır.
Veri Kullanılabilirliği Beyanı
Bu çalışmada sunulan orijinal katkılar, makalede veya Ek Materyallerde yer almaktadır.
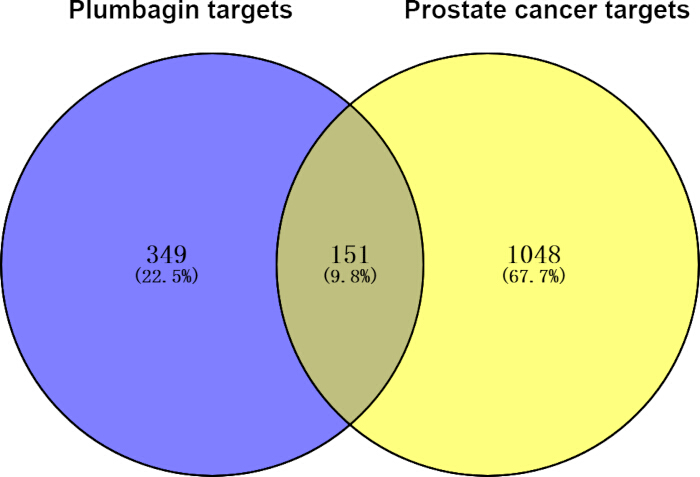
Şekil 1: Plumbagin ve prostat kanseri hedeflerinin kesişimi. Mavi, plumbagin hedeflerinin sayısını; sarı ise prostat kanseri hedeflerinin sayısını temsil etmektedir.
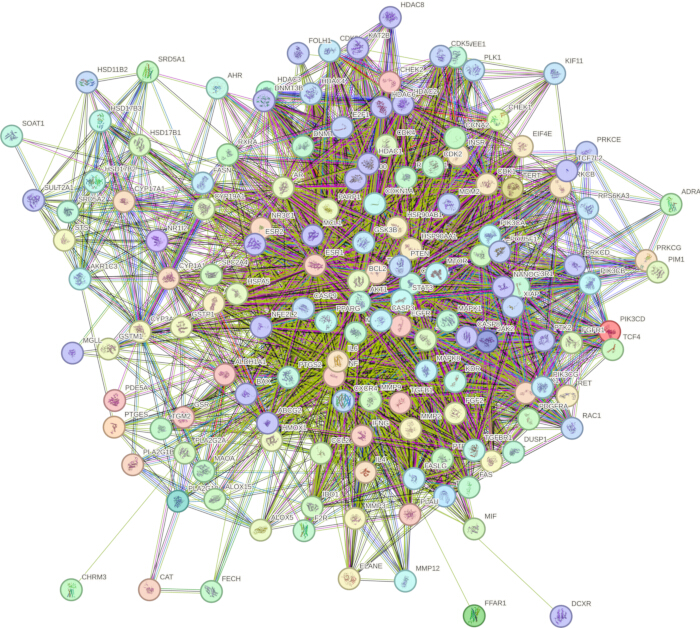
Şekil 2: Kesişen 151 hedefin protein-protein etkileşim ağı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
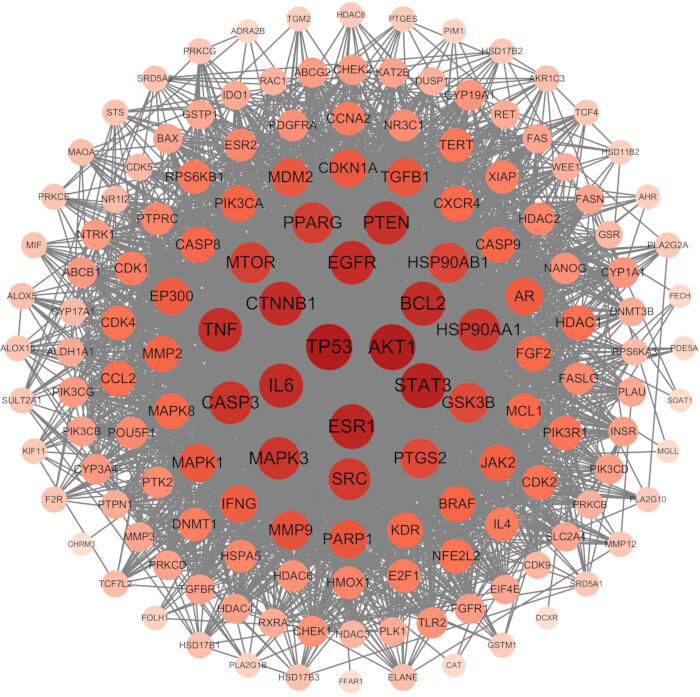
Şekil 3: Protein-protein etkileşim ağındaki düğüm derecesine dayalı olarak 151 çekirdek hedefin görselleştirilmesi. Dairelerin daha büyük boyutu ve daha koyu rengi, ağdaki daha yüksek derece değerlerini temsil eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
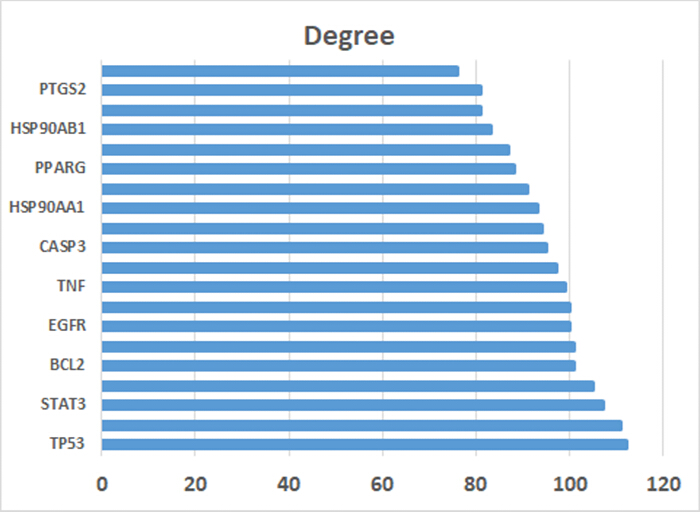
Şekil 4: En yüksek 20 çekirdek hedefin derece değerleri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
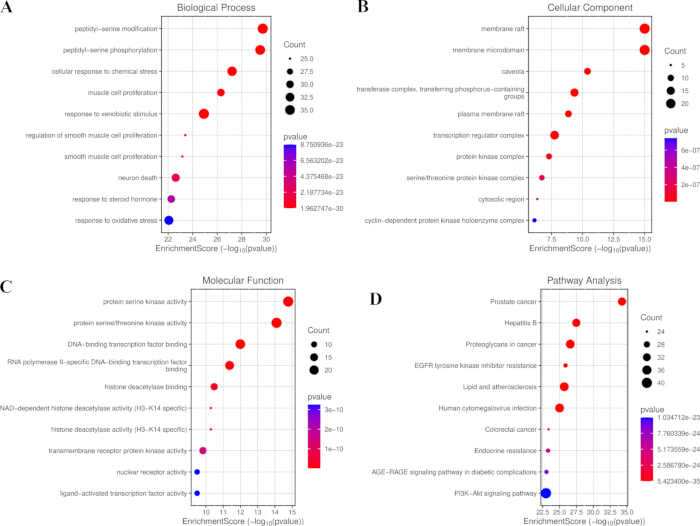
Şekil 5: 151 çekirdek hedefin zenginleştirme analizi. (A) GO analizinin biyolojik süreç kategorisindeki ilk 10 terim, (B) GO analizinin hücresel bileşen kategorisindeki ilk 10 terimi ve (C) GO analizinin moleküler fonksiyon kategorisindeki ilk 10 terim. (D) 151 çekirdek hedefin en zenginleşmiş ilk 10 KEGG yolu. Kısaltmalar: GO = Gen Ontolojisi; KEGG = Kyoto Gen ve Genom Ansiklopedisi. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
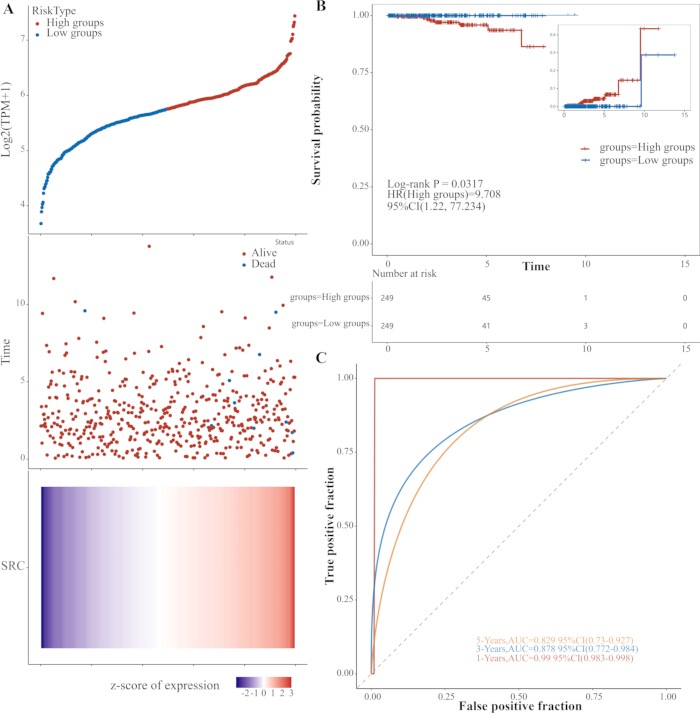
Şekil 6: ...nın prognostik analizi Lütfen çevrilecek kaynak metni (SRC) sağlayınız. Metni ilettiğinizde, belirttiğiniz profesyonel akademik standartlara ve JoVE kriterlerine uygun olarak Türkçe çevirisini gerçekleştireceğim. prostat kanserinde (TCGA). (A) ...'nın gradyan dağılımı Lütfen çevrilecek kaynak metni (SRC) sağlayın. Metni ilettiğinizde, belirttiğiniz tüm bilimsel standartlara ve akademik kurallara uygun olarak Türkçe çevirisini gerçekleştireceğim. sağkalım durumu ve takip süresine göre ekspresyon. (B) için Kaplan-Meier genel sağkalım eğrileri Lütfen çevrilecek kaynak metni (SRC) sağlayın. Metni ilettiğinizde, belirttiğiniz profesyonel akademik standartlara uygun olarak çevirisini gerçekleştireceğim. yüksek ve düşük ekspresyon grupları (Log-rank P = 0,0317, HR = 9,708, %95 GA: 1,2–7,234). (C) 1, 3 ve 5. yıllardaki zamana bağlı ROC eğrileri (AUC = 0,90, 0,878 ve 0,829). Kısaltmalar: TCGA = The Cancer Genome Atlas; HR = hazard oranı; CI = güven aralığı; ROC = alıcı işletim karakteristiği; AUC = eğri altındaki alan. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
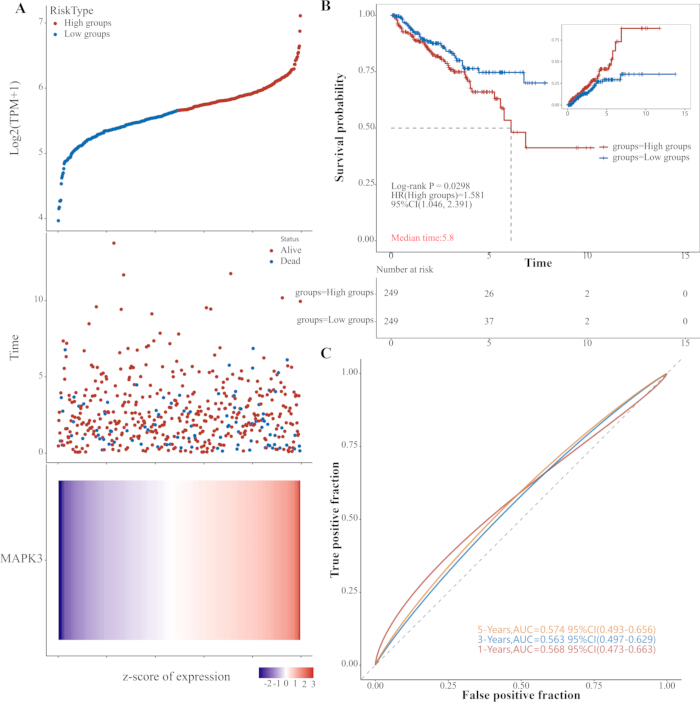
Şekil 7: ...nın prognostik analizi MAPK3 prostat kanserinde (TCGA). (A) ...'nın gradyan dağılımı MAPK3 progresyon durumuna ve progresyonsuz süreye göre ekspresyon. (B) şunlar için Kaplan-Meierle progresyonsuz sağkalım eğrileri MAPK3 yüksek ve düşük ekspresyon grupları (Log-rank P = 0,0298, HR = 1,581, %95 GA: 1,046-2,391). (C) 1, 3 ve 5. yıllara ait zamana bağlı ROC eğrileri (AUC = 0,568, 0,563 ve 0,574). Kısaltmalar: TCGA = The Cancer Genome Atlas; HR = risk oranı; CI = güven aralığı; ROC = alıcı işletim karakteristiği; AUC = eğri altındaki alan. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Tablo 1: Temel hedef moleküllerle yapılan moleküler kenetlenme çalışmalarında plumbaginin bağlanma enerjileri ve etkileşen kalıntıları. Atıfta bulunulan referanslar, biyolojik doğrulama çalışmalarından ziyade PDB yapı girişlerine (kristalografik ligand-bağlanma cebi atamaları) karşılık gelmekte olup, ilgili PDB ID'leri açıkça belirtilmiştir. Bu tabloyu indirmek için lütfen buraya tıklayınız.
Tablo 2: Kararlı durum koşulları altında plumbagin-hedef komplekslerinin bağlanma enerjileri ve bileşenleri (kJ/mol). Paralel tekrarlar olmaksızın, her kompleks için tek bir rastgele hız tohumu ile yalnızca tek bir 20 ns trajektori gerçekleştirilmiştir. Tüm konformasyonel örneklemeler, her trajektorinin 10–20 ns arasını kapsayan dengelenmiş plato bölgesinden çıkarılmıştır. ΔEele küçük molekül ile protein arasındaki elektrostatik etkileşimi, ΔEvdw van der Waals etkileşimini, ΔEpol elektrostatik potansiyel enerjiyi temsil edebilen polar solvasyon enerjisini ve ΔEnonpol hidrofobik etkileşimi temsil edebilen apolar solvasyon enerjisini temsil eder. ΔEMMPBSA = ΔEele + ΔEvdw + ΔEpol + ΔEnonpol. Gibbs bağlanma enerjisi, ΔGbind = ΔEMMPBSA + -TΔS. Bu tabloyu indirmek için lütfen buraya tıklayın.
Tablo 3: Plumbaginin hedef proteinlerle olan moleküler dinamik simülasyonundan etkileşen kalıntıların şematik diyagramı. Bu tabloyu indirmek için lütfen buraya tıklayınız.
Tablo 4: DPlumbagin ve doğal olarak ko-kristalize inhibitörlerin dokuz hedef protein için docking bağlanma serbest enerjileri. Lütfen bu tabloyu indirmek için buraya tıklayın.
Ek Dosya 1: Plumbagin'in AKT1, ESR1, BCL2, EGFR, TNF-α, MAPK3, HSP90AA1, SRC ve PPARG komplekslerinin moleküler dinamik simülasyon analizleri.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo S1: SwissTarget, SEA, TargetNet, PharmMapper, CTD, TCMSP ve HERB veri tabanları tarafından öngörülen potansiyel PLB hedefleri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S2: GeneCards, DrugBank, TCMSP, CTD ve HERB veri tabanları tarafından öngörülen potansiyel prostat kanseri hedefleri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S3: PLB ve prostat kanserinin örtüşen 151 hedefi için zenginleştirilmiş GO biyolojik süreçleri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S4: PLB ve prostat kanserinin örtüşen 151 hedefi için zenginleşmiş GO hücresel bileşenleri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S5: PLB ve prostat kanserinin örtüşen 151 hedefi için zenginleştirilmiş GO moleküler fonksiyonları.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S6: PLB ve prostat kanserinin örtüşen 151 hedefi için anlamlı derecede zenginleşmiş KEGG yolları.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Çalışmalar; AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ve PPARG'nin kanser progresyonunu teşvik etmede çeşitli roller oynadığını göstermiştir. Fosfatidilinositol 3-kinaz (PI3K)/serin/treonin protein kinaz (AKT)/rapamisin mekanistik hedefi (mTOR) sinyal yolu; hücre büyümesi, proliferasyon, apoptoz, anjiyogenez, enflamatuar yanıtlar ve kemotaksi dahil olmak üzere çeşitli patofizyolojik süreçleri düzenleyen kritik bir hücre içi sinyal iletim yoludur43. AKT, PI3K'nın önemli bir aşağı akış hedef kinazıdır ve p-AKT bu sinyal yolu için esastır. p-AKT, anti-apoptotik protein Bcl-2'yi aktive ederek ve pro-apoptotik protein Bax'ın aktivasyonunu azaltarak anti-apoptotik etkilerini gerçekleştirir4. GSK3β, temel bir hücre içi serin/treonin ailesi kinazı ve AKT'nin önemli bir aşağı akış hedef molekülüdür; birden fazla sinyal yoluna katılarak hücre döngüsünü, apoptozu, hücre invazyonunu/metastazını ve anjiyogenezi düzenler45. mTOR, oldukça korunmuş bir serin/treonin protein kinazı ve PI3K/AKT sinyal yolunun bir aşağı akış hedefidir. AKT, p-mTOR'u oluşturmak ve onu aktive etmek için mTOR'u fosforiller; bu durum daha sonra mRNA translasyonunu teşvik eder ve hücre metabolizması, büyüme, proliferasyon ve sağkalım gibi fizyolojik aktiviteleri düzenler46.
EGFR ile onun ligandları olan EGF ve TGFα, prostatın hem benign hem de malign hücrelerinde bulunur. EGF/TGFα ligandları ile EGFR arasındaki etkileşim, prostatın büyümesi ve gelişiminin yanı sıra prostat kanserinin başlangıcı ve ilerlemesinde önemli bir rol oynar47. Visacorpi ve ark.48, yüksek EGFR ekspresyonunun yüksek dereceli prostat kanseri ve kötü prognoz ile yakından ilişkili olduğunu bulmuşlardır. Ibrahim ve ark.49, EGFR ekspresyonunun normal veya benign hiperplastik prostat dokularında, prostat kanseri dokularına göre daha yüksek olduğunu bildirmişlerdir. Davies ve ark.50, prostat kanseri örneklerinde androjen reseptörü ekspresyonu ile EGF'nin EGFR'ye bağlanma afinitesi arasında negatif bir korelasyon bulmuşlar ve bu durum, EGF/EGFR sinyal sisteminin aktivasyonunun androjen bağımsız prostat kanserinin gelişimi ve ilerlemesinde rol oynadığını dolaylı olarak göstermiştir.
RAS/RAF/MEK/ERK kaskadı olarak da bilinen mitojenle aktive olan protein kinaz (MAPK) yolu; hücre büyümesi, proliferasyonu ve sağkalımında rol oynayan kritik bir sinyal yoludur. RAS, RAF, MEK ve ERK dahil olmak üzere temel bileşenlerindeki mutasyonlar çeşitli kanserlerde sıklıkla gözlemlenmekte olup tümör gelişimi ve ilerlemesini önemli ölçüde etkilemektedir51. MAPK sinyali, büyüme faktörleri, hormonlar, nörotransmitterler ve diğer hücre dışı uyaranlardan gelen sinyallerin iletimini düzenleyen temel sinyal iletim molekülleri olarak görev yapan serin/treonin protein kinazlar olan ERK'ler aracılığıyla gerçekleşir52. Bu yolun bileşenlerinin, özellikle mutasyonlar veya anormal sinyalleşme yoluyla hiperaktivasyonu, çok sayıda kanser türü ile ilişkilendirilmiştir. Yukarı akış kinazları olan MEK1/2, yolun uç noktasında ERK1/2'yi doğrudan aktive eder. Aktive olan ERK1/2, ardından transkripsiyon faktörleri ve düzenleyici moleküller dahil olmak üzere bir dizi nükleer ve sitoplazmik substratı fosforiller; böylece hücre proliferasyonunu kontrol eden erken yanıt genlerinin ekspresyonunu hızla indükler53,54. Sonuç olarak, bu aktive proteinler aşağı akış efektör moleküllerinin ekspresyonunu teşvik ederek onkojenik transformasyonu veya kontrolsüz hücre proliferasyonunu tetikler ve düzenler. Bunlar arasında, MAPK/ERK sinyal yolunda yakından ilişkili bir kinaz olan ERK1 (MAPK3), hücresel sinyal iletiminde kilit bir rol oynar ve prostat kanseri dahil olmak üzere kanserlerde hücre proliferasyonu, diferansiyasyonu ve sağkalımı gibi süreçlerin düzenlenmesi için gereklidir5.
Isı şok proteinleri (HSP'ler), istemci proteinlerinin yıkımını önleyen moleküler şaperonlardır. İnsan kanserlerinde HSP'ler sıklıkla yukarı regüle edilir ve tümör progresyonu ile yakından ilişkilidir; tumorigenez, anjiyogenez, apoptoza direnç ve metastaza katkıda bulunurlar56,57. Androjen reseptörü (AR), östrojen reseptörü (ER) ve MYC dahil olmak üzere istemci proteinlerin stabilitesini koruyarak HSP'ler; PI3K/Akt, JAK/STAT3, PKL1 ve MAPK gibi kritik sinyal yollarını düzenler ve sonuçta kontrolsüz hücre büyümesini, kalıcı anjiyogenezi, apoptozdan kaçışı, tümör invazyonunu ve metastazı teşvik ederler58,59,60. Bu ailenin temel bir üyesi olan HSP90, prostat kanserinde potansiyel bir terapötik hedef olarak tanımlanmıştır59,61,62. Prostat kanseri hücrelerinde HSP90, hem AR-FL hem de AR-V7 ile etkileşime girerek onları stabilize eder, ligand bağlama kapasitelerini korur ve HSP90 ekspresyonu, hastalık progresyonu ile AR-FL/AR-V7 seviyeleriyle pozitif korelasyon gösterir63. HSP90'ın farmakolojik inhibisyonu, AR-FL ve AR-V7'nin proteazomal yıkımını teşvik ederek kastrasyona dirençli prostat kanseri hücrelerinde tümör büyümesini ve metastazı azaltır63. HSP90AA1, AR aktivasyonu sırasında bir şaperon görevi görür ve inhibisyonu AKT/mTOR ve PLK1 yollarını baskılar. Ayrıca, HSP90AA1 ekspresyonunun azalması, prostat kanseri hücrelerinin migrasyonunu, invazyonunu ve proliferasyonunu önemli ölçüde azaltır64.
ESR1 insan prostatındaki çift östrojen reseptör sisteminin bileşenlerinden biridir. ESR1 yüksek dereceli prostatik intraepitelyal neoplazide (HGPIN) artmış düzeyde eksprese edilir, muhtemelen estradiolün karsinojenik etkilerine aracılık eder ve prostat kanseri gelişimi ile tümör progresyonunda rol oynar. ESR1 antagonisti toremifene kullanılarak yapılan ön klinik çalışmalar, ESR1'in prostat kanserini önleme konusunda gelecek vadeden bir hedef olduğunu belirlemiştir. ESR1 antagonistlerinin kullanımı, prostat kanserini önlemek ve hastalığın progresyonunu geciktirmek açısından büyük bir potansiyele sahiptir.65.
Nükleer reseptör süper ailesi üyesi olan PPARG, enflamatuar süreçlerin temel bir düzenleyicisidir6. Ligand ile indüklenen retinoid X reseptörü ile heterodimerizasyonun ardından PPARG, çeşitli genlerin transkripsiyonunu düzenlemek için DNA'daki PPAR yanıt elementlerine bağlanır. PPARG aktivasyonu, NF-κB ve MAPK sinyalleri yolaklarını baskılar, TNF-α ve IL-6 üretimini azaltır ve böylece enflamatuar yanıtları hafifletir67. Önceki çalışmalar, PPARG hedeflemesinin prostat kanseri tedavisi için kullanılabileceğini göstermiştir68. PTGS2 proteini, nükleer ve endoplazmik retikulum membranları ile ilişkili olarak perinükleer bölgede yerleşmiştir. Belirli bir stimülasyon üzerine seçilmiş hücrelerde hızla eksprese edilir ve enflamatuar yanıtların aracılık edilmesine katılır69.
PLB; prostat, akciğer, meme, melanoma ve yumurtalık kanseri dahil olmak üzere çeşitli kanser türlerine karşı kullanılan başlıca antikanser ajanlarından biridir19. PLB, çok sayıda hedefle etkileşime girerek ve AMPK, NFκB, PI3K/AKT/mTOR ve STAT3/PLK1/AKT dahil olmak üzere temel sinyal yolaklarını etkileyerek antikanser etkilerini gösterir; böylece apoptozu indükler, hücre döngüsünü durdurur, metastazı ve anjiyogenezi inhibe eder19,70. PLB ayrıca mitokondriyal membran potansiyelini azaltarak, ROS seviyelerini artırarak ve Bcl-2 protein ekspresyonunu downregüle ederek apoptozu indükleyebilir ve tümör hücresi proliferasyonu ile migrasyonunu inhibe edebilir71,72. Bu sonuçlar, PLB'nin hücre döngüsü, apoptoz, reaktif oksijen türleri oluşumu, otofaji ve PI3K/Akt/mTOR yolağı dahil olmak üzere çoklu hücresel süreçleri regüle edebileceğini göstermiştir. PI3K/Akt/mTOR sinyal yolağının prostat kanseri hücresi/dokusu proliferasyonundaki pozitif rolü göz önüne alındığında, bu yolağın hedeflenmesi belirgin bir seçenek haline gelmiştir. Ayrıca, Hafeez ve ark., bir prostat kanseri PTEN knockout fare modelinde PLB tedavisinin, prostat kanseri progresyonu için kritik olan epitelyal-mezenkimal geçişi, STAT3 ve AKT yolaklarını inhibe ettiğini bildirmişlerdir73.
PLB'nin translasyonel potansiyeli, farmakokinetik özelliklerinden ve biyoyararlanımından etkilenmektedir. Yüksek derecede lipofilik bir naftokinon olan PLB, düşük sulu çözünürlük ve hızlı klirens ile birlikte kısa bir eliminasyon yarı ömrü (35.89 ± 7.95 min) sergiler, bu da klinik uygulamasını sınırlandırır74. Bununla birlikte, bu sınırlamaların üstesinden gelmek için çeşitli ilaç taşıyıcı sistemler geliştirilmiştir. PEGile lipozomlar, serbest PLB ile karşılaştırıldığında yarı ömrü 36.38 kat (1,305.76 ± 278.16 min) ve AUC'yi 3.13 kat artırırken, melanoma taşıyan farelerde belirgin bir toksisite olmaksızın üstün antitümör etkinlik ve uzatılmış medyan sağkalım göstermiştir.74 Kitozan mikrosferler (yarı ömürde 2.2 kat artış), sıcaklığa duyarlı lipozomlar ve PLB konjuge altın nanoparçacıklar ile nanoemülsiyonlar da benzer şekilde iyileştirilmiş farmakokinetik profiller ve artırılmış antitümör aktivite sergilemiştir75,76,7. Önemli olan, PLB'nin preklinik modellerde terapötik dozlarda hematolojik parametrelerde veya ana organlarda belirgin bir toksisite gözlenmeksizin olumlu bir güvenlik profili göstermesidir74. Topluca, hesaplamalı bulgularımız PLB'nin AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ve PPARG ile stabil şekilde etkileşime girebileceğini, potansiyel olarak bunların fonksiyonel aktivitesini modüle edebileceğini ve böylece kanser hücresi büyümesi, proliferasyon, apoptoz, anjiyogenez, inflamatuar yanıtlar ve kemotaksi dahil olmak üzere aşağı akış süreçlerini etkileyebileceğini önermektedir. Bu bulgular doğası gereği hesaplamalıdır ve hipotez oluşturucu olarak yorumlanmalıdır, ancak PLB'nin antitümör aktivitesine dair mevcut preklinik kanıtlar ve gelişmiş formülasyon stratejileri, daha ileri deneysel doğrulama için güçlü bir temel oluşturmaktadır. Prostat kanserinde PLB'nin öngörülen etkileşimlerini ve terapötik potansiyelini doğrulamak için gelecekte in vitro, in vivo ve prospektif kohort çalışmaları yapılması gereklidir.
Mevcut çalışma, ... ile ilgili yolakları potansiyel olarak modüle etmesinin yanı sıra AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ve PPARG; PLB bu proteinlerle de etkileşime girebilir, potansiyel olarak bunların fonksiyonel aktivitelerini etkileyebilir ve böylece kanser hücresi büyümesi, proliferasyon, apoptoz, anjiyogenez, inflamatuar yanıtlar ve kemotaksis gibi alt süreçleri etkileyebilir. Ancak, bu bulgular hesaplamalı niteliktedir ve hipotez oluşturucu olarak yorumlanmalıdır. Daha ileri in vitro, in vivove öngörülen etkileşimleri doğrulamak ve prostat kanserinde PLB'nin terapötik potansiyelini teyit etmek için prospektif kohort çalışmaları gereklidir.
Ağ farmakolojisi ve moleküler dinamik simülasyonlarının sağladığı değerli içgörülere rağmen, bu çalışmanın birkaç kısıtlılığı bulunmaktadır. Genel veri tabanlarına olan bağımlılığın, düzensiz gen anotasyonu ve literatür kapsamı nedeniyle yanlılığa yol açabileceğini kabul ediyoruz. Bu sorunu en aza indirmek için çoklu veri tabanı çapraz doğrulaması uygulanmış olsa da, tüm hesaplamalı öngörüler deneysel onay gerektirmektedir. Kompleks başına, paralel tekrarlar olmadan, tek bir rastgele hız tohumu ile yalnızca tek bir 20 ns yörünge yürütüldüğü belirtilmelidir. Bu kısıtlama, simülasyon süresini uzatarak ve ilk 10 ns'yi dengeleme olarak dışlayarak etkisini azaltmış olsak da, MM-PBSA serbest enerjilerinin istatistiksel sağlamlığını etkileyebilir. Bu nedenle, bildirilen bağlanma afiniteleri nitel tahminler olarak yorumlanmalı ve doğrulama için gelecekteki tekrarlı simülasyonlar değerli olacaktır. Tamamen hesaplamalı bir analiz olan bu çalışma, in vitro veya in vivo doğrulamadan yoksundur; dolayısıyla, PLB'nin AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ve PPARG'ye bağlanma öngörüsü, biyolojik sistemlerde fonksiyonel inhibasyonu kanıtlamamaktadır. Ayrıca çalışma, hedef özgüllüğünü, hücresel biyoyararlanımı veya in vivo farmakokinetiği ele almamaktadır. Mevcut bulguları doğrulamak veya değiştirmek için alternatif deneysel yaklaşımlar; doğrudan bağlanma afinitesini ölçmek için yüzey plazmon rezonansı veya izotermal titrasyon kalorimetrisini, enzimatik inhibasyonu onaylamak için kinaz aktivite analizlerini, aşağı akış sinyal iletimini (örneğin, p-AKT, p-EGFR) değerlendirmek için western blotting'i ve prostat kanseri hücrelerinde proliferasyon ve apoptozu değerlendirmek için hücre tabanlı fonksiyonel analizleri (MTT, akış sitometrisi gibi) içermelidir. Ayrıca, nedensel rolleri ve terapötik uygunluğu belirlemek için CRISPR-Cas9 veya siRNA aracılı bireysel hedef nakavt çalışmaları ile in vivo fare ksenogreft modelleri esastır. Hesaplamalı öngörülerin ötesine geçip biyolojik olarak anlamlı sonuçlara ulaşmak için bu deneysel doğrulamalar gereklidir.
Sonuç olarak; ağ farmakolojisi, moleküler kenetlenme ve moleküler dinamik simülasyonlarının kullanıldığı bu çalışma, PLB'nin AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ve PPARG ile etkileşime girip aktivitelerini modüle edebileceğini ve böylece tümör hücresi biyolojik fonksiyonlarını etkileyebileceğini öne sürmektedir. Ancak, bu bulgular tamamen hesaplamalı olduğu için, kesin sonuçlar yerine hipotez oluşturucu olarak yorumlanmalıdır. Genel olarak sonuçlarımız, PLB'nin prostat kanseri tedavisindeki mekanizmalarına yönelik gelecekteki deneysel araştırmalar için yeni bakış açıları ve teorik bir temel sunmaktadır; yine de gerçek inhibitör etkilerini ve terapötik potansiyelini doğrulamak için in vitro ve in vivo çalışmalar gereklidir.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Karşılaştırmalı Toksikogenomik Veritabanı | Ulusal Çevre Sağlığı Çalışmaları Enstitüsü, Ulusal Nörolojik Hastalıklar ve İnme Enstitüsü | https://ctdbase.org/ | CTD, çevresel maruziyetlerin insan sağlığını nasıl etkilediğine dair anlayışı geliştirmeyi amaçlayan, güçlü ve kamuya açık bir veri tabanıdır. Kimyasal-gen/protein etkileşimleri, kimyasal-hastalık ve gen-hastalık ilişkileri hakkında manuel olarak düzenlenmiş bilgiler sunar. Bu veriler, çevresel etkilerin rol oynadığı hastalıkların altında yatan mekanizmalara dair hipotezlerin geliştirilmesine yardımcı olmak amacıyla fonksiyonel veriler ve yolak verileriyle entegre edilmiştir. |
| Cytoscape | Sistem Biyolojisi Enstitüsü, ISB, Leroy Hood | https://cytoscape.org/ | Başlangıçta özellikle biyomoleküler etkileşim ağları için tasarlanan yazılım, günümüzde biyoinformatik, sistem tıbbı, sosyal ağlar ve semantik ağlar gibi alanlarda yaygın olarak uygulanan, kompleks ağların analizi için çok yönlü bir platforma dönüşmüştür. |
| DAVID veri tabanı | Ulusal Sağlık Enstitüleri (NIH) | https://davidbioinformatics.nih.gov/list.jsp | Açıklama, Görselleştirme ve Entegre Keşif Veritabanı'nın kısaltması olan DAVID, gen seti fonksiyonel anotasyonu ve zenginleştirme analizi için kullanılan en klasik ve en yaygın ücretsiz çevrimiçi platformdur. |
| DrugBank | Alberta Üniversitesi, Kanada | https://go.drugbank.com/ | DrugBank, terapilerin keşif aşamasından hastaya ulaşana kadar olan sürecini ilerletmeye yardımcı olmak için en kapsamlı ve yapılandırılmış biyomedikal bilgileri sunan, biyofarma için geliştirilmiş bir istihbarat işletim sistemidir. |
| GeneCard | LifeMap Sciences | https://www.genecards.org/ | GeneCards; açıklanmış ve öngörülmüş tüm insan genleri hakkında kapsamlı ve kullanıcı dostu bilgiler sunan, aranabilir ve bütünleştirici bir veri tabanıdır. Bilgi tabanı; genomik, transkriptomik, proteomik, genetik, klinik ve fonksiyonel bilgiler dahil olmak üzere 193 web kaynağından gelen gen merkezli verileri otomatik olarak entegre eder. |
| gmx_MMPBSA | Medellin Columbia Üniversitesi | https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | Vald tarafından geliştirilen açık kaynaklı bir serbest enerji hesaplama aracı olan gmx_MMPBSAéMM/PBSA ve MM/GBSA metodolojilerine dayalı bağlanma serbest enerjilerini hesaplamak için s-Tresanco ve ark. tarafından geliştirilen yöntem benimsenmiştir. AmberTools'un MMPBSA.py motoru üzerine inşa edilen bu yöntem, GROMACS tarafından oluşturulan trajektori dosyalarını manuel format dönüştürmesine gerek kalmaksızın doğrudan işlemektedir. Temel amino asitlerin bağlanma katkılarını nicelleştirmek için kalıntı bazlı enerji ayrıştırması, hesaplamalı alanin taraması ve entropi düzeltmesi gerçekleştirilmiş; enerji bileşenlerinin istatistiksel analizi ve görselleştirilmesi için ise yerleşik gmx_MMPBSA_ana modülü kullanılmıştır. |
| GROMACS | Kraliyet Teknoloji Enstitüsü (KTH), Uppsala Üniversitesi | www.gromacs.org | GROMACS, yüzlerce ila milyonlarca parçacıktan oluşan sistemler için Newton hareket denklemlerinin simüle edilmesini, yani moleküler dinamik çalışmalarının gerçekleştirilmesini sağlayan çok yönlü bir paket ve topluluk odaklı bir projedir. Dokümantasyon iyileştirmeleri, hata düzeltme yamaları, forumlardaki tavsiyeler, sorunun yeniden üretilmesine olanak tanıyan hata raporları ve yeni fonksiyonellikler dahil olmak üzere birçok şekilde katkı sağlanması memnuniyetle karşılanır. |
| OT | Pekin Geleneksel Çin Tıbbı Üniversitesi, Pekin Geleneksel Çin Tıbbı Üniversitesi. | http://herb.ac.cn/ | Geleneksel Çin tıbbına yönelik, yüksek çıktılı deney ve referans kılavuzlu bir veri tabanı. |
| PharmMapper | Eczacılık Bilimi ve Teknolojisi Fakültesi / Bilgi Bilimi ve Mühendisliği Fakültesi, Doğu Çin Bilim ve Teknoloji Üniversitesi | https://www.lilab-ecust.cn/pharmmapper/index.html | PharmMapper Sunucusu, farmakofor haritalama yaklaşımını kullanarak verilen prob küçük moleküller (ilaçlar, doğal ürünler veya bağlanma hedefleri belirlenmemiş yeni keşfedilmiş diğer bileşikler) için potansiyel hedef adaylarını belirlemek amacıyla tasarlanmış, ücretsiz erişimli bir web sunucusudur. Oldukça verimli ve güvenilir haritalama yönteminden yararlanan PharmMapper, yüksek kapasiteli tarama yeteneğine sahiptir ve veri tabanındaki potansiyel hedef adaylarını birkaç saat içinde belirleyebilir. |
| PubChem | Ulusal Sağlık Enstitüleri (NIH) | https://pubchem.ncbi.nlm.nih.gov/ | PubChem, Ulusal Sağlık Enstitüleri (NIH) bünyesinde bulunan açık bir kimya veri tabanıdır. |
| PyMOL | Schrödinger | https://pymol.org | İlk olarak Warren Lyford DeLano tarafından geliştirilen ve şu anda Schrödinger tarafından desteklenen PyMOL,öSchrödinger, Inc., yapısal biyoloji ve bilgisayar destekli ilaç keşfinde yaygın olarak benimsenen, platformlar arası bir moleküler görselleştirme aracıdır. RCSB PDB'den indirilen protein-ligand kompleks yapıları; bağlanma konformasyonlarını, hidrojen bağlarını ve ana etkileşimli kalıntıları görselleştirmek amacıyla PyMOL'e yüklendi. Yapısal süperpozisyon, yüzey oluşturma ve yüksek çözünürlüklü yayın kalitesinde moleküler grafikler, yerleşik Python betikleme arayüzü aracılığıyla oluşturuldu. |
| RCSB Protein Veri Bankası | Yapısal Biyoenformatik Araştırma Kolaboratuvarı | https://www.rcsb.org/ | RCSB PDB (Research Collaboratory for Structural Bioinformatics Protein Data Bank), 198 yılında Helen M. Berman tarafından kurulup yönetilen Worldwide Protein Data Bank (wwPDB) konsorsiyumunun ABD veri merkezi olarak hizmet vermektedir. X-ışını kristalografisi, kriyojenik elektron mikroskobu ve NMR spektroskopisi ile çözümlenen proteinlerin, nükleik asitlerin ve bunların komplekslerinin deneysel olarak belirlenmiş üç boyutlu atomik yapılarını arşivlemekte ve AlphaFold'dan gelen milyonlarca yapay zeka tahminli protein yapı modelini entegre etmektedir. Web portalı; hedef belirleme ve moleküler kenetlenme çalışmalarında yaygın olarak kullanılan çok boyutlu aramayı, gerçek zamanlı 3D moleküler görselleştirmeyi, toplu koordinat dosyası indirmeyi ve yapısal verileri gen fonksiyonu, hastalık ve küçük molekül ligandlarıyla ilişkilendiren çapraz referans anotasyonlarını desteklemektedir. |
| SEA | California Üniversitesi, San Francisco (UCSF) Farmasötik Kimya Bölümü'ndeki Shoichet Laboratuvarı | https://sea.bkslab.org/ | Benzerlik Topluluğu Yaklaşımı (Similarity Ensemble Approach - SEA), proteinleri ligandları arasındaki küme bazlı kimyasal benzerliğe göre ilişkilendirir. Büyük bileşik veri tabanlarında hızlı arama yapmak ve hedef arası benzerlik haritaları oluşturmak için kullanılabilir. |
| STRING veri tabanı | Küresel Biyoveri Koalisyonu ve ELIXIR. | https://cn.string-db.org/ | STRING, bilinen ve öngörülen protein-protein etkileşimlerinin bulunduğu bir veri tabanıdır. Etkileşimler doğrudan (fiziksel) ve dolaylı (fonksiyonel) ilişkileri içerir; bunlar hesaplamalı öngörülerden, organizmalar arası bilgi aktarımından ve diğer (birincil) veri tabanlarından derlenen etkileşimlerden kaynaklanmaktadır. |
| Swiss Dock web sunucusu | Lozan Üniversitesi Moleküler Modelleme Grubu ve SIB İsviçre Biyoenformatik Enstitüsü | https://www.swissdock.ch/ | SwissDock, bir hedef protein ile küçük bir molekül arasında meydana gelmesi muhtemel moleküler etkileşimleri öngören bir web servisidir. |
| SwissTarget | SIB | İsviçre Biyoinformatik Enstitüsü Moleküler Modelleme Grubu | https://swisstargetprediction.ch/index.php | Bu web sitesi, biyoaktif olduğu varsayılan küçük bir molekülün en olası makromoleküler hedeflerini tahmin etmenize olanak tanır. Tahmin, üç farklı türe ait 30'den fazla protein üzerinde etkili olduğu bilinen 370.00 aktif molekülden oluşan bir kütüphane ile yapılan 2D ve 3D benzerlik kombinasyonuna dayanmaktadır. |
| TargetNet | Hesaplamalı Biyoloji & İlaç Tasarım Grubu | http://targetnet.scbdd.com/calcnet/index/ | TargetNet, herhangi bir molekül için birden fazla hedefin bağlanmasını öngörmek veya ağ şeklinde belirlemek amacıyla kullanılabilecek açık bir web sunucusudur. |
| Geleneksel Çin Tıbbı Sistem Farmakolojisi Veritabanı ve Analiz Platformu | Zhejiang Jiwei Health Co., Ltd | https://www.tcmsp-e.com/index.php | TCMSP, ilaçlar, hedefler ve hastalıklar arasındaki ilişkileri kayıt altına alan, Çin bitkisel ilaçlarına yönelik özgün bir sistemler farmakolojisi platformudur. Veritabanı; kimyasalları, hedefleri ve ilaç-hedef ağlarını ve bunlarla ilişkili ilaç-hedef-hastalık ağlarının yanı sıra, doğal bileşiklerin oral biyoyararlanım, ilaç benzerliği, intestinal epitel geçirgenliği ve kan-beyin bariyeri gibi farmakokinetik özelliklerini içermektedir. suda çözünürlük ve benzeri özellikler. Bu gelişme, çeşitli geleneksel Çin bitkilerinde aday ilaç arayışına yönelik yeni bir ilgi uyandırmıştır. |
| UniProt veri tabanı | Avrupa Biyoenformatik Enstitüsü (EMBL-EBI), SIB İsviçre Biyoenformatik Enstitüsü ve Protein Bilgi Kaynağı (PIR) | https://www.uniprot.org/ | UniProt dünyadaki’protein dizisi ve fonksiyonel bilgileri konusunda önde gelen, yüksek kaliteli, kapsamlı ve ücretsiz erişilebilir kaynak |
| Venny 2.1 çevrimiçi aracı | Centro Nacional de Biotecnologíaía, (CNB-CSIC) | https://bioinfogp.cnb.csic.es/tools/venny/index.html | Venny, tek bir standart html dosyasından oluşur. Bu dosyayı sabit diskinize kaydetmekten, favori tarayıcınızla açmaktan ve internet bağlantınız olmasa bile saniyeler içinde şık Venn diyagramları çizmeye başlamaktan çekinmeyin. |
| VMD | Beckman Enstitüsü, Illinois Üniversitesi at Urbana Champaign, ABD, Teorik ve Hesaplamalı Biyofizik Araştırma Grubu (TCBG) | VMD (Visual Molecular Dynamics) VMD, biyomoleküler sistemlerin görüntülenmesi ve analizi için geliştirilmiş güçlü bir programdır. VMD, moleküler dinamik simülasyonlarından elde edilen verilerin görselleştirilmesi, analiz edilmesi ve modellerin hazırlanması için kapsamlı bir araç seti sunar. Temel Özellikler: - Büyük moleküler sistemlerin yüksek performanslı görselleştirilmesi. - Geniş bir analiz araçları yelpazesi (RMSD, hidrojen bağları, solvent erişilebilir yüzey alanı vb.). - Tcl ve Python üzerinden genişletilebilir komut satırı arayüzü. - Çok sayıda dosya formatı için destek. - Grafiksel kullanıcı arayüzü (GUI) ile kolay kontrol. VMD, özellikle proteinlerin, nükleik asitlerin ve lipid membranların yapısal özelliklerini anlamak ve simülasyon sonuçlarını yorumlamak isteyen araştırmacılar için tasarlanmıştır. | VMD (Visual Molecular Dynamics), Illinois Üniversitesi Urbana-Champaign'deki Profesör Klaus Schulten liderliğindeki Teorik ve Hesaplamalı Biyofizik Grubu tarafından geliştirilen, ücretsiz ve platformlar arası bir moleküler görselleştirme ve yörünge analizi yazılımıdır. Yazılım; standart PDB yapılarını, GROMACS, NAMD ve Amber tarafından üretilen MD yörüngelerini desteklemekte olup çeşitli moleküler oluşturma stillerine ve yerleşik bir Tcl betikleme arayüzüne sahiptir. Dinamik protein-ligand etkileşimlerini ve konformasyonel dalgalanmaları karakterize etmek için RMSD, hidrojen bağı doluluk oranı, SASA ve ligand bağlanma cebi geometrisi dahil olmak üzere kantitatif analizler gerçekleştirilmiştir. |
Kaynaklar
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Loeb S, et al. Overdiagnosis and overtreatment of prostate cancer. Eur Urol. 2014;65(6):1046-55.
- James ND, et al. The Lancet Commission on prostate cancer: planning for the surge in cases. Lancet. 2024;403(10437):1683-722.
- Bussard KM, Gay CV, Mastro AM. The bone microenvironment in metastasis: what is special about bone? Cancer Metastasis Rev. 2008;27(1):41-55.
- Keller ET, et al. New trends in the treatment of bone metastasis. J Cell Biochem. 2007;102(5):1095-102.
- Kingsley LA, Fournier PG, Chirgwin JM, Guise TA. Molecular biology of bone metastasis. Mol Cancer Ther. 2007;6(10):2609-17.
- Valdespino V, Tsagozis P, Pisa P. Current perspectives in the treatment of advanced prostate cancer. Med Oncol. 2007;24(3):273-86.
- Albertsen P. Predicting survival for men with clinically localized prostate cancer: what do we need in contemporary practice? Cancer. 2008;112(1):1-3.
- So A, Gleave M, Hurtado-Col A, Nelson C. Mechanisms of the development of androgen independence in prostate cancer. World J Urol. 2005;23(1):1-9.
- Gupta S. Prostate cancer chemoprevention: current status and future prospects. Toxicol Appl Pharmacol. 2007;224(3):369-76.
- Patel D, Shukla S, Gupta S. Apigenin and cancer chemoprevention: progress, potential, and promise. Int J Oncol. 2007;30(1):233-45.
- Kallifatidis G, Hoy JJ, Lokeshwar BL. Bioactive natural products for chemoprevention and treatment of castration-resistant prostate cancer. Semin Cancer Biol. 2016;40-41:160-9.
- Montuori E, et al. Marine natural products with activities against prostate cancer: recent discoveries. Int J Mol Sci. 2023;24(2):1435.
- de Paiva SR, Figueiredo MR, Aragão TV, Kaplan MAC. Antimicrobial activity in vitro of plumbagin isolated from Plumbago species. Mem Inst Oswaldo Cruz. 2003;98(7):959-61.
- Luo P, et al. Anti-inflammatory and analgesic effect of plumbagin through inhibition of nuclear factor-κB activation. J Pharmacol Exp Ther. 2010;335(3):735-42.
- Sharma I, Gusain D, Dixit VP. Hypolipidaemic and antiatherosclerotic effects of plumbagin in rabbits. Indian J Physiol Pharmacol. 1991;35(1):10-4.
- Awale S, et al. Targeting pancreatic cancer with novel plumbagin derivatives: design, synthesis, molecular mechanism, in vitro and in vivo evaluation. J Med Chem. 2023;66(12):8054-65.
- Zhang R, Jiang Q, Guo R, Guo K, Qiu J. Unveiling the power of plumbagin: revitalizing exhausted T cells to combat tongue cancer. Cancer Cell Int. 2025;25(1):271.
- Panichayupakaranant P, Ahmad MI. Plumbagin and its role in chronic diseases. Adv Exp Med Biol. 2016;929:229-46.
- Kuete V, et al. Cytotoxicity of plumbagin, rapanone, and 12 other naturally occurring quinones from Kenyan flora towards human carcinoma cells. BMC Pharmacol Toxicol. 2016;17(1):60.
- Gharbaran R, Shi C, Onwumere O, Redenti S. Plumbagin induces cytotoxicity via loss of mitochondrial membrane potential and caspase activation in metastatic retinoblastoma. Anticancer Res. 2021;41(10):4725-32.
- Aziz MH, Dreckschmidt NE, Verma AK. Plumbagin, a medicinal plant-derived naphthoquinone, is a novel inhibitor of the growth and invasion of hormone-refractory prostate cancer. Cancer Res. 2008;68(21):9024-32.
- Powolny AA, Singh SV. Plumbagin-induced apoptosis in human prostate cancer cells is associated with modulation of cellular redox status and generation of reactive oxygen species. Pharm Res. 2008;25(9):2171-80.
- Qiu JX, et al. Plumbagin elicits differential proteomic responses mainly involving cell cycle, apoptosis, autophagy, and epithelial-to-mesenchymal transition pathways in human prostate cancer PC-3 and DU145 cells. Drug Des Devel Ther. 2015;9:349-417.
- Wang F, et al. Plumbagin induces cell cycle arrest and autophagy and suppresses epithelial-to-mesenchymal transition involving the PI3K/Akt/mTOR-mediated pathway in human pancreatic cancer cells. Drug Des Devel Ther. 2015;9:537-60.
- Lai L, et al. Plumbagin inhibits tumour angiogenesis and tumour growth through the Ras signalling pathway following activation of the VEGF receptor-2. Br J Pharmacol. 2012;165(4b):1084-96.
- Wu WI, et al. Crystal structure of human AKT1 with an allosteric inhibitor reveals a new mode of kinase inhibition. PLoS One. 2010;5(9):e12913.
- Bai L, et al. A potent and selective small-molecule degrader of STAT3 achieves complete tumor regression in vivo. Cancer Cell. 2019;36(5):498-511.e17.
- Fanning SW, et al. The SERM/SERD bazedoxifene disrupts ESR1 helix 12 to overcome acquired hormone resistance in breast cancer cells. Elife. 2018;7:e37161.
- Suraweera CD, Caria S, Järvå M, Hinds MG, Kvansakul M. A structural investigation of NRZ-mediated apoptosis regulation in zebrafish. Cell Death Dis. 2018;9(10):967.
- Boulanger MJ, Chow DC, Brevnova EE, Garcia KC. Hexameric structure and assembly of the interleukin-6/IL-6 α-receptor/gp130 complex. Science. 2003;300(5628):2101-4.
- Jia Y, et al. Overcoming EGFR(T790M) and EGFR(C797S) resistance with mutant-selective allosteric inhibitors. Nature. 2016;534(7605):129-32.
- Dos Santos Nascimento IJ, da Silva-Júnior EF. TNF-α inhibitors from natural compounds: an overview, CADD approaches, and their exploration as anti-inflammatory agents. Comb Chem High Throughput Screen. 2022;25(14):2317-40.
- Chaikuad A, et al. A unique inhibitor binding site in ERK1/2 is associated with slow binding kinetics. Nat Chem Biol. 2014;10(10):853-60.
- Brasca MG, et al. Discovery of NMS-E973 as a novel, selective, and potent inhibitor of heat shock protein 90. Bioorg Med Chem. 2013;21(22):7047-63.
- Gurbani D, et al. Structure and characterization of a covalent inhibitor of Src kinase. Front Mol Biosci. 2020;7:81.
- Gellrich L, et al. L-thyroxin and the nonclassical thyroid hormone TETRAC are potent activators of PPARγ. J Med Chem. 2020;63(13):6727-40.
- Weng Z, Shen X, Zheng J, Liang H, Liu Y. Structural basis of DEPTOR to recognize phosphatidic acid using its tandem DEP domains. J Mol Biol. 2021;433(13):166989.
- Huck JD, et al. Structures of Hsp90α and Hsp90β bound to a purine-scaffold inhibitor reveal an exploitable residue for drug selectivity. Proteins. 2019;87(10):869-77.
- Luo G, et al. Discovery of isonicotinamides as highly selective, brain-penetrable, and orally active glycogen synthase kinase-3 inhibitors. J Med Chem. 2016;59(3):1041-51.
- Orlando BJ, Malkowski MG. Crystal structure of rofecoxib bound to human cyclooxygenase-2. Acta Crystallogr F Struct Biol Commun. 2016;72(Pt 10):772-6.
- Nuti E, et al. Development of thioaryl-based matrix metalloproteinase-12 inhibitors with alternative zinc-binding groups: synthesis, potentiometric, NMR, and crystallographic studies. J Med Chem. 2018;61(10):4421-35.
- Li Q, Li Z, Luo T, Shi H. Targeting the PI3K/AKT/mTOR and RAF/MEK/ERK pathways for cancer therapy. Mol Biomed. 2022;3(1):47.
- Wang B, et al. Propofol protects against hydrogen peroxide-induced injury in cardiac H9c2 cells via Akt activation and Bcl-2 up-regulation. Biochem Biophys Res Commun. 2009;389(1):105-11.
- Majewska E, Szeliga M. AKT/GSK3β signaling in glioblastoma. Neurochem Res. 2017;42(3):918-24.
- Yang H, et al. mTOR kinase structure, mechanism, and regulation. Nature. 2013;497(7448):217-23.
- Fong CJ, Sherwood ER, Mendelsohn J, Lee C, Kozlowski JM. Epidermal growth factor receptor monoclonal antibody inhibits constitutive receptor phosphorylation, reduces autonomous growth, and sensitizes androgen-independent prostatic carcinoma cells to tumor necrosis factor α. Cancer Res. 1992;52(21):5887-92.
- Visakorpi T, Kallioniemi OP, Koivula T, Harvey J, Isola J. Expression of epidermal growth factor receptor and ERBB2 (HER-2/Neu) oncoprotein in prostatic carcinomas. Mod Pathol. 1992;5(6):643-8.
- Ibrahim GK, et al. Differential immunoreactivity of epidermal growth factor receptor in benign, dysplastic, and malignant prostatic tissues. J Urol. 1993;149(1):170-3.
- Davies P, Eaton CL. Binding of epidermal growth factor by human normal, hypertrophic, and carcinomatous prostate. Prostate. 1989;14(2):123-32.
- Bahar ME, Kim HJ, Kim DR. Targeting the RAS/RAF/MAPK pathway for cancer therapy: from mechanism to clinical studies. Signal Transduct Target Ther. 2023;8(1):455.
- Guo YJ, et al. ERK/MAPK signalling pathway and tumorigenesis. Exp Ther Med. 2020;19(3):1997-2007.
- Ullah R, Yin Q, Snell AH, Wan L. RAF-MEK-ERK pathway in cancer evolution and treatment. Semin Cancer Biol. 2022;85:123-54.
- Chambard JC, Lefloch R, Pouysségur J, Lenormand P. ERK implication in cell cycle regulation. Biochim Biophys Acta. 2007;1773(8):1299-310.
- Gesmundo I, et al. Proton pump inhibitors promote the growth of androgen-sensitive prostate cancer cells through ErbB2, ERK1/2, PI3K/Akt, GSK-3β signaling and inhibition of cellular prostatic acid phosphatase. Cancer Lett. 2019;449:252-62.
- Schopf FH, Biebl MM, Buchner J. The HSP90 chaperone machinery. Nat Rev Mol Cell Biol. 2017;18(6):345-60.
- García-Alonso S, et al. Structure of the RAF1-HSP90-CDC37 complex reveals the basis of RAF1 regulation. Mol Cell. 2022;82(18):3438-52.e8.
- Chiosis G, Digwal CS, Trepel JB, Neckers L. Structural and functional complexity of HSP90 in cellular homeostasis and disease. Nat Rev Mol Cell Biol. 2023;24(11):797-815.
- Li J, Buchner J. Structure, function, and regulation of the Hsp90 machinery. Biomed J. 2013;36(3):106-17.
- Youssef ME, et al. Role of ganetespib, an HSP90 inhibitor, in cancer therapy: from molecular mechanisms to clinical practice. Int J Mol Sci. 2023;24(5):5014.
- Solit DB, Scher HI, Rosen N. Hsp90 as a therapeutic target in prostate cancer. Semin Oncol. 2003;30(5):709-16.
- Hoter A, Rizk S, Naim HY. The multiple roles and therapeutic potential of molecular chaperones in prostate cancer. Cancers (Basel). 2019;11(8):1194.
- Moon SJ, et al. Bruceantin targets HSP90 to overcome resistance to hormone therapy in castration-resistant prostate cancer. Theranostics. 2021;11(2):958-73.
- Li J, et al. Androgen-targeted hsa_circ_0085121 encodes a novel protein and improves the development of prostate cancer through facilitating the activity of the PI3K/Akt/mTOR pathway and enhancing AR-V7 alternative splicing. Cell Death Dis. 2024;15(11):848.
- Taneja SS, et al. Toremifene: a promising therapy for the prevention of prostate cancer and complications of androgen deprivation therapy. Expert Opin Investig Drugs. 2006;15(3):293-305.
- Yang J, et al. Protective effect of Fuzi Lizhong decoction against non-alcoholic fatty liver disease via an anti-inflammatory response through regulation of p53 and PPARG signaling. Biol Pharm Bull. 2020;43(11):1626-33.
- Sui Q, et al. Ganoderic acid A: an in-depth review of pharmacological effects and molecular docking analysis. J Ethnopharmacol. 2025;349:119868.
- Zhang T, et al. PPARG is a potential target of Tanshinone IIA in prostate cancer treatment: a combination study of molecular docking and dynamic simulation based on transcriptomic bioinformatics. Eur J Med Res. 2023;28(1):487.
- Astakhova A, et al. Inhibitors of oxidative phosphorylation modulate astrocyte inflammatory responses through AMPK-dependent Ptgs2 mRNA stabilization. Cells. 2019;8(10):1185.
- Liu Y, Cai Y, He C, Chen M, Li H. Anticancer properties and pharmaceutical applications of plumbagin: a review. Am J Chin Med. 2017;45(3):423-41.
- Ahmad I, et al. Synergistic inhibition of colon cancer cell proliferation via p53, Bax, and Bcl-2 modulation by curcumin and plumbagin combination. ACS Omega. 2025;10(18):19045-60.
- Bello IJ, Oyebode OT, Olanlokun JO, Omodara TO, Olorunsogo OO. Plumbagin induces testicular damage via mitochondrial-dependent cell death. Chem Biol Interact. 2021;347:109582.
- Hafeez BB, et al. Plumbagin inhibits prostate carcinogenesis in intact and castrated PTEN knockout mice via targeting PKCε, Stat3, and epithelial-to-mesenchymal transition markers. Cancer Prev Res (Phila). 2015;8(5):375-86.
- Kumar MR, et al. Formulation of plumbagin-loaded long-circulating pegylated liposomes: in vivo evaluation in C57BL/6J mice bearing B16F1 melanoma. Drug Deliv. 2011;18(7):511-22.
- Mandala Rayabandla SK, et al. Preparation, in vitro characterization, pharmacokinetic, and pharmacodynamic evaluation of chitosan-based plumbagin microspheres in mice bearing B16F1 melanoma. Drug Deliv. 2010;17(3):103-13.
- Tiwari SB, Pai RM, Udupa N. Temperature-sensitive liposomes of plumbagin: characterization and in vivo evaluation in mice bearing melanoma B16F1. J Drug Target. 2002;10(8):585-91.
- Onoue S, Yamada S, Chan HK. Nanodrugs: pharmacokinetics and safety. Int J Nanomedicine. 2014;9:1025-37.