Bu protokol, episomal plazmid elektroporasyonu kullanarak primer amniyotik sıvı hücrelerinden integrasyon içermeyen aneuploid insan iPSC'lerin üretilmesi için tekrarlanabilir bir yöntem sunmaktadır. Kromozomal anomalileri stabilize etmek amacıyla iletim ve kültür koşullarını optimize ederek, alt araştırmalar ve klinik uygulamalar için hastalığa özgü modeller oluşturmaya yönelik pratik bir platform sağlamaktadır.
Yöntem makalesi
Epizomal Plazmid Elektroporasyonu aracılığıyla Primer Amniyotik Sıvı Hücrelerinden Aneuploid İnsan İndüklenmiş Pluripotent Kök Hücre Üretimi
Bu makalede
Özet
Özet
Belirli kromozomal aneuploidiler taşıyan amniyotik sıvı hücrelerinden (AFCs) hastaya özgü indüklenmiş pluripotent kök hücrelerin (iPSCs) üretilmesi, genetik bozuklukların modellenmesi için güçlü bir platform sağlar. Ancak, bu hücrelerin doğal genomik instabilitesi ve değişken proliferasyon kapasitesi nedeniyle, aneuploid AFC'ler için güvenilir ve tekrarlanabilir bir yeniden programlama hattı kurmak teknik olarak zor olmaya devam etmektedir. Burada, episomal plazmit elektroporasyonu kullanarak primer AFC'lerden aneuploid insan iPSC'leri üretmek için kapsamlı ve entegrasyonsuz bir yöntem sunuyoruz. Bu protokol; hücrelerin çözdürülmesi ve kademeli medya adaptasyon stratejisi ile genişletilmesi, elektroporasyon sistemi aracılığıyla optimize edilmiş plazmit iletimi, mezenkimal-epiteliyal geçiş (MET) odaklı medya değişimleriyle elektroporasyon sonrası ardışık kültür ve tanımlanmış morfolojik kriterlere dayalı mekanik koloni toplama işlemlerini kapsayan tüm iş akışını detaylandırmaktadır. Ayrıca, temel pluripotensi markörleri için immünofloresan boyama, aneuploid karyotipin korunduğunu doğrulamak için G-bantlama karyotip analizi ve PCR tabanlı episomal vektör temizliği doğrulaması dahil olmak üzere validasyon prosedürlerini açıklıyoruz. Besleyici hücre gerektirmeyen ve entegrasyonsuz olan bu protokol, hastalık modelleme, ilaç taraması ve kromozom biyolojisi çalışmaları için uygun aneuploid iPSC hatları sağlamaktadır.
Giriş
İndüklenmiş pluripotent kök hücre teknolojisinin ortaya çıkışı, insan embriyonik kök hücreleri (hESC'ler) ile ilişkili etik kaygılar olmadan hastaya özgü pluripotent hücrelerin üretilmesine olanak sağlayarak rejeneratif tıbbı, hastalık modellemeyi ve ilaç keşfini dönüştürmüştür. Hücresel yeniden programlamanın kavramsal temeli, Gurdon'un somatik hücre çekirdek transferi gösterimiyle1 başlamış, bunu embriyonik kök hücrelerin oluşturulması2,3,4 ve nihayetinde OCT4, SOX2, KLF4 ve c-MYC'nin ektopik ekspresyonu yoluyla indüklenmiş pluripotensinin geliştirilmesi5 izlemiştir. O zamandan beri iPSC teknolojisi; insan gelişimi, genetik bozukluklar ve hassas tıp araştırmaları için vazgeçilmez bir platform haline gelmiştir. Erken yeniden programlama yöntemlerinde retroviral veya lentiviral vektörler kullanılmış, ancak bunların entegrasyonla ilgili riskleri klinik uygulamaları sınırlandırmıştır. Sonuç olarak, entegrasyonsuz yeniden programlama yöntemlerinin geliştirilmesi, klinik translasyon için bir öncelik haline gelmiştir. Bunlar arasında Sendai virüsü6, sentetik mRNA7, oriP/EBNA1 (Epstein-Barr nükleer antijeni-1) mekanizmasına dayalı episomal vektörler8 ve yalnızca küçük moleküllü bileşiklerin kullanıldığı kimyasal yeniden programlama9,10,11,12 yer almaktadır.
Aneuploidi, insanlarda düşüklerin ve konjenital doğum kusurlarının temel nedenidir. Aneuploidi ile ilişkili gelişimsel anomalilerin altında yatan hücresel ve moleküler mekanizmaları anlamak, bu durumların genetik arka planını aslına uygun şekilde yansıtan uygun hücresel modeller gerektirir. Amniyotik sıvı hücreleri (AFCs), özellikle prenatal olarak teşhis edilmiş genetik bozukluklar bağlamında, hastaya özgü iPSC üretimi için cazip ve verimli bir başlangıç materyali sunar13,14,1516,17. Rutin amniyosentez sırasında elde edilen artık amniyotik sıvı, doğum sonrası ek invaziv doku biyopsisine gerek kalmadan fetal kaynaklı hücrelere erişim sağlar. Erişkin somatik hücrelerle karşılaştırıldığında, AFC'ler genellikle daha yüksek proliferasyon kapasitesi, daha uzun telomerler, daha düşük kümülatif çevresel mutasyon yükü ve daha yüksek gelişimsel plastisite sergiler; bunların tümü hücresel yeniden programlamayı kolaylaştırır18,19. Önemli bir nokta olarak AFC'ler, gelişmekte olan fetüsün kromozomal yapısını aslına uygun şekilde korur; bu da onları trisomy 2120, trisomy 1821, Turner sendromu ve Klinefelter sendromu22 dahil olmak üzere kromozomal anomalilerin hastalığa özgü iPSC modellerini oluşturmak için ideal bir kaynak haline getirir.
Bu protokol, episomal vektörler kullanarak aneuploid amniyotik sıvı hücrelerinden entegrasyonsuz iPSC'ler üretmek için kapsamlı bir kılavuz sunmaktadır. Yöntem; hücre izolasyonu, yeniden programlama, klon seçimi ve karakterizasyon için ayrıntılı prosedürler içermektedir. Diğer entegrasyonsuz yeniden programlama yöntemleriyle karşılaştırıldığında, episomal plazmit sistemi; genomik güvenlik, teknik basitlik ve maliyet etkinliği arasında pratik bir denge sağlayarak, rutin laboratuvar kullanımı ve büyük ölçekli biyobanka uygulamaları için özellikle uygun hale gelmektedir. Protokol, hem mevcut biyobankalardaki kriyoprezerve AFC'lere hem de rutin prenatal tanı sırasında elde edilen taze rezidüel amniyotik sıvı örneklerine uygulanabilir. AFC'ler için rapor edilen episomal yeniden programlama verimlilikleri nispeten düşük olsa ve yeniden programlama veya uzun süreli kültür sırasında, özellikle belirli aneuploidilerde spontan kromozom kurtarması gerçekleşebilse de; iş akışı, hastalığa özgü iPSC biyobankalarının kurulmasına, kromozom biyolojisi ve erken insan gelişim çalışmalarına ve ardından soy hattına özgü hücre tiplerine farklılaştırmaya kolayca uygulanabilir. Bu yaklaşım, prenatal örneklerden hastalık modelleme ve kromozomal anomalilerin mekanistik çalışmaları için entegrasyonsuz, klinik olarak ilgili iPSC hatları üretmek için özellikle uygundur.
Protokol
İnsan amniyotik sıvı örneklerini içeren tüm prosedürler Helsinki Deklarasyonu'na uygun olarak yürütülmüş ve Peking University Third Hospital Kurumsal İnceleme Kurulu (IRB)/İnsan Araştırmaları Etik Kurulu tarafından onaylanmıştır (Protokol No. M2023406). Aneuploid örnekler, insan gelişimsel ve üreme kaynakları konusunda uzmanlaşmış, devlet onaylı bir klinik depo olan Peking University Third Hospital Üreme Tıbbı Merkezi Biyobankasından temin edilmiştir. Bu spesimenler, klinik prenatal tanı için rutin amniyosentez sırasında toplanan ve aksi takdirde atılacak olan artık amniyotik sıvılardan oluşmaktadır. Toplama işleminden önce tüm donörlerden, artık örneklerin Biyobankada saklanmasına ve sonrasında araştırmalarda kullanılmasına açıkça izin veren yazılı bilgilendirilmiş onam alınmıştır. Hasta gizliliğini korumak amacıyla tüm örnekler kesin olarak anonimleştirilmiştir. Klinik G-bantlama analizi yoluyla tanımlanan; Trisomy 21 (Down sendromu, N = 2), Trisomy 18 (Edwards sendromu, N = 1), Monosomy X (Turner sendromu, N = 1) ve Klinefelter sendromu (N = 2) dahil olmak üzere onaylanmış aneuploid karyotiplere sahip örnekler iPSC indüksiyonu için seçilmiştir. Yeniden programlamada kullanılan aneuploid hücre hatlarına ilişkin detaylı bilgiler Tablo 1'de özetlenmiştir.
1. Biyobanka amniyotik sıvı hücrelerinin çözdürülmesi ve primer kültürü
NOT: Bu bölüm, biyobankadan aneuploid AFC'lerin geri alınması ve kurtarılması için standartlaştırılmış prosedürü detaylandırmaktadır. Kültürlenen hücreler, sonraki episomal yeniden programlama için yeterli popülasyonlar elde etmek amacıyla genişletilir.
- Standardize çözdürme prosedürü
- Besiyeri dengeleme: Tam AmnioType-1 besiyerini şu sıcaklığa kadar ısıtın: 37 °C kullanmadan önce.
- Numune geri kazanımı: Sıvı nitrojen depolama alanından, hücre dondurma ortamında kriyoprezerve edilmiş yaklaşık 300.000 AFC içeren bir kriyotüpü çıkarın. Erken çözünmeyi önlemek için tüpü derhal kuru buz üzerinde laboratuvara nakledin.
- Hızlı çözdürme: Kriyotüpün alt yarısını bir ... içine daldırın 37 °C su banyosuna yerleştirin ve hafifçe çalkalayın. Sadece küçük, görünür bir buz kristali kaldığında çözdürme işlemini durdurun.
NOT: Tamamen çözülmesinden kaçının. Bu, hücrelerin sıcak DMSO'nun toksik etkilerine maruz kalmasını önler. - Seyreltme: Laminar akış kabininde, hücre süspansiyonunu damla damla, 4 mL ön ısıtılmış AmnioType-1 besiyeri içeren 15 mL'lik konik tüpe aktarın.
- Santrifüjleme: Süspansiyonu 300'de santrifüjleyin × g oda sıcaklığında 5 dakika boyunca.
- Ekme: Süpernatanı aspire edin ve hücre peletini 2 mL taze AmnioType-1 besiyerinde nazikçe resüspande edin. Hücreleri, %0,1 Jelatin ile önceden kaplanmış 6 kuyucuklu plakaya veya T25 flaska, cm² başına 30.000–50.000 hücre yoğunluğunda aktarın.².
- İlk inkübasyon: Hücreleri nemlendirilmiş bir inkübatörde şu sıcaklıkta bekletin: 37 °C ve %5 CO₂2Ekimetme sonrası 3. günde, başlangıç hücre tutunmasını doğrulamak için flaskları ters faz kontrast mikroskobu altında inceleyin.
- Primer AFC'lerin ekspansiyonu ve besiyeri geçişi
- Fibroblast kültürü (FC) besiyeri hazırlama: 100 mL ev yapımı fibroblast kültürü besiyeri hazırlamak için 82 mL yüksek glukozlu DMEM ile 15 mL Fetal Bovine Serum'u (FBS) birleştirin. 1 mL 100× GlutaMAX, 100'lük 1 mL× esansiyel olmayan amino asitler (NEAA) ve 1 mL Penisilin-Streptomisin (P/S). Besiyerini bir ... aracılığıyla filtreleyin 0.22 µm steril bir ortamda vakum filtrasyon sistemi.
- Ekspansiyon sırasında, elektroporasyon öncesinde metabolik stabiliteyi sağlamak için AFC ortamını her 3 günde bir, özel klinik ortamdan (AmnioType-1) standartlaştırılmış bir fibroblast kültür sistemine (FC ortamı, ev yapımı) kademeli olarak değiştirin.
- Kademeli bir besiyeri geçişi gerçekleştirin:
- 3. Gün (%75 AmnioType-1: %25 FC): Mevcut AmnioType-1 besiyeri aspire edin. %75 AmnioType-1 ve %25 FC besiyerinden oluşan karışık bir besiyeri ekleyin.
- 6. Gün (%50 AmnioType-1: %50 FC): Aspirasyon yapın ve 1:1 oranında AmnioType-1 ve FC besiyeri ile değiştirin.
- 9. Gün (%25 AmnioType-1: %75 FC): Aspire edin ve %25 AmnioType-1 ile %75 FC ortamı karışımı ile değiştirin.
- 12. Gün (%100 FC): Aspirasyon yapın ve %100 FC besiyerine geçin.
NOT: Bu kademeli adaptasyon, hücresel şoku azaltır ve hassas aneuploid klonların ayrılmasını önler.
- Kademeli bir besiyeri geçişi gerçekleştirin:
- Koloni morfolojisini günlük olarak gözlemleyin. Amniyotik sıvı, heterojen bir hücre popülasyonu içerir. Faz kontrast mikroskobu altında iki ana tipi tanımlayın: F-tipi (fibroblast benzeri, iğ şeklinde) ve E-tipi (epitel benzeri, yuvarlak). Fibroblast benzeri mezenkimal alt popülasyon, yeniden programlama için optimaldir.
NOT: Hücreleri senesans belirtileri açısından yakından izleyin.
- Primer AFC'lerin pasajlanması
- Hücreler %80-90 konfluense ulaştığında (genellikle 10-14. Gün), flasktaki besiyerini aspire edin ve Ca içermeyen 2 mL Dulbecco fosfat tamponlu salin (DPBS) ile nazikçe bir kez yıkayın.²⁺/Mg²⁺.
- 1 mL ekleyin 6 kuyucuklu bir plakanın tek bir kuyucuğundaki hücre monokatmanını kaplamak için %0,25'lik Trypsin-EDTA çözeltisi.
- Şu sıcaklıkta inkübe edin: 37 °C hücreler tamamen ayrılana kadar 4–5 dk boyunca.
- 3 mL FC besiyeri ekleyerek disosiasyon reaktifini nötralize edin. Süspansiyonu 15 mL'lik konik bir tüpe aktarın.
- 300'de santrifüjleyin × g oda sıcaklığında 5 dakika boyunca.
- Süpernatantı aspire edin ve hücre peletini 1 mL taze FC ortamında yeniden süspande edin. Trypan mavisi dışlama yöntemiyle, bir hemositometre veya otomatik hücre sayıcı kullanarak canlı hücreleri sayın.
- Hücreleri, cm² başına 30.000–50.000 hücre yoğunluğunda yeni bir T25 flaskına ekleyin.² tam besiyerinde (genellikle 1:2 veya 1:3 oranında).
- Yeniden programlama için kullanmadan önce hücreleri pasaj 3–5'e kadar genişletin. Pasaj 6'nın ötesindeki hücreleri kullanmayın.
NOT: Elektroporasyon anındaki hücre kalitesi, yeniden programlama başarısının en önemli belirleyicisidir. Sadece sağlıklı, log fazında büyüyen, senesans belirtisi veya anormal morfoloji göstermeyen F-tipi AFC kullanın.
2. Bir hücre elektroporasyon sistemi kullanılarak episomal plazmidlerin AFC'lere elektroporasyonu
- Kültür kaplarını bazal membran matrisi ile kaplayın
- Bazal membran matriksini (Matrigel) gece boyunca şunlarda çözdürün: 4 °C buz üzerinde.
- Steril DPBS veya DMEM/F-12'yi buz üzerinde soğutun. Pipet uçlarını ve tüpleri 30 dakika boyunca buz üzerinde ön soğutmaya tabi tutun.
- Bazal membran matriksini, soğuk uçlar ve tüpler kullanarak buz gibi soğuk DMEM/F-12 içerisinde 1:200 oranında seyreltin (örneğin, 30 µL matriks + 6 kuyucuklu plaka için 6 mL DMEM/F-12).
- Pipetle 5–6 kez yukarı aşağı çekerek iyice ancak nazikçe karıştırın. Hava kabarcığı oluşmamasına dikkat edin.
- 6 kuyucuklu bir plaka için, seyreltilmiş kaplama çözeltisini kültür kaplarına kuyucuk başına 1 mL olacak şekilde ekleyin.
- Kaplanmış kapları şu sıcaklıkta inkübe edin: 37 °C en az 1 saat boyunca veya oda sıcaklığında 2 saat boyunca.
- Hücre ekiminden hemen önce kaplama solüsyonunu aspire edin. 2 mL antibiyotiksiz FC ortamı ekleyin... 10 μM Y-27632 (ROCK inhibitörü) ve plakayı tekrar a'ya yerleştirin 37 °C inkübatör. Kaplanmış yüzeyin kurumasına izin vermeyin.
NOT: Kaplanmış plakalar şuralarda saklanabilir: 4 °C 7 güne kadar parafilm ile mühürlenerek saklanabilir. Kullanmadan önce oda sıcaklığına getirin.
- Epizomal yeniden programlama plazmitlerini çözün ve hazırlayın
- Plazmit seçimi: Yeniden programlama için şu episomal plazmitleri kullanın: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL ve pCXLE-EBNA1.
NOT: (İsteğe bağlı) Elektroporasyon koşullarının optimizasyonu için, pCE-GFP aynı ayarlar altında paralel olarak elektropore edilebilir. İlk 48–72 saatteki GFP ekspresyonu, transfeksiyon verimliliği için uygun bir gösterge sağlar; sonraki pasajlama işlemleri sırasındaki kademeli GFP sinyal kaybı ise geçici plazmid seyreltilmesini izlemek için kullanılabilir. - Kalite kontrol (KC): DNA konsantrasyonunu ve saflığını bir spektrofotometre kullanarak doğrulayın. A260/280 oranının 1,8 ile 1,9 arasında olduğundan emin olun. Her bir plazmidin konsantrasyonunun şundan daha yüksek olduğundan emin olun 1 µg/µL ve sterildir.
NOT: Tüm plazmidlerin endotoksin içermeyen yöntemlerle hazırlandığından emin olmak kritiktir. Kalıntı endotoksinler, yüksek sitotoksisiteye ve yeniden programlama verimliliğinin önemli ölçüde azalmasına yol açabilir. Plazmidleri -'de küçük alikotlar halinde saklayın.20 °C tekrarlanan dondurma-çözme döngülerinden kaçınmak için. - Bir 100 µL reaksiyon, hazırlamak 5 µg plazmit karışımının (pCXLE-hOCT3/4-shp53, pCXLE-hSK'dan eşit ağırlık oranlarında) pCXLE-hUL ve pCXLE-EBNA1).
- Plazmit seçimi: Yeniden programlama için şu episomal plazmitleri kullanın: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL ve pCXLE-EBNA1.
- Elektroporasyon parametrelerini ayarlayın.
- Elektroporasyon cihazını başlatın. Puls parametrelerini primer adherent hücreler için optimize edilmiş konfigürasyona ayarlayın: Puls voltajı: 1.200 V; Puls genişliği: 20 ms; Puls sayısı: 2.
- Elektrodun tamamen daldığından emin olacak şekilde, pipet istasyonunu 2 mL Tampon E ile doldurun.
NOT: Başlangıç deneyleri %50'nin altında hücre canlılığı sağlarsa, alternatif parametre setlerinin test edilmesi düşünülebilir: 950 V / 20 ms / 2 puls (daha hafif). Bu alternatifler, hayatta kalma oranını artırmak adına verimlilikten bir miktar ödün verir.
- Elektroporasyon için AFC'lerin hazırlanması
- 0. Gün'de, hücrelerin mikroskop altında aşırı büyüme, senesans veya kontaminasyon belirtisi göstermeksizin sağlıklı, iğ şeklinde bir morfoloji sergilediği doğrulanmalıdır. Hücrelerin %90 konfluense ulaştığından ve aktif logaritmik büyüme evresinde olduğundan emin olunmalıdır.
- Elektroporasyon işleminden hemen önce, Matrigel kaplamayı aspire edin ve yerine 2 mL önceden ısıtılmış antibiyotiksiz FC medium plus 10 μM Y-27632 (ROCK inhibitörü). Bu antibiyotiksiz FC ortamını önceden şu sıcaklığa ısıtın: 37 °C elektroporasyon sistemi için hücreler hasat edilmeden önce en az 20 dakika boyunca bir inkübatörde bekletilir.
NOT: Bu özel besiyeri partisine Penisilin-Streptomisin (P/S) veya başka herhangi bir antibiyotik EKLEMEYİN. Elektroporasyon sonrası hücre membranı geçici olarak geçirgen ve hassas kalır. Antibiyotiklerin varlığı apoptozisin artmasına neden olabilir. - Elektroporasyon için AFC'lerin besiyerini aspire edin ve monoton tabakayı Ca içermeyen DPBS ile bir kez yıkayın²⁺/Mg²⁺.
- 2 mL TrypLE Select Enzyme ekleyin (T25 flask için) ve şu sıcaklıkta inkübe edin: 37 °C 4–5 dk boyunca.
- 6 mL FC komple ortam ile nötralize edin ve 15 mL'lik konik tüpe aktarın. Hücreleri otomatik bir hücre sayacı kullanarak sayın.
- 300'de santrifüjleyin × g oda sıcaklığında 5 dakika boyunca.
- Süpernatantı bir ... kullanarak tamamen uzaklaştırın 200 μL küçük hücre peletini bozmamaya dikkat ederek pipet ucuyla.
- Hücre peletini, final yoğunluğu 1,0 olacak şekilde Buffer R içerisinde yeniden süspande edin. × 10⁷ 1.4'e × 10⁷ hücre/mL.
NOT: Hücre peletinin kuru olduğundan emin olmak için süpernatanı mümkün olduğunca tamamen aspire edin. Kalıntı kültür ortamı, resüspansiyon tamponunu seyreltebilir ve bu durum elektroporasyon verimliliğini azaltabilir. AFC'ler için Tampon R'yi (adherent hücreler için) kullanın. Tampon seçimini üretici önerilerine göre doğrulayın.
- Elektroporasyon işlemini gerçekleştirin.
- Alikot 110 μL hücre süspansiyonunun (1,0–1,4 içeren × 106 hücreleri) steril bir 1,5 mL'lik mikro santrifüj tüpüne aktarın.
NOT: Ekleyin 10 μL aspirasyon sırasında hava kabarcığı oluşmasını önlemeye yardımcı olmak amacıyla, yeterli hücre süspansiyonunun bulunmasını sağlamak için toplam hacme kadar Tampon R ekleyin. - Ekle 5 μg plazmid karışımını ...-e/a 110 μL hücre alikotu. 3 kez nazikçe pipetleyerek karıştırın.
- Steril bir ... takın/bağlayın 100 μL elektroporasyon ucunu pipete takın. Ucun güvenli bir şekilde oturduğundan emin olun.
- Yükle 100 μL hücre/DNA süspansiyonunun, görünür hava kabarcığı kalmadığından emin olarak.
NOT: Hava kabarcıkları, elektrik darbesi sırasında ark oluşumuna neden olarak hücreleri öldürür ve uca zarar verir. Eğer kabarcıklar görülürse, karışımı tüpe geri boşaltın ve aspirasyonu yavaşça tekrarlayın. - Yüklü pipeti, istasyondaki Tampon tüpünün içine, yerine oturup tık sesi gelene kadar dikey olarak yerleştirin. Dokunmatik ekranda tüm parametrelerin doğru olduğunu doğrulayın, ardından pals dizisini uygulamak için Başlat düğmesine basın.
- Ekranın görüntülemesini bekleyin "Tamamlandı" (genellikle 1–2 saniye içinde). Pipeti derhal istasyondan çıkarın ve elektropore edilmiş hücre süspansiyonunu doğrudan 2–3 önceden ısıtılmış antibiyotiksiz FC besiyeri içeren kaplanmış 6 kuyucuklu bir plakanın kuyucukları + 10 μM Y-27632.
- Kullanılan ucu güvenli bir şekilde atın. Gerektiğinde, ek kuyucuklar veya tekrarlar için adımları tekrarlayın. 6 kuyucuklu plakayı bir... 37 °C, %5 CO2₂ nemlendirilmiş inkübatörde gece boyunca.
- Alikot 110 μL hücre süspansiyonunun (1,0–1,4 içeren × 106 hücreleri) steril bir 1,5 mL'lik mikro santrifüj tüpüne aktarın.
3. Elektroporasyon sonrası yeniden programlama kültürü
NOT: Bu bölüm, ardışık besiyeri değişimlerini ve AFC'lerin iPSC'lere tam olarak yeniden programlanmasının nasıl sağlandığını açıklamaktadır. Zaman çizelgesi, elektroporasyondan koloni seçimine kadar yaklaşık 25 günü kapsamaktadır.
- Elektroporasyondan yaklaşık 16–18 saat sonra, hayatta kalan yapışkan hücreleri yerinden oynatmadan besiyerini dikkatlice aspire edin. Hücrelerin ilk 24 saat boyunca stabilize olmasını sağlamak için her kuyucuğa önceden ısıtılmış 2 mL FC besiyeri (P/S içeren) yavaşça ekleyin. Plakayı inkübatöre geri yerleştirin.
- 2. günden 6. güne kadar, gün aşırı besiyerinin yarısını değiştirin: 1 mL kullanılmış besiyerini dikkatlice aspire edin ve 1 mL taze TeSR-E8 (E8) besiyeri ekleyin.
NOT: Kısmi besiyeri değişimi, erken yeniden programlama olaylarını destekleyen salgılanmış otokrin faktörleri korur. Gevşek yapışmış geçiş hücrelerinin rahatsız edilmesini en aza indirmek için aspirasyonu kuyucuğun kenarından yavaşça yapın. - 7. günden itibaren, gün aşırı 2 mL E8 ile tam besiyeri değişimi gerçekleştirin.
- Morfolojik değişiklikleri mikroskop altında günlük olarak gözlemleyin. 10–14. günler civarında kısmen yeniden programlanmış, parke taşı benzeri kümelerin oluşması beklenir.
NOT: (Opsiyonel) Koloni oluşumu zayıfsa, 9–15. günler arasında kültürleri 25–100 μM sodyum bütirat ile destekleyin23. - 15. günden itibaren E8 besiyerini günlük olarak değiştirin.
- 18. gün civarında başlayarak, gerçek iPSC kolonilerinin ortaya çıkışını kontrol etmek için kuyucukları günlük olarak inceleyin. 0. gün elektroporasyonundan koloni seçimine kadar olan yeniden programlama iş akışının tam zaman çizelgesi Tablo 2'de sunulmuştur.
4. iPSC kolonilerinin mekanik olarak toplanması ve oluşturulmuş iPSC hatlarının genişletilmesi
NOT: Gerçek iPSC kolonilerini, yeniden programlanmış veya yeniden programlanmamış hücrelerden aşağıdaki morfolojik kriterlere göre ayırt edin. "İdeal" kolonileri şu morfolojik belirteçlere göre tanımlayın: (1) Sınır belirginliği: Koloniyi çevredeki amniyon sıvısı hücrelerinden net bir şekilde ayıran keskin, pürüzsüz ve dairesel bir kenar arayın; (2) Hücresel yoğunluk: Koloni içindeki hücrelerin küçük, sıkıca paketlenmiş, belirgin nukleoluslara sahip ve yüksek nükleositoplazmik oranlı olduğundan emin olun; (3) Refraktiflik: Yüksek kaliteli koloniler, faz kontrast altında parlak ve yüksek derecede refraktif görünür; (4) Düzlük: Koloni, üç boyutlu bir "küme" yerine düz, iki boyutlu bir tabaka şeklinde büyümelidir. Kısmen yeniden programlanmış koloniler genellikle gerçek iPSC kolonilerinden daha erken ortaya çıkar ve daha büyük, daha kalın ve daha üç boyutlu olma eğilimindedirler. Bunlar, toplama ve pasajlama sırasında kendiliğinden farklılaşacaktır. "Vakuoller", düzensiz kenarlar veya merkezi farklılaşma belirtileri gösteren kolonileri toplamayın.
- iPSC kolonilerinin mekanik olarak seçilmesi ve aktarılması
- Her kuyucuğa 10 μM Y-27632 ile takviye edilmiş 0.5 mL E8 besiyeri içeren, Matrigel kaplı bir 24 kuyucuklu plaka hazırlayın. Kullanıma kadar 37 °C'de tutun.
- Kültür plağını, Sınıf II biyogüvenlik kabini içindeki bir stereomikroskobun altına yerleştirin. Plağı görüş alanına yaklaştırmadan önce stereomikroskop objektifini ve tablasını %70'lik etanol ile sterilize edin.
- Doğru morfoloji (yassı, kompakt, kenarları belirgin) sergileyen kolonileri belirleyin.
- Yatay düzlemden yaklaşık 30°'lik dar bir açıyla tutulan steril bir 10 μL pipet ucu kullanarak, seçilen koloninin sınırlarını belirlemek için çevresini nazikçe çizin. Koloninin çapı boyunca paralel kesikler atarak koloniyi yaklaşık 3 fragmana ayırın. Aynı pipet ucunu kullanarak koloni fragmanlarını substrattan nazikçe kazıyıp kaldırın ve fragmanları hazırlanan 24 kuyucuklu plağın bir kuyucuğuna aktarın.
- Adımları her koloni için tekrarlayın ve fragmanları ayrı kuyucuklara yerleştirin.
- 24 kuyucuklu plağı inkübatöre yerleştirin. Fragmanların yapışması için 24 saat boyunca rahatsız etmeden bekletin.
- Seçim sonrası 2. Günden başlayarak, besiyerini her gün Y-27632 içermeyen E8 besiyeri ile değiştirin.
- Seçilen koloniler %70–80 konfluense ulaştığında (genellikle 3–6 gün), Accutase kullanarak pasajlayın.
- Kurulmuş iPSC hatlarının pasajlanması ve genişletilmesi
- iPSC içeren kuyucuktaki besiyerini aspire edin. Monokatmanı kaplayacak kadar Accutase ekleyin. Oda sıcaklığında 2–6 dk inkübe edin. Koloni kenarlarını mikroskop altında gözlemleyin; hücreler birbirinden ayrılmaya başlamalı ve hücreler arasında boşluklar oluşmalıdır.
- Accutase solüsyonunu tamamen aspire edin. 1 mL E8 besiyeri + 10 μM Y-27632 ekleyin. Kolonileri 2–8 hücrelik küçük kümelere ayırmak için bir P1000 pipet kullanarak besiyerini koloni yüzeyi boyunca 5–8 kez nazikçe pipetleyin.
NOT: iPSC'lerin aşırı disosiye edilmesinden kaçının; bu durum sağkalımı önemli ölçüde azaltır. Amaç, tek hücre süspansiyonu değil, tekdüze küçük kümeler elde etmektir. - Kümeleri 1 mL E8 besiyeri + 10 μM Y-27632 ile birlikte taze Matrigel kaplı bir 12 kuyucuklu plağa eşit şekilde aktarın. Plağı inkübatöre yerleştirin.
- Besiyerini günlük olarak E8 besiyeri ile değiştirin (1. Günden sonra Y-27632 olmadan).
- Konfluense bağlı olarak 1:2 ile 1:5 arasında bir ayırma oranıyla her 3–4 günde bir pasajlamaya devam edin.
- Stabil episomal temizlenmeyi sağlamak için, alt uygulamalardan önce iPSC hatlarını minimum 10 pasaj boyunca kültüre edin.
5. Aneuploid iPSC hatlarının karakterizasyonu
NOT: Pluripotensiyi, karyotip bütünlüğünü ve episomal vektör temizliğini doğrulamak için yerleşik iPSC hatlarında (pasaj 10 veya sonrası) aşağıdaki doğrulama analizlerini gerçekleştirin.
- Pluripotens belirteç ekspresyonunu doğrulayın.
- Temel pluripotens işaretleyicilerinin ekspresyonunu immünofloresan boyama, akış sitometrisi veya her iki yöntemle doğrulayın. Beklenen işaretleyici profilleri şurada özetlenmiştir: Tablo 3.
NOT: İmmünofloresan boyama pluripotensinin başlangıç düzeyinde doğrulanmasını sağlasa da LIN28A, DPPA4 ve KLF4 dahil olmak üzere pluripotensle ilişkili gen ekspresyonunun daha kapsamlı bir değerlendirmesi için RT-qPCR ve RNA-seq önerilmektedir.
- Temel pluripotens işaretleyicilerinin ekspresyonunu immünofloresan boyama, akış sitometrisi veya her iki yöntemle doğrulayın. Beklenen işaretleyici profilleri şurada özetlenmiştir: Tablo 3.
- G-bantlama ile karyotip analizi
KRİTİK: Yeniden programlama, klonların bir alt kümesinde trisomi kurtarmasına (trisomy rescue) yol açabilir. Hem aneuploid yapısını koruyan hem de euploid olarak kurtarılan türevleri belirlemek için birden fazla klonu (ebeveyn hattı başına 5–10 adet) tarayın.- %70-80 konfluense ulaştığında, 10-15. pasajdaki iPSC'leri hasat edin.
- Ekleyin 0.1 μg/mL kültür ortamına kolkemsid ekleyin. Şurada inkübe edin 37 °C hücreleri metafaz evresinde tutmak için 2–4 saat boyunca.
NOT: Colcemid mitotik bir zehirdir. Biyogüvenlik kabininde eldivenlerle kullanın. Colcemid içeren atıkları tehlikeli madde olarak bertaraf edin. - Accutase veya eşdeğeri kullanılarak hücreleri tek hücre süspansiyonu haline getirin. 300 g'de santrifüjleyin. × g 5 dk boyunca.
- Pelleti, önceden ısıtılmış 5 mL hipotonik çözelti (0,075 M potasyum klorür) içerisinde yeniden süspanse edin. Şurada inkübe edin: 37 °C 15–20 dakika boyunca.
- Tüpü nazikçe karıştırırken içine 1 mL taze hazırlanmış fiksatif (metanol: asetik asit, 3:1 hacim oranı) ekleyin. 300'de santrifüj edin × g 10 dk boyunca.
- Süpernatantı aspire edin. 5 mL taze fiksatif ekleyin. Nazikçe karıştırın ve 10 dakika inkübe edin. Tekrar santrifüjleyin.
- Toplamda 3 fiksasyon olacak şekilde, fiksasyon adımını (Adım 6) bir kez daha tekrarlayın.
- Son santrifüj işleminin ardından, uygun bir hücre yoğunluğu elde etmek için peleti 0,5–1 mL taze fissatör içerisinde yeniden süspande edin.
- Hücre süspansiyonundan 2–3 damlayı yaklaşık 30 cm yükseklikten temiz, ıslak lamların üzerine damlatın. Havada kurutun.
- Slaytları şu sıcaklıkta pişirin: 80 °C 2 saat boyunca veya 65 °C kromozomların yaşlandırılması için gece boyunca bekletin.
- G-bantlama yapın: lamları %0,025'lik tripsin çözeltisi ile 30–60 saniye boyunca işleme tabi tutun, durulayın ve %5'lik Giemsa çözeltisi ile 1–5 dakika boyayın.
- Parlak alan yağ daldırma mikroskobu altında (100x), klon başına iyi yayılmış en az 20 metafazı analiz edin.× amaç).
- Karyotipi ISCN nomenklatürünü kullanarak belgeleyin (örneğin, kadın trisomi 21 için 47,XX,+21; Turner sendromu için 45,X).
NOT: G-bantlı karyotipleme major kromozomal anomalileri tespit eder ancak çözünürlüğü sınırlıdır; submikroskobik genetik değişikliklerin belirlenmesi ve iPSC genomik bütünlüğünün doğrulanması için Kopya Sayısı Varyasyonu (CNV) analizi, Tüm Ekzom Dizileme (WES) veya Tüm Genom Dizileme (WGS) gibi tamamlayıcı analizler önerilir.
- Epizomal vektör temizliğini PCR ile doğrulayın.
NOT: Bu adım, vektöre özgü dizilerin PCR amplifikasyonu ile tüm episomal plazmitlerin iPSC hattından kaybolduğunun onaylanmasını sağlar.- Standart bir kolon bazlı ekstraksiyon kiti kullanarak, iPSC'lerden (pasaj ≥ 10) ve transfekte edilmemiş kontrol AFC'lerden genomik DNA ekstrakte edin.
- Bir ... kurun 25 μL PCR reaksiyonu. Orip/GAPDH primer çiftleri kullanılarak, şu döngü koşulları altında PCR gerçekleştirin (94 °C 2 dk boyunca; ardından 35 döngü boyunca 94 °C 30 saniye boyunca, 55 °C 30 saniye boyunca ve 72 °C 30 saniye boyunca; final uzatma şunuda 72 °C (5 dk boyunca). Her PCR çalışmasına pozitif kontrol (plazmit kalıp) ve negatif kontrol (transfekte edilmemiş hücrelerden elde edilen genomik DNA) dahil edin.
- PCR ürünlerini, uygun bir DNA merdiveni ile %2'lik agaroz jelde çözümleyin.
- Sonuçların yorumlanması: episomları temizlenmiş iPSC hatları 544 bp'de amplifikasyon bandı göstermez. Pozitif kontrol beklenen boyutta bantlar göstermelidir. Negatif kontrol hiç bant göstermemelidir.
- PCR ile Mycoplasma tespiti
- Besiyeri değişiminden önce, en az 24 saatlik inkübasyonun ardından iPSC kültürlerinden 0,5–1 mL kültür süpernatantı toplayın ve 12.000'de santrifüjleyin × g hücresel kalıntıları uzaklaştırmak için 5 dakika boyunca.
- Üretici talimatlarını takip ederek, PCR Mycoplasma Detection Kit ile PCR işlemi için şeffaflaştırılmış süpernatantı kalıp olarak kullanın.
- PCR ürünlerini %2'lik agaroz jel elektroforezi ile ayırın. Alt işlemlerle yalnızca iPSC kültürlerinin mikoplazma içermediği doğrulandığı takdirde devam edin.
NOT: Ebeveyn AFC'leri, sterilitesi ve mikoplazma testi belgelenmiş sertifikalı bir biyobankadan temin edilmemişse, yeniden programlama öncesinde rutin mikoplazma taramasının başlangıç bir kalite kontrol adımı olarak yapılması şiddetle önerilir.
- Trilineaj diferansiyasyon potansiyeli analizi (Opsiyonel)
- Onaylayın in vitro yönlendirilmiş üçlü hat diferansiyasyonu veya embriyoid cisim (EB) oluşumu kullanılarak gerçekleştirilen diferansiyasyon kapasitesi ve ardından germ tabakasına özgü belirteç analizi. Alternatif olarak, şu işlemi gerçekleştirin in vivo altın standart pluripotens doğrulaması için immün yetmezlikli farelerde teratom oluşumu.
NOT: Detaylı teratoma deneyi veya yönlendirilmiş diferansiyasyon protokolleri için yayınlanmış standart uygulama prosedürlerine başvurun24Bu analizlerin yapılması önerilir, ancak kapsamlı olması durumunda ihmal edilebilir. in vitro marker analizi ve fonksiyonel farklılaşma verileri sunulmuştur.
- Onaylayın in vitro yönlendirilmiş üçlü hat diferansiyasyonu veya embriyoid cisim (EB) oluşumu kullanılarak gerçekleştirilen diferansiyasyon kapasitesi ve ardından germ tabakasına özgü belirteç analizi. Alternatif olarak, şu işlemi gerçekleştirin in vivo altın standart pluripotens doğrulaması için immün yetmezlikli farelerde teratom oluşumu.
6. Tek hücreli klonal türetme ve doğrulama
NOT: Her bir iPSC hattının tek bir hücreden türediğinden emin olmak için iki aşamalı bir klonal doğrulama süreci önerilir. Mekanik toplama ve genişletme sonrası, karyotip onayından sonra ikincil bir tek hücreli klon ekimi önerilir. Her bir iPSC hattının tek bir hücreden türediğinin doğrulanması, iPSC üretimi için kritik bir gerekliliktir. Bu işlem, ebeveyn somatik mozaisizminin giderilmesini sağlar ve tanısal aneuploid imzanın tüm popülasyonda homojen olduğunu onaylar.
- Tek hücre ekimi
- Karyotipi doğrulanmış iPSC kolonilerini, 37 °C'de 2–6 dk boyunca Accutase kullanarak disosiye edin ve tek hücre süspansiyonu haline getirin.
- İzole edilmiş tek hücrelerin sağkalımını maksimize etmek için 10 µM Y-27632 ile desteklenmiş E8 besiyeri kullanın. Tek hücre yerleşimini aşağıdaki yöntemlerden birini kullanarak gerçekleştirin:
- Sınırlayıcı dilüsyon: Süspansiyonu 100 µL başına 0,5–1 hücre konsantrasyonuna seyreltin. Matrigel kaplı 96 kuyucuklu bir plağın her bir kuyucuğuna 100 µL ekleyin.
- Floresanla Aktive Edilmiş Hücre Ayıklama (FACS): Canlı tek hücreleri doğrudan Matrigel kaplı 96 kuyucuklu plaka kuyucuklarına ayıklayın.
- Monoklonalite doğrulaması ve genişletme
- İlk inceleme: Ekimden 24–48 saat sonra, her bir kuyucuğu incelemek için yüksek çözünürlüklü faz-kontrast mikroskobu kullanın. Yalnızca tek ve belirgin bir tutunma olayı içeren kuyucukları işaretleyin. Birden fazla küme içeren veya hücre bulunmayan kuyucukları hariç tutun.
- Koloni büyümesi: Tanımlanan tek hücreleri, ilk 24 saatten sonra ROCK inhibitörü içermeyen E8 besiyerinde büyütün.
- Sıralı genişletme: Tek hücreden türeyen koloni %70 konfluense ulaştığında, hücreleri sırasıyla 96 kuyucuklu plakadan 24 kuyucuklu, 12 kuyucuklu ve son olarak 6 kuyucuklu formatlara genişletin.
NOT: Hücre tedavisi araştırmaları için, iPSC hatlarının soy-saf durumunu kanıtlamak amacıyla Analiz Sertifikasının bir parçası olarak tek hücre aşamasının (Gün 0 veya Gün 1) fotoğraf kanıtları genellikle gereklidir.
Başarısız yeniden programlamanın potansiyel nedenleri, suboptimal koloni oluşumu ve iPSC klon kurulumu sırasındaki zorluklar, pratik çözümleriyle birlikte Tablo 4'te özetlenmiştir.
Sonuçlar
Yeniden programlama sırasında morfolojik ilerleme
Primer amniyotik sıvı hücreleri, E-tipi ve F-tipi hücreler dahil olmak üzere heterojen morfolojiler sergilemiştir (Şekil 1A). F-tipi hücreler genişletilmeli ve yeniden programlama için kullanılmalıdır. AFC'lerin Epi5 episomal plazmitlerle elektroporasyonunun ardından, karakteristik bir morfolojik değişim dizisi gözlemlenir. 0. Günde, AFC'ler tipik iğ şeklinde, fibroblast benzeri morfoloji sergiler. 3-5. Günlerde, yeniden programlamanın ilk morfolojik kanıtı ortaya çıkar: mezenkimal hücre popülasyonu içinde epitelyum benzeri küçük hücre kümeleri belirir ve bu durum MET'in başlangıcını işaret eder. Bu geçiş hücreleri, çevreleyen mezenkimal hücrelerden daha küçük ve daha kompakttır. 7-10. Günler arasında, hücre kümeleri, karakteristik bir epitelyal morfolojiye geçişi yansıtan artmış bir kompaktsiyona sahiptir. Tamamen yeniden programlanmış iPSC kolonileri 14-16. Günler arasında ortaya çıkmaya başlar. 21-25. Günlere gelindiğinde, olgun iPSC kolonileri seçilmeye hazır hale gelir (Şekil 1B). DNA iletim verimliliğini değerlendirmek için yeniden programlama plazmitleriyle paralel olarak pCE-GFP plazmiti elektropore edilmiştir (Şekil 1C). GFP ekspresyonu, başarılı elektroporasyonun ve erken kültür sırasındaki plazmit kalıcılığının görsel bir göstergesi olarak kullanılabilir.
Tam olarak yeniden programlanmış iPSC kolonlarının kısmi yeniden programlamadan ayırt edilmesi
Bu protokoldeki kritik bir beceri, tamamen yeniden programlanmış iPSC kolonilerini kısmen yeniden programlanmış kolonilerden ayırt edebilme yeteneğidir; çünkü ikincilerin seçilmesi, stabil iPSC hatlarının oluşturulamamasıyla sonuçlanır. Tablo 5, bu iki koloni tipi arasındaki temel morfolojik ve moleküler farkları özetlemektedir.
Şekil 2 yan yana bir karşılaştırmayı göstermektedir. Kısmen yeniden programlanmış hücreler genellikle belirgin sınırları olmayan gevşek agregatlar oluşturur. Bu kümeler belirli bir derecede sıkışma gösterebilir ancak tipik olarak mezenkimal özellikleri korur veya eksik epigenetik sıfırlanmayı gösteren düzensiz, "bulanık" kenarlar sergiler (Şekil 2, sol). Birincil yeniden programlama sırasında, tipik iPSC benzeri morfolojiye sahip koloniler spontan farklılaşma alanları içerebilir (Şekil 2, orta). Morfolojik olarak tanımlanmış farklılaşmamış bölgeler, daha fazla genişletme için manuel olarak seçilebilir ve toplanabilir. Başarıyla kurulmuş iPSC hatları; yüksek çekirdek-sitoplazma oranı, belirgin nükleoller ve son derece sıkı hücre-hücre bağlantılarıyla karakterize olan klasik kompakt pluripotent morfoloji sergilemelidir (Şekil 2, sağ).
Genellikle, 1–2 × 10⁶ AFC ile elektroporasyon yoluyla yeniden programlama sonrası düzinelerce ila yüzlerce koloni gözlemlenmiştir. Her AFC hattından manuel olarak 24 tekli koloni seçilmiş ve bu işlem sonucunda 1-9 arası genişletilebilir iPSC klonu elde edilmiştir (Tablo 1).
Pluripotens marker doğrulaması
Kurulmuş iPSC hatları, plüripotens belirteçlerinin tam setini eksprese etmelidir. Şekil 3, 15. pasajdaki Klinefelter sendromlu (47,XXY) aneuploid bir iPSC hattı için temsili immünofloresan ve FACS sonuçlarını göstermektedir. Nükleer belirteçler OCT4, NANOG ve SOX2, koloni genelinde tekdüze ekspresyon gösterirken; hücre yüzey belirteci TRA-1-60, karakteristik halka benzeri membran boyaması sergilemektedir (Şekil 3A). FACS analizi, SSEA-4 ve TRA-1-81'in yüksek ekspresyon seviyelerini daha ileri düzeyde nicelleştirmiştir (Şekil 3B). Bu ekspresyon paternleri, gerçek plüripotent kök hücreler için belirlenmiş kriterlerle tutarlıdır ve aneuploidinin belirteç düzeyinde plüripotens kazanımını engellemediğini doğrulamaktadır.
Aneuploid iPSC'lerin karyotip doğrulaması
Aneuploid amniyotik sıvı hücrelerinden türetilen her iPSC klonu için G-bantlama karyotip analizi esastır. Şekil 4 temsili karyotip sonuçlarını göstermektedir.
Pozitif bir karyotip sonucu, en az 20 metafaz yayılımında onaylanmış, beklenen aneuploid karyotipe sahip iPSC klonlarının tanımlanmasıdır. Negatif bir sonuç ise, aneuploid bir kaynaktan yalnızca euploid klonların (46,XX veya 46,XY) bulunmasıdır; bu durum, iPSC üretimi açısından protokolün başarılı olduğunu doğrularken, tam bir trisomy rescue (trizomi kurtarma) gerçekleştiğini gösterir ve aneuploidite korunmuş hatlar elde etmek için tek hücreli klonal derivasyonun veya yeniden programlamanın tekrarlanmasını gerektirir.
Epizomal vektör temizliğinin doğrulanması
Episomal vektörler pasajlama sırasında kademeli olarak seyreltilir ve çoğu yerleşik iPSC hattında uzun süreli kültürden sonra tespit edilemez hale gelir8,25,26,27. Eksojen vektör temizlenmesi, entegre olmayan yeniden programlama yaklaşımının belirgin bir özelliğidir. Pozitif bir sonuç (episomal temizlenmenin onaylanması), 10. pasajda veya daha sonrasında oriP (544 bp) amplifikasyon bantlarının bulunmamasıdır. Negatif bir sonuç (eksik temizlenme) ise 10. pasajda kalıcı bantlar olduğunu gösterir ve bu durum genellikle pasajlamaya devam edildiğinde 15–20. pasajlar arasında çözülür. Genomik DNA bütünlüğünü ve başarılı PCR amplifikasyonunu doğrulamak için dahili kontrol olarak GAPDH amplifikasyonu kullanılmıştır (Şekil 5A). 20. pasajdan sonra devam eden nadir episomal vektör vakaları, klonun atılması gerektiğini gösteren genomik entegrasyon olaylarına işaret edebilir. Oluşturulan aneuploid iPSC hatlarının biyolojik güvenliğini ve deneysel bütünlüğünü sağlamak için mikoplazma kontaminasyonuna yönelik PCR tabanlı bir tarama yapılması şiddetle önerilir. Korunan tüm monoklonal hatlardan hücre kültürü süpernatanları toplanmalı ve mikoplazmaya özgü primerler kullanılarak PCR yoluyla analiz edilmelidir. Pozitif sonuç veren tüm monoklonal suşlar (örneğin, Klon #7 ve #9) derhal atılmalıdır (Şekil 5B).
In vitro trilineaj diferansiyasyon potansiyeli
Üç hatlı farklılaşma potansiyelinin doğrulanması, iPSC hatlarının validasyonu için gerekli bir kriterdir. Şekil 6 ...den temsilci sonuçları göstermektedir in vitro bir trisomy 18 iPSC hattının embriyoid gövde diferansiyasyonu. PAX6 (ektoderm), T-Brachyury ve TBX6 (mezoderm), GATA6 ve SOX17 (endoderm) ekspresyonu, aneuploid iPSC'lerin üç germ tabakasının tamamına diferansiye olma kapasitesini doğrulamaktadır (Şekil 6).
Tek hücreli klonal türetme ve doğrulama
Yüksek doğruluklu aneuploid iPSC modelleri oluşturmak için, hücresel heterojenliği en aza indirmek ve potansiyel kimerizmi dışlamak amacıyla iki turlu tek hücre türetme ve doğrulama iş akışı uygulanmıştır. İlk genişletmenin ardından, karyotipi normal olan klonlar ayrıştırılmış ve tek hücre yoğunluğunda yeniden ekilmiştir. 24–48 saatteki mikroskobik inceleme, tek hücreden türemiş tutunma olaylarının varlığını doğrulamış ve bunlar daha sonra doğrulanmış monoklonal hatlar oluşturmak için genişletilmiştir (Şekil 7A).
Pozitif sonuç, 96 kuyucuklu plakadaki tek bir hücreden tek bir koloninin başarıyla genişletilmesidir ve bu durum, kuyucuk başına yalnızca bir koloni olduğunu gösteren günlük mikroskobik izleme ile doğrulanır (Şekil 7B). Genişletme işleminden sonra, karyotip ve pluripotentlik belirteçlerinin yeniden doğrulanması orijinal klonla eşleşmelidir. Negatif sonuç ise kuyucuk başına birden fazla koloninin gözlemlenmesi veya tek hücrelerin hayatta kalamaması ve genişleyememesidir.
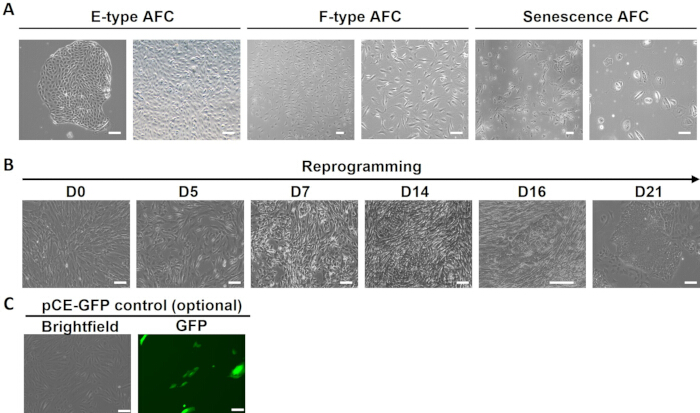
Şekil 1: Epi5 episomal plazmidler kullanılarak amniyotik sıvı hücrelerinin yeniden programlanmasının morfolojik ilerlemesi. Farklı birincil AFC türlerinin morfolojisini ve temel zaman noktalarındaki yeniden programlama prosedürünü gösteren temsilci görüntüler. (A) Başlangıç materyalinin üç temel morfolojisini gösteren faz-kontrast görüntüleri: epitel benzeri (E-tipi), fibroblast benzeri (F-tipi) ve senesens AFC'ler. (B) 0. Günden 21. Güne kadar olan yeniden programlama sürecinin, birincil AFC'lerden kompakt iPSC benzeri kolonilerin ortaya çıkışına geçişi gösteren temsilci zaman serisi görüntüleri. 0. Gün: Elektroporasyon öncesi, tipik iğ şeklinde mezenkimal morfoloji sergileyen AF-MSC'ler. 3–5. Gün: Erken MET aşaması; kalıntı mezenkimal hücreler arasında kümeler halinde epitel benzeri hücreler görülür. 7–10. Gün: Birincil yeniden programlanmış hücreler ortaya çıkar. 14–16. Gün: Arnavut kaldırımı benzeri morfolojiye sahip ancak sınırları belirsiz birincil yeniden programlanmış koloniler (MET kolonileri). 21–25. Gün: Yassı, sıkı paketlenmiş hücreler, belirgin sınırlar, yüksek nükleus-sitoplazma oranı ve belirgin nükleoller ile ortaya çıkan tam yeniden programlanmış iPSC kolonileri. (C) pCE-GFP ile AFC elektroporasyonu sonrası GFP ekspresyonunu gösteren temsilci floresan görüntüler. Ölçek çubuğu 100 µm'yi temsil eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
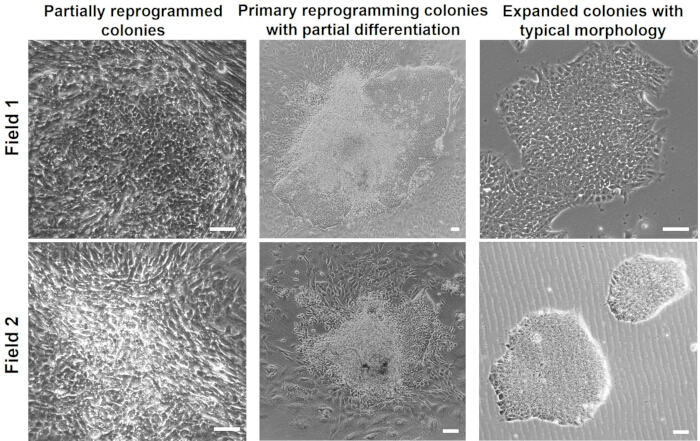
Şekil 2: Tam olarak yeniden programlanmış ve kısmen yeniden programlanmış kolonilerin karşılaştırılması. Sol: Gevşek agregatlar ve düzensiz sınırlar gösteren kısmen yeniden programlanmış koloniler. Orta: Spontane diferansiyasyon alanları ile birlikte tipik iPSC benzeri bölgeler içeren birincil yeniden programlama kolonileri. Sağ: Tipik iPSC morfolojisine sahip genişletilmiş koloniler. Ölçek çubukları, 100 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
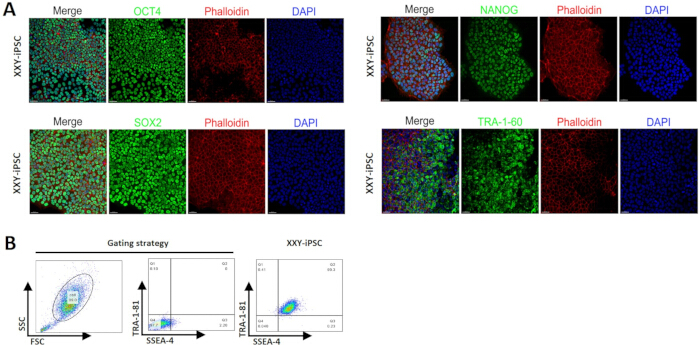
Şekil 3: Aneuploid iPSC'lerde plüripotens markerlarının immünofloresan analizi. (A) XXY-iPSC'lerin OCT4, SOX2, NANOG ve TRA-1-60 (yeşil) dahil olmak üzere temel plüripotens markerları için immünofloresan boyaması. Hücre iskeleti yapısı Falloidin (kırmızı) ve çekirdekler DAPI (mavi) ile görselleştirilmiştir. Ölçek çubuğu 50 µm'yi temsil eder. (B) XXY-iPSC hattında SSEA-4 ve TRA-1-81'in kapılama stratejisini ve kantitatif ekspresyonunu gösteren akış sitometrisi analizi (FACS). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
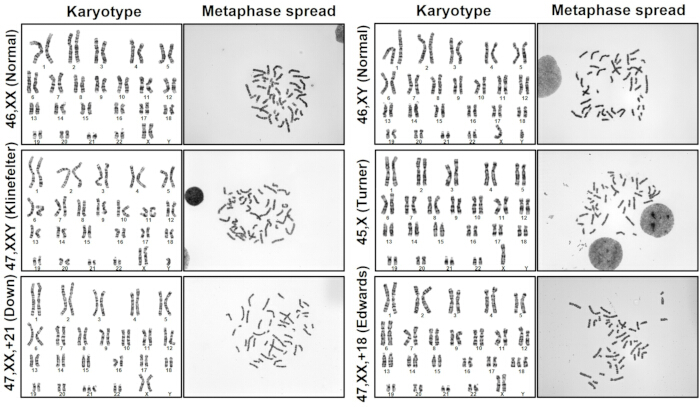
Şekil 4: Aneuploid iPSC hatlarının G-bantlama karyotip analizi. Oluşturulan hatlarda kromozomal anomalilerin stabil korunumunu doğrulayan G-bantlı karyotip analizi ve ilgili metafaz yayılımları; 46,XX (Normal kadın), 46,XY (Normal erkek), 47,XXY (Klinefelter sendromu), 45,X (Turner sendromu), 47,XX,+21 (Down sendromu) ve 47,XX,+18 (Edwards sendromu) dahil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
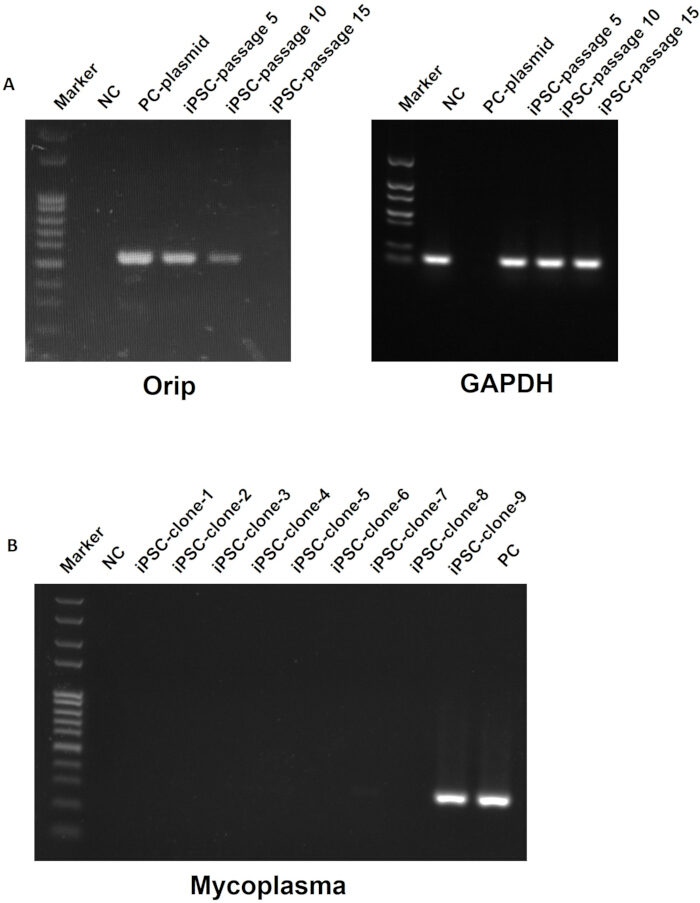
Şekil 5: Aneuploid iPSC hatlarında episomal vektör temizlenmesinin PCR tabanlı tespiti ve mikoplazma testi. oriP/GAPDH veya mikoplazma primer seti ile amplifiye edilen PCR ürünlerinin agaroz jel elektroforezi (%2). (A) Farklı pasajlardaki iPSC klonunda toplam vektör temizlenmesi. (B) 9 bağımsız klonda mikoplazma kontaminasyonunun PCR tabanlı tespiti. Klon #7 (zayıf) ve #9 (güçlü) mikoplazma kontaminasyonu göstermektedir ve imha edilmelidir. PC, pozitif kontrol; NC, negatif kontrol. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
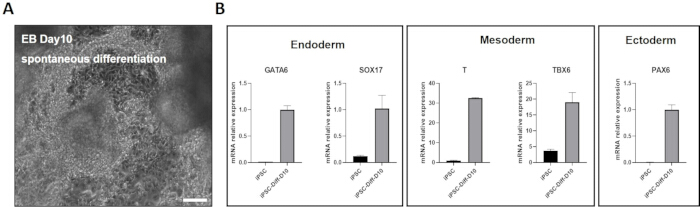
Şekil 6: Aneuploid iPSC'lerin in vitro üçlü soy farklılaşması. (A) Jelatin kaplı bir yüzeye tutunmayı takiben meydana gelen spontan farklılaşma sürecinin 10. gününde embriyoid gövdelerin (EB) morfolojisini gösteren faz-kontrast mikrografı. Ölçek çubuğu 100 µm'yi temsil etmektedir. (B) Pluripotans kaybını ve ardından gelen soy belirlenmesini nicelleştiren RT-qPCR analizi. Sonuçlar, 10. günde üç embriyonik germ tabakasının karakteristik markerlarının mRNA bağıl ekspresyonunda, farklılaşmamış iPSC'lere kıyasla anlamlı bir artış olduğunu göstermektedir: Endoderm (GATA6, SOX17), Mezoderm (T, TBX6) ve Ektoderm (PAX6). Veriler ortalama ± SD olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
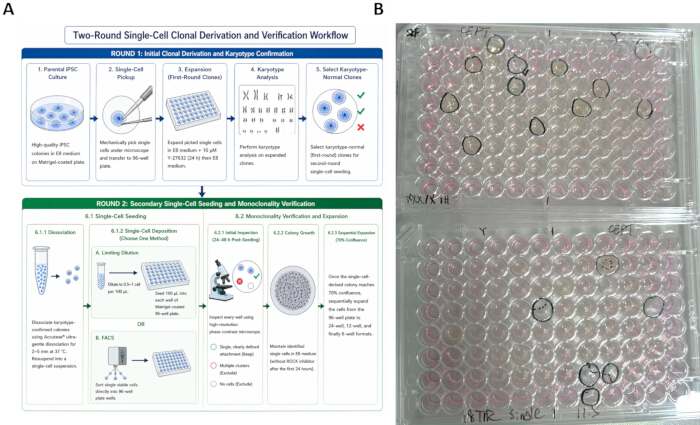
Şekil 7Aneuploid iPSC hatları için tek hücreli klonal türetme iş akışı. (A) Round 1'i (başlangıç türetme ve karyotip onayı) ve Round 2'yi (ikincil tek hücre ekimi) gösteren şematik iş akışı aracılığıyla monoklonaliteyi sağlamak için sınırlayıcı dilüsyon veya FACS kullanımı) klonal doğrulama süreci. Aşama 1: Münferit iPSC kolonilerinin mekanik olarak toplanması, 6 kuyucuklu plakalarda genişletilmesi ve karyotip doğrulaması. Aşama 2: Karyotipi doğrulanmış aneuploid klonlar için, tek bir hücreden gelen klonal kökeni sağlamak amacıyla sınırlayıcı dilüsyon veya FACS yoluyla 96 kuyucuklu plakalara tek hücreli ekim yapılması. Yalnızca tek koloni büyümesinin olduğu kuyucuklar genişletilir. (B) Klonel genişleme aşamasındaki 96 kuyucuklu plakaların temsili görüntüsü; ardışık genişleme için başarıyla tanımlanmış tek hücre türevli kolonlar daire içine alınmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Genetik arka plan | Karyotip | Test edilen AFC hattı sayısı | Yeniden programlama sonrası seçilen tekil koloni sayısı | Başarıyla oluşturulan iPSC klonu sayısı |
| Trisomy 21 | 47,XX,+21 | 2 | 48 | 9 |
| Trisomy 18 | 47,XX,+18 | 1 | 24 | 8 |
| Klinefelter sendromu | 47,XXY | 2 | 48 | 6 |
| Monosomy X | 45,X | 1 | 24 | 1 |
| Normal kadın | 46,XX | 1 | 24 | 2 |
| Normal erkek | 46,XY | 2 | 48 | 6 |
| Yeniden programlama sonrası tekil koloniler, koloni morfolojisine göre manuel olarak seçilmiş ve ileri karakterizasyon için genişletilmiştir. Başarıyla oluşturulan iPSC klonlarının sayısı, seçim sonrası genişletilebilen ve sürdürülebilen kolonileri ifade eder. | ||||
Tablo 1: Somatik hücre yeniden programlamada kullanılan AFC hatlarının detayları.
| Gün | Besiyeri Bileşimi | Temel Gözlem |
| 0 | Antibiyotiksiz FC besiyeri + Y27632 | Elektroporasyon |
| 1 | FC besiyeri | Hayatta kalan hücreler toparlanmaya başlar |
| 2 – 6 | FC'den E8'e (yarım değişim) | MET başlar; hücreler kompakt hale gelir; kümeler halinde daha küçük, daha yuvarlak hücreler görülür |
| 7 – 8 | E8 (gün aşırı tam değişim) | Erken koloni oluşumu |
| 9 – 14 (isteğe bağlı) | E8 (+ 25 μM NaB) | Sınırları belirsiz, arnavut kaldırımı benzeri kümeler; değişken boyutlar |
| 15-18 | E8 (günlük) | Gerçek iPSC kolonileri ortaya çıkar (Gün 18–25); keskin sınırlı, sıkı paketlenmiş düz koloniler, yüksek nükleer-sitoplazmik oran |
| 19 – 25 | E8 (günlük) | Koloniler 400 μm çapını aşar; tekdüze düz morfoloji; seçime hazır |
Tablo 2: 0. Günden koloni seçim saatine kadar olan eksiksiz yeniden programlama zaman çizelgesinin özeti.
| Markör | Hücresel Lokalizasyon | Saptama Yöntemi |
| OCT4 | Nükleer | İmmünofloresan / Akış sitometrisi |
| NANOG | Nükleer | İmmünofloresan / Akış sitometrisi |
| SOX2 | Nükleer | İmmünofloresan / Akış sitometrisi |
| SSEA-4 | Hücre yüzeyi | İmmünofloresan / Akış sitometrisi |
| TRA-1-60 | Hücre yüzeyi | Akış sitometrisi / Canlı boyama |
| TRA-1-81 | Hücre yüzeyi | Akış sitometrisi / Canlı boyama |
Tablo 3: Kurulan iPSC klonlarının beklenen pluripotens işaretleyici ekspresyon profilleri.
| Problem | Olası Neden | Çözüm |
| Elektroporasyon sonrası düşük hücre canlılığı (< 40%) | 1. Bu hücre hattı için puls parametrelerinin çok sert olması | 1. Daha hafif parametreleri test edin |
| 2. Hücrelerin aşırı konfylüen olması (> 90%) | 2. 0. Gün'de %75–90 konflüens sağlandığından emin olun | |
| 3. Hava kabarcıklarının ark oluşumuna neden olması | 3. Yavaşça aspire edin; puls vermeden önce uçtaki kabarcıkları kontrol edin | |
| 4. Bozulmuş veya yanlış resüspansiyon tamponu | 4. Kit içindeki taze Buffer R'yi kullanın | |
| 5. Elektroporasyon öncesi hücre kalitesinin düşük olması | 5. Sadece sağlıklı morfolojiye sahip P3–P5 hücrelerini kullanın | |
| 25. Güne kadar iPSC kolonilerinin gözlemlenmemesi | 1. Besiyerinin inaktif olması | 1. Taze hazırlanmış E8 kullanın; 9. Gün ile 14. Gün arasında 25–100 μM konsantrasyonunda NaB ekleyin |
| 2. Plazmid DNA'nın bozulması veya yanlış çözdürülmesi | 2. Plazmid bütünlüğünü agaroz jelde doğrulayın | |
| 3. Kontamine diferansiye hücrelerin aşırı büyümesi | 3. Diferansiye alanları yayılmadan önce manuel olarak temizleyin; yoğunluğu azaltmak için hücreleri pasajlayın | |
| 4. Matriks kaplamanın başarısız olması veya bozulması | 4. Taze kaplama hazırlayın; buz üzerinde saklayın | |
| Seçme işlemi sonrası iPSC kolonilerinin kendiliğinden diferansiye olması | 1. Kolonilerin çok erken seçilmesi (18. Gün'den önce) | 1. Olgun, düz morfolojiye sahip > 400 μm boyutundaki kolonileri bekleyin |
| 2. Matriks kaplamanın yetersiz veya bozulmuş olması | 2. Taze kaplama sağlandığından emin olun; kullanım öncesi kurumasına izin vermeyin | |
| 3. ROCK inhibitörü olmadan tek hücre olarak pasajlanması | 3. Pasajlama sonrası ilk 24 saat boyunca her zaman Y-27632 kullanın | |
| Karyotipin beklenen aneuploidi kaybını göstermesi (trisomy rescue) | 1. Reprogramlama sürecine özgü spontan kromozom eliminasyonu | 1. Hat başına birden fazla klonu (≥ 5–10) tarayın; kurtarılan klonlar izojenik euploid kontroller olarak hizmet eder |
| 2. Geç pasaj başlangıç hücrelerinin kurtarmaya daha yatkın olması | 2. Sadece sağlıklı morfolojiye sahip P3–P5 hücrelerini kullanın | |
| PCR'ın geç pasajlarda (P10+) episomal dizileri tespit etmesi | 1. Reprogramlamadan bu yana yetersiz pasajlama | 1. P15–P20'ye kadar pasajlamaya devam edin; PCR ile yeniden test edin |
| 2. Plazmidlerin kalıcı olarak korunduğu EBNA-1 ekspresyonu | 2. Uzatılmış kültür genellikle durumu çözer; her 5 pasajda bir izleyin | |
| 3. Hazırlıktaki kalıntı plazmid kontaminasyonundan kaynaklı yalancı pozitiflik | 3. Uygun negatif kontroller ekleyin; kolona dayalı DNA temizleme işlemi kullanın | |
| Elektroporasyon pulsu sırasında ark/kıvılcım oluşumu | 1. Ucun içinde hapsolmuş hava kabarcıkları | 1. Karışımı yavaşça aspire edin; yüklemeden önce kabarcıkları boşaltmak için tüpe vurun |
| 2. DNA örneğindeki yüksek tuz konsantrasyonu | 2. Endotoksin içermeyen plazmid preparasyonu kullanın | |
| 3. Hücresel döküntülerin uç orifisini tıkaması | 3. Hücre süspansiyonunu 40 μm hücre süzgecinden filtreleyin | |
| 4. Ucun hasarlı olması veya limitin ötesinde yeniden kullanılması | 4. Her ucu maksimum 2 kez kullanın; hasar olup olmadığını kontrol edin |
Tablo 4: AFC yeniden programlama ve iPSC klon kurulumu sırasında karşılaşılan yaygın sorunlar için sorun giderme kılavuzu.
| Özellik | Kısmen Yeniden Programlanmış Koloniler | Tamamen Yeniden Programlanmış iPSC Kolonileri |
| Çıkış zamanı | Erken dönemde (7–10. Gün) görülür | Değişkenlik gösterir, genellikle daha geç (14–18. Gün) ortaya çıkar |
| Koloni sınırı | Düzensiz kenarlar | Keskin, belirgin kenarlar |
| Hücre morfolojisi | Daha büyük hücreler, heterojen | Küçük, tekdüze, yüksek çekirdek-sitoplazma oranı |
| Hücre paketleme | Gevşek doldurulmuş | Sıkıca paketlenmiş, Arnavut kaldırımı görünümlü |
| Nükleoluslar | Göze çarpmayan | Belirgin nükleoller |
| Pluripotens markerları | Negatif veya zayıf/fokal | Güçlü, homojen |
| Koloni stabilitesi | Pasajlama sırasında dejenerasyona uğramak veya farklılaşmak | Kararlı, genişletilebilir |
Tablo 5: Tam olarak yeniden programlanmış vs. kısmen yeniden programlanmış kolonilerin ayırt edici özellikleri.
Tartışma
Bu protokol, iletilen episomal plazmidler kullanılarak amniyotik sıvı hücrelerinden anöploid insan iPSC'leri üretmek için entegre olmayan, feeder-free (besleyici hücre içermeyen) bir yöntemi tanımlamaktadır. aracılığıyla elektroporasyon. Yeniden programlamanın başarısını belirleyen birkaç kritik adım vardır. İlk olarak, başlangıç AFC popülasyonunun kalitesi büyük önem taşır. Klinik sitogenetik laboratuvarlarında AFC'ler, genellikle şu amaca yönelik besiyerlerinde çoğaltılır: uzun süreli kültürleme yerine prenatal karyotip analizi için hücre proliferasyonunu hızlandırmak amacıyla kullanılır. Bunun sonraki iPSC üretme verimliliği üzerindeki etkisi henüz tam olarak anlaşılamamıştır. Bu nedenle, numune hazırlama sırasında kültür ortamı bileşimi göz önünde bulundurulmalı ve elektroporasyon öncesinde optimal hücre kalitesini sağlamak için çözme işleminden sonra düşük pasajlı, yüksek proliferatif kapasiteye sahip AFC popülasyonları zenginleştirilmelidir. İkinci olarak, hücre canlılığını korurken DNA iletimini maksimize etmek için elektroporasyon koşulları optimize edilmelidir. Mevcut protokolde; 1200 V, 20 ms ve 2 pals ile yapılan elektroporasyon, tutarlı bir şekilde tatmin edici transfeksiyon verimliliği ve tekrarlanabilir koloni oluşumu sağlamıştır. Bireysel donör numuneleri için zaman zaman küçük optimizasyonlar gerekebilir. Elektroporasyondan sonraki ilk 24–48 saat içinde meydana gelen aşırı hücre ölümü; sıklıkla düşük başlangıç hücre kalitesi, elektroporasyon tamponunda resüspansiyondan önce kalıntı kültür ortamının yetersizce uzaklaştırılması veya elektroporasyon sırasında yapılan uzun süreli işlemlerle ilişkilidir. Üçüncü olarak, koloni toplama zamanlaması kritiktir: 14. günden önce ortaya çıkan koloniler tipik olarak kısmen yeniden programlanmış olup, gerçek iPSC kolonileri 15. ve 25. günler arasında belirir ve net tanımlanmış kenarlara sahip, karakteristik yassı ve kompakt bir morfoloji sergiler. Kolonilerin ortaya çıkmasını takiben meydana gelen spontan diferansiyasyon; yaygın olarak erken koloni toplama, gecikmiş ortam değişimi veya aşırı koloni yoğunluğundan kaynaklanır ve zamanında koloni toplama işlemi koloni kalitesinin korunmasına yardımcı olur. Ek olarak, nispeten düşük yeniden programlama performansı sergileyen AFC hatları için 9. ve 15. günler arasında isteğe bağlı bir optimizasyon olarak sodyum bütirat eklenmeye dahil edilebilir.23Son olarak, tek hücre klonlaması aracılığıyla Klonal kökeni doğrulamak için, ilk karyotip doğrulaması yapıldıktan sonra sınırlayıcı dilüsyon veya 96 kuyucuklu plakalara FACS ile ayırma işlemi gereklidir.
Yeniden programlamada p53'ün rolü uygulanan metodolojiye bağlıdır. OSKM tabanlı episomal yeniden programlamada, geçici p53 baskılanması, başlangıç stres tepkisi sırasında hücre sağkalımını artırır ve MET'i kolaylaştırır27; buna karşın p53, kimyasal yeniden programlamada genomik bir koruyucu görevi görür28. Nadir klinik örnekler için elektroporasyon tabanlı OSKM yeniden programlamasının verimliliği göz önüne alındığında, bu yaklaşım değerli olmaya devam etmektedir. Potansiyel genomik riskleri en aza indirmek için, oluşturulmuş iPSC hatları, sonraki uygulamalardan önce rutin karyotiplemeye ve uygun olduğunda CNV analizine ve WES/WGS'ye tabi tutulmalıdır.
Aneuploid iPSC üretimi için özellikle önemli bir sınırlama, yeniden programlama sırasında gerçekleşen trisomi kurtarma (trisomy rescue) fenomenidir. Akutsu ve ark.29, kurtarma sıklığının kromozom tipine göre önemli ölçüde değiştiğini göstermiştir. Bu değişkenlik, belirli aneuploidiler için, orijinal kromozomal anomaliyi koruyanları belirlemek amacıyla çok sayıda klonun karyotipleme ile taranması gerektiği anlamına gelir. Aksine, aynı fenomen, aynı yeniden programlama deneyinden izojenik euploid kontrol hatları üretmek için kullanılabilir ve bu da aneuploidi spesifik fenotiplerin incelenmesi için güçlü bir dahili kontrol sağlar.
Burada açıklanan protokol, artık prenatal tanı örneklerinden hastaya özgü aneuploid iPSC hatlarının oluşturulması için sağlam ve tekrarlanabilir bir platform sunmaktadır. Bu hücre hatları; kromozom biyolojisi, gelişimsel mekanizmalar, hastalık modelleme, fonksiyonel genomik, genom düzenleme ve hastalıkla ilgili hücre tiplerine yönlendirilmiş farklılaşmanın ardından yüksek kapasiteli ilaç tarama çalışmalarında uygulanabilir. Rejeneratif tıpta, transgene içermeyen iPSC'ler, gelecekteki potansiyel klinik uygulamalar için güvenlik gereksinimlerini karşılamaktadır. Standart ve tekrarlanabilir bir iş akışı sağlayan bu protokol, aneuploid iPSC teknolojisinin bu çeşitli uygulamalar genelinde daha yaygın şekilde benimsenmesini kolaylaştırmaktadır.
Açıklamalar
Yazarlar, herhangi bir rakip finansal çıkarı olmadığını beyan ederler. Şekil 7A'daki şematik çizim, yapay zeka destekli araçlar kullanılarak oluşturulmuş, ardından yazarlar tarafından incelenmiş ve üzerinde değişiklikler yapılmıştır.
Teşekkürler
Bu çalışma, Çin Ulusal Temel Araştırma ve Geliştirme Programı (Hibe No. 2022YFA0913300) ve Pekin Üniversitesi Üçüncü Hastanesi Klinik Temel Projesi (Hibe No. BYSY2022054) tarafından Jianying Guo'ya sağlanan destekle gerçekleştirilmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Thermo Fisher (Gibco) | 25200056 | AFC pasajlama için hücre ayrıştırma |
| 100bp Plus II DNA Ladder | TransGen Biotech | BM321-01 | DNA Merdiveni |
| -80 C Dondurucu | Thermo Fisher | FDE60086fv | Plazmid DNA ve numunelerin uzun süreli saklanması |
| Accutase Hücre Ayırma Solüsyonu | StemCell Technologies | 07920 | iPSC'lerin küçük kümeler halinde nazikçe ayrıştırılması |
| Asetik asit (glasial) | Sigma-Aldrich | 338826 | Karyotipleme için fissatör bileşen (MeOH:AcOH 3:1) |
| Agaroz | Sigma-Aldrich | A9539 | PCR ürünleri için jel elektroforezi (2%) |
| AmnioType-1 Besiyeri | VivaCell BIOSCIENCES | C3620-0100 | Primer AFC kültür besiyeri |
| Otomatik Hücre Sayacı / Hemositometre | Countstar | TC20 | Trypan blue dışlama yöntemiyle canlı hücre sayımı |
| Bright-Field Mikroskop (100x yağ) | Zeiss | Axiovert5 | Karyotipleme için metafaz yayılım analizi |
| Santrifüj (salıncak kovalı rotor) | Eppendorf | 5810R | 300 x g hızda hücre çöktürme |
| Sınıf II Biyogüvenlik Kabini | ESCO | AC2-4S8-CN | Tüm hücre kültürü işlemleri için steril çalışma alanı |
| CO2 İnkübatörü (nemlendirilmiş) | There scientific | 3131 | 37 C, 5% CO2 ortamının sağlanması |
| Colcemid (10 ug/mL) | Capricorn scientific | COL-H | Karyotipleme için metafaz durdurma (0.1 ug/mL, 2-4 sa) |
| CryoStor CS10 Hücre Dondurma Besiyeri | STEMCELL Technologies | 07959 | Hücre Dondurma Besiyeri |
| DAPI | Merck Millipor | 10236276001 | Nükleer boyama |
| DMEM (yüksek glukoz) | Thermo Fisher (Gibco) | 11965092 | Fibroblast kültür (FC) besiyeri bazı |
| DMEM/F-12 | Thermo Fisher (Gibco) | 11330032 | Matrigel dilüsyon tamponu (1:200) |
| Ca2+/Mg2+ içermeyen DPBS | Thermo Fisher (Gibco) | 14190250 | Yıkama tamponu |
| Epizomal plazmid (pCE-GFP) | Addgene | #41858 | İntegre olmayan reprogramlama vektörü (GFP kontrol) |
| Epizomal plazmid (pCXLE-hOCT3/4-shp53-F) | Addgene | #27077 | İntegre olmayan reprogramlama vektörü (OCT4 + shp53) |
| Epizomal plazmid (pCXLE-hSK) | Addgene | #27078 | İntegre olmayan reprogramlama vektörü (SOX2 + KLF4) |
| Epizomal plazmid (pCXLE-hUL) | Addgene | #27080 | İntegre olmayan reprogramlama vektörü (L-MYC + LIN28) |
| Fetal Bovine Serum | HyClone | SH30071.03 | AFC genişletme için serum takviyesi (FC besiyeri, 15%) |
| Floresan Mikroskop | Leica | Sp8 | TRA-1-60/81 canlı boyama ve IF görselleştirme |
| Jel Elektroforez Sistemi | Bio-Rad | 164-5056 | PCR ürünlerinin agaroz jel analizi |
| Jelatin (0.1%) | Sigma-Aldrich | G1393 | AFC yapışması için kültür kabı kaplaması |
| Genomik DNA Ekstraksiyon Kiti | TIANGEN | 4992199 | iPSC'lerden PCR kalitesinde DNA izolasyonu |
| Giemsa Boya Solüsyonu | Sigma-Aldrich | GS500 | Kromozom G-bantlama boyası (5%) |
| GlutaMAX (100x) | Thermo Fisher (Gibco) | 35050061 | FC besiyeri için takviye |
| Ters Faz-Kontrast Mikroskop | Zeiss | Axiovert5 | Kültür ve koloni morfolojisinin günlük izlenmesi |
| Sıvı Azot Saklama Tankı | Thermo Scientific | CY50985 | Hücrelerin kriyoprezervasyonu |
| Matrigel Bazal Membran Matrisi | Corning | 354230 | iPSC yapışması için kültür kabı kaplaması |
| Metanol (susuz) | Sigma-Aldrich | 34860 | Karyotipleme için fissatör bileşen (MeOH:AcOH 3:1) |
| NANOG Antikoru (Tavşan) | Abcam | ab109250 | İmmünofloresan; nükleer pluripotensi markeri |
| Neon NxT Elektroporasyon Kiti (100 uL) | Thermo Fisher (Invitrogen) | N10025 | Elektroporasyon; R, T, E Tamponlarını ve 100 uL uçları içerir |
| Neon NxT Elektroporasyon Sistemi | Thermo Fisher (Invitrogen) | NEON18S | Epizomal plazmidlerin elektroporasyon yoluyla iletimi |
| Esansiyel Olmayan Amino Asitler (NEAA, 100x) | Thermo Fisher (Gibco) | 11140050 | FC besiyeri için takviye |
| OCT4 Antikoru (Tavşan) | Abclonal | A7920 | İmmünofloresan; nükleer pluripotensi markeri |
| PCR Master Mix (yüksek sadakatli) | TIANGEN | 4992920 | PCR ile epizomal temizlenme doğrulaması |
| pCXWB-EBNA1 | Addgene | #37624 | EBNA1'in replike olmayan epizomal ekspresyonu |
| PE anti-human TRA-1-81 Antikoru | BioLegend | 330708 | Pluripotensi boyaması |
| Penisilin-Streptomisin (100x) | Thermo Fisher (Gibco) | 15140122 | Antibiyotik takviyesi (elektroporasyon sonrası KULLANILMAZ) |
| Phalloidin-iFluor 647 Reaktifi | Abcam | ab176759 | F-aktin (aktin filamentleri) etiketleme |
| Potasyum klorür (KCl) | Sigma-Aldrich | P5405 | Karyotipleme için hipotonik solüsyon (0.075 M) |
| Real-time PCR Sistemi | Thermo Fisher Scientific | QuantStudio3 | Marker gen doğrulaması için qPCR |
| Sodyum Bütirat (NaB) | Sigma-Aldrich | B5887 | HDAC inhibitörü; reprogramlamayı artırmak için 25-100 uM |
| SOX2 Antikoru (Fare) | R&D Systems | MAB2018 | İmmünofloresan; nükleer pluripotensi markeri |
| SSEA-4 Antikoru | BioLegend | 330408 | İmmünofloresan; hücre yüzeyi pluripotensi markeri |
| Stereomikroskop | Nikon | SMZ745 | Büyütme altında mekanik koloni toplama |
| TeSR-E8 | STEMCELL Technologies | 05990 | Besleyici hücresiz iPSC idame besiyeri |
| TRA-1-60 Antikoru | Merck Millipor | MAB4360 | Pluripotensi boyaması |
| Trans DNA Marker II | TransGen Biotech | BM411-01 | DNA Merdiveni |
| TransDetect PCR Mycoplasma Tespit Kiti | TransGen Biotech | FM311-01 | Mikoplazma testi |
| TrypLE Select Enzimi (1x) | Thermo Fisher (Gibco) | 12563011 | Adherent AFC'ler için nazik hücre ayrıştırma |
| Tripsin (0.025%) | Sigma-Aldrich | T4799 | Slaytların G-bantlama ön işlemi (30-60 s) |
| VeritiPro 96 kuyucuklu Termal Döngüleyici | Thermo Fisher Scientific | A48141 | Epizomal temizlenme doğrulaması için PCR |
| Su Banyosu (37 °C) | Shanghai Zhixin Experimental Instrument Technology Co., Ltd. | ZX-S22 | Besiyerlerinin ve reaktiflerin çözdürülmesi |
| Y-27632 Dihidroklorür (ROCK inhibitörü) | Tocris | 1254 | Ayrıştırma sonrası iPSC sağkalımını artırır (10 uM) |
Kaynaklar
- Gurdon JB. The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles. Development. 1962;10(4):622-640.
- Evans MJ, Kaufman MH. Establishment in culture of pluripotential cells from mouse embryos. Nature. 1981;292(5819):154-156.
- Martin GR. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 1981;78(12):7634-7638.
- Thomson JA, Itskovitz-Eldor J, Shapiro SS, Waknitz MA, Swiergiel J, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145-1147.
- Takahashi K, Tanabe K, Ohnuki M, Narita M, Ichisaka T, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861-872.
- Fusaki N, Ban H, Nishiyama A, Saeki K, Hasegawa M. Efficient induction of transgene-free human pluripotent stem cells using a vector based on Sendai virus, an RNA virus that does not integrate into the host genome. Proc Jpn Acad Ser B Phys Biol Sci. 2009;85(8):348-362.
- Warren L, Manos PD, Ahfeldt T, Loh YH, Li H, et al. Highly efficient reprogramming to pluripotency and directed differentiation of human cells with synthetic modified mRNA. Cell Stem Cell. 2010;7(5):618-630.
- Yu J, Hu K, Smuga-Otto K, Tian S, Stewart R, et al. Human induced pluripotent stem cells free of vector and transgene sequences. Science. 2009;324(5928):797-801.
- Hou P, Li Y, Zhang X, Liu C, Guan J, et al. Pluripotent stem cells induced from mouse somatic cells by small-molecule compounds. Science. 2013;341(6146):651-654.
- Guan J, Wang G, Wang J, Zhang Z, Fu Y, et al. Chemical reprogramming of human somatic cells to pluripotent stem cells. Nature. 2022;605(7909):325-331.
- Liuyang S, Wang G, Wang Y, He H, Lyu Y, et al. Highly efficient and rapid generation of human pluripotent stem cells by chemical reprogramming. Cell Stem Cell. 2023;30(4):450-459.e9.
- Wang Y, Peng F, Yang Z, Cheng L, Cao J, et al. A rapid chemical reprogramming system to generate human pluripotent stem cells. Nat Chem Biol. 2025;21(7):1030-1038.
- Li C, Zhou J, Shi G, Ma Y, Yang Y, et al. Pluripotency can be rapidly and efficiently induced in human amniotic fluid-derived cells. Hum Mol Genet. 2009;18(22):4340-4349.
- Slamecka J, Salimova L, McClellan S, van Kelle M, Kehl D, et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 2016;15(2):234-249.
- Li Q, Fan Y, Sun X, Yu Y. Generation of induced pluripotent stem cells from human amniotic fluid cells by reprogramming with two factors in feeder-free conditions. J Reprod Dev. 2013;59(1):72-77.
- Crosland BA, Hedges MA, Ryan KS, D'mello RJ, Mccarty OJT, Amniotic fluid: its role in fetal development and beyond. J Perinatol. 2025 Aug;45(8):1163-1170. doi: 10.1038/s41372-025-02313-1. Epub 2025 May 8. PMID: 40341778; PMCID: PMC12354197.
- Liu L, et al. Amniotic fluid stem cells in birth defects: integrated roles in disease modeling, prenatal diagnosis, and therapy. Stem Cell Rev Rep. 2026. doi:10.1007/s12015-026-11161-1.
- Antonucci I, Provenzano M, Rodrigues M, Pantalone A, Salini V, et al. Amniotic fluid stem cells: a novel source for modeling of human genetic diseases. Int J Mol Sci. 2016;17(4):607.
- Guillot PV. Induced pluripotent stem (iPS) cells from human fetal stem cells. Best Pract Res Clin Obstet Gynaecol. 2016;31:112-120. doi:10.1016/j.bpobgyn.2015.08.007.
- Lu HE, Yang YC, Chen SM, Su HL, Huang PC, et al. Modeling neurogenesis impairment in Down syndrome with induced pluripotent stem cells from trisomy 21 amniotic fluid cells. Exp Cell Res. 2013;319(4):498-505.
- Lee CC, et al. Establishment of a human trisomy 18 induced pluripotent stem cell line from amniotic fluid cells. Stem Cell Res. 2018;29:115-119.
- D'Aurora M, et al. Modeling Klinefelter syndrome using induced pluripotent stem cells reveals impaired germ cell differentiation. Front Cell Dev Biol. 2020;8:567454.
- Mali P, Chou BK, Yen J, Ye Z, Zou J, et al. Butyrate greatly enhances derivation of human induced pluripotent stem cells by promoting epigenetic remodeling and the expression of pluripotency-associated genes. Stem Cells. 2010;28(4):713-720.
- Guo J, Lee Q, Qiu H, Wei Y, Zhu X, et al. Patient-derived neural organoids reveal developmental impairments associated with a novel GJB1 mutation in X-linked Charcot-Marie-Tooth disease. Neurobiol Dis. 2026;220:107299.
- Nanbo A, Sugden A, Sugden B. The coupling of synthesis and partitioning of EBV's plasmid replicon is revealed in live cells. EMBO J. 2007;26(19):4252-4262.
- Chou BK, Mali P, Huang X, Ye Z, Dowey SN, et al. Efficient human iPS cell derivation by a non-integrating plasmid from blood cells with unique epigenetic and gene expression signatures. Cell Res. 2011;21(3):518-529.
- Okita K, Matsumura Y, Sato Y, Okada A, Morizane A, et al. A more efficient method to generate integration-free human iPS cells. Nat Methods. 2011;8(5):409-412.
- Cheng L, Wang Y, Yang Z, Cao J, Peng F, et al. p53 safeguards chemical reprogramming of human somatic cells toward pluripotency. Cell. 2026. doi:10.1016/j.cell.2026.03.038.
- Akutsu SN, Miyamoto T, Oba D, Tomioka K, Ochiai H, et al. iPSC reprogramming-mediated aneuploidy correction in autosomal trisomy syndromes. PLoS One. 2022;17(3):e0264965.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında