Entegre biyoinformatik ve deneysel analizler, LINC01871'in siklin bağımlı kinaz 4/6 inhibitörü duyarlılığının potansiyel bir belirleyicisi olduğunu ortaya koymuş ve LINC01871 aşırı ekspresyonunun meme kanseri proliferasyonunu baskıladığını ve azalmış NF-κB sinyalleri ile ilişkili olduğunu göstermiştir.
Araştırma makalesi
İnsan Meme Kanserinde LINC01871 Aracılı Siklin Bağımlı Kinaz 4/6 İnhibitörlerine Duyarlılık
Bu makalede
Özet
Özet
Meme kanseri, kadınlarda en sık teşhis edilen malignite olmaya devam etmektedir ve siklin bağımlı kinaz 4 ve 6 (CDK4/6) inhibitörlerine karşı gelişen direnç, uzun vadeli tedavi etkinliğini sınırlamaktadır. Bu çalışma, CDK4/6 inhibitörlerine karşı öngörülen duyarlılıkla ilişkili uzun kodlamayan RNA'ların (lncRNA'lar) belirlenmesini ve bunların meme kanserindeki biyolojik fonksiyonlarının araştırılmasını amaçlamıştır. The Cancer Genome Atlas (TCGA) üzerinden alınan transkriptomik veriler ile Genomics of Drug Sensitivity in Cancer 2 (GDSC2) veri tabanından alınan ilaç duyarlılık verileri entegre edilmiş ve ilaç duyarlılığı oncoPredict algoritması kullanılarak öngörülmüştür. Aday lncRNA'lar; diferansiyel ekspresyon analizi, ağırlıklı gen ko-ekspresyon ağ analizi, prognostik analiz ve makine öğrenimi yoluyla belirlenmiştir. LINC01871'in biyolojik fonksiyonları daha sonra in vitro ve in vivo deneyler kullanılarak değerlendirilmiştir. Ribosiklib ve palbosiklibe karşı öngörülen duyarlılıkla ilişkili altmış iki lncRNA belirlenmiş ve altı çekirdek lncRNA seçilmiştir. LINC01871, öngörülen ilaç duyarlılığı için en yüksek ayırt edici performansı göstermiştir. LINC01871'in aşırı ekspresyonu, meme kanseri hücrelerinin ribosiklib ve palbosiklibe karşı artan duyarlılığı, hücre proliferasyonunun inhibisyonu, apoptozun teşviki ve nükleer faktör kappa B (NF-κB) sinyallermesinin baskılanması ile ilişkili bulunmuştur. Tek hücre transkriptomik analizi, T hücrelerinde ve doğal öldürücü (NK) hücrelerde yüksek LINC01871 ekspresyonu ortaya koymuş; transkriptom tabanlı immün infiltrasyon analizleri ise yüksek LINC01871 ekspresyonunun artmış immün infiltrasyonla ilişkili olduğunu göstermiştir. Bu bulgular, LINC01871'i CDK4/6 inhibitörlerine karşı duyarlılık için aday bir biyobelirteç olarak tanımlamakta ve meme kanserindeki tümör baskılayıcı etkilerini kanıtlamaktadır. Öngörücü değerini ve terapötik ilgisini doğrulamak için daha ileri klinik ve mekanistik çalışmalara ihtiyaç vardır.
Giriş
Klinik yönetimdeki sürekli ilerlemelere rağmen, meme kanseri dünya genelindeki kadınlarda kansere bağlı ölümlerin temel nedenlerinden biri olmaya devam etmektedir1,2. Tedavi, moleküler hedefli yaklaşımları kapsayacak şekilde endokrin terapi ve kemoterapinin ötesine geçerek giderek genişlemiştir3. Bunlar arasında, ribosiklib, palbosiklib ve abemasiklib gibi siklin bağımlı kinaz 4 ve 6 (CDK4/6) inhibitörleri, östrojen reseptörü ve/veya progesteron reseptörü pozitif meme kanserinde önemli klinik faydalar sağlamıştır4,5,6. Buna rağmen, uzun süreli tedaviye edinilmiş direnç eşlik edebilir ve bu durum terapötik faydanın kalıcılığını sınırlar7.
CDK4/6 inhibisyonu esas olarak Rb–E2F hücre döngüsü düzenleyici ekseni üzerinden etki eder. CDK4/6–siklin D aktivitesinin inhibisyonu, retinoblastoma (Rb) proteininin fosforilasyonunu azaltarak, hipofosforile Rb'nin E2F bağımlı transkripsiyonu kısıtlamasına ve sonuç olarak G1-fazı durmasını teşvik ederek tümör hücresi proliferasyonunu sınırlamasına olanak tanır8. CDK4/6 inhibitörü direncine katkıda bulunan birkaç mekanizma karakterize edilmiş olsa da, bunlar tedavi yanıtındaki farklılıkları tam olarak açıklamamaktadır. Bu mekanizmalar arasında fosfatidilinositol 3-kinaz/protein kinaz B/memeli rapamisin hedefi (PI3K/AKT/mTOR) yolağının aberrant aktivasyonu ve siklin–CDK komplekslerinin artmış ekspresyonu yer almaktadır9,10. Özellikle, PI3K/AKT/mTOR yolunun bileşenleri, ileri evre hastalıkta kendileri de terapötik hedeflerdir11. Toplu olarak, bu gözlemler, CDK4/6 inhibitörü duyarlılığı ve direncinin ek moleküler belirleyicilerinin henüz tanımlanmadığını göstermektedir. Prediktif biyobelirteçlerin klinik önemi, HR-pozitif metastatik meme kanseri için gelişen biyobelirteç güdümlü stratejilerle örneklendirilmektedir. Örneğin, sirküle eden tümör DNA'sının (ctDNA) seri analizi, CDK4/6 inhibitörü tabanlı tedavi sırasında ESR1 mutasyonlarının ortaya çıkışını tespit edebilir. PADA-1 ve SERENA-6 çalışmaları, bu tür moleküler tespitlerin, CDK4/6 inhibisyonu sürdürülürken endokrin tedavide erken bir değişikliğe yol gösteren bilgi sağlayabileceğini göstermiştir12,13. Ancak ESR1 mutasyonları, terapötik yanıtın yalnızca bir belirleyicisini temsil eder ve tüm duyarlılık veya direnç durumlarını açıklayamaz. Bu sınırlama, CDK4/6 inhibitörü tabanlı tedavi sırasında progresyon gösteren HR-pozitif/HER2-negatif metastatik meme kanserli hastaların artık oral seçici östrojen reseptörü degraderları, PI3K/AKT yolu inhibitörleri ve antikor-ilaç konjugatları dahil olmak üzere birkaç ardışık terapötik seçeneğe sahip olması nedeniyle artan bir klinik öneme sahiptir. Bu nedenle, farklı CDK4/6 inhibitörü duyarlılığı ile ilişkili ek aday biyobelirteçlerin tanımlanması, bu tedavilerden fayda görme olasılığı daha yüksek olan hastaların, daha erken tedavi adaptasyonu gerektirebilecek olanlardan ayırt edilmesine yardımcı olabilir.
Uzun kodlama yapmayan RNA'lar (lncRNA'lar), protein kodlama kapasitesi olmayan ve çok sayıda biyolojik sürecin düzenlenmesinde rol oynayan transkriptlerdir. Birçok lncRNA'nın kanser ilerlemesi ve tedavi yanıtı ile ilişkili olduğu ortaya konmuştur. Oral skuamöz hücreli karsinomda, LOC100506114'ün RUNX transkripsiyon faktörü ile etkileşime girerek ve ardından alt akış gen ifadesini düzenleyerek proliferasyonu ve migrasyonu teşvik ettiği rapor edilmiştir14. Meme kanserinde, HISLA artmış glikoliz ve apoptoza karşı gelişmiş direnç ile ilişkilendirilirken15, LINC02568'in ESR1 ve CA12 düzenlemesi aracılığıyla endokrin dirence katkıda bulunduğu belirlenmiştir16. lncRNA'ların kanser biyolojisindeki kabul görmüş etkilerine rağmen, CDK4/6 inhibitör direnci ile olan ilişkileri henüz yeterince tanımlanmamıştır. Bu çalışmada, ribosiklib ve palbosiklibe karşı öngörülen hassasiyetle ilişkili lncRNA'ları belirlemek için entegre bir multi-omik ve makine öğrenimi stratejisi kullanılmış ve bu süreçte LINC01871 bir aday olarak ortaya çıkmıştır. Ardından, LINC01871'in her iki ajana karşı hassasiyetle olan ilişkisini inceledik ve in vitro ve in vivo deneysel yaklaşımlar kullanarak meme kanseri hücresi proliferasyonu üzerindeki etkilerini değerlendirdik.
Protokol
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Sonuçlar
LINC01871, Ribociclib ve Palbociclib Duyarlılığı ile Yakından İlişkilidir
Tahmin Edilen IC50 ribociclib ve palbociclib değerleri, GDSC2 verileri kullanılarak TCGA-BRCA kohortundaki hastalar için tahmin edilmiş ve artan düzende sıralanmıştır. Tahmin edilen IC değerlerinin en düşük çeyreğinde yer alan hastalar50 değerler hassas gruba atanırken, en yüksek çeyreklik dilimdeki değerler ise dirençli gruba atandı (Şekil 1A,B). Bu grupların karşılaştırılması, her bir ilaç için farklı şekilde eksprese edilen lncRNA'ların belirlenmesini sağlamıştır (Ek Şekil 1A,B). WGCNA, ribosiklib ve palbosiklibe öngörülen duyarlılıkla anlamlı düzeyde ilişkili olan lncRNA modüllerini daha ileri düzeyde tanımlamıştır (Şekil 1C,D; Ek Şekil 1C,D). Elde edilen dört gen setinin entegrasyonu, 62 ortak lncRNA ortaya çıkarmıştır (Şekil 1E), bunlardan 18'i hem tek değişkenli Cox regresyonunda hem de Kaplan-Meier sağkalım analizlerinde prognoz ile anlamlı şekilde ilişkiliydi. Ardından, bu seti daha da rafine etmek için LASSO regresyonu uygulanmış ve sonuç olarak prognostik olarak ilgili altı lncRNA belirlenmiştir: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 ve LINC01871 (Şekil 1F,G; Ek Şekil 2A). Öngörülen ilaç direncini ayırt etme yetenekleri daha sonra AUC analizi ile karşılaştırılmıştır. Altı aday arasında LINC01871, ribosiklib ve palbosiklib genelinde en yüksek ortalama AUC değerini vermiştir (Şekil 1H–J; Ek Figür 2B,C).
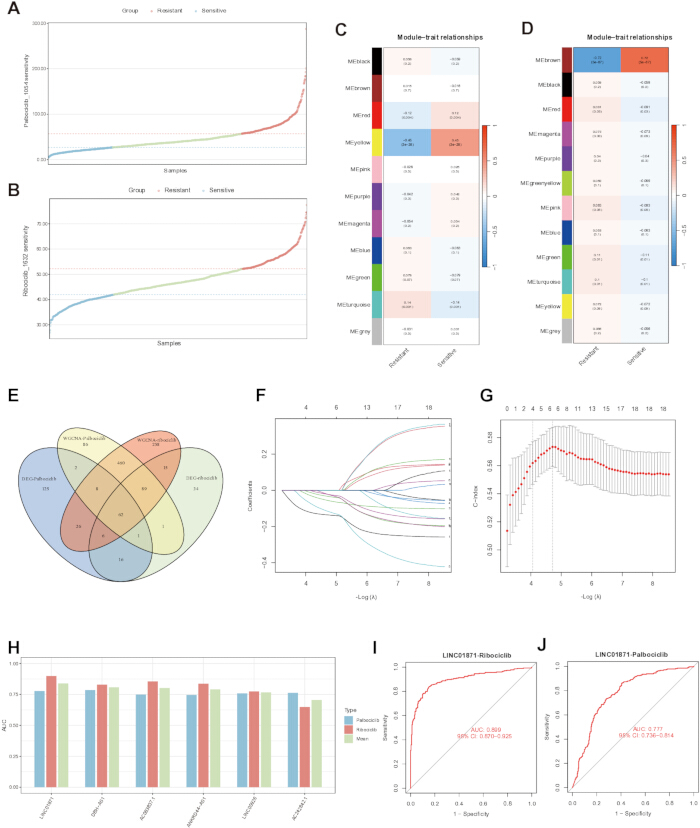
Şekil 1. Ribosiklib ve palbosiklibe yönelik öngörülen hassasiyet ile ilişkili uzun kodlamayan RNA'ların belirlenmesi.
(A,B) Genomics of Drug Sensitivity in Cancer 2 (GDSC2) veri seti kullanılarak tahmin edilen, The Cancer Genome Atlas meme invaziv karsinomu (TCGA-BRCA) kohortundaki palbosiklib (A) ve ribosiklib (B) için öngörülen yarı maksimal inhibitör konsantrasyon (IC50) değerlerinin dağılımı. (C,D) Palbosiklib (C) ve ribosiklib (D) için modül-özellik ilişkilerini gösteren ağırlıklı gen ko-ekspresyon ağı analizi (WGCNA). (E) Diferansiyel eksprese olan gen setleri ile iki ilaçla ilişkili WGCNA kaynaklı gen setleri arasında paylaşılan genleri gösteren Venn diyagramı. (F,G) Prognostik olarak ilgili uzun kodlamayan RNA'ların (lncRNA'lar) seçimi için en küçük mutlak küçültme ve seçim operatörü (LASSO) regresyonu. (H) LASSO tarafından seçilen altı lncRNA için alıcı işletim karakteristik eğrisi altında kalan alan (AUC) değerlerinin karşılaştırılması. (I,J) LINC01871'in ribosiklib (I) ve palbosiklibe (J) yönelik öngörülen hassasiyeti ayırt etme yeteneğini değerlendiren alıcı işletim karakteristik (ROC) eğrileri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
LINC01871'in Aşırı Ekspresyonu Meme Kanseri Hücrelerinde İlaç Duyarlılığını Artırmıştır
TCGA-BRCA kohortunda, daha yüksek LINC01871 ekspresyonu, hem ribociclib hem de palbociclib için daha düşük öngörülen IC50 değerleri ile ilişkiliydi (Şekil 2A,B). Bu ilişki, klinik olarak ilgili HR-pozitif/HER2-negatif alt grubunda (n = 599) daha ayrıntılı olarak incelenmiştir. Bu alt grupta, her iki ajanın öngörülen IC50 değerleri, yüksek LINC01871 ekspresyonuna sahip hastalarda, düşük ekspresyona sahip olanlara göre anlamlı derecede daha düşüktü. Ayrıca, LINC01871 ekspresyonu, ribociclib ve palbociclib'in öngörülen IC50 değerleri ile ters korelasyon gösterdi (Ek Şekil 3A,B). Hesaplamalı ilişki daha sonra deneysel olarak incelendi. Sitotoksisite analizleri, LINC01871 aşırı eksprese eden meme kanseri hücrelerinde, vektör kontrol hücrelerine kıyasla hem ribociclib'e hem de palbociclib'e karşı daha yüksek duyarlılık olduğunu gösterdi (Şekil 2C,D). Akış sitometrisi, LINC01871 aşırı ekspresyonu sonrası G1 fazındaki hücre oranının daha yüksek ve S fazındaki hücre oranının daha düşük olduğunu gösterdi; bu durum artmış G1-fazı duraklaması ile uyumludur (Şekil 2E). Koloni oluşum analizlerinde, artan ribociclib veya palbociclib konsantrasyonları koloni oluşumunu kademeli olarak azalttı (Şekil 2F,G). Eşdeğer ilaç konsantrasyonlarında, koloni oluşturma kapasitesi LINC01871 aşırı eksprese eden hücrelerde, vektör kontrol hücrelerine göre anlamlı derecede daha düşüktü. Western blot analizi ek olarak, LINC01871 aşırı eksprese eden hücrelerde düşük CDK4, CDK6 ve siklin D1 seviyelerinin yanı sıra azalmış RB fosforilasyonu olduğunu ortaya koydu (Şekil 2H). Bu moleküler değişiklikler, LINC01871 aşırı ekspresyonu sonrası gözlenen daha belirgin G1-fazı duraklaması ile uyumluydu.
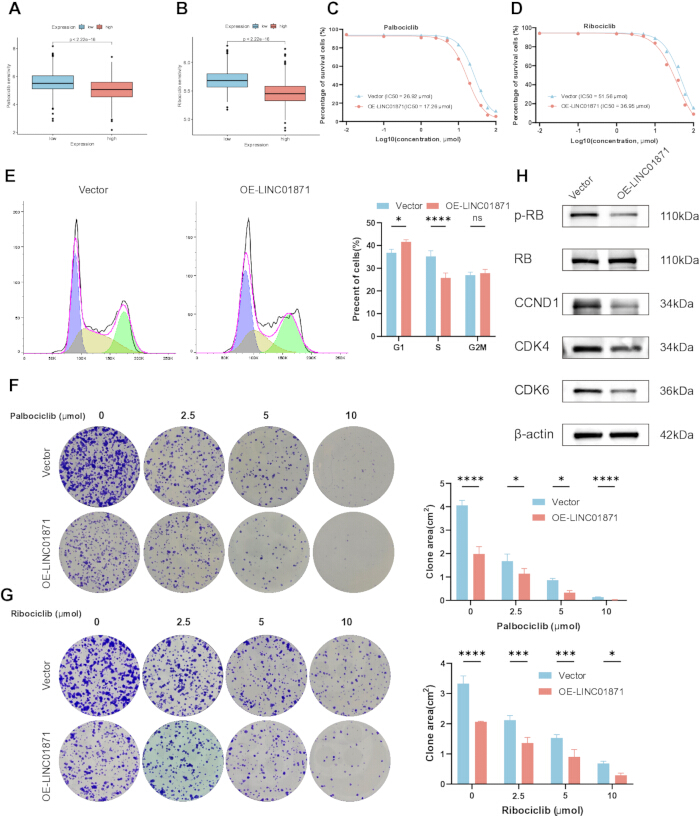
Şekil 2. Meme kanseri hücrelerinde LINC01871 aşırı ifadesinin siklin bağımlı kinaz 4/6 inhibitörlerine karşı duyarlılıkla ilişkisi. (A,B) Düşük veya yüksek LINC01871 ifadesine göre palbociclib (A) ve ribociclib'e (B) karşı öngörülen duyarlılık. (C,D) Vektör kontrol ve LINC01871 aşırı ifade eden hücrelerde palbociclib (C) ve ribociclib (D) için ilaç doz-yanıt eğrileri; her panelde ilgili yarı maksimal inhibitör konsantrasyon (IC50) değerleri belirtilmiştir. (E) Vektör kontrol ve LINC01871 aşırı ifade eden hücrelerde hücre döngüsü dağılımının akış sitometrik değerlendirmesi. (F,G) Artan konsantrasyonlarda palbociclib (F) ve ribociclib (G) tedavisi sonrası koloni oluşumu. (H) β-aktin yükleme kontrolü olarak kullanılarak yapılan siklin bağımlı kinaz 4 (CDK4), siklin bağımlı kinaz 6 (CDK6), siklin D1 (CCND1), retinoblastoma proteini (RB) ve fosforile RB (p-RB) Western blot değerlendirmesi. OE-LINC01871, LINC01871 aşırı ifadesi; ns, anlamlı değil. Tüm deneyler bağımsız olarak üç paralel şeklinde yürütülmüştür. Veriler ortalama ± SD olarak sunulmuştur. IC50 değerleri doğrusal olmayan regresyon ile belirlenmiştir. Hücre döngüsü dağılımı ve koloni oluşum verileri iki yönlü ANOVA kullanılarak analiz edilmiştir. *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001; ns, anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Yüksek LINC01871 Ekspresyonuna Sahip Hastalarda Klinik Sonuçların Daha Olumlu Olma Eğiliminde Olduğu Görüldü
LINC01871'in prognostik ilişkisi TCGA-BRCA kohortunda daha ayrıntılı olarak incelenmiştir. Kaplan–Meier analizleri, yüksek LINC01871 ekspresyonunun genel olarak daha uzun genel sağkalım ve progresyonsuz aralıkla ilişkili olduğunu göstermiştir (Şekil 3A; Ek Şekil 3C). Hem eşleştirilmiş hem de eşleştirilmemiş örneklerin karşılaştırmaları, tümör dokularında LINC01871 ekspresyonunun normal dokulara göre anlamlı derecede daha düşük olduğunu ortaya koymuştur (Şekil 3B,C). Ardından, LINC01871 ekspresyonu ile klinikopatolojik özellikler arasındaki ilişki incelenmiştir. Düşük LINC01871 ekspresyonunun daha büyük tümör boyutuyla ilişkili olma eğiliminde olduğu ve hayatta olduğu kaydedilen hastalara kıyasla vefat ettiği kaydedilen hastalarda daha fazla gözlendiği belirlenmiştir (Şekil 3D,E). Radyoterapi alan hastalar arasında yapılan alt grup analizi, yüksek LINC01871 ekspresyonuna sahip olanlarda anlamlı derecede daha olumlu sağkalım sonuçları olduğunu göstermiştir (Ek Şekil 3D). Sonrasında, LINC01871 ekspresyonunu birden fazla klinik özellikle birleştiren prognostik bir nomogram geliştirilmiştir (Ek Şekil 3E). Kalibrasyon analizi, nomogram tarafından tahmin edilen sağkalım olasılıkları ile gözlemlenen sonuçlar arasında yakın bir uyum olduğunu göstermiştir (Ek Şekil 3F).
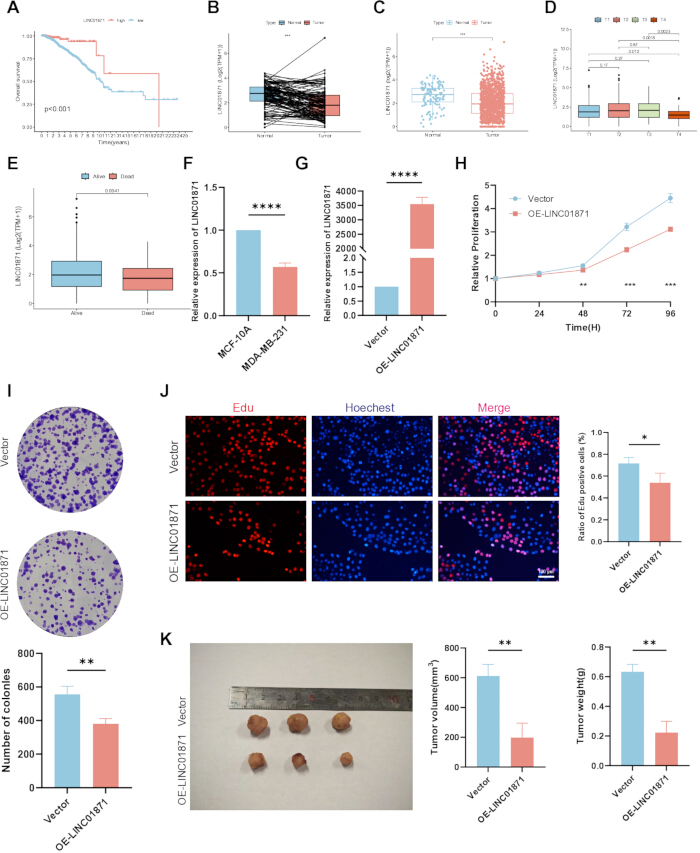
Şekil 3. LINC01871 ekspresyonu, prognostik ilişkiler ve meme kanseri proliferasyonunun baskılanması.
(A) LINC01871 ekspresyonuna göre katmanlandırılmış genel sağkalımın Kaplan–Meier analizi. (B,C) Normal ve tümör dokuları arasındaki LINC01871 ekspresyonunu karşılaştıran eşli (B) ve eşleşmemiş (C) analizler. (D,E) Tümör T kategorisi (D) ve sağkalım durumu (E) ile ilişkili LINC01871 ekspresyonu. (F) MCF-10A ve MDA-MB-231 hücreleri arasındaki bağıl LINC01871 ekspresyonunun karşılaştırılması. (G) MDA-MB-231 hücrelerinde LINC01871 aşırı ekspresyonunun ters transkripsiyon kantitatif polimeraz zincir reaksiyonu ile doğrulanması. (H–J) Hücre proliferasyonunun Hücre Sayım Kiti-8 (CCK-8) analizi (H), koloni oluşum analizi (I) ve 5-etinil-2′-deoksiridin (EdU) inklüzyon analizi (J) ile değerlendirilmesi. Panel J'deki ölçek çubuğu 100 μm'yi temsil etmektedir. (K) Vektör-kontrol ve LINC01871-aşırı ekspresyon gruplarında ksenogreft tümör görünümü, hacmi ve ağırlığı. TPM, milyon başına transkript; OE-LINC01871, LINC01871 aşırı ekspresyonu. Genel sağkalım, log-rank testi ile Kaplan–Meier analizi kullanılarak değerlendirilmiştir. Tümör ve normal dokular arasındaki eşli karşılaştırmalar Wilcoxon işaretli sıralama testi ile değerlendirilmiştir. Kalan iki grup karşılaştırmaları için, Shapiro–Wilk testi ile normallik değerlendirildikten sonra eşleşmemiş Student t-testi veya Mann–Whitney U testi seçilmiştir. CCK-8 ölçümleri iki yönlü varyans analizi ile analiz edilmiştir. In vitro deneyler üç bağımsız biyolojik tekrardan oluşurken, ksenogreft deneyleri her grupta üç fareyi içermiştir. Veriler ortalama ± standart sapma olarak sunulmuştur. *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001; ns, anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
LINC01871'in Aşırı İfadesi Tümör Hücresi Proliferasyonunu Baskılar ve Azalmış NF-κB Sinyalizasyonu ile İlişkilidir
LINC01871'in tümör hücresi proliferasyonu üzerindeki inhibitör etkisi, in vitro ve in vivo modeller kullanılarak daha ayrıntılı incelenmiştir. LINC01871 ekspresyonu, normal meme epitel hücresi hattında meme kanseri hücresi hattına göre anlamlı derecede daha yüksekti (Şekil 3F). LINC01871 aşırı ekspresyon modelinin başarıyla kurulduğu, vektör kontrol grubuna kıyasla belirgin şekilde artmış LINC01871 ekspresyonu gösteren RT-qPCR ile doğrulanmıştır (Şekil 3G). Ardından yapılan CCK-8 analizleri, LINC01871 aşırı eksprese eden hücrelerde proliferatif kapasitenin anlamlı derecede azaldığını ortaya çıkarmıştır (Şekil 3H). Bu bulguyla uyumlu olarak, LINC01871 aşırı ekspresyonu koloni oluşturma yeteneğini azaltmış (Şekil 3I) ve EdU-pozitif hücrelerin oranını düşürmüştür (Şekil 3J). Ksenogreft modelde, LINC01871 aşırı eksprese eden hücrelerden türeyen tümörler, vektör kontrol hücrelerinden türeyenlere göre anlamlı derecede daha küçüktü (Şekil 3K).
Bu etkilerin altında yatan potansiyel mekanizmaları araştırmak için iki gen seti kullanılarak fonksiyonel zenginleştirme analizleri gerçekleştirilmiştir: yüksek ve düşük LINC01871 ekspresyon grupları arasında diferansiyel olarak eksprese edilen genler ve Pearson korelasyon analizi ile LINC01871 ile ko-eksprese olduğu belirlenen genler. Bu gen setlerinin GO analizi; T-hücresi reseptör bağlanması, ana doku uyumluluk kompleksi (MHC) protein kompleksi bağlanması, lökosit aktivasyonunun pozitif regülasyonu ve immün reseptör aktivitesi dahil olmak üzere çeşitli bağışıklıkla ilgili fonksiyonlarla ilişkiler olduğunu ortaya koymuştur (Şekil 4A,C). KEGG analizi de benzer şekilde, T-hücresi reseptör sinyalleri ve kanserde programlı ölüm ligandı 1 (PD-L1) ekspresyonu ile programlı hücre ölümü proteini 1 (PD-1) kontrol noktası yolu dahil olmak üzere bağışıklıkla ilişkili yolakları belirlemiştir. Ayrıca, Janus kinaz/sinyal dönüştürücü ve transkripsiyon aktivatörü (JAK-STAT) ve NF-κB sinyal yolakları için de zenginleşme gözlemlenmiştir (Şekil 4B,D). NF-κB sinyalleri her iki zenginleştirme analizinde de belirlendiği için, aktivitesi western blotting ile daha ayrıntılı incelenmiştir. P65 fosforilasyonu, LINC01871 aşırı eksprese eden hücrelerde kontrol grubuna göre belirgin şekilde daha düşüktür (Şekil 4E); bu bulgu, azalmış NF-κB yolak aktivasyonu ile uyumludur. LINC01871 aşırı ekspresyonu ile apoptoz arasındaki ilişki de değerlendirilmiştir. Western blotting, LINC01871 aşırı ekspresyonu sonrası pro-apoptotik Bax proteininin ekspresyonunda artış ve anti-apoptotik Bcl-2 proteininin ekspresyonunda azalma göstermiştir (Şekil 4F). Akış sitometrisi ayrıca, LINC01871 aşırı ekspresyon grubunda vektör kontrol grubuna göre anlamlı derecede daha yüksek oranda apoptotik hücre olduğunu ortaya koymuştur (Şekil 4G).
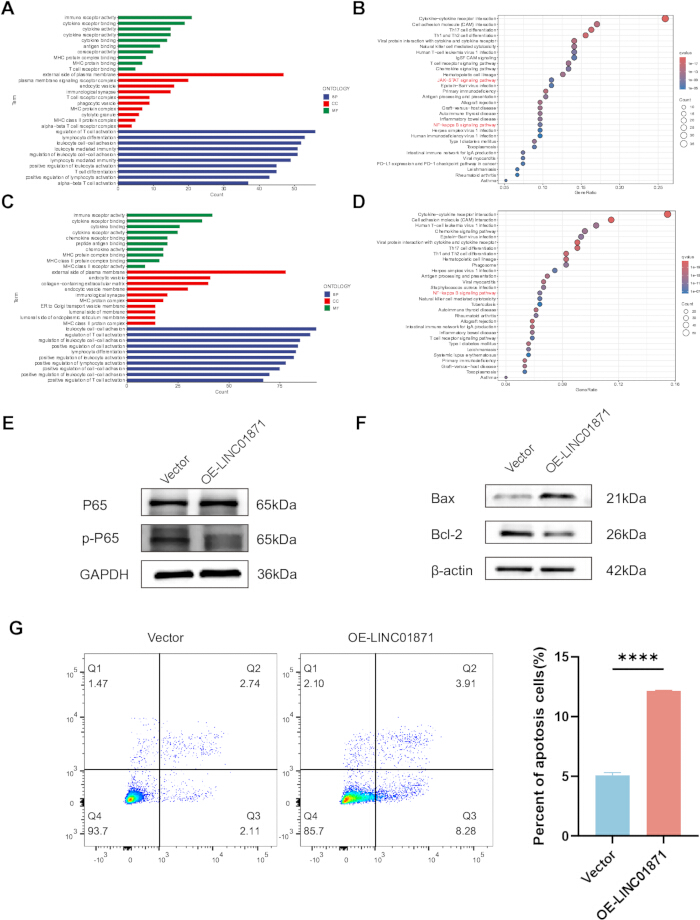
Şekil 4LINC01871'in nükleer faktör kappa B sinyal yolu ve apoptoz ile ilişkisi.
(A,B) Yüksek ve düşük LINC01871 ekspresyon grupları arasında diferansiyel ekspresyon gösteren genlerin Gen Ontolojisi (GO) (A) ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) (B) zenginleştirme analizleri. (C,D) LINC01871 ile ko-eksprese olan genlerin GO (C) ve KEGG (D) zenginleştirme analizleri. (E) Nükleer faktör kappa B'nin (NF-κB) yolak proteinleri P65 ve fosforile P65 (p-P65); yükleme kontrolü olarak gliseraldehit-3-fosfat dehidrogenaz (GAPDH) kullanılmıştır. (F) B-hücreli lenfoma 2 (Bcl-2) ve Bcl-2 ile ilişkili X proteini (Bax) apoptozis ile ilişkili proteinlerin Western blot değerlendirmesi; şunlar kullanılarak: β-aktin yükleme kontrolü olarak kullanılmıştır. (G) Vektör kontrol ve LINC01871 aşırı eksprese eden hücrelerde apoptozun akış sitometrisi ile değerlendirilmesi ve nicelenmesi. Tüm in vitro deneyler üç bağımsız biyolojik tekerrürü içermiştir. Gösterilen western blot görüntüleri üç bağımsız biyolojik deneyi temsil etmektedir. Veriler ortalama olarak sunulmuştur ± SD. Vektör-kontrol ve LINC01871 aşırı ifade eden hücreler arasındaki karşılaştırmalar, eşleştirilmemiş Student t-testi kullanılarak gerçekleştirildi. t- Shapiro–Wilk testi ile normallik değerlendirmesinin ardından t-testi veya Mann–Whitney U testi. *P < 0,05, **P < 0,01, ***P < 0,001 ve ****P < 0,0001; ns, anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
LINC01871'in Pan-Kanser Analizi
LINC01871'in meme kanserindeki tümör baskılayıcı özellikleri göz önüne alınarak, ekspresyonunu ve prognostik ilişkilerini karakterize etmek amacıyla analiz birçok kanser türüne genişletilmiştir. LINC01871'in diferansiyel ekspresyonu, meme kanserine ek olarak çeşitli malignitelerde gözlemlenmiştir (Şekil 5A). Kolon adenokarsinomu (COAD), böbrek renal berrak hücreli karsinomu (KIRC), böbrek renal papiller hücreli karsinomu (KIRP), akciğer skuamöz hücreli karsinomu (LUSC) ve tiroid karsinomunda (THCA), hem eşleştirilmiş hem de eşleştirilmemiş karşılaştırmalarda tümör ve normal dokular arasında anlamlı farklar tespit edilmiştir (Şekil 5B). Sağkalım analizleri; baş ve boyun skuamöz hücreli karsinomu (HNSC), KIRC, beyin düşük dereceli gliom (LGG), rektum adenokarsinomu (READ), deri kutanöz melanomu (SKCM), uterus korpus endometrial karsinomu (UCEC), mesane ürotelyal karsinomu (BLCA), karaciğer hepatosellüler karsinomu (LIHC) ve prostat adenokarsinomunda (PRAD) LINC01871 için anlamlı prognostik ilişkiler olduğunu belirlemiştir (Şekil 5C–E).
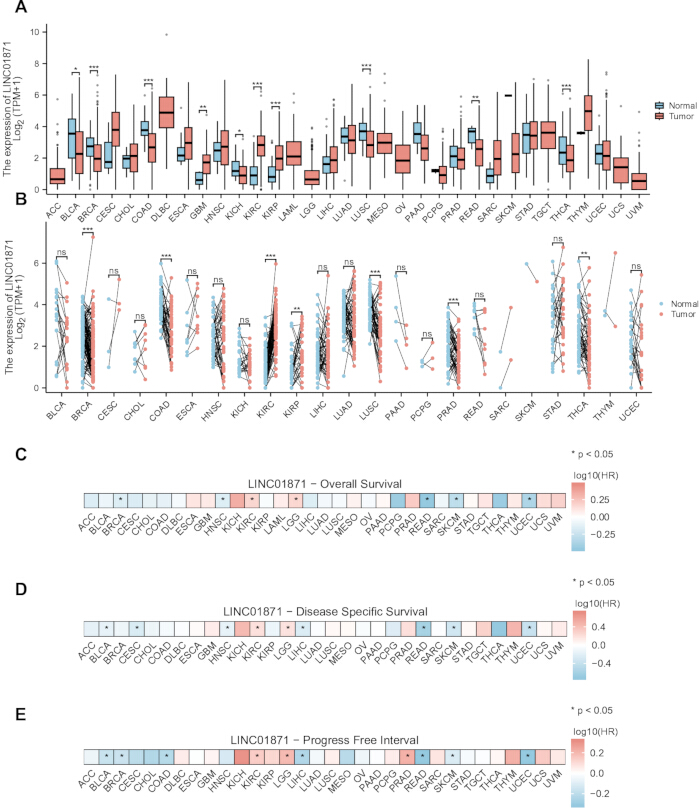
Şekil 5. LINC01871'in pan-kanser ekspresyon ve prognostik analizleri.
(A,B) Çoklu kanser türlerinde tümör ve normal dokular arasındaki LINC01871 ekspresyonunun eşleştirilmemiş (A) ve eşleştirilmiş (B) analizler kullanılarak karşılaştırılması. (C–E) LINC01871'in genel sağkalım (C), hastalığa özgü sağkalım (D) ve progresyonsuz aralık (E) için log-dönüştürülmüş risk oranlarını gösteren prognostik ilişkileri. HR, risk oranı; TPM, milyon başına transkript; ns, anlamlı değil. Kanser türü kısaltmaları The Cancer Genome Atlas terminolojisine dayanmaktadır. Eşleştirilmemiş tümör-normal verileri Mann-Whitney U testi (A) ile, eşleştirilmiş tümör-normal verileri ise Wilcoxon işaretli sıra testi (B) ile değerlendirilmiştir. Genel sağkalım, hastalığa özgü sağkalım ve progresyonsuz aralık ile olan ilişkiler tek değişkenli Cox orantılı riskler regresyonu (C–E) ile incelenmiştir. *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001; ns, anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
LINC01871 Ekspresyonu ile İmmün Hücre İnfiltrasyonu Arasındaki Korelasyon
Sırada, meme kanseri örneklerinden elde edilen tek hücreli RNA-seq verilerini (GSE161529) kullanarak LINC01871'in hücresel dağılımını karakterize ettik. Kalite kontrolü, batch etkilerinin düzeltilmesi, kümeleme ve hücre tipi anotasyonunun ardından belirlenen popülasyonlar arasında epitel hücreler, CD8⁺ T hücreleri, T hücreleri, makrofajlar, fibroblastlar, doğal öldürücü (NK) hücreler ve B hücreleri yer alıyordu (Şekil 6A). Bu popülasyonlar arasında LINC01871 ekspresyonu en belirgin şekilde T hücrelerinde ve NK hücrelerinde görüldü (Şekil 6B,C). Bu nedenle, transkriptom tabanlı infiltrasyon tahminlerini kullanarak LINC01871 ile immün mikroçevre arasındaki ilişkiyi daha detaylı inceledik. CIBERSORT analizi, yüksek-LINC01871 ekspresyon grubunun; CD8⁺ T hücreleri, NK hücreleri ve M1 makrofajlar dahil olmak üzere birkaç immün popülasyonun tahmin edilen oranlarının daha yüksek, düzenleyici T hücreleri (Treg'ler) ve M2 makrofajların tahmin edilen oranlarının ise daha düşük olduğunu gösterdi (Şekil 6D). Benzer şekilde, ESTIMATE ile türetilen immün skorlar, LINC01871 ekspresyonu yüksek olan örneklerde daha yüksekti (Şekil 6E). Daha önce raporlanmış immün hücre marker genleri kullanılarak yapılan ssGSEA analizi, genel olarak tutarlı paternler ortaya koydu (Şekil 6F). Bu analizin farklı kanser türlerine genişletilmesi, LINC01871 ekspresyonu ile birden fazla immün hücre popülasyonunun tahmin edilen bolluğu arasında anlamlı korelasyonlar olduğunu gösterdi (Şekil 6G).
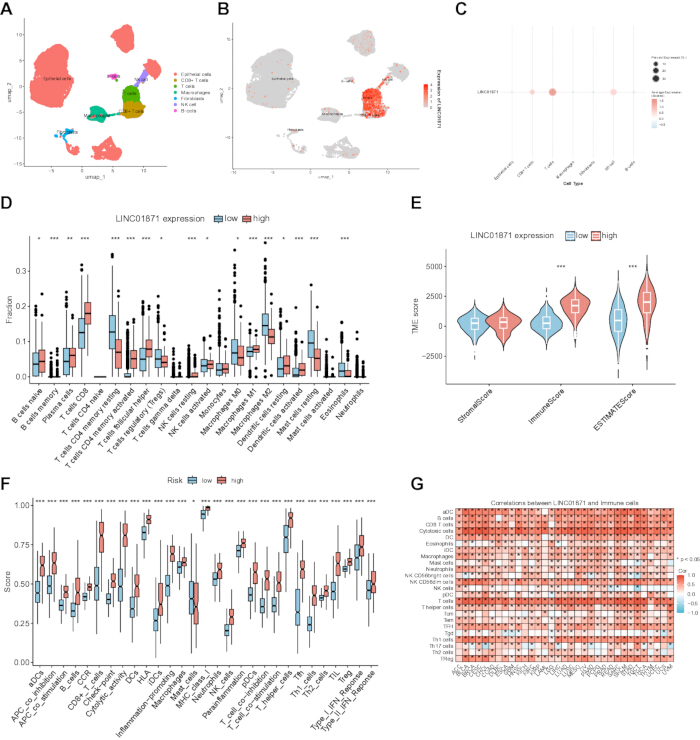
Şekil 6LINC01871'in tek hücre ekspresyon ve immün infiltrasyon analizleri.
(A) Tek hücreli RNA dizileme verilerinden tanımlanan anotasyonlu hücre popülasyonlarının Uniform Manifold Approximation and Projection (UMAP) gösterimi. (B) Anotasyonlu hücre popülasyonları arasındaki LINC01871 ekspresyonunun dağılımını betimleyen UMAP özellik grafiği. (C) Her bir hücre tipi için LINC01871 eksprese eden hücrelerin oranını ve ölçeklendirilmiş ortalama ekspresyonu gösteren nokta grafiği (dot plot). (D) Cell-type Identification by Estimating Relative Subsets of RNA Transcripts (CIBERSORT) ile tahmin edilen, düşük ve yüksek LINC01871 ekspresyon gruplarındaki 22 immün hücre popülasyonunun göreceli oranları. (E) Estimation of STromal and Immune cells in MAlignant Tumour tissues using Expression data (ESTIMATE) kullanılarak elde edilen stromal, immün ve tümör mikroçevre skorları. (F) Düşük ve yüksek LINC01871 ekspresyon gruplarında tek örneklem gen seti zenginleştirme analizi (ssGSEA) ile elde edilen immün ilişkili skorlar. (G) ssGSEA kullanılarak tahmin edilen, LINC01871 ekspresyonu ile immün hücre infiltrasyonu arasındaki pan-kanser ilişkileri. NK, doğal katil hücre; TME, tümör mikroçevresi. Kanser tipi kısaltmaları The Cancer Genome Atlas nomenklatürüne dayanmaktadır. Düşük ve yüksek LINC01871 ekspresyon grupları arasındaki farklar Mann–Whitney U testi ile değerlendirilmiştir (D–F). LINC01871 ekspresyonu ile immün hücre infiltrasyonu arasındaki pan-kanser ilişkileri Spearman korelasyon analizi ile değerlendirilmiştir (G). *P < 0,05, **P < 0,01, ***P < 0,001 ve ****P < 0,0001; ns, anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Veri Kullanılabilirliği:
Bu çalışmada analiz edilen veri setleri, The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) ve Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/) üzerinden kamuya açık olarak erişilebilirdir. Kullanılan veri setleri arasında TCGA-BRCA kohortu ve GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529) yer almaktadır. Ek Şekil 1–3, ek biyoinformatik ve prognostik analizleri sunmaktadır. Ek Tablo 1, ters transkripsiyon kantitatif polimeraz zincir reaksiyonu (RT-qPCR) için kullanılan primer dizilerini listelemektedir ve Ek Tablo 2, western blot analizi için kullanılan primer ve sekonder antikorları listelemektedir. Biyoinformatik ve istatistiksel analizler için kullanılan R betikleri Ek Dosya 1 olarak sunulmuştur.
Ek Şekil 1. Öngörülen CDK4/6 inhibitörü duyarlılığı ile ilişkili diferansiyel eksprese edilen genlerin ve ağırlıklı gen ko-ekspresyon ağ modüllerinin tanımlanması.
(A,B) Ribosiklib (A) ve palbosiklib (B) için öngörülen dirençli ve öngörülen duyarlı gruplar arasındaki diferansiyel eksprese edilen genleri gösteren yanardağ grafikleri. (C,D) Ribosiklib (C) ve palbosiklib (D) için gen kümelenmesini ve modül atamasını gösteren, WGCNA tarafından oluşturulan küme dendrogramları. Diferansiyel eksprese edilen genler, mutlak log2 kat değişim değeri ≥0.5 ve düzeltilmiş P değeri <0.05 olanlar olarak tanımlanmıştır. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 2. Beş ek aday lncRNA'nın prognostik ve prediktif performansı.
(A) LASSO regresyonu ile belirlenen beş ek aday lncRNA'nın Kaplan-Meier sağkalım analizleri. (B,C) Bu beş lncRNA'nın ribociclib (B) ve palbociclib (C) direncini öngörmedekile ilgili tanısal performanslarını gösteren alıcı işletim karakteristiği eğrisi analizleri. LINC01871'e ait ilgili analizler Şekil 1 ve 3'te sunulmuştur. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 3. Meme kanserinde LINC01871'in prognostik değerlendirmesi.
(A) Hormon reseptörü pozitif/insan epidermal büyüme faktörü reseptörü 2 negatif (HR-pozitif/HER2-negatif) alt grubundaki yüksek ve düşük LINC01871 ekspresyon grupları için ribosiklib ve palbosiklibin öngörülen yarı maksimum inhibitör konsantrasyon (IC50) değerleri. (B) HR-pozitif/HER2-negatif alt grubunda LINC01871 ekspresyonu ile ribosiklib ve palbosiklib için öngörülen IC50 değerleri arasındaki Spearman korelasyon analizleri. (C) LINC01871 ekspresyonuna göre progresyonsuz aralığın (PFI) Kaplan–Meier sağkalım analizi. (D) Radyoterapi alan hastaların LINC01871 ekspresyonuna göre tabakalandırılmış Kaplan–Meier sağkalım analizi. (E) Genel TCGA-BRCA kohortunda genel sağkalımı öngörmek için LINC01871 ekspresyonu ve klinikopatolojik özelliklerin entegre edildiği nomogram. (F) Nomogram için 1, 3 ve 5. yıllarda öngörülen ve gözlemlenen sağkalım olasılıkları arasındaki uyumu değerlendiren kalibrasyon eğrileri. Panel A'daki karşılaştırmalar Mann–Whitney U testi kullanılarak analiz edilmiş ve panel B'deki korelasyonlar Spearman korelasyon analizi kullanılarak değerlendirilmiştir. IC50, yarı maksimum inhibitör konsantrasyon; PFI, progresyonsuz aralık; HR, hormon reseptörü; HER2, insan epidermal büyüme faktörü reseptörü 2. *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001; ns, anlamlı değil. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Tablo 1. Ters transkripsiyon kantitatif polimeraz zincir reaksiyonu (RT-qPCR) için kullanılan primer dizileri.
LINC01871 ve endojen referans gen GAPDH'nin RT-qPCR analizi için kullanılan ileri ve geri primer dizileri (5′→3′). Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2. Western blot analizi için kullanılan primer ve sekonder antikorlar.
Hedef protein veya antikor özgüllüğü, tedarikçi, katalog numarası, konakçı tür, çalışma dilüsyonu ve Araştırma Kaynak Tanımlayıcısı (RRID) dahil olmak üzere western blot analizi için kullanılan primer ve sekonder antikorlar. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 1. Biyoinformatik ve istatistiksel analizler için kullanılan R betikleri.
Bu ek dosya; transkriptomik analiz, diferansiyel ekspresyon analizi, ağırlıklı gen eş-ekspresyon ağı analizi (WGCNA), en küçük mutlak büzülme ve seçim operatörü (LASSO) regresyonu, sağkalım analizi, alıcı işletim karakteristik (ROC) analizi, fonksiyonel zenginleştirme analizi, immün infiltrasyon analizi, tek hücreli RNA sekanslama analizi ve şekil oluşturma dahil olmak üzere bu çalışmada sunulan biyoinformatik analizleri ve şekilleri oluşturmak için kullanılan R betiklerini içermektedir. Münferit betikler, makalede sunulan ana ve ek şekillere karşılık gelmektedir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Kanser biyolojisine dair genişleyen anlayış, yeni terapötik hedeflerin tanımlanmasını sağlamış ve hedefe yönelik tedavileri kanser tedavisinin önemli bir bileşeni haline getirmiştir17. Ancak, tedavi direncinin gelişmesi bu tedavilerin uzun vadeli etkinliğini sınırlamaya devam etmektedir. Bu çalışmada, çoklu omik analizlerin makine öğrenimi yaklaşımlarıyla entegrasyonu, ribosiklib ve palbosiklibe karşı öngörülen duyarlılıkla ilişkili bir aday olarak LINC01871'i tanımlamıştır. Deneysel analizler ayrıca, LINC01871 aşırı ifadesinin in vitro ortamda her iki ajana karşı duyarlılığı artırdığını ve hücre tabanlı ile zenograft modellerde meme kanseri hücresi proliferasyonunu baskıladığını göstermiştir. Bu etkilere NF-κB yolak aktivitesindeki azalma eşlik etmiş olup, bu durum LINC01871 ile bu sinyal yolağı arasında potansiyel bir ilişkiye işaret etmektedir. Bu gözlemler, CDK4/6 inhibitörü bazlı tedavi sırasında tedavi kararlarını bilgilendirmek için biyobelirteçlerin artan kullanımıyla ilgili olabilir. Bununla birlikte, LINC01871'i destekleyen kanıtlar, yerleşmiş biyobelirteç rehberli yaklaşımlar için mevcut olanlardan önemli ölçüde farklıdır. Örneğin, ESR1 mutasyonlarının dolaşıma giren tümör DNA izlemi, endokrin tedaviyi uyarlama stratejisi olarak prospektif değerlendirmeye tabi tutulmuştur. Buna karşılık LINC01871, bir aday biyobelirteç olarak kalmaya devam etmektedir ve henüz klinik karar verme için uygun kabul edilmemelidir. Bu ayrım, HR-pozitif/HER2-negatif metastatik meme kanserinde CDK4/6 inhibitörü bazlı tedavi sonrası progresyon geliştiğinde tedavi seçeneklerinin artık oral selektif östrojen reseptör yıkıcılarını, PI3K/AKT yolak inhibitörlerini ve antikor-ilaç konjugatlarını içerdiği düşünüldüğünde özellikle önemlidir18,19. Bu gelişen terapötik manzara içinde, CDK4/6 inhibitörü duyarlılığındaki farklılıkları ayırt edebilen biyobelirteçler, potansiyel olarak tedavi stratifikasyonuna yardımcı olabilir. Bulgularımız LINC01871 ile ribosiklib ve palbosiklib duyarlılığı arasında bir ilişkiyi desteklese de, mevcut kanıtlar ilaç duyarlılığının hesaplamalı tahminleri ve in vitro deneylerden elde edilmiştir. Bu nedenle, LINC01871'in hastalarda öngördürücü bir değeri olup olmadığını belirlemek için, CDK4/6 inhibitörü maruziyeti ve klinik sonuçları belgelenmiş prospektif kohortlara ihtiyaç duyulacaktır.
Östrojen reseptörü ve/veya progesteron reseptörü pozitif meme kanserinde CDK4/6 inhibitörlerinin terapötik faydası birçok klinik çalışmada gösterilmiştir4,5,6. Triple-negatif meme kanserindeki potansiyel faydaları da araştırmaların odağı olmuştur20,21. Örneğin, Yang ve ark. CDK4/6 ve CDK7'nin eş zamanlı olarak hedeflenmesinin triple-negatif meme kanseri hücresi proliferasyonunu inhibe ettiğini bulmuştur22. Diğer çalışmalar, CDK4/6 inhibisyonuna verilen yanıtı değiştirebilecek moleküler değişiklikleri tanımlamıştır. GPX4 inhibisyonunun, hem östrojen reseptörü pozitif hem de triple-negatif meme kanserinde palbociclib duyarlılığını artırdığı rapor edilmiştir23, buna karşılık C9orf142, triple-negatif meme kanserinde CDK4/6 inhibitör direnci ile ilişkilendirilmiştir20. Aksine, ACAA1 inhibisyonunun meme kanseri hücrelerinin CDK4/6 inhibitörlerine olan duyarlılığını artırdığı rapor edilmiştir24. CDK4/6 inhibitör yanıtının moleküler belirleyicileri üzerine yapılan mevcut çalışmaların çoğu protein kodlayan genlere odaklanmış, lncRNA'ların katkısı ise daha az karakterize edilmiştir. Bulgularımız, LINC01871'i CDK4/6 inhibitör yanıtı ile ilişkili potansiyel bir non-coding RNA olarak tanımlayarak bu alanı genişletmektedir. Sitotoksisite ve koloni oluşum assayleri, flow sitometrik değerlendirme ve hücre döngüsüyle ilişkili proteinlerin analizi ile birlikte, LINC01871 overexpression'ını tutarlı bir şekilde ribociclib ve palbociclib'e karşı daha yüksek duyarlılıkla ilişkilendirmiştir. Ayrı proliferasyon assayleri ve xenograft modeli, LINC01871 overexpression'ı ile meme kanseri büyümesi arasındaki inhibitör ilişkiyi daha da desteklemiştir.
Bu gözlemlerin temelinde yatabilecek mekanizmaları araştırmak için, yüksek ve düşük LINC01871 grupları arasında farklı şekilde eksprese edilen genlerin ve LINC01871 ile ko-eksprese edilen genlerin fonksiyonel profillerini inceledik. GO ve KEGG analizleri, her iki gen setini de bağışıklıkla ilgili süreçlerle ve NF-κB sinyaliyle ilişkilendirmiştir. Bu bulgu, NF-κB sinyalinin daha önce siklin D ekspresyonunu artırdığı ve böylece hücre döngüsü ilerlemesini kolaylaştırdığı rapor edildiği için hücre döngüsü regülasyonu ile ilişkilidir25,26. Zhou ve ark., NF-κB'nin CDK6 promotörü ile etkileşime girebileceğini ve CDK6 transkripsiyonunu stimüle edebileceğini daha ayrıntılı olarak göstermiştir27. NF-κB ile PI3K/AKT/mTOR yolu arasındaki çapraz etkileşim de tanımlanmıştır28 ve ikinci yol CDK4/6 inhibitör direnci ile ilişkilendirilmektedir11. Birlikte ele alındığında bu gözlemler, LINC01871 bağlamında NF-κB aktivitesinin incelenmesi için bir rasyonel sağlamaktadır. Zenginleştirme sonuçlarıyla uyumlu olarak, LINC01871 aşırı eksprese eden hücreler daha düşük P65 fosforilasyonu sergilemiştir. Buna rağmen, bu veriler doğrudan bir regülatör mekanizmadan ziyade bir ilişki kurmakta olup, LINC01871'in NF-κB sinyalini nasıl etkilediği henüz belirlenmemiştir.
İmmün mikroçevre, CDK4/6 inhibitörü yanıtına katkıda bulunan bir diğer potansiyel faktördür. Örneğin, γδ T hücrelerinin CX3CR1⁺ makrofajlar aracılığıyla gerçekleşen etkilerle direnci kolaylaştırdığı bildirilmiştir29. Luo ve ark., CDK4/6 inhibitörlerine karşı daha geç zaman noktalarında direnç geliştiren hastalardan alınan tümörlerde daha fazla CD8⁺ T hücresi ve NK hücresi infiltrasyonu gözlemlemişlerdir30. Tek hücre analizimiz, LINC01871 ekspresyonunun T hücreleri ve NK hücrelerinde, epitel hücrelerine göre daha belirgin olduğunu göstermiştir. Tamamlayıcı transkriptom tabanlı analizler, yüksek LINC01871 ekspresyonunu daha yüksek tahmin edilen CD8⁺ T hücresi, M1 makrofaj ve NK hücresi infiltrasyonu ile daha düşük tahmin edilen M2 makrofaj ve Treg infiltrasyonu ile ilişkilendirmiştir. CD8⁺ T hücreleri, M1 makrofajlar ve NK hücreleri antitümör immün aktivite ile ilişkilendirilirken, M2 makrofajlar tümör destekleyici fonksiyonlarla ilişkilendirilmiştir31,32,33,34. Toplu olarak sonuçlarımız, yüksek LINC01871 ekspresyonunun daha immün-aktif bir tümör mikroçevresi ile ilişkili olabileceğini düşündürmektedir. Ancak, immün hücre tahminleri doğrudan ölçülmek yerine transkriptomik profillerden çıkarıldığı için bu yorum öncül niteliktedir ve LINC01871'in immün mikroçevrenin şekillenmesinde bir rolü olup olmadığını belirlemek için fonksiyonel çalışmalar gerekecektir.
Bu bulgular yorumlanırken birkaç kısıtlılığın kabul edilmesi gerekir. İlk olarak, LINC01871, ilaç yanıtının CDK4/6 inhibitörleri alan hastalardan elde edilmek yerine bilgisayar ortamında çıkarıldığı bütünleşik bir multi-omik analiz aracılığıyla tanımlanmıştır. Doğrudan in vitro deneyler, LINC01871 aşırı ekspresyonu sonrası palbosiklib ve ribosiklibe karşı daha yüksek duyarlılık göstermiş olsa da, bu sonuçlar hastalar üzerindeki öngörücü değerini kanıtlamamaktadır. Bu nedenle, LINC01871'in öngörücü bir biyobelirteç olarak değerlendirilebilmesi için belgelenmiş CDK4/6 inhibitörü maruziyeti ve klinik yanıt verilerine sahip bağımsız kohortlara ihtiyaç duyulacaktır. İkinci olarak, keşif analizi başlangıçta, klinik olarak heterojen meme kanseri alt tiplerini kapsayan tüm TCGA-BRCA kohortu üzerinden yürütülmüştür. LINC01871 ile öngörülen ilaç duyarlılığı arasındaki ilişki HR-pozitif/HER2-negatif alt grupta da gözlemlenmiştir; ancak klinik olarak tedavi edilen HR-pozitif/HER2-negatif popülasyonlarda doğrulama yapılması gereklidir. Üçüncü olarak, bu çalışmada kullanılan GDSC2 veri setinde karşılık gelen abemasiklib yanıt verileri mevcut olmadığından, ilaç yanıt analizlerimiz palbosiklib ve ribosiklib ile sınırlandırılmıştır. Bu nedenle, gözlemlenen ilişkinin abemasiklibi kapsayıp kapsamadığı bilinmemektedir. Dördüncü olarak, hücre tabanlı ve ksenogreft deneylerde gözlemlenen tümör baskılayıcı etkilere rağmen, LINC01871 ile NF-κB sinyal yolu arasındaki moleküler bağlantı henüz kurulmamıştır. LINC01871 aşırı ekspresyonuna P65 fosforilasyonunda azalma eşlik etmiştir, ancak bu ilişkinin sorumlusu olan mekanizma daha fazla araştırma gerektirmektedir. Benzer şekilde, bağışıklıkla ilgili gözlemler temel olarak transkriptom tabanlı bilgisayar analizlerinden türetilmiştir ve LINC01871'in tümör immün mikroçevresini doğrudan düzenlediğine dair bir kanıttan ziyade korelasyonlar olarak yorumlanmalıdır. Son olarak, CDK4/6 inhibitörü direnci birden fazla biyolojik süreci içerir ve LINC01871'in tedavi yanıtının tüm karmaşıklığını açıklama olasılığı düşüktür. Bu nedenle ilerideki araştırmalar alt tipe özgü kohortları, abemasiklib değerlendirmesini, bağışıklıkla ilgili ilişkilerin deneysel doğrulamasını, LINC01871 ve NF-κB sinyal yolu arasındaki ilişkinin mekanistik çalışmalarını ve LINC01871'in öngörücü bir biyobelirteç olarak faydasının olup olmadığını belirlemek için prospektif klinik değerlendirmeleri kapsamalıdır.
Açıklamalar
Çıkar Çatışması:
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu araştırma, Fujian Eyaleti Doğa Bilimleri Vakfı (Hibe No. 2022J011056) tarafından desteklenmiştir. Yazarlar, bu çalışmada kullanılan halka açık veri setlerini sağladıkları için The Cancer Genome Atlas (TCGA) ve Gene Expression Omnibus'a (GEO) teşekkür ederler.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 25 G şırınga iğneleri | Beyotime | FS802-30pcs | Ağız retraktörü ve isteğe bağlı periodontal ligament ön gevşetme işlemi için kullanılan tek kullanımlık şırınga iğneleri |
| 4% paraformaldehit çözeltisi | Solarbio | P1110 | Numune fiksasyonu için kullanılan 4% paraformaldehit çözeltisi |
| 75% etanol | Ouse Medical Devices Store | N/A | Yüzey dezenfeksiyonu için kullanılan 75% tıbbi sınıf etanol |
| C57BL/6 fareler | Charles River | 213 | 22–29 g ağırlığında, 8 haftalık erkek C57BL/6 fareler |
| Karprofen | Solarbio | C5350 | 5 mg/kg dozunda subkütan olarak uygulanan postoperatif analjezik |
| Pamuk topları | Ouning Medical Devices | N/A | Ağız temizliği ve hemostaz için kullanılan steril pamuk topları |
| CTAn v1.18.4.0+ | SkyScan | N/A | μCT görüntü analizi için kullanılan yazılım |
| DataViewer v1.5.6.2 | SkyScan | N/A | Rekonstrüktif μCT görüntülerini görüntülemek ve dışa aktarmak için kullanılan yazılım |
| Parmak koruyucular | LeSu Office | MEKU-1/2/3B | Ekstraksiyon sırasında başparmak koruması için kullanılan parmak koruyucular |
| Köpük levha | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Operasyon ve fiksasyon platformu olarak kullanılan köpük levha |
| Jel diyet | ReadyDietech | J10001 | Kullanıldığında, 3 gün boyunca kafes tabanında sağlanan postoperatif diyet |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | İstatistiksel analiz ve grafik oluşturma için kullanılan yazılım |
| Kafa lambası | Bazhou Pengen Protective Equipment Factory | N/A | Cerrahi alanı aydınlatmak için kullanılan kafa lambası |
| Isıtma pedi | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Postoperatif iyileşme için yaklaşık 38 °C'ye önceden ısıtılmış ısıtma pedi |
| Hidroksiapatit fantom | QRM | QRM-70127 | CT atenuasyon değerlerini kemik mineral yoğunluğuna dönüştürmek için kullanılan kalibrasyon fantomu |
| Büyütme cihazı | Olympus Corporation | SZX10 | Dişli pens uçlarını ve ekstraksiyon soketini büyütme altında incelemek için kullanılan cihaz |
| Maske | Senlun Medical Devices Specialty Store | N/A | Cerrahi maske |
| Mikro bilgisayarlı tomografi tarayıcısı | Bruker SkyScan | SkyScan 1276 | 80 kV, 500 μA ve 10 μm voksel çözünürlüğünde kullanılan μCT tarayıcısı |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Üç boyutlu rekonstrüksiyon için kullanılan yazılım |
| Pentobarbital sodyum | Sigma-Aldrich | P3761 | %1'lik anestezik çözelti olarak kullanılan pentobarbital sodyum tuzu |
| Fosfat tamponlu salin çözeltisi | Solarbio | P1010 | 0.01 M fosfat tamponlu salin tozu, pH 7.2–7.4 |
| Povidon-iyodür antiseptik çözeltisi | Belkon Pharmacy Flagship Store | N/A | Abdominal dezenfeksiyon için kullanılan povidon-iyodür çözeltisi |
| Lastikler | Foshan Puli Rubber Products Factory | N/A | Ağız retraktörünü monte etmek için kullanılan lastikler |
| Salin çözeltisi | Thermo Fisher | BR0053G | Ağız temizliği için çözelti hazırlamakta kullanılan salin tabletleri |
| Standart yem diyeti | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Rutin barındırma için kullanılan ve postoperatif besleme için yumuşatılan standart yem |
| Buharlı sterilizatör | Kurumsal tesis | N/A | Dişli pensleri ve salin çözeltisini sterilize etmek için kullanılan ekipman |
| Steril pamuklu çubuklar | Kangbailai Medical Devices Store | N/A | Tek kullanımlık steril pamuklu çubuklar |
| Steril eldivenler | Senlun Medical Devices Specialty Store | N/A | Steril lateks eldivenler |
| Steril dokunmamış kumaş | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Operasyon yüzeyini ve ısıtma pedini örtmek için kullanılan steril dokunmamış kumaş |
| Steril cerrahi bone | Senlun Medical Devices Specialty Store | N/A | Steril cerrahi bone |
| Cerrahi scrublar | Senlun Medical Devices Specialty Store | N/A | İşlem sırasında giyilen temiz cerrahi scrublar |
| Bant | Thermo Fisher | 15947 | Fare uzuvlarını sabitlemek için kullanılan yapışkan bant |
| Dişli oftalmik pens | Beyotime | FS229 | Dental pens olarak kullanılan dişli oftalmik forseps |
| Veteriner oftalmik pomad | Dechra Veterinary Products | 143-16 | Kornea kurumasını önlemek için anesteziden sonra uygulanan oftalmik pomad |
Kaynaklar
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.