N6-metiladenosin (m6A) ile ilişkili genler, metilasyon veya kopya sayısı değişiklikleriyle sınırlı korelasyona sahip olup, düzensiz bir şekilde düzenlenmiştir. YTHDF3 dahil altı gen öngörücüydü. YTHDF3, RNA metabolizması, DNA onarımı, telomer stabilitesi ve bağışıklık sızıntısında rol oynayan bağımsız bir prognostik faktördür. Düzenlemenin artırılması klinik olarak doğrulandı ve daha fazla araştırma gerektirdi.
Araştırma makalesi
M6A Regülatörlerinin Kapsamlı Analizi, YTHDF3'ü Meme Kanseri için Umut Vadeden Prognostik Bir Biyobelirteç olarak Tanımlıyor
* These authors contributed equally
Bu makalede
Özet
Özet
N6-metiladenosin (m6A) ile ilişkili genlerin ifade ortamı ve prognostik değeri meme kanserinde büyük ölçüde karakterize edilmemiştir. Burada, ifade profilleri ve klinik önemlerinin bütünleştirici analizini yaptık. Multi-omik veri setleri ve deneysel doğrulama kullanarak, meme kanserinde m6A ile ilgili genlerin sistematik bir incelemesini gerçekleştirdik. Bu genler meme kanserinde belirgin diferansiyel ifade gösterse de, promotor metilasyonu ve kopya sayısı değişiklikleri gibi moleküler özelliklerle korelasyonu sınırlıydı. Tek değişkenli sağlıktan analiz , RBM15B, METTL16, HNRNPC, YTHDF1, YTHDF3 ve IGF2BP1'nin anormal ekspresyonun hasta prognozuyla anlamlı ilişkili olduğunu gösterdi. Çok değişkenli Cox regresyonu, YTHDF3 ekspresyonunun bağımsız bir prognostik faktör olarak yükseldiğini ayrıca ortaya koymuştur. Fonksiyonel ağ analizi, YTHDF3'ün yalnızca RNA işleme ve metabolizmada değil, aynı zamanda DNA onarımı, pri-miRNA işleme, telomer stabilitesi ve bağışıklık infiltrasyonunda da potansiyel olarak rol aldığını göstermiştir. Ayrıca, klinik meme kanseri örneklerinde YTHDF3 mRNA'nın yukarı regulasyonu doğrulandı. Toplamla, m6A ile ilişkili genler meme kanserinde düzensiz ve hasta sonuçlarıyla korelasyonludur; bu da biyobelirteç potansiyellerini vurgular; YTHDF3 ise derinlemesine inceleme gerektirir.
Giriş
Meme kanseri, son derece heterojen bir kanserdir ve dünya genelinde en sık teşhis edilen kanser haline gelmiştir; kadınlar arasında kanserle ilişkili ölümlerin önde gelen nedenlerinden birini temsil etmektedir; 2020'de tahmini 2,3 milyon yeni vaka ve 680.000'den fazla ölüm 1,2. Terapötik gelişmelere rağmen, tüm hastalar için kesin bir tedavi bulmak hâlâ belirsizdir; bu da erken tanı ve prognoz için moleküler biyobelirteçlerin belirlenmesi gerektiğini vurgulamaktadır.
Sapkın epigenetik modifikasyonlarkanserin ayırt edici özelliğidir 3. Çeşitli RNA modifikasyonları arasında, N6-metiladenozin (m6A), meme kanserindeki rolü nedeniyle giderek daha fazla tanınan bir epitranskriptomikişarettir 4. m6A, ağırlıklı olarak memeli mRNA'larının 3'-UTR'lerinde biriktirilen geri dönüşümlü bir modifikasyondur ve "yazarlar" (metiltransferazlar), "silgiciler" (demetilazlar) ve "okuyucular" (bağlayıcı proteinler) tarafından yönetilir. Ortaya çıkan kanıtlar, m6A ile ilişkili genlerin tümör gelişimi ve ilerlemesiyle ilgiliolduğunu göstermektedir 6. Ancak, meme kanserinde m6A düzenleyici faktörlerin durumu hâlâ belirsiz ve kapsamlı genetik ile epigenetik analizler eksik durumda.
Bu çalışmada, kamu omik veri tabanları ve deneysel doğrulama kullanarak meme kanserinde farklı şekilde ifade edilen m6A ile ilişkili genleri tespit ettik. Klinik prognostik değerlerini daha fazla değerlendirdik ve hayatta kalma analizi ile düzenleyici ağ tahmini yoluyla altta yatan moleküler mekanizmaları inceledik.
Protokol
Gen ifadesi ve hayatta kalma verileri
Kanser Genomu Atlası (TCGA) kohort verileri, 1.034 meme kanseri tümörü örneği ve 104 normal bitişik dokudan (NAT) oluşuyordu; bu veriler İnsan Protein Atlas'ından alındı ve 947 hasta için klinik bilgileralındı 7. Bu veriler, m6A ile ilişkili genlerin mRNA ekspresyon profillerini ve bunların prognozla ilişkisini analiz etmek için kullanıldı. Ayrıca, birden fazla meme kanseri veri setini toplayan Kaplan-Meier Plotter (KMplotter) çevrimiçi aracını kullanarak YTHDF3 ekspresyonu ile sağkalım 8 arasındaki ilişkiyi doğruladık. İfade kalıplarını daha da doğrulamak için, Genotip-Doku İfadesi (GTEx) projesinden Breast Cancer Gene-Expression Miner v4.7 9,10 üzerinden alınan 92 sağlıklı meme dokusundan elde edilen verileri de dahil ettik. YTHDF3'ün farklı meme kanseri alt tipleri ve normal dokulardaki protein ve mRNA seviyeleri, Klinik Proteomik Tümör Analiz Konsorsiyumu (CPTAC) ve TCGAveri seti 11'e dayanarak UALCAN tarafından analiz edilmiştir.
Genetik ve epigenetik değerlendirme
Genetik değişiklikler, invaziv meme kanseri veri setine (TCGA, Provisional, 1.108 vaka) odaklanarak cBioPortal kullanılarak incelendi. Promoter metilasyon verileri, 839 meme kanseri örneği ve kısmen eşleştirilmiş bitişik normal kontrol kontrol13 içeren MethHC'den alındı.
Gen düzenleme ağı ve bağışıklık sızma analizi
Protein-protein etkileşimleri STRING ile incelendi (güven puanı 0.4'e ayarlandı)14. Gen açıklaması ve yol zenginleştirmesi Metascape kullanılarak gerçekleştirildi (p < 0.01, minimum sayı 3, zenginleştirme faktörü > 1.5)15. Meme kanserinde YTHDF3 ekspresyonunun, B hücreleri, CD8+ T hücreleri, CD4+ T hücreleri, makrofajlar, nötrofiller ve dendritik hücreler (DC) dahil olmak üzere bağışıklık infiltrasyonu ile ilişkisi, Tümör İmmün Tahmin Kaynağı (TIMER) kullanılarak analiz edildi. Tümör saflığıyla normalleştirilmiş gen ekspresyon seviyesi en solpanel 16'da gösterildi.
Nicel ters transkripsiyon polimeraz zincir reaksiyonu (qRT-PCR)
Tüm katılımcılar yazılı bilgilendirilmiş onay sundu ve çalışma, Southwest Medical University Bağlı Hastanesi etik komitesi tarafından onaylandı (onay no. KY2022124) ve Helsinki Bildirgesi'nin ilkelerine uygun olarak yürütülmüştür. Toplam RNA ekstraksiyonu için donmuş meme tümörü örnekleri ve eşleşen bitişik tümör olmayan örnekler kullanıldı. Çıkarılan RNA'nın konsantrasyonu ve saflığı bir spektrofotometre kullanılarak değerlendirildi ve yalnızca 1.8–2.0 oranlarındaA 260/A 280 olan örnekler dahil edildi. RNA bütünlüğü %1,5 agaroz jel elektroforezi ile doğrulandı. Üreticinin talimatlarına uygun olarak 20 μL reaksiyonda toplam RNA'nın 1 μg'sinden birinci iplik cDNA üretildi. Nicel gerçek zamanlı PCR yapıldı; her 20 μL reaksiyonu 10 μL 2× SYBR Green master karışımı, 0,4 μL ileri ve geri primer (her biri 10 μM), 2 μL seyreltilmiş cDNA (1:10) ve 7,2 μL nukleazsız su içeriyordu. qRT-PCR daha önce tarif edildiği gibiyapıldı 17. Primerler: β-aktin-F, GAAGATCAAGATCATTGCTCCT; β-aktin-R, TACTCCTGCTTGCTGATCCA; YTHDF3-F, AAAAGACGGGCCTCTTCCTC; YTHDF3-R, TTGGCCGAGTGATTGTTCCA. Termosikl koşulları 3 dakika 95 °C, ardından 40 döngü 95 °C 10 saniye, 55 °C 20 saniye ve 72 °C (72 °C'de floresans alımı) idi. Astarın özelliğini doğrulamak için erime eğrisi analizi (95 °C ile 60 °C, 0,5 °C/s artış) gerçekleştirildi. Göreli ifade 2−ΔΔCt yöntemiyle hesaplandı.
İstatistiksel yöntem
İki grup karşılaştırmaları için eşleşmemiş t-testler kullanıldı. Prognostik faktörleri değerlendirmek için log-rank testi ve çok değişkenli Cox regresyonuyla Kaplan-Meier hayatta kalma analizi kullanıldı. qRT-PCR doğrulaması için, eşleştirilmiş örnekler ΔCt değerleri üzerinde iki kuyruklu eşleştirilmiş Öğrenci t-testi kullanılarak karşılaştırıldı. Şekil 1 için, Dunnett-Tukey-Kramer testi kullanılarak çift karşılaştırmalar yapılmıştır. P < 0.05 istatistiksel olarak anlamlı olarak kabul edildi.
Sonuçlar
Meme kanserinde m6A ile ilişkili genlerin diferansiyel mRNA ekspresyonu
TCGA ve GTEx verilerinin (1.034 tümör, 104 NAT, 92 sağlıklı doku) analizi, çoğu m6A ile ilişkili genin farklı şekilde eksprese edildiğini ortaya koydu (Şekil 1). Sağlıklı meme dokularına göre 10 gen önemli ölçüde yükseltildi: KIAA1429, RBM15, RBM15B, HNRNPC, YTHDF1, YTHDF2, YTHDF3, IGF2BP1, IGF2BP3 ve ALKBH5 (hepsi P < 0.0001, RBM15 P < 0.001 hariç). Sekiz gen aşağı regülasyonla düzenlendi: WTAP, METTL3, METTL14, HNRNPA2B1, YTHDC1, YTHDC2, IGF2BP2 ve FTO (P 0.05 < 0.0001 < P arasında). METTL16 ve eIF3A arasında belirgin bir fark bulunmadı. Tümörler ile NAT'lar karşılaştırıldığında, HNRNPA2B1 yukarı regule edilirken, YTHDF3, eIF3A ve ALKBH5 aşağı regulasyonluydu; RBM15, RBM15B ve YTHDF2 arasında hiçbir fark bulunmadı (Şekil 1). NAT'ların kontrol olarak kullanımı sorgulandı, bu da sağlıklı doku karşılaştırmalarındaki tutarsızlıkları açıklayabilir18,19. İlginç bir şekilde, CPTAC veri setinde tüm meme kanseri alt tiplerinde normal dokulara kıyasla daha yüksek YTHDF3 protein bolluğuna doğru bir eğilim gözlemlenmiştir (P < 0.0001). Ayrıca, meme kanserinin luminal alt tiplerinde normal dokulara kıyasla (P = 0.004, < 0.01) (Ek Şekil S1) yalnızca meme kanserinin luminal alt tiplerinde YTHDF3'ün anlamlı şekilde daha yüksek mRNA ekspresyonu gözlemlenmiştir. Genel olarak, meme kanserinde m6A ile ilişkili genlerin belirgin şekilde düzensizliği belirgindir.
Meme kanserinde m6A ile ilişkili genlerin promotor metilasyonu ve gen amplifikasyonu
DNA metilasyonu, gen transkripsiyonunun epigenetik düzenlemesinde önemli rol oynar ve promotor hipermetilasyonu mRNAifadesini 20 inhibe eder. MethHC analizi, tümörlerde IGF2BP1, IGF2BP2 ve IGF2BP3 için kontrol ile kontrol arasında (P < 0.005) yalnızca promotor metilasyon farklılıklarını göstermiştir. IGF2BP2 mRNA'nın aşağı regulasyonu kısmen hipermetilasyonuna bağlanabilir. cBioPortal analizi, WTAP ve ALKBH5'in mRNA aşağı regulasyonu sergilediğini, KIAA1429 (VIRMA), YTHDF1, YTHDF3 ve IGF2BP1'in ise yukarı regülasyonlarıyla ilişkili gen amplifikasyonu gösterdiğini gösterdi (Ek Şekil S2, Ek Şekil S3 ve Ek Şekil S4). Bu bulgular, m6A ile ilişkili genlerin mRNA seviyelerinin ağırlıklı olarak promotor metilasyonu veya gen amplifikasyonu tarafından yönlendirilmediğini göstermektedir.
Meme kanserinde m6A ile ilişkili genlerin sağ kalma analizi
947 hastanın sağ kalma analizi, düşük RBM15B ekspresyonu ile yüksek METTL16, HNRNPC, YTHDF1, YTHDF3 ve IGF2BP1 ekspresyonunun azalmış genel sağlıkla anlamlı ilişkili olduğunu ortaya koydu (Şekil 2 ve Şekil 3). Yaş, evre ve ırka göre ayarlanan çok değişkenli Cox regresyonu, YTHDF3 regülasyonunun kötü genel hayatta kalmanın bağımsız bir öngörücüsü olduğunu doğruladı (HR: 1.024, %95 GA: 1.003–1.046, P = 0.024) (Tablo 1). Dış doğrulama için, KMplotter çevrimiçi aracı kullanılarak yapılan analizler, yüksek YTHDF3 ifadesinin kötü hastalık prognozunu öngördüğünü göstermiştir (Ek Şekil S5). Diğer genler bağımsız olarak anlamlı değildi (Ek Tablo S1).
M6A ile ilişkili gen YTHDF3'ün potansiyel moleküler ağı ve bağışıklık sızması
YTHDF3'ün STRING analizi (50'ye kadar sınırlı etkileşimli) 224 kenarlı ve önemli zenginleşmeye sahip bir ağ (P < 1e-16) tespit etti. YTHDF3, METTL3, ALKBH5, WTAP, METTL14 ve diğerleriyle yakından ilişkilidir (Şekil 4A). Metascape zenginleştirme analizi 13 anlamlı fonksiyonel küme tespit etti (P < 0.01, minimum sayı 3, zenginleştirme faktörü > 1.5; Şekil 4B). En üst sırada yer alan küme mRNA metabolik düzenlemesi (GO1903311, 22 gen) oldu. Kanserle ilgili ek kümeler arasında DNA dealkilasyon onarımı (GO0006307), pri-miRNA işleme (GO0031053) ve telomeraz stabilizasyonu (GO1904356) gibi bölümler yer aldı. Küme isimleri, ilişkili genler ve zenginleştirme istatistiklerinin tam listesi Ek Tablo S2'de sunulmaktadır. Ayrıca, sonuçlar YTHDF3 ifadesi ile bağışıklık hücreleri arasında ( hepsi P < 0.01) anlamlı pozitif korelasyonlar ortaya koydu (Ek Şekil S6). Dolayısıyla, YTHDF3 yukarı regülasyonu mRNA metabolizması, DNA onarımı, telomer bakımı ve bağışıklık infiltrasyonu ile ilişkili olabilir.
Meme kanserinde YTHDF3'ün mRNA ekspresyonunu artırması
Meme kanseri dokuları ve eşleşen bitişik normal meme dokuları, Temmuz 2023 ile Ekim 2023 arasında Southwest Medical University Bağlı Hastanesi Meme Cerrahisi Bölümü'nde ameliyat geçiren 20 hastadan toplandı. Bu eşleştirilmiş örneklerin qRT-PCR analizi, tümör dokularında bitişik normal dokulara göre anlamlı olarak daha yüksek YTHDF3 mRNA ekspresyonunu göstermiştir (P = 0.001) (Ek Şekil S7 ve Ek Tablo S3).
Veri Erişilebilirliği
Bu çalışmada analiz edilen tüm veri setleri aşağıdaki açık erişim depolarından kamuya açık olarak erişilebilir durumdadır. Gen ekspresyonu ve klinik veriler: Meme kanseri RNA-seq ekspresyonu verileri ve ilgili klinik bilgiler, İnsan Protein Atlası (https://www.proteinatlas.org/) aracılığıyla Kanser Genomu Atlası (TCGA-BRCA)'dan alınmıştır. Ek normal meme dokusu ekspresyonu verileri, Genotip-Doku İfadesi (GTEx) projesinden (dbGaP erişim phs000424.v8.p2) Meme Kanseri Gen-İpresyonu Madencisi v4.7 (http://bcgenex.ico.unicancer.fr/) aracılığıyla alındı. Hayatta kalma doğrulaması Kaplan-Meier Planlayıcısı (https://kmplot.com) kullanılarak gerçekleştirildi. Protein ve mRNA ekspresyon verileri UALCAN (http://ualcan.path.uab.edu/) aracılığıyla elde edildi. Genetik değişiklikler: İnvaziv meme kanseri veri seti (TCGA, Provisional, 1108 örnek) için somatik mutasyon ve kopya sayı değişikliği verilerine cBioPortal (https://www.cbioportal.org/) üzerinden erişildi. DNA promotor metilasyonu: Metilasyon verileri, 839 meme kanseri örneği ve kısmen eşleştirilmiş normal kontrol kontrol grupları içeren MethHC (http://methhc.mbc.nctu.edu.tw/)'den alındı. Protein-protein etkileşimi ve yol zenginleştirmesi: Fonksiyonel ağ analizi STRING v12.0 (https://string-db.org/, güven puanı 0.4) ve Metascape (http://metascape.org/) kullanılarak gerçekleştirildi. İmmün infiltrasyon analizi TIMER (https://cistrome.shinyapps.io/timer/) kullanılarak gerçekleştirildi. Figürlerin temelinde bulunan ek veriler, makul talep üzerine ilgili yazardan temin edilebilir.
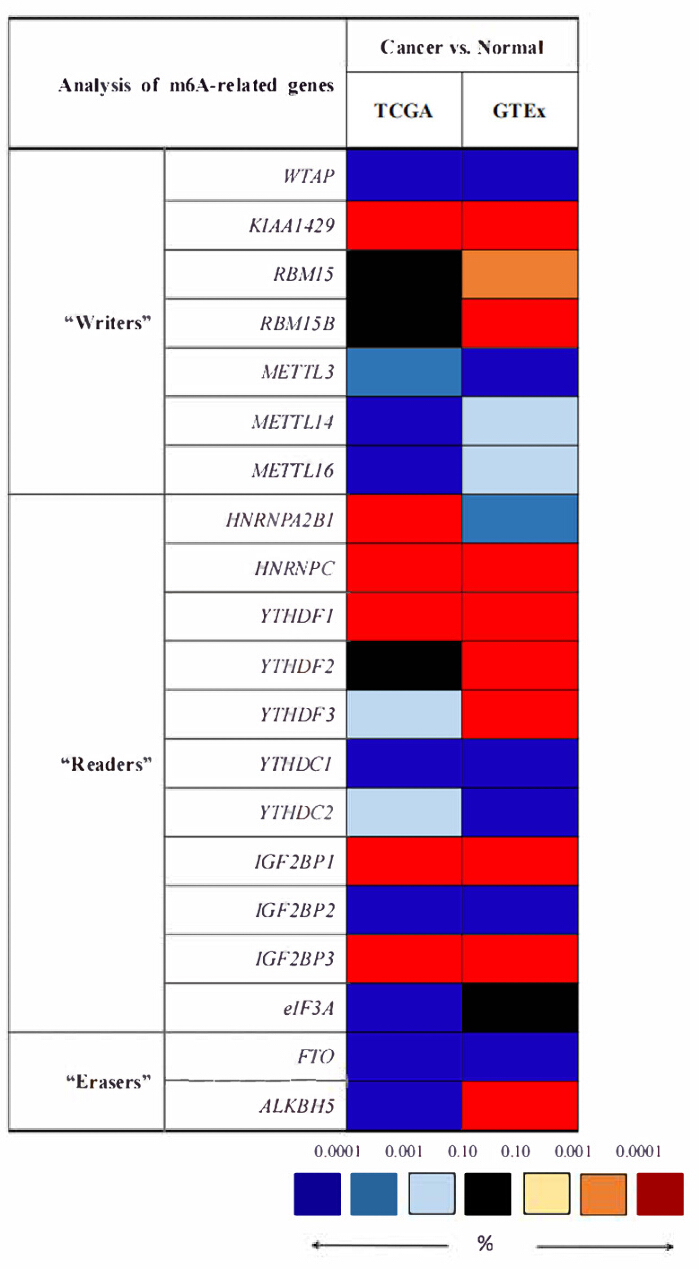
Şekil 1. Meme kanserinde N6-metiladenozin (m6A) ile ilişkili genlerin diferansiyel mRNA ekspresyonu. Kırmızı ise yukarı düzenlemeyi gösterir; Mavi, aşağı regülasyon, siyah ifade farkı yok, beyaz ise gen ifade verisi olmadığını gösterir. Renk kodlaması istatistiksel anlamlılığı yansıtır. Çift karşılaştırmalar için Dunnett-Tukey-Kramer testi kullanıldı. Not: "Normal" TCGA'da tümörler ile NAT'lar arasındaki karşılaştırmanı ve GTEx'te tümörler ile sağlıklı dokular arasındaki karşılaştırmayı içerir. Kısaltmalar: NATs = normal bitişik dokular; TCGA = Kanser Genomu Atlası; GTEx = Genotip-doku İfadesi. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
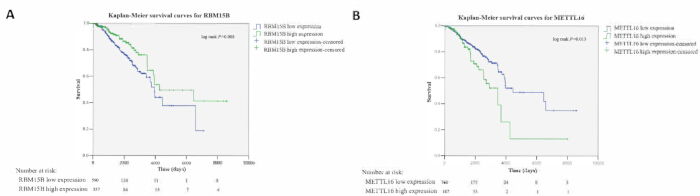
Şekil 2. M6A "yazarları" RBM15B ve METTL16'nin anormal mRNA ekspresyonu ile meme kanseri hastalarında genel hayatta kalma arasındaki ilişki. (A) RBM15B'nin düşük ekspresyonu daha kısa genel sağlıkla ilişkilendirildi (log-rank testi, P = 0.008, <0.01); (B) METTL16'ın yüksek ifadesi kötü prognozla ilişkilendirildi (log-rank testi, P = 0.013, <0.05). Hastalar, optimal kesme değeri kullanılarak yüksek ve düşük ekspresyonlu gruplara ayrıldı. n = 947 (TCGA-BRCA kohortu). Mavi ve yeşil eğriler sırasıyla düşük ve yüksek ifadeli grupları temsil eder. mRNA ifadesinin birimi, Milyon haritalanmış okuma başına transkript kilobazı başına parça idi. Kısaltma: TCGA-BRCA = Kanser Genomu Atlası Meme İnvaziv Karsinom; m6A = N6-metiladenosin. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
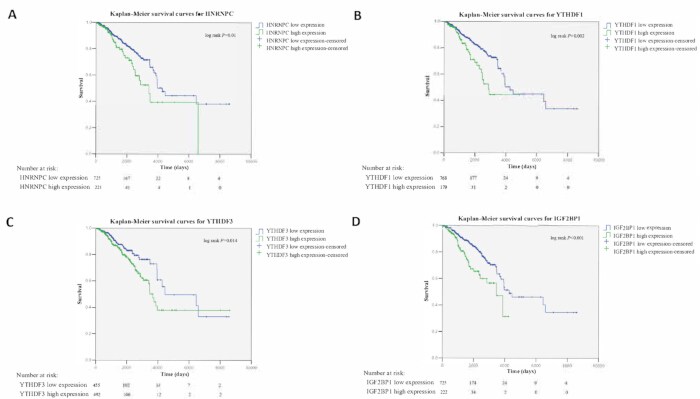
Şekil 3. M6A " okuyucuları" HNRNPC, YTHDF1, YTHDF3 ve IGF2BP1 anormal mRNA ifadesi ile meme kanseri hastalarında genel sağkalma arasındaki korelasyon. (A) Yüksek HNRNPC mRNA ekspresyonu, genel hayatta kalma oranının azalmasıyla ilişkilendirildi (log-rank testi, P = 0.01, <0.05). (B-D) YTHDF1, YTHDF3 ve IGF2BP1'in yüksek ekspresyonu, daha kötü prognozla anlamlı ilişkilendirildi (log-rank testi, P = 0.002, P = 0.014 ve P < 0.001). Hastalar, optimal kesme değeri kullanılarak yüksek ve düşük ekspresyonlu gruplara ayrıldı. n = 947 (TCGA-BRCA kohortu). Mavi ve yeşil eğriler sırasıyla düşük ve yüksek ifadeli grupları temsil eder. Gen mRNA ekspresyonunun birimi, Milyon haritalanmış okuma başına transkript kilobazına Fragments Per Kilobase idi. Kısaltmalar: TCGA-BRCA = Kanser Genomu Atlası Meme İnvaziv Karsinom; m6A = N6-metiladenosin. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
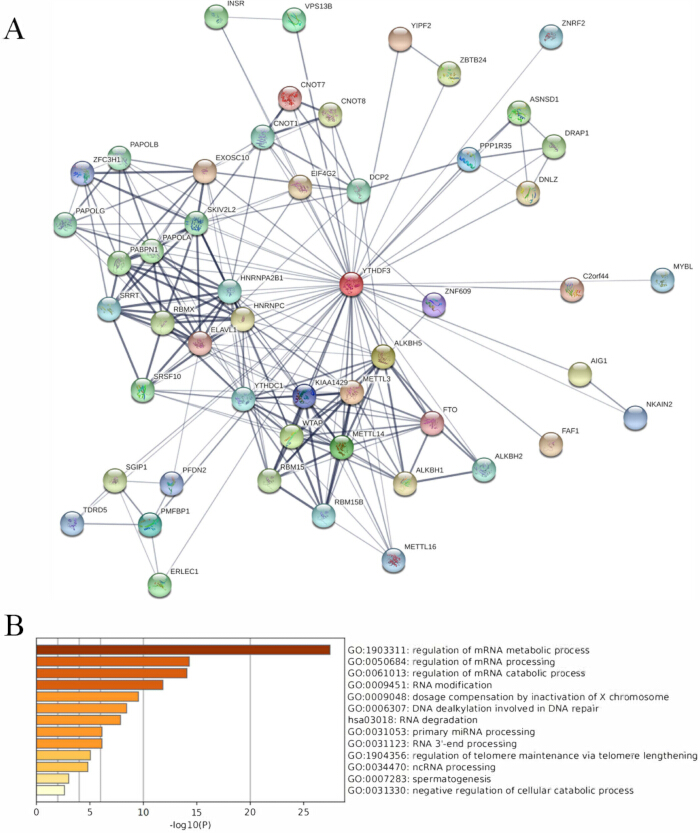
Şekil 4. YTHDF3'ün potansiyel moleküler düzenleyici ağı. (A) YTHDF3'ün yem olduğu STRING veritabanı sorgulamasıyla oluşturulan protein etkileşim ağı (güven puanı ≥ 0.4, maksimum etkileşim aktör = 50). Kenar genişlikleri, destekleyici kanıtların gücünü gösterir. (B) Metascape analizi 13 önemli fonksiyonel küme (P < 0.01, minimum sayı = 3, zenginleştirme faktörü > 1.5) tespit etti. Ontoloji kaynakları arasında Kyoto Genler ve Genomlar Ansiklopedisi ve Gen Ontolojisi Biyolojik Süreçleri yer almaktadır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
| Parametreler | İK | %95 CI | p-değeri |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| Yaş | 1.036 | 1.023-1.050 | <0.001 |
| Yarış | 1.275 | 0.892-1.821 | 0.182 |
| Sahne | 2.263 | 1.796-2.851 | <0.001 |
Tablo 1: M6A ile ilişkili gen YTHDF3'ün çok değişkenli Cox sağ kalma regresyon analiz sonuçları. Kısaltmalar: HR = tehlike oranı; %95 GA = güven aralığı.
Ek Şekil S1. CPTAC ve TCGA veri setlerinden alınan farklı meme kanseri alt tipleri ve normal dokularda YTHDF3'ün protein ve mRNA seviyeleri. YTHDF3'ün protein ekspresyonu: (A) birincil tümörlerde ve normal dokularda ve (B) meme invaziv karsinom alt tiplerinde. Z-değerleri, ilgili kanser tipi için örnekler arasında ortalama değerden standart sapma sayısını gösterir. CPTAC log2 spektral sayım oranı değerleri önce her örnek profilinde, ardından örnekler arasında normalleştirildi. (C) Meme invaziv karsinomunun farklı alt tiplerinde YTHDF3'ün mRNA ekspresyonu (RNA-dizi, Milyon haritalanmış okuma başına transkript kilobazına Göre Fragments). Kısaltmalar: CPTAC = Klinik Proteomik Tümör Analiz Konsorsiyumu; TCGA = Kanser Genom Atlası. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil S2. MethHC veritabanından alınan m6A ile ilgili genlerin promotor metilasyon durumu. (A) Meme kanseri ve normal kontrollerde m6A "yazarları"nın promotor metilasyonu. (B) Meme kanseri ve normal kontrollerde m6A "silgilerinin" promotor metilasyonu. (C) Meme kanseri ve normal kontrol bölgelerinde m6A "okuyucuların" promotor metilasyonu. Kırmızı, meme kanseri; Yeşil, normal kontroller. *P < 0.05, **P < 0.005. Kısaltma: m6A = N6-metiladenozin. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil S3. cBioPortal tarafından m6A "yazarları" ve "silgicileri" için analiz edilen gen mutasyonu ve kopya numarası değişiklikleri (TCGA, Provisional, n = 1.108). (A) m6A "yazarları"ndaki değişiklikler. (B) m6A "silgi"lerindeki değişiklikler. Çubuk grafikler, her değişim türünün sıklığını gösterir: yanlış algı mutasyonları, güçlendirmeler, derin silinmeler ve çoklu değişiklikler. Sadece %1 değişim sıklığına sahip genler ≥ gösterilmiştir. Gen başına toplam değişim sıklığı sağda gösterilmiştir. Kısaltmalar: TCGA = Kanser Genomu Atlası; m6A = N6-metiladenosin. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil S4. cBioPortal tarafından m6A "okuyucuları" için gen mutasyonu ve kopya numarası değişiklikleri analiz edildi (TCGA, Provisional, n = 1.108). Çubuk grafikler, her değişim türünün sıklığını gösterir: yanlış algı mutasyonları, güçlendirmeler, derin silinmeler ve çoklu değişiklikler. Sadece %1 değişim sıklığına sahip genler ≥ gösterilmiştir. Gen başına toplam değişim sıklığı sağda gösterilmiştir. Kısaltmalar: TCGA = Kanser Genomu Atlası; m6A = N6-metiladenosin. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil S5. KMplotter'da YTHDF3'ün meme kanseri hastalarının sağ kalma süresiyle korelasyonu. (A) Yüksek YTHDF3 mRNA ekspresyonu, genel hayatta kalma oranının azalmasıyla ilişkilendirildi (P = 0.011, <0.05). (B-D) YTHDF3'ün yüksek ekspresyonu, daha zayıf neksetmesiz sağkalma, uzak metastaz olmayan sağ kalma ve ilerleme sonrası sağlıkla anlamlı ilişkilendirildi (sırasıyla P = 1.9e-09, P = 0.06 ve P = 0.029). Tüm P değerleri log-rank testi ile hesaplandı. Risk altındaki hasta sayısı her grafiğin altında gösterilmiştir. Optimal kesme noktası, aracın otomatik en iyi kesim özelliğiyle belirlendi. Kısaltma: KMplotter = Kaplan-Meier Plotter. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil S6. Meme kanserinde YTHDF3 ekspresyonunun bağışıklık sızması ile korelasyonu. YTHDF3 ekspresyonu TIMER veri setindeki B hücreleri, CD4+ T hücreleri, CD8+ T hücreleri, makrofajlar, nötrofiller ve DC'lerin infiltrasyon seviyeleriyle pozitif korelasyon göstermiştir. Tümör saflığı, kısmi Spearman korelasyon analizinde kovaryat olarak kullanılmıştır. Kısaltmalar: DCs = dendritik hücreler; ZAMANLAYıcı = Tümör Bağışıklık Tahmini Kaynağı. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil S7. 20 eşleşmiş meme kanseri dokusu ve bitişik normal dokularda YTHDF3 mRNA ifadesinin nicel ters transkripsiyon polimeraz zincir reaksiyonu doğrulanması. YTHDF3 mRNA seviyeleri β-aktine normalize edildi. Veriler 2⁻ΔΔCt değerleri olarak sunulur. İstatistiksel karşılaştırma, ΔCt değerleri (P = 0.001) üzerinde iki kuyruklu çiftli Öğrenci t-testi kullanılarak gerçekleştirildi. Kısaltmalar: NC = bitişik normal meme dokuları; BrCa = meme kanseri dokuları. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S1. M6A ile ilişkili genlerde çok değişkenli hayatta kalma analizinin özet sonuçları. Kısaltmalar: HR = tehlike oranı; %95 GA = güven aralığı. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S2. Metascape temelli 13 YTHDF3 ile ilişkili genin açıklama ve zenginleştirme sonuçları.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S3. 20 eşleştirilmiş meme kanseri örneğinin klinik bilgileri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Terapötik iyileşmelere rağmen, meme kanseri için erken teşhis ve kişiselleştirilmiş tedavi hâlâ bir zorluk olarak görülmekte olup, yeni moleküler hedeflerin keşfedilmesinigerektirmektedir 21. Bu çalışma, meme kanserinde m6A ile ilişkili genleri karakterize etmek için çoklu omik verileri entegre etti. Sonuçlarımız, bu genlerin yaygın bir düzensizliğini, büyük ölçüde promotorör metilasyonu veya gen amplifikasyonundan bağımsız olarak göstermekte ve özellikle YTHDF3 gibi birkaç genin anormal ekspresyonunu kötü prognozla ilişkilendirmektedir. Klinik örneklerde YTHDF3 yukarı regulasyonunu ayrıca doğruladık ve kanserle ilgili yollardaki rolünü öngördük.
m6A metilasyonu, WTAP, KIAA1429, RBM15, METTL3 ve METTL1422 dahil olmak üzere bir "yazar" kompleksi tarafından kurulur. WTAP çeşitli malignitelerde onkojenikolsa da 23,24,25, meme kanserinde aşağı regulasyonu bağlama bağlı fonksiyonları ima eder. KIAA1429 artırılması, meme kanserinde CDK1'in düzenlenmesinde bildirilen rolüyletutarlıdır 25. Hematopoezi vesarkomları etkilediği bilinen RBM15 26,27 yukarı regülasyonlu, RBM15B ise daha iyi hayatta kalma ile ilişkilendirildi ve bu da BAP128 ile pozitif korelasyonuyla örtüştü. METTL3'ün aşağı regulasyonu, let-7g'nin inhibisyonuna dair raporlara rağmen, diğerleri tarafındangözlemlenmiştir 29,30. METTL14 aşağı regulasyon, m6Amodifikasyonu 31 aracılığıyla tümör baskılayıcı rolüyle tutarlıdır. METTL16 ifadesi tartışmalı olmaya devam etmekte ve daha fazla çalışma gerektirmektedir29,32.
"Siliciler" konusunda, FTO bizim kohortta aşağı regülasyonlu, bazı TCGA tabanlıçalışmalara benzer şekilde 29 yapıldı, ancak farklı raporlar BNIP333 üzerinden ilerlemeyi teşvik ettiğini öne sürmektedir. ALKBH5, kontrol grubuna bağlı olarak değişken bir ekspresyon göstermiş ve hipoksi altında meme kanseri kök kalmasını korumada roloynamıştır 34,35.
YTH alan içeren "okuyucular" m6A'yı HNRNPC ve HNRNPA2B136 ile birlikte tanır. HNRNPA2B1, STAT3/ERK1/2 sinyal 37,38'deki rolüne uygun olarak yükseltildi. HNRNPC yukarı regülasyonu, dsRNA kaynaklı interferon yanıtlarını düzenlemedekiişleviyle tutarlıdır 39.
YTHDF1 ve YTHDF2, çeşitli kanserlerde çift roller gösterir40,41. Biriken kanıtlar YTHDF3'ün onkojenik süreçlerde rol oynadığını gösteriyor: EGFR/STAT342 yoluyla hepatosellüler karsinom, EGFR/ATK/ERK/p2143 yoluyla glioblastoma ve metabolik yeniden programlama yoluyla rahim ağızı kanseri metastazı44. Çalışmamız, meme kanserinde YTHDF1, YTHDF2 ve YTHDF3'ün sağlıklı dokulara karşı yukarı regülasyonunu ortaya koydu ve YTHDF3 yukarı regülasyonu deneysel olarak daha da doğrulandı. Bu, meme kanserinde YTHDF3'ün daha fazla araştırılmasını destekler. YTHDC1 ve YTHDC2 aşağı regülasyonlu olsa da, diğer çalışmalar endometrium ve kolon kanserinde prometastatik rollerinibildirmektedir 45,46.
IGF2BP proteinleri aynı zamanda m6Aokuyucusu olarak da görev yapar 47. IGF2BP1 yukarı regülasyon, klonojenik büyümeyi desteklemedeki bilinenrolüyle örtüşmektedir 48. IGF2BP2, muhtemelen promotor metilasyonu nedeniyle aşağı düzenlendi; bu da göç rolü raporlarıyla karşılaştırıldığındafarklıdır. IGF2BP3 upreguasyon, TRIM2550 yoluyla proliferasyonun teşvik edilmesi ve üçlü negatif meme kanserinde IGF2BP2 ile işbirlikçi metastaz iletutarlıdır 51. eIF3A, burada aşağı regulasyonla düzenlenmiş olsa da, terapötik bir hedefolarak önerilmiştir 52,53. Kopya sayısı artışlarının YTHDF1 ile korelasyon olduğu bildirilmiştir ve diğer kanserlerde IGF2BP1 ekspresyonu54. Bu bulgular, m6A düzensizliğinin meme kanserinde yaygın olduğunu pekiştirmektedir.
Önemli olarak, YTHDF3'ü bağımsız bir prognostik faktör olarak belirledik ve sonçalışmaları doğruladık 55,56,57,58,59. FTO ve IGF2BP3 gibi diğer m6A genleri de meme kanserinde kötü prognoz ve kemodirençleilişkilendirilmiştir 33,60,61.
Yol zenginleştirmemiz, YTHDF3'ün RNAmetabolizmasındaki beklenen rollerini vurguladı 62. Daha da belirgin olarak, ALKBH aile üyeleri aracılığıyla DNA dilinklenme onarımınakatılım olduğunu gösterdi 63,64. Ayrıca, HNRNPA2B1, SRRT ve METTL3 65,66,67,68 üzerinden pri-miRNA işleme ile EXOSC10 ve DCP2 69 ile telomeraz stabilizasyonuna yapılan bağlantılar, olası çok yönlü mekanizmaları önermektedir. İlginç bir şekilde, YTHDF3 aşırı ekspresyonu, ST6GALNAC5 ve GJA170'in translementini artırarak meme kanseri beyin metastazıyla ilişkilendirilmiştir. Son çalışmalar onkojenik repertuarını daha da genişletmiştir: YTHDF3'ün mTOR-HIF1α-LDHAekseni 71 üzerinden glikoliz ve proliferasyonu artırdığı gösterilmiştir; ZEB1 veSMAD5 72'nin m6A'ya bağlı translasyonu yoluyla osteolitik kemik metastazını teşvik etmek; üçlü negatif meme kanserinde YTHDF3, tümörjenez73'ü sürmek için CENPI mRNA'yı stabilize eder; ve eIF4B'yi kullanarak Notch2translasyonunu uyarlayarak epitelyal-mezenkimal geçişi ve metastazı kolaylaştırır. Son çalışmalar, meme kanserinde daha geniş m6A düzenleyici ağını daha da vurgulamaktadır; bunlar arasında beyinmetastazı 75'te piR-1170/WTAP aracılı metilasyon yeniden programlanması ve TNBC76'da POP1 bağımlı, YTHDF2 tarafından tanınan CDKN1A mRNA bozulması dahildir. Bu çalışmalar, YTHDF3'ün çeşitli kötü huylu süreçlerde rol alabileceğini göstermektedir. Dolayısıyla YTHDF3, meme kanserinin büyümesi, apoptoz ve metastazdaki rolü üzerine daha fazla mekanik çalışmalar gerektirse de, umut verici bir prognostik biyobelirteç oluşturabilir.
İlginçtir ki, TIMER analizi meme kanserinde YTHDF3 ifadesi ile birkaç bağışıklık hücresi alt kümesinin infiltrasyon seviyeleri arasında genel pozitif bir korelasyon göstermiştir. Bu gözlemin biyolojik temeli şu anda bilinmemektedir ve YTHDF3 yüksek tümörlerde tümör mikro ortamında genel bir değişikliği yansıtabilir. Meme kanserinin bağışıklık manzarasını şekillendirmedeki YTHDF3'ün özel rolünü incelemek için özel immünogenomik ve fonksiyonel çalışmalar gereklidir.
Bu çalışmanın birkaç sınırlaması vardır. Birincisi, analizler öncelikle kamuya açık veri setlerine dayanır; TCGA ve GTEx verilerini entegre etmek, örnek işleme, dizileme platformları ve normalizasyon boru hatlarındaki farklılıklar nedeniyle toplu etkiler yaratabilir ve bu veritabanlarının geriye dönük doğası doğasında seçim ve açıklama yanlılığı taşır. İkinci olarak, klinik doğrulama grubu küçüktü ve sınırlı takipler vardı ve yeni keşfedilen m6A ile ilişkili genler dahil edilmedi. Üçüncü olarak, YTHDF3'ün prognostik değerinin bağımsız kohort doğrulaması eksik ve mRNA ile protein ekspresyonları arasındaki tutarsızlıklar çözülmemiştir. Ayrıca, meme kanserinde YTHDF3'ün biyolojik işlevine dair doğrudan in vivo ve in vitro kanıtlar bulunmamaktadır, ilaç hassasiyeti veya tedavi-yanıt analizleri yapılmamış ve YTHDF3'ün aşağı akış hedeflerinde m6A modifikasyonunu nasıl aracılık ettiği spesifik mekanizmalar araştırılmamıştır. Bu uyarılar, bulgularımızın dikkatli yorumlanmasını gerektirir. YTHDF3'ü bir biyobelirteç olarak doğrulamak ve meme kanserindeki mekanik rolünü aydınlatmak için standart protokoller, daha büyük örneklem boyutları ve fonksiyonel deneylerle gelecekteki prospektif çalışmalar gereklidir.
Sonuç olarak, bu bütünleyici analiz meme kanserinde m6A ile ilişkili genleri kapsamlı şekilde değerlendirmiştir. Genetik ve epigenetik değişiklikler gen ifadesi üzerinde sınırlı etkiye sahip olsa da, genler geniş çapta düzensizdi ve prognozla ilişkilendirildi. Bulgularımız, YTHDF3'ün bağımsız bir prognostik biyobelirteç olarak hizmet verebileceğini ve meme kanseri üzerine daha fazla biyolojik araştırma yapılmasını gerektirdiğini göstermektedir.
Açıklamalar
Yazarların beyan edecek çıkar çatışmaları yoktur.
Teşekkürler
Bu çalışma, Sichuan Eyaleti Doğa Bilimleri Vakfı (hibe numarası: 2022NSFSC1425), Sichuan Tıp Derneği Tümör Özel Araştırma Projesi (hibe numarası: 2024HR20), Luzhou - Güneybatı Tıp Üniversitesi Araştırma Projesi (hibe numarası: 2024LZXNYDJ051), Pekin Xisike Klinik Onkoloji Araştırma Vakfı (hibe numarası: Y-SS2025MS-0009) ve Pekin Kechuang Tıbbi Gelişim Vakfı (hibe numarası: KC2023-JX-0288-BM74) tarafından finanse edilmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Breast Cancer Gene-Expression Miner v4.7 | Omics Data Science Unit of Integrated Center for Oncology | http://bcgenex.ico.unicancer.fr/ | GTEx normal breast dokusunun ifade verilerini almak için kullanılır; Metodlar/Veri Kullanılabilirliğinde listelenmiştir |
| cBioPortal | Uygulanamaz | https://www.cbioportal.org/ | Genetik değişim ve kopya-sayı değişimi analizi; Metodlar/ Veri Kullanılabilirliğinde listelenmiştir |
| Clinical Proteomic Tumor Analysis Consortium (CPTAC) | Clinical Proteomic Tumor Analysis Consortium | Uygulanamaz | Proteomik veri seti UALCAN aracılığıyla kullanılmıştır; Metodlar/Veri Kullanılabilirliğinde listelenmiştir |
| Genotype-Tissue Expression (GTEx) projesi | GTEx Consortium | dbGaP erişimi phs000424.v8.p2 | Normal meme dokusu ifade veri kaynağı; Metodlar/Veri Kullanılabilirliğinde listelenmiştir |
| Hieff qPCR SYBR Green Master Mix (Rox Yok) | YEASEN | qPCR master karışımı; yazar revizyonunda listelenmiştir | |
| Hifair III 1st Strand cDNA Synthesis SuperMix for qPCR | YEASEN | Birinci-iplik cDNA sentezi; yazar revizyonunda listelenmiştir | |
| Kaplan-Meier Plotter (KMplotter) | Uygulanamaz | https://kmplot.com | Çevrimiçi sağkalım doğrulama aracı; Metodlar/Veri Kullanılabilirliğinde listelenmiştir |
| Metascape | NIH hibelerine destek U19 AI106754 U19 AI135972 R01 DA03373 | http://metascape.org/ | Gen ekleme ve yol zenginleştirme analizi; Metodlar/ Veri Kullanılabilirliğinde listelenmiştir |
| MethHC | Uygulanamaz | http://methhc.mbc.nctu.edu.tw/ | DNA promotör metilasyon verisi/ kaynak; Metodlar/Veri Kullanılabilirliğinde listelenmiştir |
| NanoDrop 2000 spektrofotometre | Thermo Fisher Scientific | RNA konsantrasyon ve saflık ölçümü; yazar revizyonunda listelenmiştir | |
| QuantStudio 7 Flex Real-Time PCR Sistemi | Applied Biosystems | Kantitativ gerçek zamanlı PCR; yazar revizyonunda listelenmiştir | |
| SPSS 13.0 | Makalede sağlanmamıştır | Versiyon 13.0 | İstatistiksel analizler; yazar revizyonunda listelenmiştir |
| STRING v12.0 | STRING Consortium | https://string-db.org/ | Protein-protein etkileşim ağı analizi; güven puanı 0.4; Şekil 4/Veri Kullanılabilirliğinde listelenmiştir |
| The Cancer Genome Atlas (TCGA-BRCA) | The Cancer Genome Atlas | TCGA-BRCA | Gen ifadesi, klinik veri, genetik değişim/kopya-sayı veri seti kaynağı; Metodlar/ Veri Kullanılabilirliğinde listelenmiştir |
| The Human Protein Atlas | The Human Protein Atlas | https://www.proteinatlas.org/ | TCGA meme kanseri RNA-seq ifadesini ve klinik verileri elde etmek için kullanılan kaynak; Metodlar/Veri Kullanılabilirliğinde listelenmiştir |
| TIMER | X Shirley Liu Lab | https://cistrome.shinyapps.io/timer/ | İmmün infiltrasyon analizi; Metodlar/ Veri Kullanılabilirliğinde listelenmiştir |
| TRIzol reaktifi | Invitrogen | RNA ekstraksiyonu; yazar revizyonunda listelenmiştir | |
| UALCAN | The University of Alabama at Birmingham | http://ualcan.path.uab.edu/ | CPTAC ve TCGA verilerine dayalı protein ve mRNA ifade analizi; Metodlar/Veri Kullanılabilirliğinde listelenmiştir |
Kaynaklar
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.