Bu protokol, akış sitometrisi ve tek hücre RNA dizileme dahil olmak üzere sonraki analizler için hücre yüzeyi epitoplarını koruyan, fare meme bezi ve meme tümörü dokularından yüksek canlılığa sahip tek hücre süspansiyonları oluşturmak için tekrarlanabilir bir yöntem belirlemektedir.
Yöntem makalesi
Yüksek Canlılığa Sahip Tek Hücre Süspansiyonları Oluşturmak İçin Fare Meme Bezi ve Tümör Dokularının Disosiyasyonu
Bu makalede
Özet
Özet
Dokuların analiz için tek hücreli süspansiyonlara ayrıştırılması, tümör mikroçevresinde hücresel düzeyde neler olduğunun anlaşılmasına yardımcı olur. Şunlarda uzun süredir devam eden bir zorluk olan... Primer hücrelerin elde edilmesi ve kullanılması, tek hücreli RNA dizileme (scRNA-Seq) veya akış sitometrisi aracılığıyla immünofenotipleme dahil olmak üzere sonraki işlemler için hücre özelliklerini koruyan yüksek kaliteli hücre süspansiyonlarının üretilmesini kapsar. Dokular tipik olarak mekanik parçalama, enzimatik sindirim ve filtrasyon kombinasyonu kullanılarak ayrıştırılır ve her adımdaki çeşitli faktörler, elde edilen üründe değişkenliğe yol açar. Bu nedenle, herhangi bir spesifik doku tipi için en iyi çalışan yöntemi belirlemek amacıyla optimizasyon adımları atılmalıdır. Örneğin, meme yağ pedi dokusu adipositler açısından zengindir; bu durum, temiz bir hücre süspansiyonu elde etmeyi ve canlı hücreleri başarıyla korumayı daha zor hale getirir. Sonuç olarak, meme yağ pedi dokusu ve epitelyoid tümörlerden karşılaştırılabilir hücre süspansiyonları üretmek güçtür. Bu protokol, fare meme bezi ve tümör dokularından, sonraki analizler için hücre yüzeyi epitoplarını koruyan, yüksek canlılığa sahip tek hücreli süspansiyonlar üretmek için tekrarlanabilir ve maliyet etkin bir yöntem sunmaktadır. Bu prosedür, yüksek kaliteli scRNA-Seq kütüphaneleri üretmek ve çok parametreli akış sitometrisi kullanarak immünofenotipleme gerçekleştirmek için kullanılmıştır.
Giriş
Doku disosyasyonu, tek hücreli süspansiyonların elde edilmesini ve dokular içindeki hücre tiplerinin karakterizasyonunu sağlar. İnfiltre olan bağışıklık hücreleri, dokuya özgü immünolojik yanıtların altında yatan mekanizmanın aydınlatılmasına yardımcı olabildiği için, bu durum özellikle immünoterapiye verilen yanıtların analiz edilmesinde büyük önem taşır. HER2/neu onkogenini kodlayan deoksiribonükleik asit (DNA) ile yapılan aşılama, murine modellerde spontan HER2/neu kaynaklı meme tümörlerine karşı korumanın artmasını sağlar1. Ayrıca, DNA aşılama yönteminin, antikor üretimi ve interferon-γ (IFN-γ) salgılayan T hücreleri ile karakterize sistemik bir yanıt indüklediği gösterilmiştir1,2,3. Bu nedenle, yerel bağışıklığın sayılabilmesine olanak sağlamak amacıyla meme tümörlerini ve adipoz bakımından zengin meme bezi dokularını disosiye etmek için bir protokol geliştirmeye odaklandık. Dokunun tek hücrelere ayrılması; enzimatik, mekanik veya hem enzimatik hem de mekanik yöntemler gerektirir. Enzimatik disosyasyonla ilgili zorluklardan biri, bu yöntemlerin genellikle gece boyunca süren uzun bir süre boyunca enzimlere maruz kalmayı gerektirmesidir4. Aşırı maruz kalma, tekil hücrelerin ve yüzey belirteçlerinin degradasyonuna yol açar ve bu durumun en yıkıcı etkileri bağışıklık hücrelerinde görülür5,6. Mekanik sindirim, lenfositler ve makrofajlar gibi bağışıklık hücrelerini serbest bırakmak için iyi bir seçenek olabilir, ancak epitel ve stromal hücrelerden temsilci bir örnek elde etmek için stromayı etkili bir şekilde parçalayamaz. Son zamanlarda, doku disosyasyonu için mikroakışkan yöntemler araştırılmış ve ilk olarak çözeltideki hücresel agregatları parçalamak için kullanılmıştır7. Bir grup, cihaz içindeki kayma kuvvetlerini kullanarak kıyılmış dokuları daha fazla parçalamak için mikroakışkan bir yaklaşım uygulamıştır8. Optimize edilmiş 60 dakikalık disosyasyonun ardından, bu yöntem meme dokusunda geleneksel bir enzimatik sindirim protokolü ile karşılaştırıldığında epitel hücrelerinde 2 kat, endotelyal hücrelerde ise 4 kat artış sağlamıştır. Ancak, bir karaciğer örneğinde hepatosit verimi ölçülürken, muhtemelen hepatosit boyutuna ve kırılganlığına bağlı olarak verimin zamanla azaldığı görülmüş ve bazı zorluklar ortaya çıkmıştır. Bu nedenle, hücre bütünlüğünü ve yüzey epitoplarını korurken aynı zamanda birden fazla hücre tipinden temiz ve temsilci bir örnek elde eden orta bir yol bulmak büyük önem taşımaktadır.
Sindirimgen karışımlarında kullanılan enzimler tipik olarak genel kollajenazların9,10, tripsinin (Solid Tissue Dissociation Kılavuzu)4,10,11, hiyaluronidazın9,10,11 veya dispazın4,9,10 belirli bir kombinasyonunu içerir ve etkili bir sindirim için farklı süreler gerektirir. Burada açıklanan protokol, sindirim için birincil enzimler olarak iki spesifik kollajenaz türünü, kollajenaz tip II ve kollajenaz D'yi kullanırken; etilendiamintetraasetik asit (EDTA), şelasyon yoluyla hücre-hücre bağlarını daha da zayıflatmak için ikincil bir rolde kullanılır. Kollajenaz tip II, Clostridium histolyticum tarafından üretilen temel bir disosiyasyon enzimidir ve hücre dışı matristeki küçük kollajen fragmanlarının sindirilmesine yardımcı olur. Kollajenaz D de C. histolyticum tarafından üretilir ve akciğer, kalp, kas, kemik, nöral ve endotelyal dokular gibi çeşitli dokuları disosiye etmek için yaygın olarak kullanılmıştır. Bu kollajenaz, hücre yüzey proteinlerinin fonksiyonelliğinin ve bütünlüğünün korunmasına yardımcı olur ki bu, akış sitometrisi yoluyla yapılacak sonraki immünofenotiplendirme işlemleri için önemli bir faktördür. Kollajenaza ek olarak dokular, serbest DNA'yı degrade ederek sonuçta elde edilen hücre süspansiyonundan uzaklaştıran deoksiribonükleaz I (DNase I) varlığında sindirilir.
Meme bezlerinin disosiyasyonuna özgü bir diğer zorluk, örnek içindeki adipositlerin varlığıdır. Bir fare yaşlandıkça, meme yağ pedi önemli sayıda adiposit biriktirir. Bu hücreler daha kırılgandır ve sonraki işlem aşamalarında yırtılmaya eğilimlidir; bu durum, hücre süspansiyonuna RNA ve hücre içi kalıntıların salınmasına neden olarak ortam RNA'sını artırabilir, scRNA-Seq kütüphane hazırlığını bozabilir ve örnek kalitesini düşürebilir. Hücre dışı DNA, hücre agregatlarına yol açabilir; bu nedenle, başlangıçtaki enzimatik disosiyasyondan sonra kalan tüm adipositler, örneğin bütünlüğünü korumak için uzaklaştırılmalıdır. Neyse ki, adipositlerin yüzer doğası, santrifüj sırasında geri kalan hücrelerden ayrılmalarına yardımcı olmak için kullanılabilir. Bir santrifüj protokolü kullanılarak, adipositler supernatantın yüzeyinde kalır. Bu, adipositlerin birincil hücre peletine karışması önlenirken supernatant ile birlikte atılmasını sağlar. Zorunlu olmasa da, kademeli yavaşlamanın dahil edilmesi tüp içindeki Coriolis kuvvetlerini azaltarak, özellikle adipositler açısından çok zengin olan meme dokuları ile çalışırken veya adipositlerin çalışmanın odak noktası olarak uzaklaştırıldığı durumlarda, adipositlerin üstte belirgin bir katman halinde kalmasına yardımcı olur12,13.
Bu dokuya özgü hususlar göz önünde bulundurularak; maliyet etkin, özel bir ekipman gerektirmeyen ve ana dokudan tutarlı bir şekilde yüksek kaliteli ve tekrarlanabilir, temsili bir hücre örneği elde edilmesini sağlayan bir protokol oluşturmayı amaçladık.
Protokol
Bu protokoldeki tüm prosedürler, ABD Halk Sağlığı Servisi'nin Laboratuvar Hayvanlarının Kullanımı Politikası'na uygun olarak ve Michigan Eyalet Üniversitesi'nin Kurumsal Hayvan Bakım ve Kullanım Komitesi'nin onayıyla gerçekleştirilmiştir.
1. Fare tümör dokusu ve meme bezi dokusundan tek hücre süspansiyonunun hazırlanması:
Doku sindirimi
- Fazla gelen veya kullanılmayan tüm fare dokularını biyolojik atığa atın. Fare dokuları veya hücreleri ile kontamine olmuş plastikleri bertaraf için biyolojik atığa yerleştirin. Hücre içeren solüsyonları biyolojik sıvı atık konteynerinde toplayın ve bertaraf etmeden önce %10'luk çamaşır suyu ile muamele edin.
- Taze doku sindirim kokteylinin, doku sindirimi işleminden hemen önce hazırlandığından emin olun. Her örnek için 10 mL sindirim kokteyli (10 mL Roswell Park Memorial Institute (RPMI), 60 U DNase I, 25 mg Kolajenaz D, 50 mg tip II Kolajenaz) gereklidir. Kullanıma kadar oda sıcaklığında (RT) saklayın.
- Fareleri, ikincil ötanazi yöntemi olarak bilateral pnömotoraks ile birlikte, kan kaybı (eksanguinasyon) olsun veya olmasın, servikal dislokasyon yoluyla ötanize edin.
- Fareyi, bacakları dışa doğru uzatılmış ve sabitlenmiş şekilde sırtüstü pozisyona getirin.
- Gevşek tüylerden kaynaklanan örnek kontaminasyonunu önlemek için fareyi tamamen %70'lik etanol ile püskürtün.
- Peritonağı delmemeye dikkat ederek, farenin inguinal yağ pedinden boyuna kadar orta hattı boyunca tek bir insizyon yapın ve ardından ters "Y" şeklinde bir insizyon oluşturmak için her bir bacağa doğru insizyonları uzatın.
- Cildi gerin, cildi alttaki peritondan ayırmak için künt diseksiyon tekniklerini kullanın ve cildi nekopsi tahtasına düz bir şekilde iğneleyin.
- Orta büyüklükteki tümörleri veya meme bezlerini/yağ pedlerini çıkarın ve %10 fetal bovin serum (FBS) içeren 5 mL R10 hücre yıkama ortamı (R10, RPMI'dır) bulunan 50 mL'lik konik bir tüpe yerleştirin.
- Mümkünse nekrotik veya kanla dolu tümörlerin (görünümü çok koyu ve yumuşak olanlar) kullanımından kaçının.
- Biyolojik güvenlik kabininde, sadece meme yağ yastıkçıklarını ve tümörleri temiz bir petri kabına aktarın. Dokuyu, macunsu bir kıvam alana kadar iki cerrahi neşter ucuyla ince ince kıyın ve ardından temiz bir 50 mL'lik tüpe yerleştirin. Bu adımı oda sıcaklığında gerçekleştirin.
- Numune başına 10 mL sindirim kokteyli ekleyin.
- 37°C'de inkübe edin °30 dakika boyunca, dakikada 250 devir (rpm) hızındaki çalkalamalı inkübatörde çalkalayın.
- 0,5 M EDTA'yı 10 mM son konsantrasyona ulaşacak şekilde ekleyin (200 µL EDTA/10 mL sindirim tamponu).
- 37 °C'deki çalkalayıcı inkübatöre geri döndürün °C ve 250 rpm hızda 5 dakika daha.
- Reaksiyonu durdurmak için 40 mL R10 hücre yıkama besiyeri ekleyin.
- Sindirilen hücreleri 70 $\mu$m'lik bir süzgeçten filtreleyin µTopakları uzaklaştırmak için m filtre yardımıyla temiz bir 50 mL'lik tüpe süzün.
- 500 x g'de santrifüjleyin g ivme ayarı 9 ve yavaşlama ayarı 6, 4 kullanılarak °10 dakika boyunca santrifüjleyin (yalnızca lenfositik hücrelerle ilgileniliyorsa, santrifüj kuvveti 300 x'e düşürülebilir) g (5 dk boyunca)14 hücreleri pelletlemek için. Bu işlem, adiposit bakımından zengin olan meme bezi dokusunun disosiyasyonunu içerdiğinden, düşük frenleme protokolü, santrifüj sırasında adipositlerin yüzer doğası tarafından oluşturulan gradyanın korunmasına yardımcı olur13.
- Süpernatantı biyolojik atığa boşaltın, pelletleme malzemesini dağıtın ve 40 mL hücre yıkama medyumu ekleyerek yukarıdaki gibi (adım 1.15) santrifüjleyin. Sonraki adımlar için frenleme tam yavaşlatmaya geri döndürülebilir. Bunun yapılmaması örneği olumsuz etkilemeyecektir.
- 40 mL R10 hücre yıkama ortamı ile yıkayın ve adım 1.15'te olduğu gibi, toplamda 3 yıkama yapacak şekilde santrifüjleyin.
- Pelleti dağıtın ve hücreleri 2 mL soğuk 1 içerisinde yeniden süspande edin × PBS.
- İki hacim 1 ekleyin× RBC liz tamponu. 10 kat seyreltin × 1x konsantrasyonunda lizis tamponu konsantresi × su kullanarak (ör. 2 x = 2 mL 1 × PBS + 4 mL lizis tamponu). Bu adımı oda sıcaklığında gerçekleştirin.
- Tüpü ara ara nazikçe tersyüz ederek karıştırın ve oda sıcaklığında 5 dakika inkübe edin.
- Eşit hacimde R10 hücre yıkama ortamı ekleyerek RBC lizis tamponunu nötralize edin.
- Hücre solüsyonunu 30 µm'lik bir filtreden geçirin µhücresel kalıntıları uzaklaştırmak için m filtre ile 15 mL'lik bir tüpe süzün.
- Hacmi R10 hücre yıkama ortamı ile 15 mL'ye tamamlayın.
- 500 x g'de santrifüjleyin g 4°C'de 10 dakika boyunca °C.
- Süpernatantı tamamen uzaklaştırın ve sayım ile canlılık değerlendirmesi için hücre yıkama ortamında toplam 5 mL hacme gelecek şekilde yeniden süspanse edin. İstenen dilüsyon seviyesine gelene kadar yeniden süspanse edin. Akış sitometrisi için boyama veya scRNA-seq hazırlama aşamasına geçin.
- Aksi belirtilmedikçe, adımlar arasında hücreleri buz üzerinde tutun.
2. Akış sitometrisi için tek hücre süspansiyonunun boyanması
- İstenen hücreleri 5 mL'lik polipropilen yuvarlak tabanlı bir tüpe aktarın ve buz üzerinde tutun.
- Akış PBS'i (490 mL 1x PBS, 10 mL FBS, 0,5g Sodyum azid) kullanarak, floresan etiketlerle konjuge edilmiş istenen monoklonal antikorlar (mAb) ile (n + 1) × 100 µL toplam hacimde bir hücre boyama çözeltisi hazırlayın. n = örnek sayısı olacak şekilde (n+1) × 100 µL boyama çözeltisi hazırlayın (örneğin, 5 örnek için 6 × 100 µL = 600 µL)
NOT: Sodyum Azid toz formunda bir kanserojendir. Uygun kişisel koruyucu ekipman kullanın ve kimyasal atık konteynerine atmadan önce azidin çözeltide olduğundan emin olmak için tüm ekipmanı yıkayın. - Boyanacak her bir örneği 4 °C'de 500 x g hızda 5 dakika santrifüjleyin. 100 µL boyama çözeltisi içinde yeniden süspande edin. Boyanmamış kontrolleri 1000 µL akış PBS'i içinde yeniden süspande edin.
- Tüpleri ışıktan korumak için kapatın ve 4 °C'de 15 dakika inkübe edin.
NOT: Floresan etiketli antikorlar ışığa uzun süre maruz kaldığında bozunabilir; bu nedenle inkübasyon ve sonraki örnek saklama işlemleri sırasında kapalı tutulmalıdır. - Boyanan her tüpe 1 mL akış PBS'i ekleyin ve yıkama için 500 x g, 4 °C'de 5 dakika santrifüjleyin.
- Süpernatantı atın, peleti dağıtın ve hücreleri 1 mL akış PBS'i içinde yeniden süspande edin. Daha önce olduğu gibi (Adım 2.5) santrifüjleyin.
- Toplam üç yıkama için 2.6 adımını tekrarlayın. Süpernatantı atın ve peletleri dağıtın.
- Gerekli olan sonraki boyamalara bağlı olarak hücreleri fiksasyon çözeltisi veya akış PBS'i içinde yeniden süspande edin.
- Hücreleri fikse ediyorsanız veya hücre içi boyama yapıyorsanız şu adımları uygulayın. Aksi takdirde, Adım 2.10'a geçin:
- İntranükleer boyamaya izin vermek için her örneğe 200 µL permeabilizasyon/fiksasyon çözeltisi ekleyin .
- Hücreleri alüminyum folyo ile kapatın ve 4 °C'de en az 20 dakika inkübe olmalarına izin verin. Örnekleri başka bir gün çalıştırmayı planlıyorsanız, örnekler bu adımda kapatılmış olarak 4 °C'de gece boyunca saklanabilir.
- Fiksasyondan sonra, örnekleri 500 x g hızda 5 dakika santrifüjleyin ve 1 × permeabilizasyon tamponu (su ile seyreltilmiş) içinde yeniden süspande edin.
- Sekonder veya hücre içi boyama hazırlıyorsanız, örnekleri 1x Permeabilizasyon tamponu içinde istenen dilüsyonda boyayın. Kapalı tüpleri 4 °C'deki inkübatöre 15–20 dakika yerleştirin.
- Boyanan her tüpe 1 mL 1x permeabilizasyon tamponu ekleyin ve yıkama için 500 x g hızda 5 dakika santrifüjleyin.
- Süpernatantı atın, peleti dağıtın ve hücreleri 1 mL 1x Permeabilizasyon tamponu içinde yeniden süspande edin. Daha önce olduğu gibi (Adım 9.5) santrifüjleyin.
- Toplam üç yıkama için 2.9.6 adımını tekrarlayın. Süpernatantı atın ve peletleri dağıtın.
- Hücreleri 200 µL 1x Permeabilizasyon tamponu içinde yeniden süspande edin ve akış sitometresinde çalıştırılmaya hazır olana kadar buz üzerinde tutun.
- Hücreleri fikse etmiyorsanız, 200 µL akış PBS'i içinde yeniden süspande edin ve akış sitometresinde çalıştırılmaya hazır olana kadar buz üzerinde tutun.
- scRNA-Seq analizi için debris ve ölü hücreleri uzaklaştırma, RNA kalitesini değerlendirme ve kütüphaneler oluşturma protokollerini izleyin.
3. scRNA-Seq kütüphane kalitesinin değerlendirilmesi
- Hücrelere güvenle eşleşmiş okuma yüzdesinin yüksek olmasına dikkat edin. İdeal olarak, bu değer %90'ın üzerinde olmalıdır.
- Benzersiz moleküler tanımlayıcı (UMI) sayılarını barkodlarla karşılaştırın. Yüksek kaliteli bir örnekte, yaklaşık 10.000 barkodda UMI sayılarında keskin bir düşüş görülür (barkod sıralama grafiğindeki 'dirsek bükümü').
- Uniform manifold approximation and projection (UMAP) analizlerini inceleyin. Meme bezleri veya spontan meme tümörleri gibi karmaşık dokulardan alınan yüksek kaliteli bir örnekte, belirgin ve birbirinden iyi ayrılmış hücre kümeleri bulunur.
- Eksprese edilen mitokondriyal (mt-) gen sayısını belirleyin; yüksek sayıda mitokondriyal gen içeren kümeler, hücrelerin ölü veya ölmekte olduğunu gösterir.
Sonuçlar
HER2, kadınlarda agresif meme tümörlerini tetikleyen bir tümör onkogenidir ve HER2 hedefli monoklonal tedavilerle tedavi edilen kadınların %70'ine kadarı ya tedaviye yanıt vermemekte ya da HER2 hedefli tedaviye karşı direnç geliştirmektedir.15,16,17,18Nihai hedef, HER2 immünitesini geliştirmek ve sağkalımı artırmak için HER2/neu'ya karşı bir immün yanıtı aktive etmektir. HER2/neu immünitesini incelemek için, HER2/neu tarafından tetiklenen spontan meme tümörleri geliştiren immünokompetan fare modelleri kullanılır.2,19HER2, insan tarafından kodlanmaktadır Erbb2 ve sıçan tarafından neu Erbb2. BALB NeuT fareleri, transforme edici bir sıçan nöro MMTV promotörü tarafından yönlendirilen (NeuT) transgeni19Neu, BALB arka planlı ergenlik dönemindeki dişi farelerin meme bezlerinde eksprese edilmekte ve bu durum duktal karsinom gelişimiyle sonuçlanmaktadır (Şekil 1A, iç ek) tüm transgenik dişilerin herhangi bir veya tüm meme bezlerinde. Şunun sürekli ekspresyonu nöro 14 ile 19 haftalık yaş arasında, ilerleyici şekilde büyüyen, elle hissedilebilir tümörlerin oluşmasına yol açar1Hem otolog neu hem de heterolog HER2'yi kodlayan plazmid DNA (pNeuE2TM olarak adlandırılmıştır) ile transgenik farelerin aşılanması, neu'ya karşı olan immün toleransı kırarak sistemik neu hedefli poliklonal antikorların ve IFN-γ salgılayan splenik T hücrelerinin artışına yol açabilir1Bu bağışıklık yanıtı, neu eksprese eden TUBO tümör hücrelerinin reddedilmesine yol açmıştır. Sistemik yanıt bilgilendirici olsa da, tümör bölgesindeki etki mekanizmasını anlamamıza olanak tanımaz. Bu nedenle, hücre yüzey belirteçlerini korurken yüksek canlılığa sahip tek hücreler elde etmeyi sağlayacak bir meme bezi ve meme tümörü dokusu disosiyasyon protokolü geliştirmeye karar verdik. Şekil 1 iş akışına genel bir bakış sunar. Kısaca, toplama işleminin ardından doku, skalpeller kullanılarak ince parçalara ayrılır (Şekil 1B) ve 2 birim kollajenaz tip II ile 1 birim kollajenaz D ve DNase I kombinasyonu içeren RPMI tabanlı doku sindirim tamponuna yerleştirilerek çalkalamalı inkübatörde 30 dakika boyunca (Şekil 1C–D), ardından 0,5 M EDTA ile ek 5 dakika (Şekil 1E). Sindirim, FBS içeren bir yıkama tamponu eklenerek durdurulur ve doku kalıntılarını uzaklaştırmak için karışım filtrelenir (Şekil 1F). Yıkama basamaklarını ve eritrosit lizisini takiben (Şekil 1G–H), hücreler 30 μm'lik bir süzgeçten geçirilir ve sayılır (Şekil 1I–K ve Şekil 2). Bu aşamada hücreler, akış sitometrisi veya scRNA-Seq gibi alt akış işlemleri için ayrılabilir.
Doğrudan karşılaştırma yapmak amacıyla, disosiyasyon işlemi ticari bir kit kullanılarak paralel olarak gerçekleştirilmiştir. ‘Tough’ tümörler için yayınlanmış protokol takip edilmiş ve enzim nötralizasyonunun ardından örnekler aynı şekilde (örneğin, RBC lizizi vb.) işlenmiştir. Ticari kit kullanıldığında %76 canlılıkla 1.3 × 10⁶ hücre/mL geri kazanılırken, buradaki protokol ile %89 canlılıkla 4.5 × 10⁶ hücre/mL geri kazanılmıştır (Şekil 2A,B). RBC lizizini takiben iki protokol arasındaki debris miktarı benzer bulunmuştur. Ölü hücreleri uzaklaştırmak için, her protokolden 1 × 10⁷ hücre ölü hücre uzaklaştırma hattından geçirilmiştir. Ticari kit %96 canlılıkta 1.3 × 10⁶ hücre/mL geri kazanırken, burada bildirilen protokol için 1.94 × 10⁶ hücre/mL ve %98 canlılık elde edilmiştir (Şekil 2C,D). Böylece, burada bildirilen protokol, özel ekipman gereksinimi duymadan alt analizler için daha yüksek canlı hücre verimi sağlamıştır.
Burada bildirilen protokolden elde edilen hücre süspansiyonlarının kalitesini ve tekrarlanabilirliğini spesifik olarak değerlendirmek amacıyla, 16–18 haftalık naif dişi BALB ve BALB NeuT farelerden meme bezi örnekleri toplandı. BALB NeuT dokusu hem meme bezi hem de tümör dokuları içeriyordu. BALB NeuT'ten gelen tümör dokusu da dahil olmak üzere, inguinal meme yağ yastıkçıklarından (4 ve 9 numaralı meme bezleri) doku alındı ve sonraki analizler için homojen bir çözelti haline getirildi. Meme bezi toplama işleminden önce sentinel lenf düğümlerinin çıkarıldığına dikkat ediniz.
İşlem sonrası örnekler, hücre yüzeyi markerlarının korunduğunu ve hücre canlılığını doğrulamak için akış sitometrisi (Şekil 3) ile ve kütüphane oluşturma için hücre hazırlama kalitesini doğrulamak amacıyla scRNA-Seq (Şekil 4) analizi ile değerlendirilmiştir. Meme bezi veya tümör kaynaklı tek hücrelerin canlılığı, ölü hücrelerin uzaklaştırılmasından önce ortalama ≥85% olarak belirlenmiştir. scRNA-Seq için yüksek canlılığa sahip bir başlangıç hücre hazırlığı oluşturmak amacıyla, ticari olarak mevcut olan ölü hücre ve debris uzaklaştırma kitleri kullanılabilir. Bu protokoller uygulandıktan sonra, tek hücre hazırlıklarının canlılığı %94 ile %98 arasında değişmiştir (Şekil 2C,F). Bu protokolden elde edilen hücreler fikse edilmiş ve ticari bir termolizin kullanan, ticari "önce fiksasyon-sonra disosiasyon" protokolü olarak adlandırılan önerilen scRNA-Seq fiksasyon yöntemi ile karşılaştırılmıştır (Şekil 2E,F). Ticari önce fiksasyon-sonra disosiasyon protokolü 1.5 × 10⁷ hücre/mL sağlamış olup, dokuyu disosiasyondan önce fikse ettiği için canlılık ölçülmemiştir; buna karşın bu protokol, %94'lük bir başlangıç canlılığından 8.6 × 10⁶ hücre/mL sağlamıştır. Böylece, ticari önce fiksasyon-sonra disosiasyon protokolü yöntemi, burada rapor edilen protokol ile karşılaştırılabilir veya biraz daha yüksek sayıda hücre sağlamıştır.
Hücreler boyandı ve akış sitometrisi kullanılarak hücre yüzey belirteçleri açısından değerlendirildi. Epitelyal hücreler (Şekil 3A) ve fibroblastlar (Şekil 3B), sırasıyla EpCAM ve Pdgfrb/CD140a mAb ile boyanarak tanımlandı. BALB NeuT farelerinin üç kez HER2/neu DNA'sı ile aşılanması, tümör başlangıcında ve sistemik immünitede önemli bir gecikmeyle sonuçlandığından, meme bezlerindeki ve tümörlerdeki bağışıklık hücrelerini değerlendirmek özel bir ilgi alanı oluşturdu. Bağışıklık soyuna ait CD45+ hücreler, hücre süspansiyonunun yaklaşık %50'sini oluşturdu (Şekil 3C). B ve T hücrelerinin varlığı B220/CD45R ve CD3 kullanılarak değerlendirildi (Şekil 3D) ve CD3+ T hücreleri daha sonra CD4 ve CD8 olarak alt gruplara ayrıldı (Şekil 3E). Nadir hücre popülasyonlarını koruma yeteneğini değerlendirmek için örnekler regülatör T hücreleri açısından boyandı. Bunu yapmak için hücre örneği fikse edildi ve Treg-spesifik transkripsiyon faktörü Foxp3 için boyandı. Regülatör T hücreleri tipik olarak vücudun toplam bağışıklık popülasyonunun küçük bir oranını oluşturur, ancak bağışıklık sisteminin modülasyonundaki rolleri kanser araştırmaları ve otoimmün hastalık alanlarında büyük ilgi görmektedir. Bu nedenle, bir doku disosiasyon protokolü değerlendirilirken, regülatör T hücreleri gibi küçük ancak güçlü bağışıklık hücresi popülasyonlarının güvenilir bir şekilde yakalanması kritiktir. Foxp3+ regülatör T hücreleri, önce CD3+CD4+ hücrelerinin CD25 (yüksek afiniteli IL-2 reseptörü) ve Foxp3 ekspresyonu için alt kapılamasıyla (sub-gating) tanımlandı. Bu kapılama stratejisi kullanılarak, CD4+ hücrelerin yaklaşık %5'i her iki belirteç için pozitifken, yaklaşık %25'i Foxp3 için pozitif ancak CD25 için düşük veya negatifti (Şekil 3F). CD64+ makrofajların bu disosiasyon tekniği kullanılarak başarıyla izole edilebildiğinden emin olmak için ayrı bir tümör örneğinde CD64 değerlendirildi (Şekil 3G). Daha geniş myeloid grupları tanımlamak için F4/80+ makrofajlar ve dendritik hücreler olarak tanımlanan F4/80- CD11c+ hücreler belirlendi (Şekil 3H). Dendritik hücreler toplam hücrelerin yaklaşık %3'ünü oluştururken, CD11b+Ly6G+ nötrofiller yaklaşık %5'ini oluşturdu (Şekil 3H,I). Sonuç olarak, yukarıdaki protokol kullanılarak hem meme bezi hem de tümör dokusunun disosiasyonundan sonra CD45+ hücrelerde yüzey epitoplarının güvenilir geri kazanımı ve korunması sağlanmıştır.
scRNA-Seq kütüphanesi oluşturulması için gönderilmeden önce, örneklerin RNA bütünlüğü değerlendirilebilir. Ticari protokol veya burada rapor edilen protokol kullanılarak hazırlanan taze örnekler, sırasıyla 1.9 ve 2.2 A260/230 oranları vermiştir. Sabitlemiş örnekler, 200 nükleotitten (nt) büyük okumaların yüzdesi belirlenerek değerlendirilir. Burada rapor edilen protokolün uygulanmasını takiben yapılan hemen sabitleme ve –80 °C'de saklama işlemi, örneğin %83'ünün > 200 nt okumalar içermesiyle sonuçlanmıştır.
Numunelerin kalitesi
scRNA-Seq kütüphane hazırlığı ve sekanslamanın ardından, örnek kalitesi değerlendirildi (Şekil 4). scRNA-Seq örnek kütüphaneleri öncelikle hücre belirleme ve eşleme kalitesi metrikleri, barkod sıra grafiği, sekanslama doygunluğu ve UMAP projeksiyonları kullanılarak değerlendirilir. Burada açıklanan disosiasyon protokolü kullanılarak BALB meme dokusunun disosiasyonu 16.182 hücre sağlamış olup, okumaların %97'sinin hücrelere atanması, hücre dışı RNA'ya çok az okuma atandığını ve dolayısıyla örneğin sağlıklı olduğunu göstermiştir. Hücre dışında kaydedilen okumaların yüksek bir yüzdesi, ölü veya ölmekte olan hücrelerden kaynaklanan ortam mRNA kontaminasyonu seviyelerinin arttığını gösterir. Eşleme kalitesi, prob setine eşlenen probların yüzdesidir; bu değer %99,1 olarak belirlenmiştir. Sekanslama doygunluğu plato çizmekteydi, bu da benzersiz genler yerine halihazırda tanımlanmış genlerin tekrarlanmaya başladığını göstermektedir. Barkod sıra grafiği, UMI sayılarını barkodlara karşı göstermektedir ve yüksek kaliteli bir örnek, ~10K UMI civarında belirgin bir düşüş veya 'diz kırılması' (knee bend) sergiler (Şekil 4A). Son olarak, UMAP projeksiyonu birkaç belirgin küme göstermektedir (Şekil 4A). Tüm bu metrikler, yüksek kaliteli bir scRNA-Seq kütüphanesine işaret etmektedir.
Bu protokolün kalitesini, Flex kimyası için önerilen ticari önce-fiksasyonlu dissosiasyon protokolü ile karşılaştırmak amacıyla, ticari önce-fiksasyonlu dissosiasyon protokolü burada bildirilen protokol ile yan yana uygulanmış ve ortaya çıkan kütüphanenin kalitesi değerlendirilmiştir. BALB meme bezi örnekleri için uygulanan ticari önce-fiksasyonlu dissosiasyon protokolü, %68 hücre içi okuma ve %89,3 haritalama kalitesi ile 720 hücre geri kazanmıştır. Benzer şekilde, doygunluk platoya ulaşmaya başlamıştı ancak gen/hücre sayıları, canlı dissosiasyona göre belirgin şekilde daha düşüktü (canlı için hücre başına 4.500 gen, ticari önce-fiksasyonlu dissosiasyon protokolü için hücre başına 1.000 gen). Barkod sıralama grafiği bir diz kırılması göstermemektedir (Şekil 4B) ve belirgin kümeler olsa da bunların sayısı daha azdır (Şekil 4B).
BALB NeuT tümör içeren meme dokusu kütüphanelerinin kalitesi de değerlendirilmiştir (Şekil 4C,D). Burada açıklanan canlı dissosiyasyon yöntemi kullanılarak 18.077 hücre dizilenmiş; okumaların %97'si hücrelerde bulunmuş ve %99,1'i prob setine eşleşmiştir. Bir diz kırılması (knee bend) belirgindi (Şekil 4C) ve kümeler arasında net bir ayrım görülmüştü (Şekil 4C). Ticari fiksasyon öncelikli dissosiyasyon protokolü, tümör mevcut olduğunda daha iyi performans göstermiş; 7.119 hücre dizilenmiş, okumaların %91'i hücrelerde bulunmuş ve okumaların %98,6'sı prob setine eşleşmiştir. Barkod sıra grafiğinde (Şekil 4D) daha belirgin bir diz kırılması vardı, ancak dizileme doygunluğuna rağmen UMAP projeksiyonları az sayıda belirgin küme içeriyordu (Şekil 4D).
Ek kalite metrikleri, hücre kümeleri tarafından eksprese edilen mitokondriyal gen sayısının belirlenmesini içerir. İyi hücre ayrımı örnek kalitesinin bir göstergesidir ve yüksek bir 'hücre içi okuma' (reads in cell) yüzdesi örneğin sağlıklı olduğunu kanıtlar. Yüksek sayıda mitokondriyal gene ('mt-' olarak belirtilen) sahip hücreler, açık kaynaklı ve üreticiye ait kümeleme araçları kullanılarak tanımlanabilir ve kaldırılabilir. Doğrudan örnek karşılaştırması, karşı karşıya biyoinformatik karşılaştırmaya olanak tanıyan Cell Ranger uygulaması ile örneklerin birleştirilmesiyle veya açık kaynaklı ve üreticiye ait kümeleme araçlarındaki 'entegrasyon' (integration) betiği kullanılarak gerçekleştirilebilir. Hücre kümeleri, bilinen hücre soyu markerları (örneğin bağışıklık hücreleri için CD45/Ptprc, epitel hücreleri için EpCAM, fibroblastlar için Fap veya Pdgfra) sorgulanarak tanımlanır. Bir hücre kümesi bilinen soy markerları ile tanımlanamıyorsa, olası hücre tipi hakkında fikir edinmek için en yüksek ekspresyona sahip ilk 10–15 gen, gen seti zenginleştirme araçları kullanılarak analiz edilebilir. Alternatif olarak, en yüksek ekspresyon gösteren genler, bilinen hücre tiplerindeki ekspresyon için referans hücre atlası araçları kullanılarak sorgulanabilir.
Yüksek sayıda mitokondriyal gen içeren hücreler her örnekten uzaklaştırılmış; böylece BALB meme bezinde 16.114 hücre (%0,5'i yüksek mitokondriyal gen içeren hücreler) ve BALB NeuT'de 18.024 hücre (%0,3) kalmıştır. Ticari önce-fiksasyonlu dissosiyasyon protokolü örnekleri arasında, BALB meme bezi 627 (%13'ü yüksek mitokondriyal gen içeren hücreler) ve BALB NeuT 6.181 (%14) hücre korumuştur.
Burada açıklanan canlı hücre ayrıştırma protokolü için BALB ve BALB NeuT meme bezleri arasındaki entegrasyon gerçekleştirilmiştir ve Şekil 4E,F'de gösterilmiştir. Örneklerin karşılaştırılması, kütüphaneler arasında benzer hücre popülasyonları olduğunu göstermiştir (Şekil 4E, F ve Tablo 1). Hücre kümeleri, bilinen hücre soyu belirteçleri kullanılarak etiketlenmiş ve örnekler arasında karşılaştırmalar yapılmıştır. İmmün hücre popülasyonları T hücrelerini, B hücrelerini ve makrofaj kümelerini içerirken; immün olmayan hücre popülasyonları epitel hücrelerini, fibroblastları ve endotel hücrelerini içermiştir. Beklendiği üzere, BALB NeuT örneği ek bir tümör hücresi popülasyonuna sahipti (Şekil 4F). Spesifik hücre popülasyonlarına bakıldığında, tümör taşıyan BALB NeuT örneğinde daha fazla makrofaj, ancak daha az T hücresi ve tümör dışı epitel hücresi olduğu görülmüştür. scRNA-Seq analizi, BALB meme bezinden türemiş karşılaştırılabilir bir epitel hücre popülasyonu ve NeuT karşılığında anlamlı bir epitel/tümör hücresi popülasyonu göstermiştir. Boyut indirgeme grafiği, normal meme yerleşik epitel hücre popülasyonu ile BALB NeuT örneğine özgü epitel tümör hücreleri arasında net bir ayrım göstermektedir (Şekil 4E,F).
Epitelyal popülasyonlar oluşturulduktan sonra, BALB ve BALB NeuT örnekleri arasında stromal hücreler değerlendirildi. Fibroblastlarda eksprese edilen trombosit kaynaklı büyüme faktörü reseptör alfa (Pdgfrα) geninin analizi, hem BALB hem de BALB NeuT örneklerinde belirgin bir fibroblast popülasyonu tespit etti. BALB scRNA-Seq örneğinde, Pdgfrα eksprese eden fibroblastlar hücrelerin %15'ini oluştururken, bu oran fibroblastların hücrelerin %29'unu oluşturduğunu gösteren akış sitometrisi analizinden biraz daha düşüktü (Şekil 3B). Canlılık ve tek hücre durumu için kapılama (gating) yapıldıktan sonra, fibroblastlar PDGFRα (CD140a) markörü kullanılarak akış sitometrisi ile tanımlandı. Sonraki analiz yöntemlerinden bağımsız olarak örnekler genelinde gözlemlenen sonuçlar, bu disosiasyon protokolünün zaman içinde ve birden fazla denemede tutarlı olduğunu desteklemektedir.
CD45 proteini Ptprc geni tarafından kodlanır ve Ptprc eksprese eden hücrelerin RNA sekanslaması, örnek içerisinde oldukça belirgin lenfosit kümelerini ortaya çıkarmıştır (Şekil 4E). Lenfosit popülasyonlarını daha ayrıntılı değerlendirmek için, hücreler Cd3e+ veya Cd79a+ kullanılarak B ve T hücre popülasyonları açısından incelenmiştir (Şekil 4E,F). Tek hücre sekanslama verileri değerlendirildiğinde bu popülasyonlar belirgin şekilde ayrılmış olsa da, scRNA-Seq ile Cd3 eksprese eden T hücrelerinin birkaç alt kümesi daha tanımlanmıştır. Sekanslama analizinden elde edilen ek immün hücre sayımları, Itgam ve Adgre1 (F4/80) ekspresyonu ile belirtildiği üzere, BALB NeuT örneğinde makrofajlarda bir artış olduğunu göstermiştir (Şekil 4F). scRNA-Seq'te nadir hücre popülasyonlarının tanımlanmasını değerlendirmek için, regülatör T hücreleri Foxp3 ekspresyonu ile belirlenmiştir (Şekil 4F). Regülatör T hücreleri scRNA-Seq kütüphanelerinde mevcuttur ancak ayrı bir küme olarak tanımlanacak kadar sayıca fazla değillerdir. Bunun yerine, T hücreleri ve doğal katil (NK) hücreleri ile birlikte kümelenmişlerdir.
Son olarak, scRNA-Seq kütüphaneleri içindeki nötrofillerin (PMN'ler) tanımlanabilme kapasitesi bir endişe kaynağı olmuş ve ticari olarak mevcut diğer meme dokusu disosiasyon protokolleri ile başarılamamıştır20. Akış sitometrisi kullanılarak, immün hücrelerin yaklaşık %5'inin Ly6G ve CD11b eksprese eden nötrofiller olduğu belirlenmiştir (Şekil 3H). scRNA-Seq kütüphaneleri içindeki nötrofilleri tanımlamak için, standart diz kırılma noktasının (knee bend) altındaki hücreleri belirlemek amacıyla tedarikçi boru hatları (pipelines) kullanılarak yeniden kümeleme yapılması önerilmektedir. Bu uygulama hem BALB hem de BALB NeuT meme bezi kütüphaneleri için gerçekleştirilmiştir. Tipik olarak makrofajlarla ilişkili genlerin (Ptprc, Adgre1, Mrc1) nokta grafikleri (dotplots), nötrofiller tarafından eksprese edilenlerle (S100a8, Trem1, Clec4) karşılaştırılmıştır. Ne BALB ne de BALB NeuT kütüphaneleri anlamlı sayıda nötrofil içermekteydi (Şekil 5A,B). Ancak, BALB x PWK arka planına sahip F1 NeuT fareler nötrofil markörlerini eksprese eden bir hücre kümesi barındırdığından, bu durumun model arka planına bağlı olduğu görülmektedir (Şekil 5C).
Böylece, bu dissosiyasyon protokolü, BALB farelerinin ve spontan meme tümörleri gelişen BALB NeuT farelerinin meme bezlerindeki hücre tiplerinin aydınlatılmasını sağlamıştır. Bu hücreler yüksek canlılığa sahip olduğundan, bu teknik, izole edilen bağışıklık hücresi popülasyonlarının anti-tümör immünitesini ve anti-HER2/neu fonksiyonelliğini değerlendirmek için kullanılabilir.
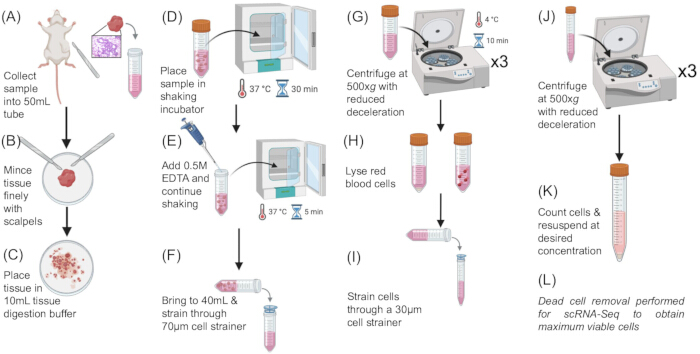
Şekil 1: Doku disosiasyon protokolü için iş akışı. (A) Meme bezleri veya tümörler çıkarıldı (B,C), ince ince kıyıldı (D) ve kollajenaz tip II, kollajenaz D ve DNase I içeren bir kokteyl içinde 37 °C'de çalkalanarak digeste edildi (E). EDTA eklendi ve digestiyona 5 dk daha devam edildi. (F) Digestiyon, %10 FBS içeren RPMI (R10 yıkama medyumu) ile 40 mL'ye tamamlanarak durduruldu ve ardından süspansiyon 70 µm filtrelerden süzüldü. (G) Hücre süspansiyonları 4 °C ve 500 × g hızda 10 dk santrifüj edildi, ardından RPMI yıkama medyumu ile 3 kez yıkandı. (H) Kırmızı kan hücreleri (RBC), amonyum klorür bazlı 10 × RBC Lizis solüsyonu kullanılarak liz edildi. (I) Lizisi durdurmak için R10 yıkama tamponu kullanıldı ve hücre süspansiyonları 30 µm filtrelerden süzüldü. (J,K) Kırmızı kan hücresi lizisinden sonra hücreler, konsantrasyon ve canlılık değerlendirmesi öncesinde üç kez daha yıkandı. (L) Eğer hücreler scRNA-Seq kütüphanesi oluşturmak için kullanılıyorsa, ölü hücreler ve debrisler, kendi protokollerine uygun olarak ticari olarak mevcut kitler kullanılarak uzaklaştırılır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
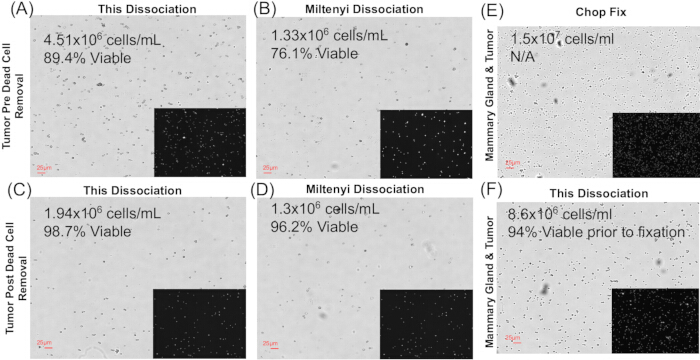
Şekil 2: Disosiasyon karşılaştırması. Burada rapor edilen disosiasyon protokolü ile ticari olarak mevcut olan Miltenyi protokolünün ve scRNA-Seq için önerilen ticari bir önce-fikse etme disosiasyon protokolünün karşılaştırıldığı hücre sayımı ve canlılık verileri. Disosiasyon sonrası hücre sayıları, akridin oranj/propidyum iyodür (AO/PI) ölü hücre boyaması ile otomatik bir hücre sayacı kullanılarak elde edilmiştir. Hücreler sayılmış ve canlılık, ölü hücrelerin uzaklaştırılmasının ardından kaydedilmiştir. (A–B) Ölü hücrelerin uzaklaştırılmasından hemen önceki hücre sayıları ve canlılık. (C–D) Ölü hücrelerin uzaklaştırılmasının ardından hücre sayıları ve canlılık; bu veriler scRNA-Seq işlem hattına giren örneği temsil etmektedir. (E–F) Burada rapor edilen protokol ile ticari bir önce-fikse etme disosiasyon protokolünün karşılaştırıldığı hücre sayıları ve canlılık. Liberase içeren protokol kullanılarak yapılan disosiasyon sonrası canlılık değerlendirilememiştir çünkü doku örneği disosiasyondan önce fikse edilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
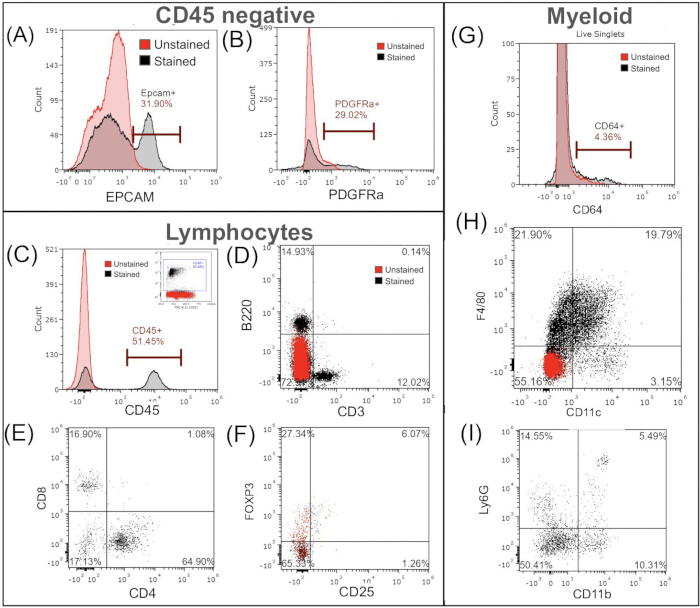
Şekil 3: Dissosiye dokuların akış sitometrik analizi. İmün hücrelerin varlığını ve canlılığını doğrulamak için temsili BALB ve BALB NeuT örnekleri analiz edilmiştir. Hücreler önce canlılık açısından kapılanmış (gate), ardından alt grup tanımlaması öncesinde tekli hücreler (singlets) belirlenmiştir. Epitel ve stromal soy hücrelerin geri kazanıldığından emin olmak için öncelikle bunlar değerlendirilmiştir. Epitel kaynaklı hücreleri tanımlamak için EpCAM (A), fibroblastları tanımlamak için ise PDGFRa (B) kullanılmıştır. İmmün popülasyonları değerlendirmek amacıyla, meme bezindeki toplam hücrelerin %51'inin CD45-pozitif olduğu belirlenmiştir (C). Dissosiye fare meme dokusundan B hücresi (B220+) ve T hücresi (CD3+) popülasyonları elde edilmiş (D), tümör dokusundan ise CD8+ ve CD4+ popülasyonları alt kapılama ile belirlenmiştir (E). Bu protokolün nadir hücre popülasyonlarını etkili bir şekilde izole edip edemeyeceğini belirlemek için (F) tümör dokusundaki Treg hücreleri Foxp3+ ekspresyonu kullanılarak değerlendirilmiştir. Bu işlem, önce CD3+ ve CD4+ popülasyonu kapılanarak ve bu popülasyon içerisinde Foxp3+ ve CD25+ olan hücreler (yaklaşık %6) tanımlanarak gerçekleştirilmiştir. (G) Tümör dokusundan CD64+ makrofajların değerlendirilmesi. (H) CD11b+ hücreler, F4/80 ve CD11c ekspresyonu açısından daha ayrıntılı analiz edilmiş ve F4/80− CD11c+ hücreler dendritik hücreler olarak tanımlanmıştır. (I) Nötrofiller; CD45+, Ly6G+ ve CD11b+ eksprese eden ancak F4/80− olan hücreler olarak tanımlanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
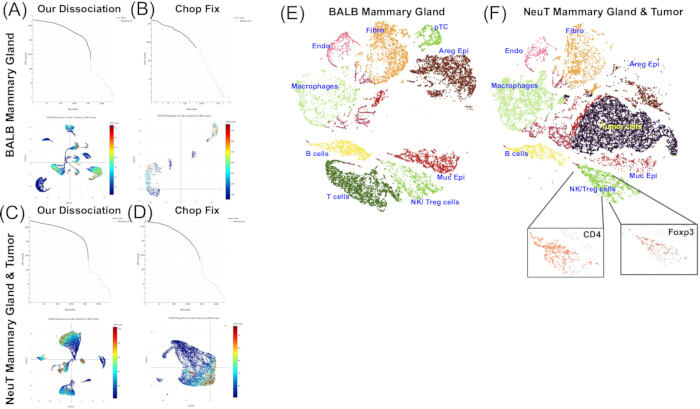
Şekil 4: scRNA-Seq Kütüphanelerinin Değerlendirilmesi. scRNA-Seq kütüphaneleri oluşturmak için fikse edilmiş örnekler kullanılmıştır; ya burada açıklanan canlı hücre ayrıştırma protokolü uygulanmış ve ardından bu makalede bildirildiği gibi fiksasyon yapılmış ya da önerilen ticari önce-fiksasyonlu ayrıştırma protokolü kullanılmıştır. (A) Canlı hücre ayrıştırma BALB meme bezi scRNA-Seq kütüphanesi için kalite kontrolü. 16.182 hücre sekanslanmış, okumaların %97,1'i hücreler içinde güvenle eşleşmiş ve %98,8'i filtrelenmiş prob setine güvenle eşleşmiştir. Üstte "knee bend" grafikleri, altta ise UMAP projeksiyonları gösterilmiştir. Keskin bir "knee bend" ve belirgin hücre kümeleri, yüksek kaliteli kütüphanelere işaret eder. (B) Ticari önce-fiksasyonlu ayrıştırma protokolü ile hazırlanan BALB meme bezi scRNA-Seq kütüphanesinin kalite değerlendirmesi, "knee bend" eksikliğini ve az sayıda hücreyi (n = 720) göstermektedir. (C) BALB NeuT meme scRNA-Seq kütüphanesi, burada açıklanan protokolle oluşturulmuştur. 18.077 hücre sekanslanmış, okumaların %97'si hücrelerle ve %98,9'u filtrelenmiş prob setiyle eşleşmiştir. Keskin bir "knee bend" ile birlikte belirgin kümeler, iyi kaliteyi kanıtlarken; ticari önce-fiksasyonlu ayrıştırma protokolü ile hazırlanan BALB NeuT kütüphanesi (D) sekanslanan 7.119 hücre boyunca zayıf bir "knee bend" ancak belirgin olmayan hücre kümeleri göstermektedir. Kütüphane oluşturulmasının ardından, BALB ve BALB NeuT meme bezi kütüphanelerini entegre etmek için Cell Ranger kullanılmış, ardından doğrudan karşılaştırma için Loupe Cell Browser'da K-Means kümelemesi yapılmıştır. T-SNE grafiklerinde (E,F) gösterildiği gibi, BALB/c meme bezini oluşturan hücreler on benzersiz küme ile tanımlanmıştır. NeuT transgenik (F) meme bezinde, ek bir tümör hücresi popülasyonu mevcuttu. Lenfosit kümesi içinde, Cd4- ve CD8a eksprese eden hücreler her yere dağılmıştır. Cd4 ekspresyonu ekte gösterilmiştir. Foxp3 ekspresyonu ile tanımlanan düzenleyici T hücreleri, ayrı bir küme oluşturacak kadar çok değildi ancak vurgulanmış özellik grafiğinde gösterildiği gibi T hücreleri ile kümelenmişlerdi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
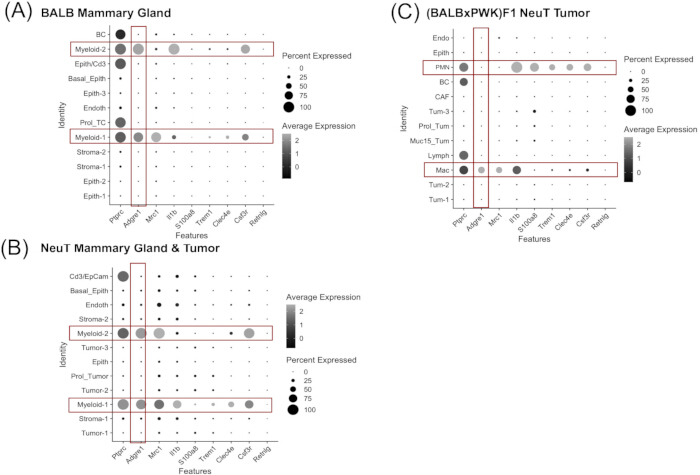
Şekil 5: Nötrofillerin (PMN) tanımlanması. PMN'ler, düşük RNA transkript seviyeleri ve zayıf Ly6g ekspresyonları nedeniyle scRNA-Seq kütüphanelerinde tanımlanması oldukça zor hücrelerdir. scRNA-Seq kütüphanelerindeki PMN'ler, Cell Ranger'daki ‘count’ komutu kullanılarak ve komut satırına ‘force cell = 8000’ seçeneği eklenerek tanımlanabilir. Bu analiz hem BALB (A) hem de BALB NeuT (B) meme bezi kütüphaneleri için gerçekleştirilmiştir, ancak çok az hücre PMN-spesifik genleri eksprese etmiştir. BALB ve BALB NeuT'teki tüm myeloid hücre kümeleri ayrıca Adgre1 (F4/80) ve Mrc1 (CD206) eksprese etmiştir. Myeloid popülasyonlardaki çok az sayıda hücre PMN-spesifik genler olan S100a8, Trem1 ve Clec4e'yi eksprese eder. Ancak bu bulgu, modelin BALB arka planından kaynaklanmaktadır; zira burada açıklandığı üzere (C), (BALBxPWK)F1 NeuT dişi farelerden disosyasyon tekniği kullanılarak hazırlanan scRNA-Seq kütüphanelerinde, force cell komutu olmadan, PMN-spesifik genleri eksprese eden ancak Adgre1 eksprese etmeyen bir hücre kümesi olduğu gözlemlenmiştir. Bu durum, söz konusu disosyasyon protokolünün diğer myeloid popülasyonların yanı sıra PMN'leri de gerçekten yakalayabildiğini vurgulamaktadır. Kırmızı dikdörtgen kutular Adgre1 eksprese eden kümeleri belirtmektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| BALB NeuT Tümörü | Akış Sitometrisi | tek hücreli RNA dizileme (scRNA-Seq) |
| CD3 / Lenfositler | toplam hücrelerin %6'sı (CD45+ hücrelerin %12'si) | toplam hücrelerin %7'si |
| CD4 / Cd4 | toplam hücrelerin %3,9'u (CD45+CD3+ hücrelerin %65'i) | toplam hücrelerin %4'ü |
| CD8 / Cd8a | toplam hücrelerin %1'i (CD45+CD3+ hücrelerin %17'si) | toplam hücrelerin %0,9'u |
| Foxp3 / Foxp3 | toplam satışların %0,8'i (CD3+CD4+ hücrelerinin %33'ü) | toplam hücrelerin %0,7'si |
| F4/80 / Adgre1 | toplam hücrelerin %20'si | toplam hücrelerin %16'sı |
| CD64 / Fcgr1 | NT | toplam hücrelerin %14'ü |
| PMN/nötrofiller | toplam hücrelerin %2'si (CD45+ hücrelerin %5'i) | toplam hücrelerin %0,05'i |
| PDGFRa (CD140a) / Stroma | toplam hücrelerin %29'u | toplam hücrelerin %10'u |
| EpCAM / Epitel | toplam hücrelerin %32'si | toplam hücrelerin %54'ü |
| NT, test edilmedi |
Tablo 1: Tek hücreli RNA sekanslama ve akış sitometrisi dahil olmak üzere, aşağı akış teknikleri kullanılarak bu disosiasyon protokolünden elde edilen hücre yüzdelerinin karşılaştırılması.
Tartışma
Bu disosiyasyon protokolü,le parent dokuyu temsil eden popülasyonlardan oluşan tek hücreli süspansiyonları tutarlı bir şekilde üretir. Meme dokusundan daha büyük fibroblastlar ve adiposit kök hücreleri dahil olmak üzere temsilci hücre tiplerini izole etmek için 500 x g merkezkaç kuvveti kullanılmıştır14,21,22. Canlılık ve hücre yüzey epitopları; immün, epitel ve stromal popülasyonlar dahil olmak üzere birçok hücre tipinde güvenilir bir şekilde korunur. Bu disosiyasyon protokolünün lojistik avantajlarından biri, özel makinelere ihtiyaç duymadan, başlangıç doku toplamasından ileri işlemler için hazır temiz bir hücre süspansiyonuna geçmek için gereken sürenin nispeten kısa olmasıdır. Genel olarak, bu iş akışının baştan sona tamamlanması yaklaşık üç saat sürer; bu durum, örneğin gece boyunca enzime maruz kalmasını gerektirebilen benzer enzimatik disosiyasyon protokollerine göre bir avantajdır. Bu protokol geliştirilmiş ve 2023'ten beri sunulan formatta bu ve diğer laboratuvarlarda kullanılmıştır. Sadece son 6 ayda laboratuvar, benzer sonuçlerle protokolü 37 kez uygulamış ve tüm eğitim seviyeleri bunu başarıyla tamamlamıştır. Akış sitometrisi ve scRNA-Seq kütüphanesi oluşturmanın yanı sıra protokol, ex vivo fonksiyonel analiz için tümöre sızan lenfositlerin (TIL) ve tümör ilişkili makrofajların (TAM) izole edilmesinde kullanılmıştır. Sonuçlar, disosiyasyon protokolünün ana hücre popülasyonlarını tanımlayabildiğini gösterse de, akış sitometrisi ve scRNA-Seq'in temel olarak farklı olduğunu belirtmek önemlidir. Akış sitometrisi, hücreleri tek hücre düzeyinde birden fazla markörün ekspresyonu açısından incelemek için tasarlanmıştır ve bu amaca ulaşmak için kapılama (gating) ve alt-kapılama (sub-gating) yöntemlerini kullanır. scRNA-Seq ise, kapılama ve alt-kapılama yapmadan bir hücre kümesi genelindeki gen ekspresyonu değişikliklerini tanımlamak için tasarlanmıştır.
Protokolün sorun giderme süreci şunları içermiştir: 1) Eksik sindirim: Doku örneklerinin sindirimi, fiziksel disosyasyondan yüksek düzeyde etkilenir. Dokuyu, parçaların boyutlarını gözlemlemek için yayarak bir macuna benzeyene kadar inceleyin. Bu adım genellikle beklenenden daha uzun sürer. Eksik disosyasyon, immün hücrelere kıyasla daha az sayıda stromal ve epitelyal hücre ile sonuçlanır. 2) Düşük canlılık: Hücre canlılığı, sindirim süresinden ve kollajenaz tip II ile kollajenaz D arasındaki 2:1 oranının korunduğundan emin olunmasından etkilenir. Kollajenaz tip II eksikliği, hücre canlılığının önemli ölçüde azalmasına neden olur. Ayrıca, örnek canlılığı %70–85 arasındaysa, ticari olarak mevcut ölü hücre uzaklaştırma sistemleri canlılığı artırmada etkilidir ve örnekler scRNA-Seq kütüphane oluşturma aşamasına gönderilmeden önce kullanımları önerilir. 3) Yüksek hücre kalıntısı: Hücre kalıntıları genellikle fiziksel disosyasyon ve sindirimin yan etkisidir. Kalıntılar, en etkili şekilde bir yoğunluk gradyanı medyumu veya yoğunluğu önemli ölçüde azaltılmış ticari bir kalıntı uzaklaştırma çözeltisi kullanılarak temizlenir. 4) Yetersiz pelet geri kazanımı: Yetersiz örnek geri kazanımı, öncelikle başlangıç doku miktarından etkilenir. Bu protokol, 2 meme bezi veya 10 ile 20 mg arasında değişen orta büyüklükteki tümörler için optimize edilmiştir. Başlangıç örnek boyutu tek bir meme bezinden daha azsa veya tümör ~200 mm3'ten küçükse, hücre verimi düşük olacaktır. Doku boyutları küçükse, hacimler %50 oranında azaltılabilir. Benzer şekilde, büyük tümörler veya birden fazla meme bezi varsa (4'ten fazla meme bezi veya ~25 mg'dan büyük tümörler), hacimler 1,5 × oranına artırılabilir. ~25 mg'dan büyük örnekler işlem için bölünmelidir. 5) Düşük scRNA-Seq kalitesi: scRNA-Seq kütüphanelerinin kalitesi neredeyse tamamen kaynak örneğin kalitesine bağlıdır. Tümör dokularıyla çalışırken, başlangıç jel-boncuk emülsiyonu (GEM) ve cDNA oluşturma zamanlaması esastır. Bu nedenle, prob tabanlı sabitlenmiş-RNA tek hücreli kimya sistemi gibi, doğal olarak anında RNA fiksasyonuna geçiş sağlayan bir protokole sahip olmak, örnek kalitesini etkileyen bir değişken olan zaman faktörünü ortadan kaldırır. Bununla birlikte, scRNA-Seq hattına girmeden önce RNA kalitesini değerlendirmek, sonuçta oluşan kütüphanelerin bilgi verici olmasını sağlar. 6) Beklenenden düşük hücre kümeleri: scRNA-Seq sonuçları birkaç benzersiz kümede düşük düzeyde gen ekspresyonu gösterdiğinde, okuma sayısını (sekanslama derinliğini) artırmak için kütüphaneler tekrar sekanslanabilir. Ek olarak, çalışma yalnızca immün hücreleri hedefliyorsa, kütüphane oluşturmadan önce CD45+ popülasyonunun saflaştırılması sekanslama hassasiyetini artıracaktır.
Yukarıda referans verilen ticari fiksasyon ve dissosiasyon protokolü, adipoz doku işleme sürecinde zorluklarla karşılaşmıştır. Temel olarak, fikse edilmiş adipoz doku yüzeyde kalmış ve daha fazla dissosiye edilmesi ile etkili şekilde filtrelenmesi zorlaşmıştır. Bu nedenle, burada kullanılan ticari fiksasyon ve dissosiasyon protokolü için adipoz doku önerilmemektedir. Dokunun tek hücreli süspansiyona dissosiasyonundan önce fikse edilmesi, fiksasyon sonrası viabilite ölçümleri ve dissosiasyon gibi kalite kontrol adımlarını ortadan kaldırmıştır. Bu durum, doku dissosiasyon sürecinde gerekli bir adım olan, örneklerin alt akış scRNA-seq gönderimi öncesinde kalite tahmini yapılmasını zorlaştırmıştır. Alt akış scRNA-Seq için doku fiksasyonu RNA'yı degrade edebilir. RNA kalitesi, fikse edilmiş hücre örneklerinde nükleotid (nt) okuma uzunluğu incelenerek değerlendirilebilir. Örnekte >200 nt okumaya sahip olan yüzdesi ne kadar yüksekse, kalite o kadar iyidir. RNA bütünlük skoruna sahip örneklerin >%30'u >200 nt okumalara sahip olacaktır ve bu örnekler daha sonra yüksek güvenilirlikle scRNA-Seq kütüphaneleri oluşturmak için kullanılabilir. Burada rapor edilen BALB meme bezi ve BALB NeuT tümör dokularından alınan fikse örnekler, sırasıyla okumaların %83 ve %82'sinin >200 nt olduğunu göstermiştir.
Meme bezleri gibi yüksek yağ içeriğine sahip dokular, adipositlerin yüksek kaliteli hücre preparasyonlarının oluşturulmasını engelleyebilmesi nedeniyle sorun teşkil eder. Çoğu adiposit konik tüpün üst kısmında kalır ve vakum altında veya süpernatant dökülerek uzaklaştırılabilir. New Zealand Obese (NZO) kökenli dişiler gibi aşırı yağlı meme bezlerinin, adipositlerin uzaklaştırılmasını kolaylaştırmak için tüpün üst kısmının temiz, tüy bırakmayan bir laboratuvar mendili ile silinmesini ve ardından yağın tamamen temizlenmesi için ek yıkama adımlarını gerektirdiğini tespit ettik. Meme dokuları ayrıca daha düşük verim verme eğilimindedir. Bu sorunu hafifletmek için, hücre verimini artırmak amacıyla örnekler mümkün olduğunda birleştirilir. Çok sert tümörler için, yüksek canlılıkta tek hücreler oluşturmak için gereken süre içinde kollajenazların sindirmesi gereken yüzey alanını azaltmak adına uygun şekilde kıyma işlemi yapılması esastır.
Buna rağmen, bu protokolün bazı sınırlamaları vardır. Heterojen bir hücre karışımı elde edilirken epitelyal hücrelerin tamamen sindirilerek tek hücre süspansiyonuna dönüştürülmesi zorlayıcıdır. BALB NeuT meme tümörleri genellikle, bir tümör kapsülü ve güçlü bir stromal bileşen ile birlikte sert yapıdadır. Buna karşılık, infiltre olan bağışıklık hücrelerinin toplanması enzime çok az maruz kalmayı gerektirir ve aşırı maruziyet fenotipik durumlarını değiştirebilir. Bu nedenle, infiltre nötrofilleri de içeren bu çeşitli hücre tipi yelpazesinin kalitesini korumak için tümör ve stromal hücrelerin toplanmasında orta bir yol bulunmalıdır. Dolayısıyla, bu protokol ile elde edilen epitelyal ve stromal hücre oranları, ana dokuda gerçekte temsil edilen oranlardan daha düşük olabilir. Bu protokol, yüksek canlılığa sahip ancak heterojen ve yüksek kaliteli bir hücre örneği toplamak için en iyi uygulamaları belirlemek amacıyla, kolajenaz enzim oranlarını ve disosiasyon sürelerini değerlendiren birçok deneme ile optimize edilmiştir. Bu protokol kullanılarak planlanan gelecek çalışmalar, tedavi için uygun fırsat pencerelerini belirlemek amacıyla, meme tümörlerinin başlangıcı ve ilerlemesi sırasında infiltre olan bağışıklık hücrelerinin ex vivo fonksiyonel analizlerini içermektedir.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
Burada sunulan veriler, kısmen Michigan State Üniversitesi Araştırma Ofisi tarafından desteklenen Genomics Core (RRID: SCR_012406) bünyesindeki cihazlar kullanılarak elde edilmiştir. & İnovasyon.
Bu çalışma CA278818 tarafından finanse edilmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| DNaz | Invitrogen | 18047019 | |
| Kollajenaz D | Sigma | 11088866001 | |
| Kollajenaz II | Worthington Biochemical | LS004177 | |
| Fetal bovine serum | VWR | 97068-085 | |
| 10x PBS | Gibco | 70011-044 | |
| Sodyum azid | VWR | 0639-250G | |
| MACS Smart Strainer, 70 µm | Miltenyi Biotec | 130-110-916 | |
| MACS Smart Strainer, 30 µm | Miltenyi Biotec | 130-110-915 | |
| EDTA | Millipore | 324506-100ML | |
| 10x RBC Lizis Tamponu | eBioscience/Invitrogen | 00-4300-54 | |
| Foxp3/Transkripsiyon Faktörü Fiksasyon/Permeabilizasyon kiti | eBioscience/Invitrogen | 00-5523-00 | |
| Brilliant Boyama Tamponu | Invitrogen | 00-4409-42 | |
| Mojosort Ölü Hücre Uzaklaştırma Kiti | Biolegend | 580157 | |
| Mojosort Tamponu (5x) | Biolegend | 480017 | |
| Quick-RNA Miniprep Plus Kiti | Zymo Research | R1057 | |
| Tümör Disosiasyon kiti, fare | Miltenyi Biotec | 130-096-730 | |
| PDGFRα PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | BioLegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| Sabitleme Yapılabilir Canlılık Boyası eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| FOXP3 APC | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | Biolegend | 101320 | |
| 10x Genomics GEM-X Flex Gen Ekspresyon Reaktif Kiti | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 clinical-ffpe-samples);1000781 | |
| Attune NxT Akış Sitometresi | Thermo Fisher Scientific | Kırmızı, mavi ve viyole lazer kanalları ile akış sitometrisi verilerinin toplanmasında kullanılır. | |
| FCS Express | De Novo Yazılımı | Akış sitometrisi verilerinin analizi için kullanılır. | |
| Miltenyi Tümör Disosyasyon kiti | ticari bir tümör disosiyasyon kiti | ||
| Miltenyi kiti / Miltenyi protokolü | ticari kit" veya "referans kit | ||
| Liberase enzimi | ticari bir termolizin/kolajenaz karışımı | ||
| Chop Fix | ticari bir önce-fiksasyonlu disosiyasyon protokolü | ||
| Esnek kimya / Esnek kimya sistemi | prob tabanlı, fikslemiş RNA tek hücre kimyası | ||
| Seurat | (https://satijalab.org/seurat/) | açık kaynaklı ve ticari kümeleme araçları | |
| Cell Ranger | açık kaynaklı ve ticari kümeleme araçları | ||
| Loupe Hücre Tarayıcısı | açık kaynaklı ve ticari kümeleme araçları | ||
| EnrichR | https://maayanlab.cloud/Enrichr/) | gen seti zenginleştirme ve referans hücre atlası araçları | |
| Tabula Muris | https://tabula400 muris.sfczbiohub.org/visualizations | gen seti zenginleştirme ve referans hücre atlası araçları | |
| Tabula Sapiens | https://tabula-sapiens.sf.czbiohub.org/ | gen seti zenginleştirme ve referans hücre atlası araçları | |
| Cellometer K2" cihaz ve "akridin oranj / propidyum iyodür (AOPI)" | akridin oranj/propidyum iyodür (AO/PI) canlılık boyamalı otomatik bir hücre sayıcı | ||
| Kimwipe | tüy bırakmayan bir laboratuvar temizleme bezi | ||
| STEMCELL Technologies | bir yoğunluk gradyanlı ortam (örneğin, Ficoll veya Percoll tipi bir ortam) | ||
| Ficoll/Percoll | #10 bistüri uçları | ||
| iki adet 10 numara bistüri | |||
| Cellometer K2 + AOPI reaktifi | akridin oranj/propidyum iyodür (AO/PI) canlılık boyamalı otomatik bir hücre sayıcı | ||
| STEMCELL Technologies | KÖK HÜCRE Teknolojiler, www.stemcell.com, 2018 | ||
| Ficoll/Percoll | bir yoğunluk gradyanlı ortam | ||
| 10 numaralı bistüri | cerrahi neşter ucu | ||
| Foxp3/Transkripsiyon Faktörü Sabitleme/Permeabilizasyon kiti | çekirdek içi boyamaya olanak tanıyan ticari olarak mevcut çözelti |
Kaynaklar
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında