GFAP agregasyonunun, patolojik modifikasyonun ve astrosit disfonksiyonunun incelenmesine olanak tanıyan, Alexander hastalığının (AxD) çalışılması için fizyolojik olarak ilgili bir sistem sağlayan primer sıçan astrosit modeli geliştiriyoruz. Bu sistem, in vitro ve in vivo çalışmaları birbirine bağlayarak AxD patolojisini keşfetmek ve nörodejeneratif hastalıklar için terapötik hedefler belirlemek adına güçlü bir platform sunmaktadır.
Yöntem makalesi
Alexander Hastalığının İncelenmesi İçin Hücresel Modeller: Primer Sıçan Astrositlerinin Fonksiyonel Analizi
Bu makalede
Özet
Özet
Astrositler, merkezi sinir sistemi homeostazının sürdürülmesinde, nöronal fonksiyonların desteklenmesinde ve yaralanma veya hastalıklara yanıt verilmesinde hayati bir rol oynarlar. Astrosit aktivitesindeki disfonksiyonlar, glial fibriler asidik protein (GFAP) mutasyonlarının neden olduğu nadir ve ölümcül bir durum olan Alexander hastalığı (AxD) dahil olmak üzere nörodejeneratif bozuklukların temel bir bileşeni olarak giderek daha fazla kabul edilmektedir. Bu mutasyonlar GFAP agregasyonuna, Rosenthal lifi oluşumuna ve progresif astrosit disfonksiyonuna yol açar. in vivo hayvan modelleri karmaşık bir hücresel ortam sunsa da, hem mevcut in vitro hem de in vivo modeller, astrositlerin karmaşık hücresel bağlamını ve fonksiyonlarını doğru şekilde kopyalamada sınırlamalarla karşı karşıyadır. Bunu gidermek amacıyla, GFAP mutasyonlarının fonksiyonel etkilerini incelemek için yaban tipi (WT) ve AxD model sıçanlardan türetilen primer sıçan astrositlerini kullanan bir hücresel model geliştirdik. Fizyolojik olarak ilgili olan bu sistem; GFAP agregasyonu, oksidatif stres yanıtları ve patolojik modifikasyonlar dahil olmak üzere astrosite özgü mekanizmaların detaylı araştırılmasına olanak tanır. AxD model sıçanlara erişimi olmayan araştırmacılar için lentiviral transdüksiyon, normal sıçanlardan türetilen astrositlere AxD ile ilişkili GFAP mutasyonlarını aktarmak için alternatif bir yöntem sunarak bu yaklaşımın uygulanabilirliğini genişletir. Ölümsüzleştirilmiş astrosit hücre hatları veya rekombinant protein kullanan in vitro çalışmalarla karşılaştırıldığında, primer astrositler doğal hücresel mimariyi ve moleküler profilleri daha iyi koruyarak; GFAP dinamikleri, çözünürlüğü ve oksidatif hasar ile patolojik modifikasyonlar gibi stresörlere karşı astrositik yanıtların incelenmesi için sağlam bir platform sunar. Bu hücresel model, moleküler ve sistemik çalışmalar arasındaki boşluğu doldurarak AxD'deki astrosit disfonksiyonunu keşfetmek için kontrollü bir deneysel çerçeve sağlar. Mevcut metodolojileri tamamlayan primer astrosit kültürleri, AxD patolojisine dair anlayışımızı artırır ve nörodejeneratif hastalıklar için potansiyel terapötik hedeflerin belirlenmesinde değerli bir araç teşkil eder.
Giriş
Astrositler, tüm merkezi sinir sistemine (MSS) yayılan, beyin homeostazının korunmasında, nöronal aktivitenin düzenlenmesinde ve yaralanma veya hastalıklara yanıt verilmesinde kritik roller oynayan özelleşmiş glial hücrelerdir1. Fonksiyonları arasında nörotransmitter temizliği ve geri dönüşümü, hücre dışı iyon ve su homeostazı ile nöral devre fonksiyonlarının desteklenmesi yer alır. Astrositler tarafından salgılanan moleküller, yetişkin beyinde sinaps gelişimi ve sinaptik plastisite için gereklidir2. MSS yaralanması veya hastalığına yanıt olarak astrositler, bağlama bağlı olarak nöroprotektif fonksiyonlar sağlayabilen ancak potansiyel olarak MSS patolojilerine katkıda bulunabilen, pro-inflamatuar veya anti-inflamatuar sinyallemeyi iletebilen reaktif değişiklikler geçirirler3. Astrosit fonksiyonunun düzensizliği, MSS sağlığı ve hastalıklarında giderek daha fazla temel bir faktör olarak kabul edilmektedir4,5.
Tip III bir ara filaman (IF) proteini olan glial fibrilier asidik protein (GFAP), çoğu astrositte ifade edilen ancak tümlerinde bulunmayan, astrositlerin temel birleşenlerinden biri olan bir hücre iskelet proteinidir. GFAP, MSS yaralanmalarına yanıt olarak yukarı regüle edilir ve doku hasarının şiddeti için bir belirteç görevi görür6. GFAP geleneksel olarak yapısal rollerle ilişkilendirilse de7, fonksiyonel etkileri henüz yeterince araştırılmamıştır. GFAP'deki mutasyonlar; GFAP agregasyonu, Rosenthal lifi oluşumu ve progresif astrosit disfonksiyonu ile karakterize nadir bir nörodejeneratif hastalık olan Alexander hastalığına (AxD) yol açar8. In vitro biyokimyasal çalışmalar9,10,11 ve in vivo hayvan modelleri12,13 AxD patolojisine dair bilgiler sağlamış olsa da, astrosit fonksiyonunun karmaşık hücresel bağlamını yakalamakta yetersiz kalmaktadırlar14.
Bu sınırlamaları aşmak için, yaban tipi (WT) ve AxD model sıçanlardan türetilen primer sıçan astrositlerini kullanan bir hücresel model geliştirdik13. Bu sistem, astrositlerin doğal hücresel mimarisini ve moleküler profillerini koruyarak GFAP agregasyonu, oksidatif stres yanıtları ve AxD ile ilişkili patolojik modifikasyonların incelenmesine olanak tanır. AxD model sıçanlara erişimi olmayan araştırmacılar için lentiviral transdüksiyon, normal sıçanlardan türetilen astrositlere AxD ile ilişkili GFAP mutasyonlarını aktarmak için alternatif bir yöntem sunar10.
Ölümsüzleştirilmiş hücre hatlarıyla karşılaştırıldığında, primer astrositler astrosit popülasyonlarının in vivo heterojenliğini ve karmaşıklığını koruyarak, astrosite özgü mekanizmaların araştırılması için fizyolojik olarak ilgili bir platform sağlarlar15. Rekombinant protein kullanılan in vitro çalışmaların aksine9, primer astrositler doğal olarak GFAP ve diğer astrosite özgü markerları eksprese eder; bu da hastalıkla ilişkili varyantların yerli bir hücresel ortamda incelenmesine olanak tanır10,16,17. Ayrıca primer astrositler, basitleştirilmiş in vitro sistemlerde tekrarlanması zor olan oksidatif hasar18 ve inflamasyon19 gibi stres stimülasyonlarına verilen fonksiyonel yanıtların araştırılmasını kolaylaştırır.
AxD araştırmalarında, primer astrositler moleküler ve sistemik çalışmalar arasındaki boşluğu doldurarak biyokimyasal ve in vivo yaklaşımları tamamlar. Biyokimyasal analizler GFAP mutasyonlarının moleküler özelliklerine odaklanırken hücresel karmaşıklııktan yoksundurlar; in vivo modeller ise sistemik etkileri yakalar ancak mekanistik hücresel çalışmalar için daha az uygundur. Primer astrositler, hastalık mekanizmalarını anlamak ve terapötik hedefleri belirlemek için hücresel modelleri vurgulayan nörodejeneratif hastalık araştırmalarındaki güncel eğilimlerle uyumlu olarak, hücresel karmaşıklık ve deneysel kontrol sunan ara bir sistem sağlar20.
Bu çalışma, AxD araştırmaları için hücresel bir model olarak primer sıçan astrositlerinin geliştirilmesini ve uygulanmasını sunmaktadır. WT ve AxD astrositleri arasında doğrudan karşılaştırmaya olanak tanıyan bu yaklaşım, alternatif tekniklerin temel sınırlamalarını gidermekte ve lentiviral transdüksiyon yoluyla erişilebilirliği genişletmektedir. Bu bulgular, AxD'deki astrosit disfonksiyonunun daha derinlemesine anlaşılmasına katkıda bulunmakta ve nörodejeneratif hastalıklarda terapötik keşiflerin ilerletilmesi için değerli bir araç sunmaktadır.
Protokol
Bu protokolde kullanılan hayvanlar, National Tsing Hua University Yaşam Bilimleri ve Tıp Fakültesi Kurumsal Hayvan Bakım ve Kullanım Komitesi tarafından onaylanmış olup (NTHU IACUC Onay No. 109088 ve 111060) Laboratuvar Hayvanlarının Bakımı ve Kullanımı için Tarım Kılavuzu yönergelerine uygundur.
1. Besiyerlerinin, lamelllerin, kapların ve plakaların hazırlanması
- Başlamadan önce, aşağıdaki çözeltilerin (Tablo 1) hazırlandığından ve kullanıma hazır olduğundan emin olun.
- Steriliteyi sağlamak için makas ve pensleri kullanmadan önce otoklavlayarak sterilize edin.
- Borik asit tamponunda 0.02 mg/mL konsantrasyonunda poli-L-lizin (PLL) çözeltisi hazırlayın.
- Lamel yüzeyini veya kültür kabı/plakasının tabanını tamamen kaplayacak kadar PLL çözeltisi ekleyin. Kaplamanın eşit olduğundan emin olun.
- PLL kaplı lamelleri ve kapları, laminar akışlı kabin içerisinde oda sıcaklığında gece boyunca inkübe olmaya bırakın.
- Ertesi gün, PLL çözeltisini dikkatlice uzaklaştırın. Kalan PLL'yi temizlemek için kaplanmış lamelleri veya kabı/plakayı taze steril su ile üç kez durulayın.
NOT: Hücre canlılığını olumsuz etkileyebilecek kalıntı PLL'yi uzaklaştırmak için PLL kaplı flask/plaka veya lamellerin iyice durulanması kritiktir.
2. Primer astrosit kültürünün hazırlanması
NOT: Şematik bir genel bakış Şekil 1'de gösterilmiştir.
- Yavruların buz üzerine yerleştirilmesiyle hipotermi indüksiyonu yapıldıktan sonra, postnatal 1–3 günlük sıçan yavrusunu dekpite edin ve başı gövdeden ayırın.
- Başı 60 mm'lik bir kaba yerleştirin ve yanlarını pensle sabitleyin. İnce bir makas kullanarak başın üst kısmındaki deriyi nazikçe disseke edin.
- Kafatasını dikkatlice açmak için ince bir makasla başın vertex bölgesinden bir insizyon yapın. Kafatasının iki yarısını nazikçe ayırın ve çıkarın.
- Pens kullanarak beyni tabandan koparın ve diseksiyon medyumu içeren 60 mm'lik bir kaba aktarın.
- Medyan hat yapılarını ortaya çıkarmak için her iki hemisferi de medial yüzey yukarı bakacak şekilde yerleştirin.
- Bir diseksiyon mikroskobu altında, korteks ve hipokampusu içeren hemisferleri sağlam bırakarak orta beyin ve beyin sapı dokularını nazikçe çıkarın.
- Meninksleri, ideal olarak tek bir parça halinde nazikçe soymak için ince pens kullanın. Yarıklar içinde gizli kalmış herhangi bir meninks olup olmadığını dikkatlice kontrol edin ve bunları tamamen temizleyin.
- Disseke edilmiş beyin dokusunu laminer akışlı kabine taşıyın. 1 mL'lik bir pipetle diseksiyon medyumunu aspire edin ve taze diseksiyon medyumu ekleyin.
- Dokuyu steril bir skalpel bıçağıyla ince ince doğrayın.
- Doğranmış dokuyu 15 mL'lik bir tüp içindeki 5 mL dissekasyon medyumuna aktarın. Tüpü 37ºC su banyosunda 15 dakika inkübe edin ve uygun enzim-doku etkileşimini sağlamak için tüpü her 5 dakikada bir nazikçe çalkalayın.
- İnkübasyon sonrası dokunun tüpün dibine çökmesini bekleyin. Süpernatantı aspire edin ve 5 mL dissekasyon medyumu ekleyin.
- Dokuyu yıkamak için tüpü 5 kez altüst edin. Dokunun çökmesi için tüpü 3 dakika bekletin, ardından taze dissekasyon medyumu kullanarak yıkama işlemini üç kez tekrarlayın.
- Son yıkamadan sonra süpernatantı uzaklaştırın ve 2,5 mL dissekasyon medyumu ile 2,5 mL bakım medyumu ekleyin.
- 10 mL'lik bir pipet kullanarak solüsyonu 10–15 kez aşağı yukarı geçirerek dokuyu tritüre edin.
- Dokunun çökmesi için tüpü 3 dakika bekletin. Süpernatantı (hücreleri içeren) yeni bir 50 mL'lik konik tüpe aktarın.
- Çökmüş dokuyu içeren orijinal tüpe 5 mL MEM medyumu ekleyin. Çoğu parça kaybolana kadar 10 mL'lik bir pipetle tekrar 10–15 kez tritüre edin.
- Hücre süspansiyonunu steril 40 µm'lik bir hücre süzgecinden geçirerek 5 mL bakım medyumu içeren temiz bir 50 mL'lik konik tüpe aktarın.
- Filtrelenmiş hücre süspansiyonunu oda sıcaklığında 200 × g'de 5 dakika santrifüj edin.
- Süpernatantı uzaklaştırın, ardından tüpe vurarak hücre peletini nazikçe gevşetin.
- 5 mL MEM medyumu ekleyin ve peleti yeniden süspand etmek için 10 kez pipetle aşağı yukarı çekin. Hücre sayımı sırasında hücre süspansiyonunu 37ºC su banyosunda tutun.
- 10 μL hücre süspansiyonunu 90 µL MEM medyumu ile seyreltin. 200 µL'lik bir pipet ucuyla iyice karıştırın.
- 20 μL seyreltilmiş hücre süspansiyonunu 20 µL trypan blue ile karıştırın. Hücreleri bir hemositometre kullanarak sayın.
- Hücreleri şu şekilde kültür kaplarına ekin: 24 kuyucuklu plaka için kuyucuk başına 2 × 10⁵ hücre; 6 kuyucuklu plaka için kuyucuk başına 5 × 10⁵ hücre; 6 cm'lik kap için kap başına 1 × 10⁶ hücre ekleyin.
- Plakaları veya kapları bir doku kültürü inkübatörüne yerleştirin. Hücrelerin uzun süre oda sıcaklığında kalmasından kaçının.
- Ekimi takip eden 4. saatte, hücrelerin substrata yapıştığından emin olmak için mikroskop altında inceleyin.
- Ekimi takip eden 24. saatte, kültür medyumunu taze bakım medyumu ile değiştirin.
- Medyumun yarısını taze bakım medyumu ile değiştirerek kültürü her 2–3 günde bir besleyin.
- 7 gün sonra hücreler yaklaşık %80 konfluensle ulaşmış olmalı ve deneyler için hazır olacaktır.
NOT: Astrosit kültürleri için optimal koşulları sağlamak amacıyla, kontaminasyonu önlemek için tüm adımları steril bir ortamda, tercihen laminer akışlı kabin içerisinde gerçekleştirin. Ayrıca, uygun olan tüm reaktiflerin 37°C'ye önceden ısıtıldığından emin olun. Meninksleri çıkarırken titiz olun; çünkü kalan herhangi bir meningeal doku kültürleri etkileyebilir. Ayrıca, hücre canlılığını ve bütünlüğünü korumak için ekim ve sayım sırasında hücrelerin uzun süre oda sıcaklığında kalmasından kaçının.
3. Lentiviral partiküllerin üretimi ve transduksiyon
NOT: Şematik bir genel bakış Şekil 2'de gösterilmiştir.
- HEK293T hücrelerini, taze kültür ortamı içeren 10 cm2 petri kabına ekleyin (Tablo 1).
- Hücreleri %50–60 konfluens düzeyine ulaşana kadar 37ºC'lik inkübatörde gece boyunca büyütün.
- 1 mL Opti-MEM içerisine; GFAP veya varyantlarını kodlayan 20 µg lentiviral plazmid, 5,6 µg paketleme vektörü ve 1,8 µg zarf vektörü ekleyin.
- DNA içeren çözeltiye 45 µL transfeksiyon reaktifi ekleyin.
- Nazikçe karıştırın ve oda sıcaklığında 15 dk inkübe edin.
- Transfeksiyon çözeltisini doğrudan HEK293T hücrelerine ekleyin ve 37°C'lik hücre kültürü inkübatöründe 4 sa boyunca inkübe edin.
- Transfeksiyon çözeltisini aspire edin ve taze kültür ortamı ile değiştirin.
- Hücreleri 2 gün boyunca kültüre etmeye devam edin.
- Hücre kültürü süpernatanını toplayın ve taze kültür ortamı ile değiştirin.
- Ertesi gün, hücre kültürü süpernatanını tekrar toplayın ve taze kültür ortamı ile değiştirin.
- Takip eden günde, son hücre kültürü süpernatanını toplayın.
- 3.9–3.11 adımlarındaki süpernatanları 50 mL'lik konik bir tüpte birleştirin.
- Kalıntıları uzaklaştırmak için birleştirilen süpernatanı 60 mL'lik bir şırınga kullanarak 0,45 µm'lik bir filtreden süzün.
- Ölü hücreleri uzaklaştırmak için filtrelenmiş süpernatanı oda sıcaklığında 1.400 × g'de 5 dk santrifüjleyin.
- Berraklaşmış süpernatanı ultrasantrifüj tüplerine aktarın.
- Lentiviral partikülleri peletlemek için 4°C'de 100.000 × g'de 70 dk santrifüjleyin.
- Tüpün dibindeki peleti rahatsız etmeden süpernatanı dikkatlice uzaklaştırın.
- Peleti, nazikçe pipetleme yaparak 600 µL Opti-MEM ortamında yeniden süspanse edin.
- Yeniden süspanse edilen lentiviral partikülleri 50 μL'lik alikotlara ayırın ve ihtiyaç duyulana kadar -80°C'de saklayın.
- Primer astrositleri 6 kuyucuklu bir plakaya ekleyin ve %50–70 konfluense ulaşmalarını sağlayın (Bölüm 2).
- Gerekli miktardaki lentiviral partikülleri buz üzerinde çözdürün.
- Her kuyucuğa, 8 µg/mL Polybrene ile desteklenmiş 50 µL lentiviral partikül ekleyin.
- Virüs ve Polybrene'in eşit dağılımını sağlamak için plakayı nazikçe dairesel hareketlerle sallayın. Hücreleri 37ºC'lik bir hücre kültürü inkübatöründe 4–8 sa inkübe edin.
- Hücreleri rahatsız etmemek için virüs içeren ortamı dikkatlice aspire edin.
- Ortamı taze kültür ortamı ile değiştirin ve 2–3 gün boyunca kültüre etmeye devam edin.
- Transdükte edilmiş hücreler üzerinde, ara filament ağ oluşumunu görselleştirmek için immünofloresan mikroskopi veya GFAP ekspresyonunu değerlendirmek için immunoblotting kullanarak alt analizleri gerçekleştirin.
NOT: Lentiviral partiküllerle çalışırken, güvenliği sağlamak için uygun kişisel koruyucu donanım (KKD) kullanılması kritik öneme sahiptir. Ek olarak, viral partiküllerin bütünlüğünü korumak için tekrarlanan dondurma-çözdürme döngülerinden kaçının.
4. İmmünofloresan mikroskopi
- Hücre ekilmiş lamelllerin bulunduğu kuyucuklardaki kültür ortamını nazikçe aspire edin. Hücreleri rahatsız etmekten kaçının.
- Aşağıdaki tespit çözeltilerinden birini ekleyerek hücreleri fikse edin: Primer astrositler için %3,2 (ağırlık/hacim) paraformaldehit; astrosit-nöron kültürü için %3,2 (ağırlık/hacim) paraformaldehit ve %4 (ağırlık/hacim) sakkaroz kullanın.
- Lamelleri fiksatif içerisinde oda sıcaklığında 15 dk inkübe edin. Aksi belirtilmedikçe, sonraki tüm adımları oda sıcaklığında gerçekleştirin.
- Fiksatörü uzaklaştırmak için fikse edilmiş hücreleri fosfat tamponlu salin (PBS) ile üç kez yıkayın.
- Hücreleri, bloklama tamponunda (%5 (hacim/hacim) normal keçi serumu içeren PBS) hazırlanmış %0,2 (hacim/hacim) Triton X-100 içerisinde 15 dk inkübe ederek permeabilize edin.
- Permeabilize edilmiş hücreleri PBS ile üç kez yıkayın.
- Antikoru, üreticinin önerdiği konsantrasyona göre bloklama tamponunda seyrelterek primer antikor çözeltisini hazırlayın.
- Lamelleri primer antikor çözeltisi içerisinde oda sıcaklığında en az 1 sa boyunca inkübe edin.
- Bağlanmamış primer antikoru uzaklaştırmak için lamelleri PBS ile üç kez yıkayın.
- Florofor konjuge keçi anti-fare ve keçi anti-tavşan sekonder antikorları bloklama tamponunda 1:500 dilüsyonda seyrelterek sekonder antikor çözeltisini hazırlayın.
- Lamelleri sekonder antikor çözeltisi içerisinde oda sıcaklığında 1 sa inkübe edin.
- Bağlanmamış sekonder antikoru uzaklaştırmak için lamelleri PBS ile üç kez yıkayın.
- Lamelleri cımbız kullanarak dikkatlice cam slaytlara aktarın.
- Floresansı korumak için lamelleri montaj medyumu ile sabitleyin.
- Hareketliliği ve evaporasyonu önlemek için lamel kenarlarını şeffaf oje ile nazikçe mühürleyin.
- Görüntüleme aşamasına geçmeden önce ojenin tamamen kurumasını bekleyin.
- Hazırlanan slaytlar, immunfloresan veya konfokal mikroskop kullanılarak görüntüleme için hazırdır.
NOT: Deneylerin başarısını sağlamak için PBS, bloklama tamponu ve antikorlar gibi tüm reaktifleri taze hazırlayın ve steriliteyi koruyun. Hücrelere zarar vermemek veya cam yüzeyi çizmemek için lamellere dikkatli davranın. Floresan sinyallerin fotoblaçingini önlemek için antikor inkübasyonu sırasında ve montajdan sonra örnekleri ışıktan koruyun. Ayrıca, antikor konsantrasyonlarını ve inkübasyon sürelerini spesifik deney düzeneğine göre optimize edin.
5. İmmünoblotlama
- Kalıntı ortamı ve döküntüleri uzaklaştırmak için astrositleri iki kez PBS ile yıkayın.
- Protein degradasyonunu minimize etmek için plakayı veya petri kabını buza yerleştirin. Her seferinde bir kuyucuk çalışarak, PBS'yi tamamen aspire edin.
- Proteaz ve fosfataz inhibitörleri içeren buz soğukluğunda radyoimmünopresipitasyon analizi (RIPA) tamponu ekleyin. 6 kuyucuklu bir plaka için kuyucuk başına 250 µL; 6 cm'lik bir petri kabı için kap başına 500 µL ekleyin.
- Tüm astrositleri RIPA tamponuna (50 mM Tris, pH 8.0, 150 mM NaCl, %1 (ağırlık/hacim) NP-40, 5 mM etilendiamintetraasetik asit (EDTA), %0.5 (ağırlık/hacim) sodyum desoksikolat ve %0.1 (ağırlık/hacim) SDS, 1 mM fenilmetilsülfonil florür [PMSF]) tamamen kazımak için bir hücre kazıyıcı kullanın.
- Kazınan hücreleri buz üzerinde bulunan 1 mL'lik bir Dounce homogenizatörüne aktarın. Hücreleri pestil ile nazikçe ezerek homogenize edin.
- Tam lizin gerçekleşmesini sağlamak için homogenize edilmiş hücre lizatlarını buz üzerinde 10 dk inkübe edin. Protein konsantrasyonunu bisinkinoninit asit (BCA) analizi ile belirlemek için toplam lizatlardan 20 µL ayırın.
- Çözünmeyen proteinleri çöktürmek için hücre lizatlarını 4ºC'de 10 dk boyunca 13,500 × g'de santrifüj edin.
- Süpernatantı dikkatlice temiz bir tüpe aktarın. Protein konsantrasyonunu BCA analizi ile belirlemek için süpernatanttan 20 µL ayırın.
- Metanol/kloroform çöktürme işlemi yaparak süpernatantı konsantre edin.
- Elde edilen çökeleği 0.1 mL Laemmli örnek tamponunda (25 mM Tris-HCl (pH 6.8), %1 (a/h) SDS, %12.5 (h/h) gliserol, %0.01 (a/h) bromofenol mavisi, 355 mM β-merkaptoetanol) yeniden süspande edin.
- Pelleti Laemmli örnek tamponunda yeniden süspande edin ve sonikasyon ile dağıtın.
- %10 güçte 0.5 saniyelik darbelerle üç sonikasyon döngüsü gerçekleştirin. Köpürmeyi önlemek için prob ucunu tüpün tabanına doğru tutun.
- Hem RIPA süpernatantı hem de toplam hücre lizatları üzerinde bir bisinkinoninit asit (BCA) protein analizi gerçekleştirin .
- Protein örneklerini %12 veya %15'lik sodyum dodesil sülfat poliakrilamid jel elektroforezi (SDS-PAGE) jeline yükleyin. Jeli 200 V'luk sabit bir voltajda 45 dk boyunca çalıştırın.
- Proteinleri ıslak transfer sistemi kullanarak jelden nitroselüloz membrana aktarın. Üretici talimatlarını izleyin ve 100 V'da 70 dk boyunca transfer işlemini gerçekleştirin.
- Membranı %0.1 (ağırlık/hacim) Tween-20 içeren Tris tamponlu saline (TBST) içerisinde çözünmüş %5 (ağırlık/hacim) sığır serum albümini (BSA) içine yerleştirin. Nazik çalkalama ile oda sıcaklığında en az 1 saat boyunca bloke edin.
- Birincil antikorları üretici talimatlarına göre TBST ile seyreltin. Membranı birincil antikor çözeltisi içinde 4ºC'de nazik çalkalama ile gece boyunca inkübe edin.
- Membranı, her biri 5 dk sürecek şekilde üç kez TBST ile yıkayın.
- Florofor veyaleyleme peroksidaz (HRP)-konjuge ikincil antikorları TBST içerisinde 1:500 oranında (veya üretici tarafından belirtilen oranda) seyreltin.
- Membranı ikincil antikor çözeltisi içinde oda sıcaklığında nazik çalkalama ile 1 saat inkübe edin.
- Membranı, her biri 5 dk sürecek şekilde üç kez TBST ile yıkayın.
- Üretici talimatlarına göre floresan veya geliştirilmiş kemilüminesans (ECL) kullanarak membranı geliştirin.
- Protein bantlarını bir görüntüleme sistemi kullanarak görselleştirin.
NOT: Protein degradasyonunu önlemek için, antikor inkübasyonu ve bloklama adımları hariç tüm işlemleri buz üzerinde veya 4ºC'de gerçekleştirin. İşlem boyunca düşük sıcaklıkları korumak için tüm tamponların, reaktiflerin ve ekipmanların kullanım öncesinde soğutulduğundan emin olun. Yayılmayı önlemek için jeli aşırı yüklemekten kaçının; antikor konsantrasyonlarını ve inkübasyon sürelerini spesifik deneye uygun şekilde optimize edin.
6. Kokültür için primer nöronların hazırlanması
- Gebe sıçanı, inhalasyon anestezisi olarak karbondioksit kullanarak ötanize edin. Uterusu diseke ederek steril bir Petri kabına yerleştirin.
- Beyinleri fetüslerden çıkarın ve diseksiyon solüsyonu içeren 6 cm'lik bir kaba yerleştirin. Kurumayı önlemek için dokunun her zaman solüsyon içinde kaldığından emin olun.
- Korteksleri diseke edin ve meningeleri tarif edildiği şekilde (adım 2.7) çıkarın.
- Diseke edilen dokuyu laminer akışlı kabine transfer edin.
- 1 mL'lik bir pipet kullanarak diseksiyon solüsyonunu aspire edin ve kaba taze diseksiyon solüsyonu ekleyin.
- Beyin dokusunu steril bir skalpel bıçağı kullanarak küçük parçalar halinde kıyın.
- Kıyılmış dokuyu, 15 mL'lik bir tüp içinde 37 ºC'ye önceden ısıtılmış 5 mL nöronal disosiasyon ortamına (Tablo 1) transfer edin.
- Tüpü 30 dk boyunca 37 ºC'lik su banyosunda inkübe edin; uygun enzim-doku etkileşimini sağlamak için tüpü her 5 dk'da bir hafifçe sallayın.
- Tüpü su banyosundan çıkarın ve dokunun tüpün dibine çökmesini bekleyin. Dokuyu rahatsız etmeden, 1 mL'lik bir pipet ucu kullanarak süpernatanı dikkatlice aspire edin.
- Tüpe 5 mL önceden ısıtılmış diseksiyon solüsyonu ekleyin ve dokuyu durulamak için tüpü 5 kez ters çevirin. Dokunun çökmesi için tüpü 3 dk bekletin, ardından her seferinde taze diseksiyon solüsyonu kullanarak yıkama işlemini üç kez tekrarlayın.
- Son yıkamadan sonra süpernatanı uzaklaştırın ve 2,5 mL diseksiyon solüsyonu ile 2,5 mL ekim ortamı ekleyin.
- 10 mL'lik bir pipet kullanarak solüsyonu 10–15 kez yukarı aşağı çekerek dokuyu tritüre edin.
- Dokunun çökmesi için tüpü 3 dk bekletin. Süpernatanı (hücreleri içeren) yeni bir 50 mL'lik konik tüpe transfer edin.
- Çöken dokunun bulunduğu orijinal tüpe 5 mL ekim ortamı ekleyin.
- Çoğu parça kaybolana kadar 10 mL'lik bir pipet kullanarak dokuyu tekrar 10–15 kez tritüre edin.
- Hücre süspansiyonunu steril 40 µm'lik bir hücre süzgecinden geçirerek, 5 mL ekim ortamı içeren temiz bir 50 mL'lik konik tüpe aktarın.
- Filtre edilen hücre süspansiyonunu oda sıcaklığında 200 × g'de 5 dk santrifüjleyin.
- Süpernatanı uzaklaştırın, ardından tüpe vurarak hücre peletini nazikçe gevşetin. 5 mL önceden ısıtılmış ekim ortamı ekleyin ve peleti yeniden süspanse etmek için 10 kez yukarı aşağı pipetleyin.
- Hücreleri daha önce tarif edildiği şekilde (adımlar 2.21 ve 2.22) sayın. Hücre sayımı sırasında hücre süspansiyonunu 37°C'lik su banyosunda tutun.
- Nöronları kültür kaplarındaki primer astrositlerin doğrudan üzerine şu şekilde ekimleyin: 24 kuyucuklu plak için kuyucuk başına 1,45 × 10⁵ hücre; 6 kuyucuklu plak için kuyucuk başına 5 × 10⁵ hücre; 6 cm'lik kap için kuyucuk başına 1 × 10⁶ hücre ekin.
- Plakları veya kapları 37ºC ve %5 CO₂'ye ayarlanmış bir doku kültürü inkübatörüne yerleştirin. Canlılığı korumak için hücrelerin uzun süre oda sıcaklığında kalmasından kaçının.
- Ekimden 4 saat sonra ekim ortamını nöronal idame ortamı ile değiştirin.
- Her 3–4 günde bir ortamın yarısını taze nöronal idame ortamı ile değiştirin.
NOT: Kokültür edilen nöronlar in vitro'da 7–10 gün (DIV) sonra deneyler için hazır olacaktır.
Sonuçlar
İzolasyondan sonraki çeşitli zaman noktalarında primer astrosit kültürlerinin morfolojik genel görünümü Şekil 3'te sunulmuştur. Kortikal hücre süspansiyonunun ekimini takiben, bazı astrositler ilk 24 saat içinde kültür kabının yüzeyine tutunur (Şekil 3A). Kültür ortamı astrositlerin hayatta kalmasını ve büyümesini desteklemek için optimize edildiğinden, ilk 3 ila 5 gün boyunca kültürler hücre kalıntıları ve ölen nöronlar içerir (Şekil 3B). Ekimden sonraki 7. güne gelindiğinde, kültürün başarıyla kurulduğunu gösteren bir astrosit monokatmanı oluşmaya başlar (Şekil 3C). Kültürde tutulan disosiye nöronlar, farklı diferansiyasyon aşamalarından geçer ve sonunda belirgin nöritler geliştirir (Şekil 3D–F). Bu nöronlar, cam lameller üzerinde monokatmanlar halinde kültüre edilebilir veya ko-kültür deneyleri için primer astrositlerin üzerine ekilebilir; bu da astrosit-nöron etkileşimlerini incelemek için çok yönlü bir platform sağlar.
Bu protokolü takip ederek normal sıçanlardan hazırlanan primer astrositleri kullanarak, AxD ile ilişkili GFAP mutasyonlarının IF ağı oluşumu üzerindeki etkilerini inceledik. Bu çalışmayı kolaylaştırmak için, pLEX-MCS lentiviral vektöründeki WT GFAP kalıp olarak kullanılarak site-directed mutajenez yoluyla WT GFAP (Şekil 4A) ve E373K (Şekil 4B), R376W (Şekil 4C), D395Y (Şekil 4D), D417A (Şekil 4E) ve Q426L (Şekil 4F) GFAP dahil olmak üzere çeşitli mutant GFAP formları üretildi (Ek Dosya 1 ve Ek Şekil 1). Ardından, GFAP ekspresyon konstrüktleri lentiviral enfeksiyon yoluyla primer astrositlere transduce edildi. Bu enfeksiyon işlemi, hücrelerin 8 μg/mL polybrene varlığında, 10'luk bir enfeksiyon çokluğu (MOI) ile lentivirüslerle inkübe edilmesini içeriyordu. Bu koşullar altında, immunofloresans mikroskopisi astrositlerin yaklaşık %70-%80'inin başarıyla enfekte olduğunu ortaya koydu. Transduce edilen GFAP'ın endojen sıçan GFAP ile ilişkili dağılımı, çift etiketli immunofloresans mikroskopisi kullanılarak analiz edildi. Transduce edilen insan GFAP'ını tespit etmek için anti-insan GFAP monoklonal antikoru (Şekil 4A–F, yeşil kanal), hem sıçan GFAP'ını hem de transduce edilen insan GFAP'ını tanıyan poliklonal bir anti-panGFAP antikoru ise genel GFAP dağılımını görselleştirmek için kullanıldı (Şekil 4A–F, kırmızı kanal). WT GFAP eksprese eden astrositlerde, filamentli ağlar sitoplazma boyunca dağılmıştı (Şekil 4A). Buna karşılık, GFAP mutantları (Şekil 4B–F, yeşil kanal) ağırlıklı olarak sitoplazmik agregatlar oluşturmuştu ve bunlar sıklıkla endojen IF ağlarını bozup çökerterek etkilemişti (Şekil 4B–F, kırmızı kanal). WT ve mutant GFAP'ın göreceli ekspresyon seviyeleri, toplam hücre lizatlarının immunoblotting yöntemiyle belirlendi (Şekil 4G). Gerek WT (Şekil 4G, şerit 2) gerekse mutant (Şekil 4G, şerit 3–7) GFAP transduksiyonu, benzer seviyelerde beklenen boyutta proteinler üretti. Mutant GFAP tarafından oluşturulan sitoplazmik agregatların WT proteine kıyasla değişmiş çözünürlük özellikleri sergileyip sergilemediğini değerlendirmek için, transduce edilen astrositler radioimmunoprecipitation assay (RIPA) tamponu kullanılarak ekstrakte edildi16. Süpernatant (Şekil 4H) ve pelet (Şekil 4I) fraksiyonlarının immunoblot analizi, çözünürlükte belirgin farklar olduğunu ortaya koydu. WT GFAP eksprese eden hücrelerde, proteinin çoğu kolayca süpernatanta ekstrakte edildi (Şekil 4H, şerit 2). Buna karşılık, mutant GFAP'lar ekstraksiyona karşı artmış bir direnç gösterdi ve proteinin büyük çoğunluğu pelet fraksiyonunda kaldı (Şekil 4I, şerit 3–7). Bu bulgular, AxD ile ilişkili GFAP mutasyonlarının çözünmeyen agregatların oluşumunu teşvik ederek primer astrositlerde GFAP'ın çözünürlük özelliklerini değiştirdiğini göstermektedir.
R237H GFAP mutasyonunun ve aşırı ekspresyonun filament organizasyonunu ve IF ağı oluşumunu nasıl etkilediğini anlamak için, WT sıçanlardan veya homozigot R237H knock-in mutasyonuna sahip AxD model sıçanlardan13 türetilen primer astrositlerde GFAP'nin ağ oluşturma kapasitesini analiz ettik. İmmünofloresan konfokal mikroskopi, WT astrositlerde GFAP'nin sitoplazma boyunca dağılmış, vimentin IF'leri ile kolokalize olan iyi organize filament ağları oluşturduğunu ortaya koydu (Şekil 5A). Buna karşılık, homozigot mutant astrositlerde GFAP-pozitif hücrelerin yaklaşık %70'i belirgin sitoplazmik agregatlar içeriyordu (Şekil 5B). Bu agregatlar sıklıkla vimentin IF ağlarını bozarak bunların büyük perinükleer agregatlar halinde çökmesine neden oldu. Agregat içeren GFAP-pozitif hücrelerin kantifikasyonu Şekil 5C'de gösterilmiştir. GFAP ekspresyonunu protein düzeyinde değerlendirmek için WT ve homozigot mutant astrositlerden toplam hücre lizatları hazırlandı. Anti-panGFAP antikoru kullanılarak yapılan immünoblotlama, homozigot mutant astrositlerde toplam GFAP'de mütevazı bir artış olduğunu ortaya koydu (Şekil 5D, şerit 2) ve WT astrositlere kıyasla (Şekil 5D, şerit 1) 1,3 katlık bir artış gösterdi (Şekil 5E). Mutant GFAP'nin aşırı ekspresyonunun çözünür ve çözünmez havuzlar arasındaki dinamik dengeyi değiştirip değiştirmediğini belirlemek için süpernatant ve pelet fraksiyonları ayrıldı ve immünoblotlama ile analiz edildi (Şekil 5F). GFAP'nin süpernatant ve pelet fraksiyonları arasındaki dağılımının kantifikasyonu Şekil 5G'de gösterilmiştir. WT astrositlerde (Şekil 5F, şerit 1 ve 2), GFAP süpernatant ve pelet fraksiyonları arasında yaklaşık olarak eşit dağılmıştı. Ancak, homozigot mutant astrositler pelet fraksiyonunda GFAP seviyelerinde bir artış sergiledi (Şekil 5F, şerit 4), bu da GFAP'nin sitoplazmik agregatlar içinde artan sekestrasyonuna işaret etmektedir. Özellikle, homozigot mutant astrositlerde GFAP agregatlarının birikimi, pelet fraksiyonunda ubikitine edilmiş GFAP türlerinin saptanmasıyla da korelasyon gösterdi (Şekil 5F, şerit 4); bu durum, bu hücrelerdeki sitoplazmik agregatlarda patolojik olarak modifiye edilmiş GFAP'nin varlığını daha da desteklemektedir.
Astrositler, nöronal sağlık ve fonksiyonların desteklenmesinde kritik bir rol oynar. Astrositlerdeki R237H GFAP mutant birikiminin, hücre dışı (non-cell-autonomous) mekanizmalar aracılığıyla nöronları etkileyip etkilemediğini belirlemek için astrosit-nöron kokültürleri kullandık. Sıçan embriyonik 18. gün (E18) primer nöronları, 10–12 DIV boyunca kültüre edilmiş primer astrositlerin üzerine ekildi ve ek 10 gün boyunca olgunlaşmaya bırakıldı. Kokültürler daha sonra fikse edildi ve nöronal morfolojiyi değerlendirmek için βIII tubulin karşıtı antikorlarla immün boyandı. WT astrositlerle (Şekil 6B) kokültür edilen nöronlar (Şekil 6A), homozigot mutant astrositlerle (Şekil 6E) kokültür edilen nöronlara (Şekil 6D) kıyasla anlamlı derecede daha uzun nörit uzaması (Şekil 6C) gösterdi. Kantitatif analiz, homozigot mutant astrositlerle kokültür edilen nöronların nörit uzunluklarının, WT astrositlerle kokültür edilen nöronlara kıyasla %76 oranında azaldığını ortaya koydu (Şekil 6G). Bu bulgular, astrositlerde mutant GFAP birikiminin, normal nöronal gelişim ve morfolojiyi destekleme yeteneklerini ciddi şekilde bozduğunu göstermektedir. Bu bozulma, AxD'ye özgü nörodejeneratif fenotipe katkıda bulunabilir.
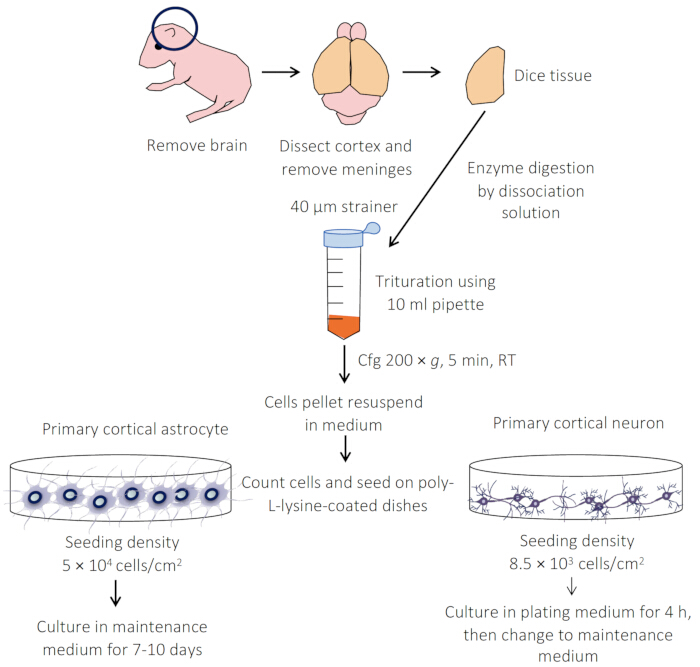
Şekil 1Astrosit ve nöron primer kültürlerinin hazırlanmasına yönelik protokollerin genel bakışı. Korteksler dikkatlice diseke edilir ve dokular tripsin veya papain kullanılarak enzimatik olarak sindirilir. Ayrıştırılan hücreler daha sonra hazırlanmış lameller, kaplar veya plaklara ekilir. Hem astrositler hem de nöronlar idame ortamında kültüre edilir ve 28 güne kadar yaşatılabilir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
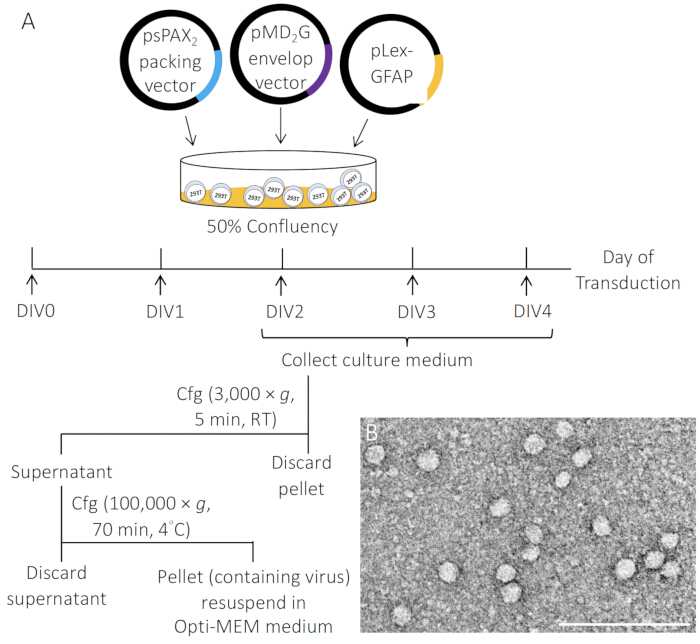
Şekil 2Lentiviral partikül üretiminin şematik gösterimi. (ALentivirüsler, pLEX-MCS-GFAP vektörü, psPAX2 paketleme vektörü ve pMD2.G zarf vektörünün, transfeksiyon reaktifi kullanılarak 4:3:1 oranında 293T hücrelerine geçici kotransfeksiyonu ile üretilmiştir. Lentiviral partiküller içeren kültür süpernatantları 2-4. günlerde toplanmıştır. in vitro (DIV), 0,45-µm filtreden süzülmüşμm kalıntıları uzaklaştırmak için filtrelenmiş ve yüksek hızlı santrifüj ile konsantre edilmiştir. (B) Lentiviral partiküllerin elektron mikrografı. Ölçek çubuğu, 50 nm. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
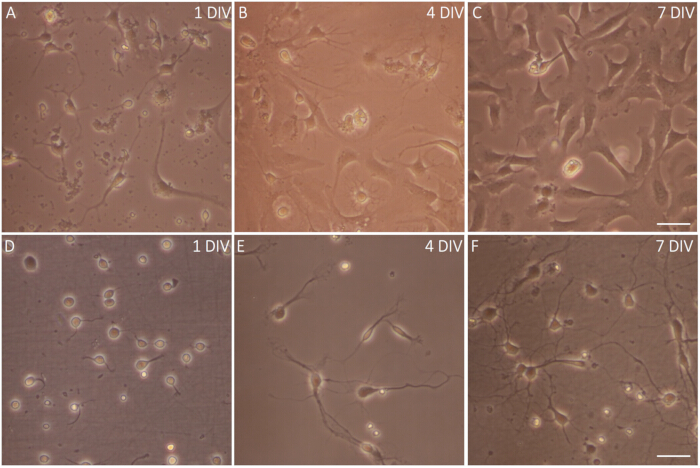
Şekil 3Primer astrositlerin ve nöronların faz kontrast görüntüleri. (A–C) İzolasyonu takiben farklı zaman noktalarındaki primer astrosit kültürlerinin morfolojik genel görünümü. (AEkimi takip eden bir gün sonra, astrositlerin bir kısmı flask tabanına yapışmış durumdadır.BEkimden dört gün sonra, bir astrosit tabakası oluşmaya başlar.CEkimi takip eden yedinci güne gelindiğinde, astrosit tabakası neredeyse konfluens seviyesine ulaşmıştır. Bu kültür koşulları altında nöronların neredeyse tamamen yok olduğunu göz önünde bulundurun. (D–F) ekimden kısa bir süre sonra, (D) kortikal nöronlar, hücre gövdesini çevreleyen lameller bir yapı uzatmaya başlar. (E) Kültürdeki sonraki günler boyunca, (Fnöronal farklılaşma ilerler ve bazı nöronlar, daha karmaşık bir nöronal ağın oluşumuna işaret eden dallanmış uzantılar geliştirir. Ölçek çubuğu, 20 μm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
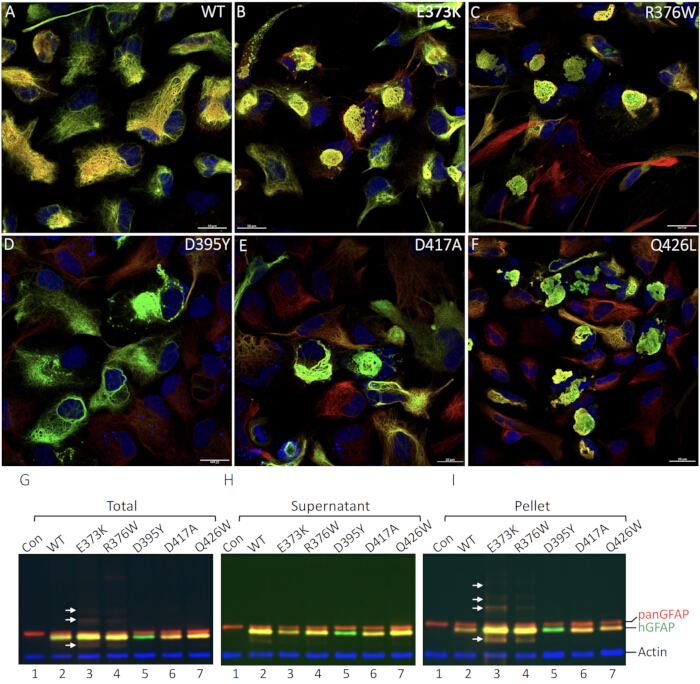
Şekil 4Primer astrositlerde WT ve mutant GFAP'nin filament organizasyonu ve çözünürlük özellikleri. (A–FPrimer sıçan astrositleri, WT (A), veya E373K dahil olmak üzere AxD ile ilişkili mutantlar (B), R376W (C), D395Y (D), D417A (E), ve Q426L (F) GFAP. Hücreler fikse edilmiş ve anti-insan GFAP (yeşil kanal) ve anti-panGFAP (kırmızı kanal) antikorları ile immünoboyama işlemine tabi tutulmuştur. Çekirdeklerin DAPI (mavi kanal) ile boyanarak görselleştirildiği birleştirilmiş görüntüler gösterilmektedir. WT GFAP temel olarak filamentöz ağlar şeklinde birleşirken (A), mutant GFAP proteinleri transdükte edilen hücrelerin çoğunda sitoplazmik agregatlar oluşturmuştur (B–F). Ölçek çubuğu, 20 μm. (G–I) Mutant GFAP'nin ekspresyon seviyelerinin ve çözünürlük özelliklerinin analizi. Primer astrositler ya transdüksiyon yapılmamış halde bırakıldı (G–I, şerit 1) veya belirtilen GFAP konstrüktları ile transdukte edilmiş (G–I, şeritler 2–7). Transdüksiyondan 72 saat sonra hücreler radyoimmünopresipitasyon analizi (RIPA) tamponunda lize edilmiş ve elde edilen toplam lizatlar (G), yanı sıra süpernatant (H) ve pelet (Ifraksiyonlar, anti-insan GFAP (yeşil kanal) ve anti-panGFAP (kırmızı kanal) antikorları kullanılarak immünoblotlama ile analiz edildi. Anti-aktin antikoru (mavi kanal) ile problanan blotlar, yükleme kontrolü olarak kullanıldı. İnsan GFAP (hGFAP), toplam GFAP (panGFAP) ve aktinin konumları sağda belirtilmiştir. D395Y GFAP mutasyonu ile transduksiyonu yapılan astrositlerin, anti-panGFAP antikoru ile kırmızı kanalda boyanma göstermediği görülmüştür; bu durum muhtemelen mutasyonun neden olduğu antikor hedef epitopunun bozulmasından kaynaklanmaktadır. Astrositlere E373K GFAP transduksiyonu yapıldığında, immünoblot analizi monomerik GFAP bandının üzerinde ve altında ek immünopozitif bantlar (oklar) ortaya çıkarmıştır. Alt bantlar muhtemelen degradasyon ürünleriyken, üst bantlar ubiquitination ile modifiye edilmiş GFAP'ye karşılık gelmektedir. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
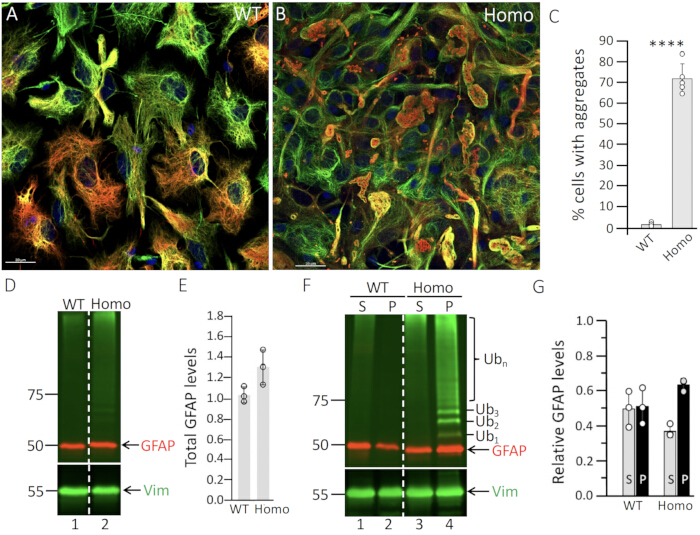
Şekil 5Homozigot mutant sıçanlardan türetilen astrositlerde GFAP agregasyonu. şunlardan türetilen primer astrositler (A) WT veya (BHomozigot mutant sıçanlar 14 DIV boyunca kültüre edilmiş ve ardından GFAP (kırmızı kanal) ve vimentin (yeşil kanal) antikorları kullanılarak çift etiketli immünofloresan mikroskopi için işlenmiştir. Çekirdeklerin DAPI (mavi kanal) ile boyanarak görselleştirildiği birleştirilmiş görüntüler gösterilmiştir. Ölçek çubuğu, 20 μmWT astrositlerde (A), GFAP vimentin ile kolokalize olan filamentöz IF ağları oluşturmuştur. Buna karşılık, homozigot mutant astrositlerin çoğunda, hem GFAP hem de vimentin için çift pozitif olan GFAP agregatları bulunmuştur (B). (C) WT ve homozigot mutant astrositlerde agregat içeren hücrelerin nicelendirilmesi. Veriler, üç bağımsız deneyden elde edilen ortalama ± standart hata (SE) değerlerini temsil etmekte ve sütun grafikler şeklinde sunulmaktadır. İstatistiksel analiz, çift kuyruklu t-testi kullanılarak yapılmıştır; ****p < 0.0001. (D–G) WT ve homozigot mutant astrositlerde GFAP ekspresyon seviyeleri ve çözünürlük özellikleri. Primer astrositler, 14. DIV'de RIPA tamponu ile ekstrakte edildi. Toplam hücre lizatları (D), yanı sıra süpernatan (S) ve pelet (P) fraksiyonları (F); GFAP (kırmızı kanal), ubikitin (yeşil kanal) ve vimentin (yeşil kanal) antikorları kullanılarak immunobloting ile analiz edilmiştir. Moleküler kütle markerları (kDa cinsinden) solda gösterilmiş; GFAP, vimentin (Vim) ve ubikitin (Ub) konumları ise sağda belirtilmiştir. Ub1–3 mono-, di- ve tri-ubikitinlenmiş GFAP türlerini temsil ederken, Ubn poliübikekitinlenmiş GFAP türlerini belirtir. ( kısmındaki kesikli çizgiD ve F) şeritlerin aynı jelde çalıştırıldığını ancak ardışık olmadığını belirtir. Ubikitine edilmiş GFAP türlerinin yalnızca homozigot mutant astrositlerin pellet fraksiyonunda tespit edildiğine dikkat edin (F, şerit 4). GFAP düzeylerinin kantifikasyonu (E,G). Her beyaz nokta bir biyolojik tekrarlamayı temsil etmektedir (n = 3). Veriler ortalama ± standart sapma (SD) olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
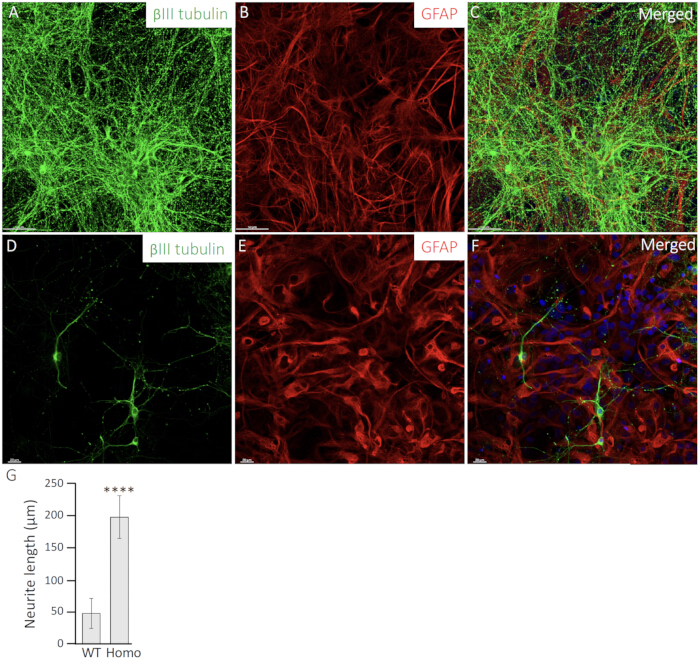
Şekil 6Homozigot mutant astrositlerdeki mutant GFAP ekspresyonu, nörit morfolojisini değiştirir. Primer nöronlar (A,D) WT astrositler (B) veya homozigot mutant astrositler (E). Nöronal morfolojiyi görselleştirmek için nöronlar, βIII tubulin'e karşı antikorlarla (yeşil kanal) immün boyandı (A,D) astrositler ise (B,E) GFAP'a karşı antikorlarla işaretlendi (kırmızı kanal). Birleştirilmiş görüntüler gösterilmektedir (C,F), çekirdekleri DAPI ile boyanmış (mavi kanal). Ölçek çubuğu, 20 μm. (G) WT veya Homo astrositlerle birlikte kültürlenen nöronların nörit uzunlukları nicelendirildi ve sütun grafikler şeklinde sunuldu. Veriler ortalama ± SD olarak ifade edilmiştir. İstatistiksel anlamlılık, çift kuyruklu t-testi kullanılarak değerlendirilmiş olup WT ve R237H astrositler arasındaki anlamlı fark ****P ile belirtilmiştir. < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Bileşen | Final konsantrasyon | |
| Diseksiyon ortamı | 10× HBSS | 10% |
| 1 M HEPES, pH 7,4 | 10 mM | |
| 10× penisilin-streptomisin | 1× | |
| Disosyasyon ortamı | %2,5'lik Tripsin | 0.25% |
| 1 M HEPES, pH 7,4 | 10 mM | |
| 150 mM CaCl22 | 1,5 mM | |
| DNase I (15.0U) | 80 U | |
| 10× HBSS | 10% | |
| Sürdürme besiyeri | Fetal sığır serumu | 10% |
| 10× penisilin-streptomisin | 1× | |
| Minimum Esansiyel Besiyeri | 97% | |
| Nöronal disosyasyon ortamı | 10 mM sodyum piruvat | 1 mM |
| %10 Glikoz | 0.10% | |
| 1 M HEPES, pH 7.4 | 10 mM | |
| 0,5 M EDTA | 5 mM | |
| 2 mg/mL Sistein | 0,2 mg | |
| Papain | 67 U | |
| 150 mM CaCl22 | 1,5 mM | |
| DNase I (15.0U) | 80 U | |
| Nöronal ekim ortamı | Fetal sığır serumu | 5% |
| GlutaMax-1 | 1% | |
| %10 Glukoz | 0.06% | |
| 10× penisilin-streptomisin | 1× | |
| Nöronal bakım ortamı | Neurobasal besiyeri | 97% |
| B27 | 1/50 | |
| GlutaMax-1 | 0,5 mM | |
| 10× penisilin-streptomisin | 1% | |
| 293T hücre kültürü besiyeri | %10'lu DMEM | 90% |
| Fetal sığır serumu | 10% | |
| Glutamin | 2 mM | |
| 10× Penisilin-streptomisin | 1% |
Tablo 1: Besiyeri bileşimi.
Ek Dosya 1: GFAP mutant lentiviral konstrüktler. GFAP mutasyonları, bölgeye özgü mutajenez yoluyla oluşturulmuştur. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Şekil 1: Bölgeye özgü mutajenez ile oluşturulan GFAP mutasyonlarının şematik gösterimi.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Primer astrosit kültürleri, astrositlerin sağlık ve hastalıktaki rollerine dair anlayışımızı önemli ölçüde geliştirmiştir. McCarthy ve de Vellis'in21 temel çalışmalarına dayanan bu kültürler, astrosite özgü süreçlerin, özellikle AxD mutasyonlarının GFAP montajı ve agregat oluşumu üzerindeki etkilerinin detaylı bir şekilde incelenmesine olanak tanıdıkları için AxD çalışmalarında kritik öneme sahiptir.
Primer astrositlerin başarılı bir şekilde izole edilmesi ve kültüre edilmesi; hücre canlılığını, saflığını ve tekrarlanabilirliğini etkileyen birkaç temel adıma bağlıdır. Doku degradasyonunu önlemek ve dokunun tamamen tek hücreli bir süspansiyona ayrışmasını sağlamak için, beyin dokusunun hızlı ve hassas bir şekilde diseke edilmesiyle birlikte tripsin konsantrasyonunun ve sindirim süresinin dikkatli bir şekilde optimize edilmesi esastır. Nazik tritürasyon ve steril bir hücre süzgecinin kullanımı, debris ve agregatları temizleyerek hücre saflığını daha da artırır. Bu adımları takiben yapılan düşük hızlı santrifüj ve taze kültür ortamında dikkatli resüspansiyon, değişkenliği ve kontaminasyonu minimize ederek yüksek hücre canlılığının ve büyümesinin korunmasına yardımcı olur. İzolasyon sonrasında, güçlü hücre tutunmasını sağlamak ve deneysel hedeflere ulaşmak için yüzey kaplaması seçimi kritik öneme sahiptir. Poli-L-lizin (PLL), maliyet etkinliği ve güçlü hücre adhezyonunu teşvik etme yeteneği nedeniyle sıklıkla kullanılır; ancak laminin22,23 ve kolajen24 gibi diğer kaplamalar in vivo koşulları daha iyi taklit edebilir veya belirli hücresel çalışmaları kolaylaştırabilir. Bu etkilerin anlaşılması, araştırmacıların ilgili ve tekrarlanabilir sonuçlar veren deneyler tasarlamasına olanak tanır.
Teknik zorluklarına rağmen, bu protokol, ölümsüzleştirilmiş hücre hatlarından daha üstün ve fizyolojik olarak anlamlı bir model sunarak vazgeçilmezliğini korumaktadır. Ancak, birkaç sınırlamanın kabul edilmesi önemlidir: 1) İzolasyon ve kültürleme işlemi teknik olarak zahmetlidir; özel beceriler ve ekipmanlar gerektirir. Yerleşik hücre hatlarıyla karşılaştırıldığında, bu yöntem daha fazla zaman alır ve deneysel tekrarlanabilirliği etkileyebilecek değişkenliklere daha açıktır. 2) Astrositler, MSS'nin farklı bölgelerinde bulunan belirgin popülasyonlarla, in vivo25,26 önemli bölgesel heterojenlik sergilerler. Primer astrosit kültürleri tipik olarak korteks veya hipokampüs gibi belirli beyin bölgelerinden türetilir ve MSS genelindeki astrosit popülasyonlarının çeşitliliğini tam olarak yansıtmayabilir. 3) İzolasyon ve kültür süreci; travmatik prosedür, enzimatik sindirim ve yapay kültür koşullarına maruz kalma nedeniyle astrositlerde sıklıkla reaktif bir durum tetikler. Bu reaktif durum, reaktif astrogliyozun incelenmesi için yararlı olsa da, astrositlerin yaralanma veya hastalıklara karşı in vivo fizyolojik yanıtlarını doğru şekilde temsil etmeyebilir. Bu durum, deneysel sonuçları saptırabilecek fizyolojik olmayan artefaktlara yol açabilir. 4) Primer astrosit kültürleri; nöronlar, mikrogliyalar, endotel hücreler ve ekstraselüler matriks bileşenleri ile olan etkileşimler dahil olmak üzere, in vivo mevcut olan karmaşık beyin mikroçevresinden yoksundur. Bu etkileşimler, astrosit fonksiyonları ve stresörlere verdikleri yanıtlar için kritiktir ve bu etkileşimlerin eksikliği, in vivo davranışın tam olarak kopyalanma yeteneğini sınırlar. 5) Sıçan veya fare gibi kemirgenlerden türetilen primer astrositler, moleküler ve fonksiyonel özellikleri bakımından insan astrositlerinden önemli ölçüde farklılık gösterebilir27,28. Bu faktörler fizyolojik olmayan artefaktlara neden olabilir, bu da dikkatli bir deneysel tasarım ve yorumlama ihtiyacını vurgular. Bu zorlukların üstesinden gelmek için, manyetik hücre ayıklama29 veya FACS tabanlı izolasyon30 gibi ek saflaştırma adımları, daha saf astrosit popülasyonları sağlayabilir. Bu yöntemler protokol karmaşıklığını artırsa da, astrosite özgü fonksiyonların daha doğru incelenmesine olanak tanırlar.
Bazı gelişmiş protokollerin aksine, burada açıklanan yöntem yaygın olarak bulunan hücre kültürü materyallerine dayanır ve pahalı ekipman ihtiyacını ortadan kaldırır. Ayrıca bu protokol, hücrelerin izolasyon sonrası ek bir çalkalama veya alt kültürleme işlemi yapılmadan doğrudan ekilmesiyle primer kültürlerin hazırlanmasını basitleştirir31. Bu yaklaşım, GFAP ekspresyonunu ve astrositlerin reaktif durumlarını daha iyi koruyabilir. Uygulaması kolay, tekrarlanabilir ve herhangi bir MSS bölgesinden alınan hücrelere uygulanabilir olduğundan araştırmacılar için çok yönlü bir araç sunar. Bu protokol ile zenginleştirilen primer astrositler; doğal hücresel mimarilerini, sinyal yollarını ve fonksiyonel özelliklerini korurlar, bu da onları geniş bir hücre biyolojik ve biyokimyasal çalışma yelpazesi için uygun hale getirir16,17,32. Orta düzeyde teknik uzmanlık ve dikkatli bir uygulama ile bu kültürler yüksek canlılıkta sürdürülebilir; astrosit morfolojisi, fonksiyonu ve davranışı hakkında değerli bilgiler sağlayabilir. Protokol özellikle postnatal sıçanların kortekslerinden astrosit izole etmek için tasarlanmış olsa da, farelerden veya hipokampus ya da omurilik gibi diğer beyin bölgelerinden astrosit izole etmek için kolayca uyarlanabilir. Bu esneklik, yöntemi nörobilimdeki çeşitli araştırma sorularını yanıtlamak için oldukça çok yönlü kılmaktadır. Hastalık modellemesi için AxD model sıçanlarından türetilen astrositler; hastalıkla ilişkili GFAP mutasyonlarını, Rosenthal fiber oluşumunu ve strese karşı patolojik yanıtları yeniden oluşturabilir33, böylece AxD mekanizmalarını incelemek için güçlü bir platform sağlar.
Normal sıçanlardan türetilen primer astrositler, AxD mutasyonlarının GFAP montajı ve agregat oluşumu üzerindeki etkilerini araştırmak için lentiviral transdüksiyon yoluyla genetik olarak manipüle edilebilir9,33. Bu süreçte kritik bir adım, uygun bir ekstraksiyon tamponunun seçilmesidir; çünkü bu seçim, transdükte astrositlerde mutant GFAP'nin çözünürlük özelliklerinin değerlendirilmesini önemli ölçüde etkiler34. İyonik ve non-iyonik deterjan kombinasyonuna sahip Radyoimmünopresipitasyon analizi (RIPA) tamponu, agregatları korurken GFAP filamentlerini etkili bir şekilde çözerek bu çalışmanın araştırma amaçlarının merkezinde yer alan kapsamlı biyokimyasal analizleri kolaylaştırır10.
Genel olarak, primer astrosit kültürleri, astrosit biyolojisini ve özellikle AxD'deki hastalık mekanizmalarını incelemek için çok yönlü ve güçlü bir platform sunar. Protokolleri optimize ederek ve kısıtlamaları gidererek araştırmacılar, tekrarlanabilirliği ve güvenilirliği artırabilir; bu da yöntemi, astrosit fonksiyonlarına dair anlayışımızı geliştirmek ve GFAP ile ilişkili astrositopati için terapötik hedefler belirlemek adına temel hale getirir.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
R237H knock-in fareleri sağladığı için Dr. Tracy Hagemann'a (Waisman Center, University of Wisconsin-Madison) teşekkür ederiz. Bu çalışma, Ulusal Bilim ve Teknoloji Konseyi'nden alınan hibelerle (N.-H. L. ve M.-D.P.'ye verilen 111-2320-B-007-008 ve 112-2320-B-007-006) desteklenmiştir. Yazarlar, Ulusal Bilim ve Teknoloji Konseyi (NSTC-114-2740-M-007-001) tarafından desteklenen, Tayvan'daki National Tsing Hua Üniversitesi konfokal görüntüleme merkezinin desteği için minnettardır. Ayrıca, elektron mikroskobuna erişim sağladığı için National Tsing Hua Üniversitesi Enstrüman Merkezi'ne teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1 M HEPES, pH 7,4 | Gibco | 15630-080 | |
| 100× penisilin-streptomisin | Gibco | 15140-122 | |
| 10× Hank Dengeli Tuz Çözeltisi (HBSS) | Gibco | 14180-046 | |
| %2,5'lik Tripsin | Gibco | 15090046 | |
| %30 Akrilamid/Bis çözeltisi 37,5:1 | Bio-Rad | 1610158 | |
| anti-GFAP antikoru | Hücre Sinyalizasyon Teknolojisi | 12389 | |
| anti-insan GFAP antikoru | Biolegend | 837202 | Klon SMI21 |
| anti-panGFAP antikoru | Agilent | GA524 | |
| anti-ubikitin antikoru | Millipore | ST 1200 | FK2 Klonu |
| anti-vimentin antikoru | Sigma-Aldrich | V6389 | Klon V9 |
| anti-β III tubulin antikoru | Biolegend | 801201 | |
| B27 takviyesi | Gibco | 17504044 | |
| Kalsiyum klorür (CaCl2)2) | Arcos | 34961 | |
| Hücre kültürü ile ilgili reaktifler | |||
| ChemiDoc Görüntüleme Sistemi | BioRad | Metin sağlanmamıştır. Lütfen çevrilmesini istediğiniz kaynağı iletiniz. | |
| Coomassie mavi boya | USB | 32826 | |
| Sistein | Sigma-Aldrich | C1276 | |
| Ditiotreitol (DTT) | Üre | DTT | |
| DNaz I | Sigma-Aldrich | D5025 | |
| Dounce homojenizatörü | Wheaton | ||
| Dulbecco'nun modifiye edilmiş Eagle Besiyeri (DMEM) | Corning | 10-013-CM | |
| Endotoksin içermeyen plazmit DNA hazırlama kiti | Qiagen | 12943 | |
| Geliştirilmiş kemilüminesans (ECL) reaktifi | PerkinElmer | NEL 105001 | |
| Etilendiamintetraasetik asit (EDTA) | USB | 15699 | |
| Fetal sığır serumu | Gibco | A5209401 | |
| Glikoz | Sigma-Aldrich | G8270 | |
| GlutaMax | Gibco | 35050-061 | |
| Minimum esansiyel besiyeri (MEM) | Corning | 10-010-CVR | |
| NaCl | Honeywell | 31434S | |
| Neurobasal besiyeri | Gibco | 21103049 | |
| Optima XE-90 Ultrasantrifüj | Beckman | NA | |
| Papain | Worthington | LS003126 | |
| Fenilsülfonil florür (PMSF) | ACROS ORGANICS | 215740050 | |
| Polietilenimin | Sigma-Aldrich | P3143 | |
| Poli-L-lizin | Sigma-Aldrich | P6516 | |
| Potasyum klorür (KCl) | Honeywell | 12636 | |
| Rodamin anti-aktin antikoru | BioRad | 12004164 | |
| Sodyum dodesil sülfat (SDS) | USB | 75819 | |
| Sodyum piruvat | Gibco | 11360070 | |
| StarBright Blue 520 keçi anti-fare IgG | Biorad | 12005867 | |
| StarBright Blue 700 keçi anti-tavşan IgG | BioRad | 12004161 | |
| Sakkaroz | Sigma-Aldrich | S5391 | |
| SW-28 Rotoru | Beckman | Metin mevcut değil. Lütfen çevrilmesini istediğiniz metni sağlayın. | |
| TansIT-LT1 Transfeksiyon reaktifi | Mirus | MR-MIR-2300 | |
| TEMED | USB | 76320 | |
| Tris(hidroksimetil)aminometan (Tris) | USB | 75825 | |
| Triton X-100 | Sigma-Aldrich | Lütfen çevrilecek metni sağlayın. Sadece "T9284" kodu gönderildi; çevirmem için kaynak metni paylaşmanız gerekmektedir. | |
| β-merkaptoetanol | Sigma-Aldrich | M3148 |
Kaynaklar
- Verkhratsky A, Nedergaard M. Physiology of astroglia. Physiol Rev. 2018;98(1):239-389.
- Eroglu C, Barres BA. Regulation of synaptic connectivity by glia. Nature. 2010;468(7321):223-31.
- Sofroniew MV. Astrogliosis. Cold Spring Harb Perspect Biol. 2014;7(2):a020420.
- Sofroniew MV, Vinters HV. Astrocytes: biology and pathology. Acta Neuropathol. 2010;119(1):7-35.
- Brandebura AN, Paumier A, Onur TS, Allen NJ. Astrocyte contribution to dysfunction, risk and progression in neurodegenerative disorders. Nat Rev Neurosci. 2023;24(1):23-39.
- Sofroniew MV. Molecular dissection of reactive astrogliosis and glial scar formation. Trends Neurosci. 2009;32(12):638-47.
- Hol EM, Pekny M. Glial fibrillary acidic protein (GFAP) and the astrocyte intermediate filament system in diseases of the central nervous system. Curr Opin Cell Biol. 2015;32:121-30.
- Brenner M, et al. Mutations in GFAP, encoding glial fibrillary acidic protein, are associated with Alexander disease. Nat Genet. 2001;27(1):117-20.
- Lin NH, Jian WS, Perng MD. Deletions in glial fibrillary acidic protein leading to alterations in intermediate filament assembly and network formation. Int J Mol Sci. 2025;26(5):1913.
- Yang AW, et al. Effects of Alexander disease-associated mutations on the assembly and organization of GFAP intermediate filaments. Mol Biol Cell. 2022;33(8):ar69.
- Lin NH, Perng MD. Experimental approaches for biochemical analysis of glial fibrillary acidic protein and its disease-associated variants. J Vis Exp. 2025;(225).
- Hagemann TL, Connor JX, Messing A. Alexander disease-associated glial fibrillary acidic protein mutations in mice induce Rosenthal fiber formation and a white matter stress response. J Neurosci. 2006;26(43):11162-73.
- Hagemann TL, et al. Antisense therapy in a rat model of Alexander disease reverses GFAP pathology, white matter deficits, and motor impairment. Sci Transl Med. 2021;13(620):eabg4711.
- Hagemann TL. Alexander disease: models, mechanisms, and medicine. Curr Opin Neurobiol. 2022;72:140-7.
- Lange SC, et al. Primary cultures of astrocytes: their value in understanding astrocytes in health and disease. Neurochem Res. 2012;37(11):2569-88.
- Lin NH, Yang AW, Chang CH, Perng MD. Elevated GFAP isoform expression promotes protein aggregation and compromises astrocyte function. FASEB J. 2021;35(5):e21614.
- Lin NH, Jian WS, Snider N, Perng MD. Glial fibrillary acidic protein is pathologically modified in Alexander disease. J Biol Chem. 2024;300(7):107402.
- Goya-Iglesias N, et al. Alexander disease mutations differentially sensitize glial fibrillary acidic protein (GFAP) to posttranslational modifications and network disruption by oxidants. Redox Biol. 2026;92:104103.
- Olabarria M, Putilina M, Riemer EC, Goldman JE. Astrocyte pathology in Alexander disease causes a marked inflammatory environment. Acta Neuropathol. 2015;130(4):469-86.
- Lee HG, Wheeler MA, Quintana FJ. Function and therapeutic value of astrocytes in neurological diseases. Nat Rev Drug Discov. 2022;21(5):339-58.
- McCarthy KD, de Vellis J. Preparation of separate astroglial and oligodendroglial cell cultures from rat cerebral tissue. J Cell Biol. 1980;85(3):890-902.
- Olsen ML, et al. Functional expression of Kir4.1 channels in spinal cord astrocytes. Glia. 2006;53(5):516-28.
- Strack A, et al. Chemokines are differentially expressed by astrocytes, microglia and inflammatory leukocytes in Toxoplasma encephalitis and critically regulated by interferon-gamma. Acta Neuropathol. 2002;103(5):458-68.
- East E, Golding JP, Phillips JB. A versatile 3D culture model facilitates monitoring of astrocytes undergoing reactive gliosis. J Tissue Eng Regen Med. 2009;3(8):634-46.
- Zhang Y, Barres BA. Astrocyte heterogeneity: an underappreciated topic in neurobiology. Curr Opin Neurobiol. 2010;20(5):588-94.
- Oberheim NA, Goldman SA, Nedergaard M. Heterogeneity of astrocytic form and function. Methods Mol Biol. 2012;814:23-45.
- Vasile F, Dossi E, Rouach N. Human astrocytes: structure and functions in the healthy brain. Brain Struct Funct. 2017;222(5):2017-29.
- Oberheim NA, et al. Uniquely hominid features of adult human astrocytes. J Neurosci. 2009;29(10):3276-87.
- Peterson IL, et al. Isolation and monoculture of functional primary astrocytes from the adult mouse spinal cord. Front Neurosci. 2024;18:1367473.
- Agalave NM, et al. Isolation, culture, and downstream characterization of primary microglia and astrocytes from adult rodent brain and spinal cord. J Neurosci Methods. 2020;340:108742.
- Du F, et al. Purity, cell viability, expression of GFAP and bystin in astrocytes cultured by different procedures. J Cell Biochem. 2010;109(1):30-7.
- Lin NH, et al. The role of gigaxonin in the degradation of the glial-specific intermediate filament protein GFAP. Mol Biol Cell. 2016;27(25):3980-90.
- Lin NH, Perng MD. Synergistic effects of glial fibrillary acidic protein mutation and overexpression in the pathogenesis of Alexander disease. Int J Mol Sci. 2026;27(10).
- Perng M, et al. The Alexander disease-causing glial fibrillary acidic protein mutant, R416W, accumulates into Rosenthal fibers by a pathway that involves filament aggregation and the association of alpha B-crystallin and HSP27. Am J Hum Genet. 2006;79(2):197-213.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında