Bu çalışma, miR-1298'in CRC'deki invazyon ve migrasyon ile yakından ilişkili olduğunu ve CRC progresyonunu inhibe ederek bir tümör baskılayıcı olarak işlev görebileceğini kanıtlamakta, böylece CRC tedavisi için yeni bir terapötik hedef olma potansiyelini vurgulamaktadır.
Araştırma makalesi
miR-1298/Kemik Morfogenetik Protein 7 Aksının Kolorektal Kanserdeki Rolü
* These authors contributed equally
Bu makalede
Özet
Özet
Kolorektal kanser (CRC) insidansı son yıllarda artış göstermektedir. Bu çalışmada, CRC'de miR-1298'in klinik önemi ve moleküler mekanizmaları araştırılmıştır. Toplam 85 CRC hastası çalışmaya dahil edilmiştir. Tüm gen seviyeleri RT-qPCR ile değerlendirilmiştir. CRC hücrelerinde miR-1298 ve kemik morfogenetik protein 7 (BMP7) seviyeleri hücre transfeksiyonu kullanılarak düzenlenmiştir. miR-1298'in hedefi biyoinformatik analiz kullanılarak öngörülmüş ve çift lüsiferaz raporlayıcı sistem ile tanımlanmıştır. CRC hücre fonksiyonları CCK-8 analizi, Transwell analizi ve akış sitometrisi kullanılarak değerlendirilmiştir. CRC dokularındaki miR-1298 ve BMP7 arasındaki korelasyon, Pearson korelasyon analizi ile incelenmiştir. miR-1298, CRC'de önemli ölçüde düşük eksprese edilmişti ve malign klinikopatolojik özelliklerle ilişkiliydi. CRC hücrelerinde miR-1298 proliferasyonu, migrasyonu ve invazyonu baskılamış, apoptozu ise artırmıştır. BMP7, miR-1298'in bir alt hedefiydi ve miR-1298 ile negatif korelasyon gösteriyordu. BMP7'nin aşırı ekspresyonu, miR-1298'in CRC hücrelerindeki proliferasyon, migrasyon ve invazyon üzerindeki baskılayıcı etkisinin yanı sıra apoptozu teşvik edici etkisini kısmen tersine çevirmiştir. miR-1298, invazyon ve migrasyon ile ilişkiliydi ve CRC progresyonunu baskılayabilir. BMP7, CRC'de miR-1298'in potansiyel bir fonksiyonel aracısı olabilir.
Giriş
CRC, dünya genelinde kansere bağlı ölümlerin temel nedenlerinden biri olarak sıralanmakta ve dünya çapında ciddi bir sağlık yükü oluşturmaktadır1. CRC, kolon-rektumun epitel hücrelerinden köken alır ve genellikle birkaç yıl süren, adenomdan kansere ilerleme olarak bilinen çok aşamalı bir süreç aracılığıyla kademeli olarak gelişir2. CRC'nin sonuçları kapsamlı ve çok yönlüdür. Ölüm riskinin yanı sıra, CRC hastaların günlük yaşamları üzerinde de önemli bir etkiye sahip olabilir. Tedavi tipik olarak, kalıcı kolostomi, bağırsak disfonksiyonu veya cinsel ve üriner disfonksiyon gibi komplikasyonlarla sonuçlanabilecek büyük cerrahi müdahaleler gerektirir3. Ayrıca, kemoterapi, hedefe yönelik tedavi ve uzun süreli izlemenin getirdiği mali yük, hem hastalar hem de sağlık sistemi üzerinde önemli bir baskı oluşturur. Bu nedenle, CRC'nin altında yatan moleküler mekanizmaların araştırılması, halk sağlığı alanında temel bir öncelik olmaya devam etmektedir.
CRC'de, spesifik mikroRNA'ların (miRNA'lar) düzensizliği, tümör oluşumunun belirgin bir özelliğidir ve temel süreçleri etkiler4. Diferansiyel olarak eksprese edilen bu miRNA'ların tanımlanması, sadece CRC'nin patogenezine dair anlayışımızı geliştirmekle kalmaz, aynı zamanda yeni tanısal biyobelirteçler ve terapötik hedefler için potansiyel yollar sunar. Kanserle ilişkili birçok miRNA arasında, miR-1298 temel bir araştırma hedefi olarak ortaya çıkmıştır. Mevcut kanıtlar, miR-1298'in çeşitli kanserlerde sıklıkla bir tümör baskılayıcı olarak hareket ettiğini göstermektedir. Örneğin, küçük hücreli dışı akciğer kanserinde (NSCLC), temel onkogenik yolakları hedefleyerek hücre büyümesini ve invazyonunu inhibe eder5. Benzer şekilde, beyin tümörlerinde, downregülasyonu tümör gelişimi ile ilişkilendirilirken, restorasyonu tümör progresyonunu inhibe eder6. Diğer kanserlerdeki yerleşik tümör baskılayıcı rolü göz önüne alındığında, miR-1298'in kolorektal karsinojenezdeki spesifik rolü —özellikle CRC'deki aşağı akış hedefleri ve fonksiyonel sonuçları— büyük ölçüde keşfedilmemiş durumdadır. CRC'nin diğer malignitelere kıyasla farklı moleküler manzarası düşünüldüğünde, bu bilgi eksikliği oldukça önemlidir.
BMP7, transforme edici büyüme faktörü-β (TGF-β) süper ailesine ait, salgılanan ve fonksiyonel açıdan çok yönlü bir sitokindir7. CRC'de BMP7 öncelikle tümör destekleyici bir rol oynar. BMP7, CRC dokularında ve hücrelerinde yaygın olarak yukarı regüle edilir8. BMP7, muhtemelen pro-invaziv sinyal yolaklarını aktive ederek ve migrasyonu desteklemek için tümör mikroçevresini modüle ederek kanser hücrelerinin invazyon, migrasyon ve kök hücre benzeri özelliklerini artır9. Çeşitli kanser türlerinde, spesifik miRNA'lar BMP7'nin doğrudan post-transkripsiyonel baskılayıcıları olarak tanımlanmıştır. Örneğin, miR-137, hücre büyümesini inhibe etmek için NSCLC'de BMP7'yi hedefler10. Bu bulgular ışığında, BMP7'nin CRC'de rol oynayabileceği hipotezini kurduk. Ancak, miR-1298'in CRC'de doğrudan BMP7'yi hedefleyip hedeflemediği deneysel olarak doğrulanmamıştır. Ayrıca, mekanistik doğrulama, fonksiyonel fenotipleme ve klinik korelasyonu entegre ederek CRC'de miR-1298/BMP7 eksenini kapsamlı bir şekilde karakterize eden herhangi bir çalışma bulunmamaktadır.
Bu nedenle, şunları amaçladık: (1) CRC'de miR-1298'in düzenleyici paternini ve klinikopatolojik özelliklerle ilişkisini araştırmak; (2) miR-1298'in CRC proliferasyonu, apoptozu, invazyonu ve migrasyonu üzerindeki etkilerini fonksiyonel olarak karakterize etmek; (3) CRC'de BMP7'nin miR-1298 hedefi olduğunu deneysel olarak doğrulamak ve (4) CRC hastalarında miR-1298'in tanısal ve prognostik değerini değerlendirmek. Bu tamamlayıcı yaklaşımları entegre ederek, CRC'de miR-1298/BMP7 aksının kapsamlı bir şekilde anlaşılmasını sağlamayı ve bu hastalık için yeni biyobelirteçler ile tedavi hedefleri keşfetmeyi amaçladık.
Protokol
Bu çalışma, Wuhan Beyin Hastanesi Etik Kurulu tarafından onaylanmıştır (onay numarası: 2020826). Tüm katılımcılar, çalışmaya dahil edilmeden önce yazılı bilgilendirilmiş onam formu imzalamıştır. Bu çalışma, Helsinki Deklarasyonu'na uygun olarak yürütülmüştür. Verileri çalışmaya dahil edilen tüm katılımcılardan yayın onamı alınmıştır. Bu çalışmada kullanılan reaktiflerin, kitlerin, antikorların, hücre hatlarının, plazmidlerin ve ekipmanların üreticileri ve katalog bilgileri dahil olmak üzere detayları Materyal Tablosunda sunulmuştur.
Hastalar ve numuneler
Mayıs 202 ile Ağustos 2024 tarihleri arasında, CRC tanılı 85 hastadan eşleştirilmiş kanserli ve komşu kanserli olmayan doku örnekleri topladık. Katılımcıların hiçbirinin kanser, kemoterapi veya radyoterapi öyküsü bulunmamaktaydı. Ayrıca, fiziksel muayene yaptıran 71 sağlıklı birey bu çalışmaya dahil edilmiştir.
Prognoz
miR-1298'in yüksek/düşük ekspresyon grupları için kritik değerler, CRC doku örneklerindeki medyan ekspresyon düzeyine göre belirlenmiştir. Takip süresi 12 ay olup, takipler telefonla veya yeniden muayene ile gerçekleştirilmiştir. Bitiş noktası olay ölüm olarak belirlenmiştir. 85 hasta arasında, takip süresince 14 ölüm kaydedilmiş olup sansürlenmiş hasta bulunmamaktadır.
Hücre kültürü ve hücre transfeksiyonu
Normal insan kolon hücre hattı FHC'nin yanı sıra insan CRC hücre hatları SW480 ve HCT-16 temin edildi. Hücreler, %10 fetal sığır serumu (FBS) ile takviye edilmiş Dulbecco's Modified Eagle Medium (DMEM) içerisinde kültüre edildi. Lipofectamine 30 kullanılarak SW480 ve HCT-16 hücrelerine miR-1298 mimik veya inhibitörü transfekte edildi. Ardından, SW480 ve HCT-16 hücrelerine miR-1298 mimik ile pcDNA3.1-BMP7 (OE-BMP7) veya pcDNA3.1 vektörü (OE-NC) ko-transfekte edildi. Spesifik adımlar şu şekildedir: Hücreler, %70–80 konfluens seviyesine ulaşana kadar 37 °C'de %5 CO₂ ile kültüre edildi. Hücreler, 24 kuyucuklu bir plakada kuyucuk başına 5 x 10⁴ hücre olacak şekilde ekildi ve gece boyunca inkübe edildi. 250 µL Opti-MEM, 1.25 µL Lipofectamine 30, 1.5 µL P30, 50 nM miRNA ve 1 µg plazmid içeren bir transfeksiyon karışımı hazırlandı ve hücrelere eklenmeden önce 15 dakika inkübe edildi. 6 saat sonra besiyeri tam DMEM ile değiştirildi ve örnekler 48. saatte toplandı.
Biyoinformatik analiz
miR-1298 hedefi, TargetScan 8.0 veri tabanı (https://www.targetscan.org/vert_80/) kullanılarak öngörüldü. Ardından miR-1298 ile BMP7 arasındaki öngörülen bağlanma bölgesi belirlendi.
Çift lüsiferaz raporör analizi
Yaban tip ve mutant 3′Öngörülen miR-1298 bağlanma bölgesini içeren BMP7 -UTR dizileri, sırasıyla BMP7 Wt ve BMP7 Mut reporter plazmidlerini oluşturmak amacıyla pmirGLO dual-luciferase reporter vektörüne klonlanmıştır. Lusiferaz analizi için SW480 ve HCT-116 hücreleri; BMP7 Wt veya BMP7 Mut plazmidleri ile birlikte miR-1298 mimiği, inhibitörü veya bunlara karşılık gelen negatif kontrolleri ile ko-transfekte edilmiştir. Spesifik adımlar şu şekildedir: Hücreler, 24 kuyucuklu plakalara 4 x 10⁴ kuyu başına hücre. Her bir kuyuya şu maddelerle ko-transfeksiyon yapılmıştır: 0.8 µg reporter plazmiti, 50 nM miR-1298 kimiği, inhibitörü veya karşılık gelen negatif kontrol ve Lipofectamine 300. 8 saat sonra, kültür ortamı aspire edildi ve hücreler şunlar eklenerek lizlendi: 100 µL 15 dakika boyunca pasif lizis tamponu (PLB) ile. A 20 µL lizattan alınan bir alikot, beyaz bir analiz plakasına aktarıldı, 50 µL LAR II eklendi ve ateş böceği lusiferaz aktivitesi ölçüldü. Ek bir 50 µL Durdur&Renilla ölçümü için Glo reaktifi eklendi. Son olarak, verilerin normalizasyonu tamamlandı.
RT-qPCR
RNA, TRIzol reaktifi kullanılarak kültüre edilmiş hücrelerden, serumdan ve dondurulmuş CRC dokularından ekstrakte edilmiştir. Kısaca, hücreler her 10 cm'lik kap için 1 mL TRIzol içerisinde doğrudan lize edilmiş; doku parçaları ise buz üzerinde TRIzol ile homojenize edilmiştir. Kloroform faz ayrımı ve izopropanol çöktürmesinin ardından, RNA peletleri %75'lik etanol ile yıkanmış, havada kurutulmuş ve RNase içermeyen su içerisinde çözülmüştür. RNA saflığı ve konsantrasyonu bir mikrohacim spektrofotometre (A260/A280 = 1,8–2,1, A260/A230 > 2.0). mRNA analizi için, kalıntı genomik DNA gDNA Eraser ile uzaklaştırıldı ve 50 ng RNA, oligo(dT) ve rastgele hekzamerler içeren PrimeScript RT Reagent Kit kullanılarak ters transkripsiyonla cDNA'ya dönüştürüldü (37 °C 15 dakika boyunca ve 85 °C (5 s boyunca). miRNA analizi için, Mir-X miRNA First-Strand Synthesis Kit kullanılarak 10 ng RNA, miR-1298-5p veya U6'ya özgü stem-loop primer ile ters transkribe edildi (16 °C 30 dk boyunca, 42 °C 30 dakika boyunca ve 85 °C (5 s boyunca). Her çalışmaya RT-eksiltilmiş (no-RT) ve kalıp-eksiltilmiş (no-template) kontroller dahil edildi. cDNA uygun şekilde seyreltildi ve − değerinde saklandı.80 °C qPCR'ye kadar. miR-1298 ve BMP7 seviyeleri, SYBR Green kimyası kullanılarak kantifiye edildi. miRNA ve mRNA normalizasyonu için sırasıyla U6 ve GAPDH endojen kontroller olarak kullanıldı. Göreceli ekspresyon, karşılaştırmalı 2−ΔΔCt yöntem. Primer dizileri (5′–3′) şunlardı: miR-1298-ileri: TCGGCAGGTTCATTCGGCTGTC, geri: CTCAACTGGTGTCGTGGA; U6-ileri: CTCGCTTCGGCAGCACA, geri: AACGCTTCACGAATTTGCGT; BMP7-ileri: CAAGAACCAGGAAGCCCTGC, geri: TTCTTACAGGCCTGCCTGG; ve GAPDH-ileri: GACATGCCGCCTGGAGAAAC, geri: AGCCCAGGATGCCCTTTAGT. qPCR için reaksiyon koşulları şu şekildeydi: 95 °C 2 için dak, 35 döngü 95 °C 30 için s, 60 °C 30 için s ve 72 °C 60 için s. Standart eğrileri oluşturmak için cDNA kalıpları seri olarak seyreltilmiştir (5 kat). Amplifikasyon verimliliği E, şu formül kullanılarak hesaplanmıştır: E = (10-1/slope-1) x 10%. Primerlerin amplifikasyon verimliliği şu şekilde hesaplanmıştır: EmiR-1298 = %102,1, EBMP7 = %96,3, EGAPDH = %10,3, EU6 = %9,8. Tüm primerler %90-10'lık kabul edilebilir verimlilik aralığını karşılamıştır. Tüm RT-qPCR deneyleri, her biri 3 teknik replikat içeren üç bağımsız biyolojik replikatı kapsamıştır. U6 ve GAPDH'nin stabilitesi geNorm algoritması kullanılarak değerlendirilmiştir. Her iki genin M değerleri, önerilen 1,5 eşik değerinin altında kalarak uygunluklarını doğrulamıştır.
Hücre sayım kiti-8 (CCK-8) analizi
SW480 ve HCT-16 hücreleri, 96 kuyucuklu plaklara 10 µL tam DMEM içerisinde kuyucuk başına 2 x 10³ hücre olacak şekilde ekildi ve 24 saat inkübe edildi. Transfeksiyondan 48 saat sonra, plaklar 37 °C'de 1 saat boyunca inkübe edildi. 450 nm'deki absorbans, bir mikroplaka okuyucu kullanılarak ölçüldü. Grup başına altı tekrar kuyucuk kullanıldı ve hücre içermeyen, sadece besiyeri ve CCK-8 içeren bir boş kontrol (blank) değeri çıkarıldı.
Akış sitometrisi
Apoptoz, Annexin V-FITC/PI Apoptosis Detection Kit kullanılarak akış sitometrisi ile değerlendirildi. Transfeksiyondan 48 saat sonra, SW480 ve HCT-16 hücreleri tripsinizasyon ile toplandı, soğuk PBS ile iki kez yıkandı ve 1x bağlama tamponu içinde 1 x 10⁶ hücre/mL konsantrasyonda yeniden süspanse edildi. 1 x 10⁵ hücrelik alikotlar FACS tüplerine aktarıldı; oda sıcaklığında, karanlıkta 15 dakika boyunca 5 µL Annexin V-FITC ve 5 µL PI ile boyandı ve analizden önce 40 µL bağlama tamponu ile seyreltildi. Kompanzasyon ve kapı (gate) ayarları için boyanmamış, tekli boyanmış ve staurosporine uygulanmış pozitif kontroller dahil edildi. Veriler FlowJo yazılımı (FlowJo 10.2) kullanılarak analiz edildi.
Hücre göçü ve invazyonu
Hücre göçü ve invazyonu, 8 µm gözenek boyutuna sahip PET membranlı 24 kuyucuklu Transwell odacıkları kullanılarak değerlendirilmiştir. İnvazyon analizleri için üst membran, ekim öncesinde 37 °C'de 2 saat boyunca 50 µL Matrigel ile önceden kaplanmış ve 30 dakika boyunca serumsuz DMEM ile rehidre edilmiştir; göç analizlerinde bu kaplama adımı uygulanmamıştır. Transfekte edilmiş SW480 ve HCT-16 hücreleri, serumsuz DMEM içerisinde 12 saat boyunca aç bırakılmış ve ardından %0,1 BSA içeren 10 µL serumsuz DMEM içindeki 2 x 10⁴ hücre üst odacığa ekilmiştir. Alt odacık, kemoatraktan olarak %10 FBS içeren 60 µL DMEM ile doldurulmuştur. 37 °C'de 24 saat (göç) veya 48 saat (invazyon) sonra, üst yüzeyde göç etmemiş olan hücreler pamuklu bir çubukla temizlenmiştir. Alt yüzeydeki hücreler %4 paraformaldehit ile 15 dakika boyunca fikse edilmiş, %0,1 kristal viyole ile 20 dakika boyunca boyanmış, durulanmış ve havada kurutulmuştur. Membran başına beş rastgele alan, ters mikroskop kullanılarak 20x büyütmede görüntülenmiş ve iki bağımsız gözlemci tarafından manuel olarak sayılmıştır.
Western blot
Toplam hücresel proteinler, proteaz inhibitör kokteyli ile desteklenmiş RIPA lizis tamponu içerisinde hücrelerin homojenize edilmesiyle ekstrakte edilmiştir. Protein konsantrasyonları, BCA Protein Assay Kit kullanılarak belirlenmiştir. Eşdeğer miktarlardaki protein lizatları (50 µg), %10 SDS-PAGE ile ayrılmış ve ardından PVDF membranlara aktarılmıştır. Spesifik olmayan bağlanma bölgeleri %2 BSA ile bloke edildikten sonra, membranlar BMP7 (1:1.0) ve GAPDH (1:2.0) karşıtı primer antikorlar ile 37 °C'de 90 dk boyunca inkübe edilmiştir. PBST ile üç kez yıkamanın ardından, membranlar horseradish peroxidase (HRP)-konjuge ikincil antikor ile inkübe edilmiştir. Protein bantları, bir ECL kemilüminesans reaktifi kullanılarak görselleştirilmiştir.
İstatistiksel analiz
Veriler SPSS 27.0 kullanılarak analiz edildi. Aksi belirtilmedikçe tüm değerler ortalama ± standart sapma (SD) olarak raporlandı. Normal dağılımı kontrol etmek için Shapiro-Wilk testi uygulandı. İki grup arasındaki gruplar arası farklar, eşleştirilmemiş çift kuyruklu Student t-testi kullanılarak belirlendi. CRC tümör dokuları ile komşu kanserli olmayan dokular arasındaki miR-1298 ekspresyonunun karşılaştırılması, eşleştirilmiş Student t-testi kullanılarak gerçekleştirildi. Parametre testi yapılmadan önce, varyansların homojenliğini değerlendirmek için Levene testi kullanıldı. Çoklu grup karşılaştırmaları için parametrik veriler tek yönlü ANOVA ile analiz edildi ve post hoc ikili karşılaştırmalar için Tukey HSD testi kullanıldı. CRC dokularındaki miR-1298 ve BMP7 arasındaki korelasyon, Pearson korelasyon analizi kullanılarak değerlendirildi. p < 0.05 istatistiksel olarak anlamlı kabul edildi.
Sonuçlar
CRC'de miR-1298 belirgin şekilde azalmıştır
CRC dokularında miR-1298 seviyeleri, komşu kanserli olmayan dokulara göre daha düşüktür (Şekil 1A). Lenf nodu metastazı analizi, lenf nodu metastazı olan hastalardaki miR-1298 seviyelerinin, lenf nodu metastazı olmayanlara göre daha düşük olduğunu ortaya koymuştur (Şekil 1B). Tümör boyutunun > 5 cm olduğu CRC hastalarında miR-1298, tümör boyutu ≤ 5 cm olan hastalara göre anlamlı derecede daha düşüktü (p = 0.017; Şekil 1C). miR-1298, ilerleyen tümör evresiyle birlikte azalmış olup, evre 1 ile evre 3 arasında (p = 0.047) ve evre 1 ile evre 4 arasında (p = 0.09) anlamlı farklılıklar görülmüştür (Şekil 1D). CRC hastalarının serumunda miR-1298 belirgin şekilde azalmıştır (Şekil 1E) ve ROC eğrisi analizi; %78,82 duyarlılık ve %83,10 özgüllük ile 0,89'luk bir AUC değeri göstermiştir (Şekil 1F).
miR-1298'in medyan ekspresyon seviyesine göre, CRC'li hastalar düşük ve yüksek ekspresyon gruplarına ayrılmıştır. CRC'li hastalarda miR-1298; TNM evresi (p < 0.01), tümör boyutu (p = 0.03), lenf nodu metastazları (p = 0.03) ve tümör diferansiyasyonu (p = 0.035) ile yakından ilişkili bulunmuştur. Ancak miR-1298, yaş (p = 0.832) veya cinsiyet (p = 0.165) ile ilişkili değildir (Tablo 1). Kaplan–Meier analizi, düşük miR-1298 ekspresyonuna sahip CRC'li hastaların, yüksek miR-1298 ekspresyonuna sahip olanlara göre daha kısa genel sağkalım sürelerine sahip olduğunu göstermiştir (log-rank p = 0.039; Şekil 1G). Cox regresyon analizi, azalmış miR-1298 ekspresyonunun CRC'li hastalarda potansiyel bir prognostik gösterge olabileceğini ortaya koymuştur (p = 0.035, Tablo 2).
miR-1298, CRC hücrelerinde proliferasyonu baskılamış ve apoptozu teşvik etmiştir
SW480 hücrelerinde, miR-1298 mimic veya inhibitörü ile yapılan transfeksiyon, miR-1298 ekspresyonunu etkili bir şekilde değiştirmiş olup, inhibitör NC ve miR-1298 inhibitörü grupları arasında anlamlı bir fark görülmüştür (p = 0.05; Şekil 2A). miR-1298'in aşırı ekspresyonu hücre canlılığını azaltmış ve apoptozu teşvik ederken, miR-1298'in baskılanması hücre canlılığını artırmış ve apoptozu azaltmıştır; apoptoz, inhibitör NC ve miR-1298 inhibitörü grupları arasında anlamlı düzeyde farklılık göstermiştir (p = 0.08; Şekil 2B,C). HCT-16 hücrelerinde transfeksiyon, miR-1298 ekspresyonunu benzer şekilde değiştirmiş (p = 0.002; Şekil 2D) ve hücre canlılığı (p = 0.07; Şekil 2E) ile apoptoz (p = 0.05; Şekil 2F) açısından inhibitör NC ve miR-1298 inhibitörü grupları arasında anlamlı farklar gözlemlenmiştir.
miR-1298, CRC hücrelerinin migrasyon ve invazyonunu baskıladı
miR-1298'in aşırı ekspresyonu, migre olan ve invazif SW480 ve HCT-16 hücre sayısını azaltırken, miR-1298 inhibisyonu hücre migrasyonunu ve invazyonunu artırmıştır (Şekil 3A–D). SW480 hücrelerinde, invazif hücre sayısı miR-1298 mimic grubunda, mimic NC grubuna göre önemli ölçüde daha düşüktü (p = 0,04; Şekil 3B).
BMP7, CRC'de miR-1298'in bir hedefiydi
TargetScan, BMP7'nin miR-1298'in bir hedefi olabileceğini belirtmiştir (Şekil 4A). SW480 ve HCT-16 hücrelerinde yapılan çift lüsiferaz raporlayıcı analizleri, miR-1298 aşırı ekspresyonunun veya inhibisyonunun, BMP7 Mut raporlayıcısının lüsiferaz aktivitesini değil, ancak BMP7 Wt raporlayıcısının lüsiferaz aktivitesini değiştirdiğini göstermiştir (Şekil 4B,C). HCT-116 hücrelerinde, BMP7 Wt raporlayıcısının lüsiferaz aktivitesi, miR-1298 mimic grubunda mimic NC grubuna göre anlamlı derecede daha düşük bulunmuştur (p = 0.02; Şekil 4C). CRC dokularında BMP7 belirgin şekilde artmıştır (Şekil 4D). Ayrıca, BMP7 ve miR-1298 negatif bir korelasyon sergilemiştir (Şekil 4E). SW480 ve HCT-16 hücrelerinde miR-1298'in aşırı ekspresyonu, BMP7'yi hem RNA hem de protein düzeyinde inhibe ederken, miR-1298 inhibisyonu BMP7'yi yukarı regüle etmiştir (Şekil 4F,G).
miR-1298, BMP7 regülasyonu yoluyla CRC'de tümör baskılayıcı bir etki gösterebilir
SW480 hücrelerinde, BMP7 ekspresyonunun başarılı bir şekilde modüle edildiği doğrulanmıştır (Şekil 5A). BMP7 aşırı ekspresyonu, miR-1298 aşırı ekspresyonunun neden olduğu hücre canlılığındaki azalmayı ve apoptozdaki artışı kısmen geri çevirirken, BMP7 nakavtı hücre canlılığını daha da azaltmış ve apoptozu artırmıştır (Şekil 5B,C). HCT-16 hücrelerinde de BMP7 ekspresyonunun başarılı bir şekilde modüle edildiği doğrulanmış (Şekil 5D), hücre canlılığı ve apoptoz üzerinde buna paralel etkiler gözlemlenmiştir (Şekil 5E,F). SW480 hücrelerinde, miR-1298 mimic + si-BMP7 grubunda BMP7 ekspresyonu ve hücre canlılığı, miR-1298 mimic + si-NC grubuna göre anlamlı derecede daha düşüktür (p = 0.002 ve p = 0.05, sırasıyla; Şekil 5A,B). Apoptoz, miR-1298 mimic + OE-BMP7 ve miR-1298 mimic + OE-NC grupları arasında anlamlı derecede farklılık göstermiştir (p = 0.01; Şekil 5C). HCT-16 hücrelerinde, miR-1298 mimic + si-BMP7 grubunda hücre canlılığı, miR-1298 mimic + si-NC grubuna göre anlamlı derecede daha düşüktür (p = 0.02; Şekil 5E). Yüksek düzeyde eksprese edilen BMP7, miR-1298'in CRC hücre migrasyonu ve invazyonu üzerindeki baskılayıcı etkilerini kısmen geri çevirmiş, BMP7 nakavtı ise bu inhibitör etkileri artırmıştır (Şekil 6A–D). SW480 hücrelerinde, BMP7 nakavtı, si-NC grubuyla karşılaştırıldığında migre olan ve invazif hücre sayısını anlamlı derecede azaltmıştır (p = 0.03 ve p = 0.020, sırasıyla; Şekil 6A,B). HCT-16 hücrelerinde, BMP7 aşırı ekspresyonu OE-NC grubuna kıyasla migre olan hücre sayısını anlamlı derecede değiştirirken (p = 0.030; Şekil 6C), BMP7 nakavtı si-NC grubuna kıyasla invazif hücre sayısını anlamlı derecede azaltmıştır (p = 0.07; Şekil 6D).
VERİLERİN ERİŞİLEBİLİRLİĞİ:
Bu çalışmanın bulgularını destekleyen veriler, bir Ek Dosya olarak sunulmuştur.
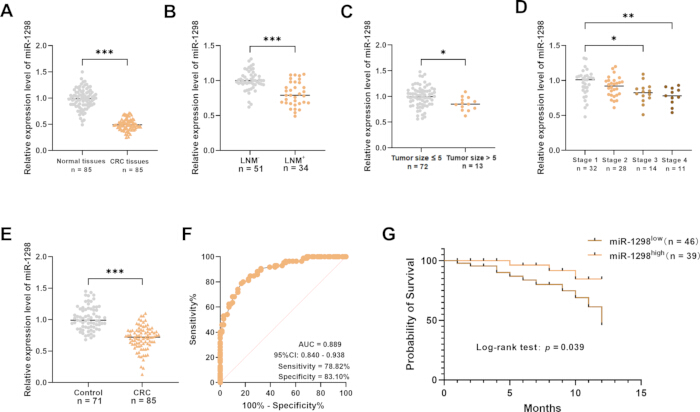
Şekil 1CRC dokularında miR-1298 ekspresyonu. (A) CRC dokularında ve komşu kanserli olmayan dokularda miR-1298'in göreli ekspresyonu. (B) Lenf nodu metastazı olan (LNM+) ve olmayan (LNM−) hastalardan alınan CRC dokularında miR-1298'in bağıl ekspresyonu. (C) Tümör boyutuna göre CRC dokularındaki miR-1298'in göreceli ekspresyonu. (D) Tümör evresine göre CRC dokularındaki miR-1298'nin göreceli ekspresyonu. (E) CRC'li hastalar ve sağlıklı kontrollerde serum miR-1298'in göreceli ekspresyonu. (F) Serum miR-1298'in CRC hastalarını sağlıklı kontrollerden ayırt etmedeki alıcı işletim karakteristik (ROC) eğrisi. (G) Düşük ve yüksek miR-1298 ekspresyonuna göre CRC hastaları için Kaplan–Meier genel sağkalım eğrileri. *p < 0.05; **p < 0.01; ***p < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
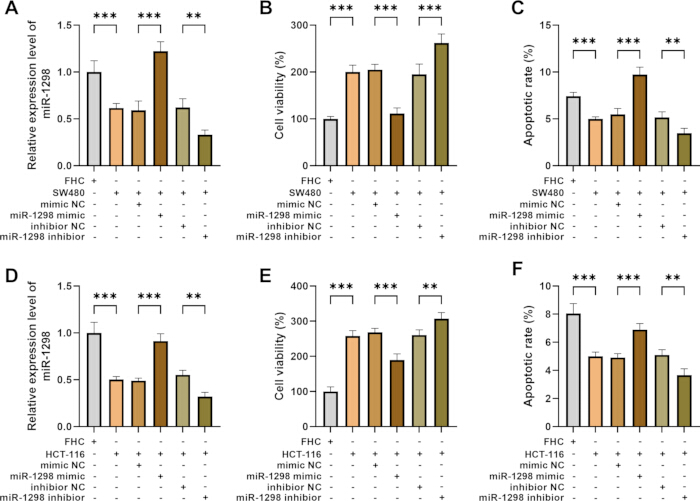
Şekil 2miR-1298'in CRC hücrelerinin proliferasyonu ve apoptozu üzerindeki etkileri. (A) miR-1298 mimic, mimic NC, miR-1298 inhibitörü veya inhibitör NC ile transfeksiyon sonrası FHC ve SW480 hücrelerinde miR-1298'in bağıl ekspresyonu. (B) miR-1298 aşırı ekspresyonu veya inhibisyonu sonrası SW480 hücrelerinin hücre canlılığı. (C) miR-1298 aşırı ekspresyonu veya inhibisyonu sonrası SW480 hücrelerinin apoptozu. (D) miR-1298 mimik, mimik NC, miR-1298 inhibitörü veya inhibitör NC ile transfeksiyona ardından FHC ve HCT-16 hücrelerinde miR-1298'in göreli ekspresyonu. (E) miR-1298 aşırı ekspresyonu veya inhibisyonu sonrası HCT-16 hücrelerinin hücre canlılığı. (F) miR-1298 aşırı ekspresyonu veya inhibisyonu sonrası HCT-16 hücrelerinin apoptozu. Veriler ortalama olarak sunulmuştur ± SS. Hata çubukları SS'yi temsil etmektedir. **p < 0.01; ***p < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
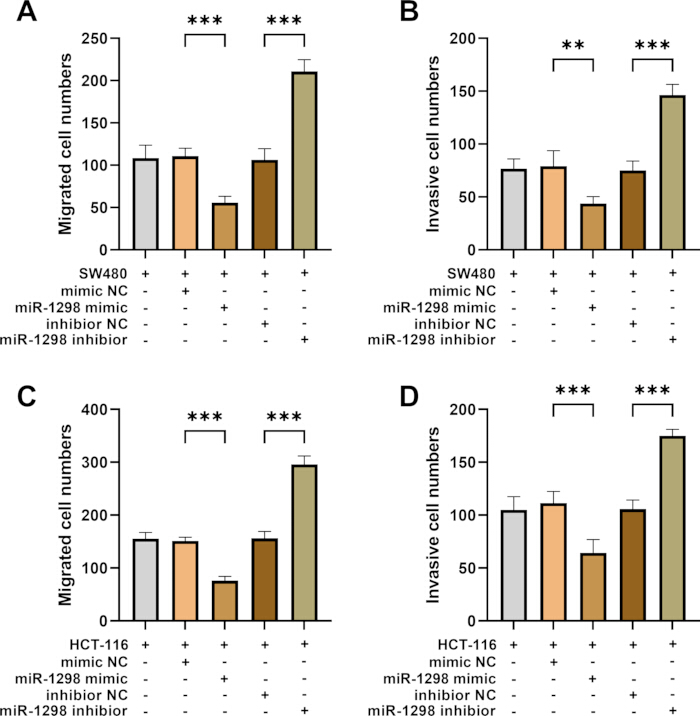
Şekil 3: miR-1298'in ... migrasyon ve invazyonu üzerindeki etkileri KRK (Kolorektal Kanser) hücreler (A) miR-1298 mimic, mimic NC, miR-1298 inhibitörü veya inhibitör NC ile transfekte edilen SW480 hücrelerindeki migre olan hücre sayıları. (B) miR-1298 mimic, mimic NC, miR-1298 inhibitörü veya inhibitör NC ile transfeksiyon sonrası SW480 hücrelerindeki invaziv hücre sayıları. (C) miR-1298 mimic, mimic NC, miR-1298 inhibitörü veya inhibitör NC ile transfeksiyondan sonra HCT-16 hücrelerindeki migre olan hücre sayıları. (D) miR-1298 mimic, mimic NC, miR-1298 inhibitörü veya inhibitör NC ile transfeksiyona tabi tutulan HCT-16 hücrelerindeki invaziv hücre sayıları. Veriler ortalama olarak sunulmuştur ± SS. Hata çubukları SS'yi temsil etmektedir. **p < 0.01; ***p < 0.001. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
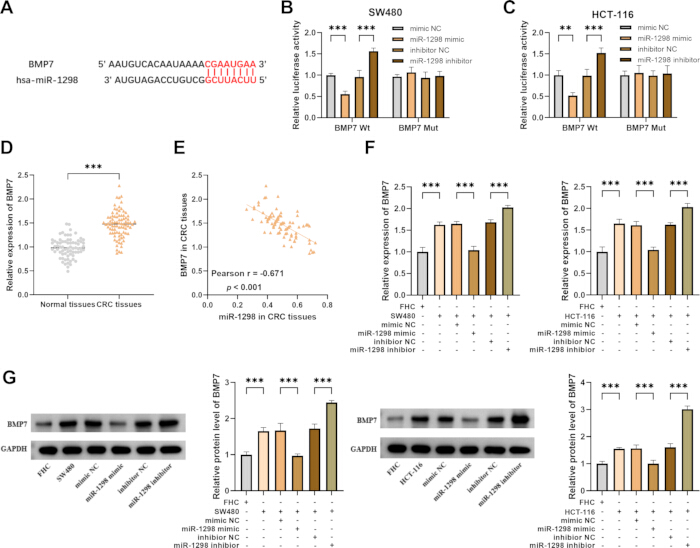
Şekil 4: miR-1298 ve BMP7 arasındaki hedefleme ilişkisi. (A) miR-1298 ile BMP7 3' arasındaki öngörülen bağlanma bölgesi′ UTR. (B) SW480 hücrelerinde miR-1298 aşırı ifadesi veya inhibisyonu sonrası BMP7 Wt ve BMP7 Mut reporterlarının göreceli lusiferaz aktivitesi. (C) HCT-16 hücrelerinde miR-1298 aşırı ifadesi veya inhibisyonu sonrası BMP7 Wt ve BMP7 Mut raporerlerinin göreceli lusiferaz aktivitesi. (D) CRC dokuları ile komşu kanserli olmayan dokulardaki BMP7 göreceli ekspresyonu. (E) CRC dokularında miR-1298 ile BMP7 ekspresyonu arasındaki korelasyon. (F) miR-1298 kimiği, kimiği NC, miR-1298 inhibitörü veya inhibitör NC ile transfeksiyondan sonra SW480 ve HCT-116 hücrelerindeki relatif BMP7 ekspresyonu. (G) miR-1298 mimic, mimic NC, miR-1298 inhibitörü veya inhibitör NC ile transfeksiyon sonrası SW480 ve HCT-16 hücrelerindeki göreceli BMP7 protein seviyeleri. **p < 0.01; ***p < 0.001. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
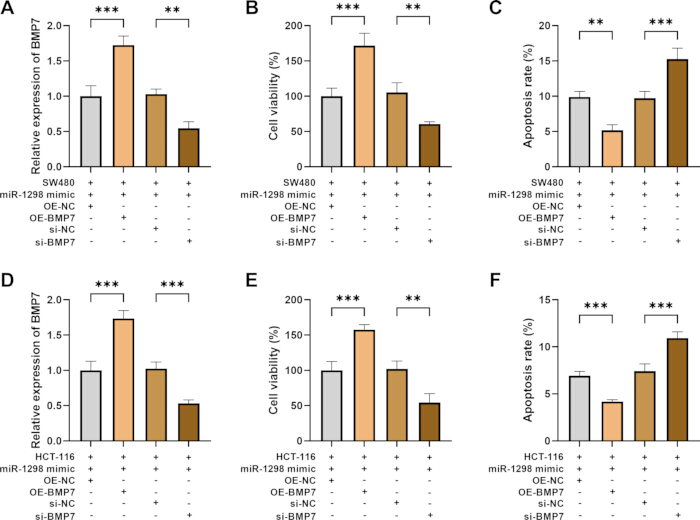
Şekil 5CRC hücrelerinde proliferasyon ve apoptozis üzerinde miR-1298 ve BMP7'nin ko-regülasyonu. SW480 ve HCT-16 hücreleri, miR-1298 mimic ile OE-NC, OE-BMP7, si-NC veya si-BMP7 birlikte transfekte edilmiştir.A) SW480 hücrelerinde bağıl BMP7 ekspresyonu. (B) SW480 hücrelerinde hücre canlılığı. (C) SW480 hücrelerinde apoptoz. (D) HCT-16 hücrelerinde göreli BMP7 ekspresyonu. (E) HCT-16 hücrelerinde hücre canlılığı. (F) HCT-16 hücrelerinde apoptoz. Veriler ortalama olarak sunulmuştur ± SS. Hata çubukları SS'yi temsil etmektedir. **p < 0.01; ***p < 0.01. Kısaltmalar: OE-NC = aşırı ekspresyon negatif kontrol; OE-BMP7 = BMP7 aşırı ekspresyonu; si-NC = küçük müdahale edici RNA negatif kontrol; si-BMP7 = BMP7 hedefli küçük müdahale edici RNA. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
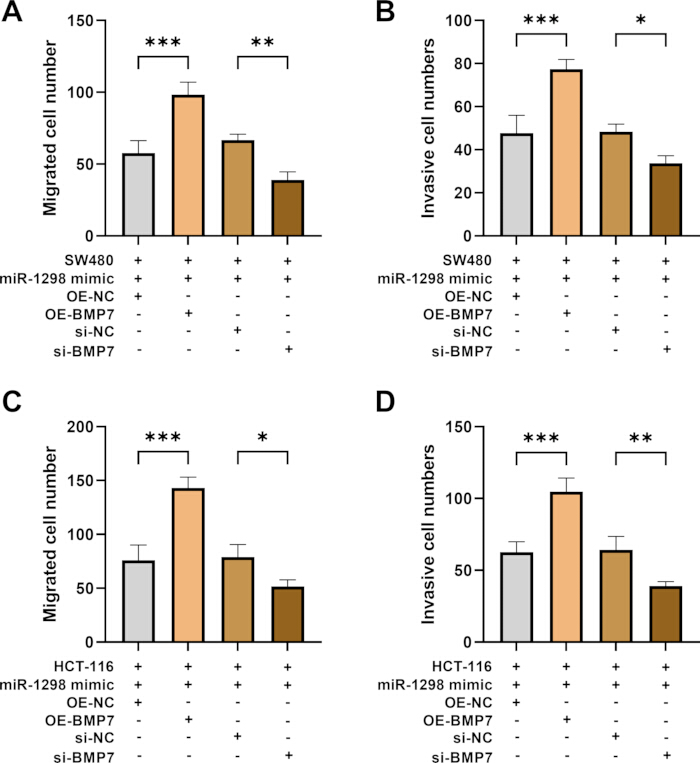
Şekil 6miR-1298 ve BMP7'nin CRC hücrelerinin migrasyon ve invazyonu üzerindeki ko-regülasyonu. SW480 ve HCT-16 hücreleri, miR-1298 mimiği ile OE-NC, OE-BMP7, si-NC veya si-BMP7 kullanılarak ko-transfekte edildi.A) SW480 hücrelerinde migre olan hücre sayıları. (B) SW480 hücrelerindeki invaziv hücre sayıları. (C) HCT-16 hücrelerinde göç eden hücre sayıları. (D) HCT-16 hücrelerindeki invaziv hücre sayıları. Veriler ortalama olarak sunulmuştur ± SS. Hata çubukları SS'yi temsil etmektedir. *p < 0.05; **p < 0.01; ***p < 0.01. Kısaltmalar: OE-NC = aşırı ekspresyon negatif kontrol; OE-BMP7 = BMP7 aşırı ekspresyon; si-NC = küçük müdahale eden RNA negatif kontrol; si-BMP7 = BMP7 hedefli küçük müdahale eden RNA. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Değişken | Toplam | miR-1298 | p değeri | |
| (n = 85) | Düşük (n = 46) | Yüksek (n = 39) | ||
| Yaş (yıl) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| Cinsiyet (erkek/kadın) | ||||
| Erkek | 44 | 27 | 17 | 0.165 |
| Kadın | 41 | 19 | 2 | |
| TNM evresi | ||||
| 1–2 | 60 | 41 | 19 | <0.01*** |
| 3–4 | 25 | 5 | 20 | |
| Tümör boyutu (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.03** |
| >5 | 13 | 12 | 1 | |
| Lenf nodu metastazı | ||||
| Evet | 34 | 25 | 9 | 0.03** |
| Hayır | 51 | 21 | 30 | |
| Tümör diferansiyasyonu | ||||
| Düşük derece | 53 | 24 | 29 | 0.035* |
| Yüksek derece | 32 | 2 | 10 | |
Tablo 1: CRC hastalarında klinikopatolojik özellikler ile miR-1298 ekspresyon seviyeleri arasındaki ilişki.Hastalar düşük (n = 46) ve yüksek (n = 39) miR-1298 ekspresyon gruplarına ayrılmış ve miR-1298 ekspresyonu ile klinikopatolojik özellikler arasındaki ilişkiler değerlendirilmiştir. *p < 0.05; **p < 0.01; ***p < 0.01. Kısaltmalar: CRC = kolorektal kanser; TNM = tümör nod metastazı.
| Değişken | Tehlike oranı | %95 GA | p değeri | |
| Alt | Üst | |||
| Yaş | 0.76 | 0.186 | 3.242 | 0.728 |
| Cinsiyet | 0.614 | 0.152 | 2.474 | 0.492 |
| TNM evresi | 4.62 | 1.181 | 18.078 | 0.028* |
| Tümör boyutu | 8.078 | 1.83 | 35.587 | 0.006** |
| Lenf nodu metastazı | 6.584 | 1.134 | 38.245 | 0.036* |
| Tümör diferansiyasyonu | 6.392 | 1.748 | 23.37 | 0.05** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tablo 2: CRC'li hastalarda prognostik faktörlerin Cox regresyon analizi. Klinikopatolojik özelliklerin ve miR-1298 ekspresyonunun CRC'li hastalardaki prognozla ilişkisini değerlendirmek için Cox regresyon analizi yapılmıştır. *p < 0.05; **p< 0.01. Kısaltmalar: CI = güven aralığı; CRC = kolorektal kanser; TNM = tümör nod metastazı.
Tartışma
CRC, yüksek insidansı ve yüksek mortalite oranları nedeniyle bireyler ve toplum üzerinde önemli bir yük oluşturmaktadır. Kolonoskopi gibi tarama programlarına rağmen, çok sayıda CRC hastası hâlâ ileri evrede teşhis edilmektedir; bu durum, erken teşhis için daha etkili, non-invaziv biyobelirteçlere duyulan acil ihtiyacı vurgulamaktadır1. Ayrıca, ilaç direnci ve hastalık nüksünün nispeten yaygın olması nedeniyle metastatik CRC'nin prognozu kötü seyretmeye devam etmektedir12. Bu nedenle, CRC'nin başlangıcı, ilerlemesi ve metastazının temelindeki moleküler mekanizmaların derinlemesine anlaşılması, yeni hedefe yönelik tedavilerin geliştirilmesi ve tedavi direncini aşmak için temel teşkil etmektedir. CRC oldukça heterojendir; yani benzer görünen tümörler, davranışsal olarak önemli farklılıklar sergileyebilir13. Bu nedenle, erken teşhisi iyileştirmek, kişiselleştirilmiş tedavileri geliştirmek ve nihayetinde CRC'li hastalarda sağkalımı artırmak için süregelen araştırmalar büyük önem taşımaktadır.
miRNA'lardaki anomalilerin CRC'nin gelişimi, evrelemesi ve prognozu ile ilişkili olduğu bilinmektedir14. Vücut sıvılarındaki stabiliteleri nedeniyle miRNA'lar, aynı zamanda non-invaziv tanısal ve prognostik biyobelirteçler olarak büyük bir potansiyele sahiptir15. Bu çalışmada, miR-1298'in CRC dokularında aşağı regüle olduğu ve ekspresyonunun TNM evresi ile lenf nodu metastazı ile ilişkili olduğu görülmüş olup, bu durum CRC progresyonunda potansiyel bir role işaret etmektedir. Özellikle çalışmamız, klinik bir CRC kohortunda miR-1298 ekspresyonunu kapsamlı bir şekilde karakterize eden ve bunun TNM evresi, lenf nodu metastazı ve tümör diferansiyasyonu dahil olmak üzere temel klinikopatolojik parametrelerle olan ilişkisini ortaya koyan ilk çalışmadır.
Proliferasyon, apoptoz, migrasyon ve invazyon dahil olmak üzere temel hücresel süreçlerin düzensizleşmesi, kanser gelişimi ve mortalitesinin temel bir itici gücüdür16. Kontrolsüz proliferasyon, tümör hücrelerinin başlangıçtaki klonal ekspansiyonu gerçekleştirmesini sağlar. Aynı zamanda, apoptozdan kaçış, bu hücrelerin iç hasar veya dış stresörler karşısında hayatta kalmasına ve birikmesine olanak tanır. Bu kombinasyon, primer tümörün büyümesine yol açar17,18. Bu nedenle, bu özelliklerin moleküler itici güçlerini hedefleyen terapiler, CRC için etkili tedaviler geliştirilmesinde kilit rol oynamaktadır. miRNA'lar, kanser hücrelerinin malign fenotipini düzenleyerek tümör gelişimine katkıda bulunur19. miR-1298 böyle bir miRNA'dır. Örneğin, miR-1298-5p'nin ekspresyonunun azalması mide kanserinin progresyonunu teşvik eder20. Artmış düzeydeki miR-1298, meme kanseri hücrelerinin proliferasyonunu baskılar, apoptozu indükler ve hücre döngüsü durmasına neden olur21. Ek olarak, miR-1298-5p mesane kanserinde de bir tümör baskılayıcı olarak görev yapar2. Bu çalışmanın sonuçları, miR-1298'in aşırı ekspresyonunun proliferasyonu, migrasyonu ve invazyonu baskıladığını ve apoptozu artırdığını göstermiş olup, bunun CRC'nin malign fenotipini baskılayabileceğini düşündürmektedir. Önemli olan nokta, çalışmamızın CRC hücrelerindeki temel malign fenotipleri sistematik olarak değerlendirerek önceki raporların ötesine geçmiş olması ve bu spesifik kanser türünde miR-1298'in daha eksiksiz bir fonksiyonel karakterizasyonunu sağlamış olmasıdır.
Tümör teşvik edici etkileri açısından BMP7, PI3K/AKT gibi sinyal yolaklarını düzenleyerek kanser hücresi proliferasyonunu artırabilir23. Bcl‑2 gibi anti-apoptotik faktörlerin seviyelerini modüle eden BMP7, kanser hücrelerine apoptoza karşı direnç kazandırır24. Ek olarak BMP7, öncelikle epitelyal-mezenkimal geçişi (EMT) indükleyerek kanser hücrelerinin migrasyonunu ve invazyonunu artır25. BMP7'nin kanseri teşvik etmedeki rolü, BMP7'nin CRC dokusunda yüksek olduğu yönündeki bulgumuzla tutarlıdır. Biyoenformatik analiz, BMP7'nin miR-1298'in bir hedefi olabileceğini öne sürmüş ve miR-1298 ile BMP7 arasında öngörülen bir bağlanma bölgesi tanımlamıştır. Ayrıca, kurtarma (rescue) deneyleri, BMP7'nin CRC'de muhtemelen miR-1298'in fonksiyonel bir aracı olarak hareket ettiğini göstermiştir. Kanserle ilişkili BMP7 sinyal yolakları göz önüne alındığında, miR-1298/BMP7 aksının, CRC hücrelerinin davranışını kontrol eden aşağı akış sinyal yolaklarını (SMAD, PI3K/AKT, EMT) düzenlediği hipotezini ileri sürdük. Kritik olarak, bu öngörüyü lusiferaz raporlayıcı deneylerle deneysel olarak doğrulayarak miR-1298'in BMP7'nin 3′ UTR bölgesine doğrudan bağlandığını teyit ettik. Dahası, kurtarma deneyleri, BMP7 restorasyonunun miR-1298 aşırı ekspresyonunun tümör baskılayıcı etkilerini kısmen geri çevirdiğini kanıtlamış ve BMP7'nin CRC'de miR-1298'in aşağı akış bir aracısı olduğuna dair fonksiyonel kanıt sağlamıştır. Bildiğimiz kadarıyla bu, kolorektal kanserde miR-1298/BMP7 düzenleyici aksını ortaya koyan ilk çalışmadır.
Mekanistik içgörülere ek olarak, çalışmamız miR-1298'in klinik yararlılığını destekleyen translasyonel kanıtlar sağlamıştır. ROC eğrisi analizi, miR-1298'in CRC'de tanısal değere sahip olabileceğini göstermiştir. Sağkalım analizi, düşük miR-1298 ekspresyonunun daha kötü prognozla ilişkili olduğunu ortaya koymuş ve Cox regresyon analizi, azalmış miR-1298'in CRC için prognostik bir faktör olabileceğini belirtmiştir; bu durum, miR-1298'in CRC için tanısal ve prognostik bir biyobelirteç olarak potansiyel değerini desteklemektedir.
Bu çalışmanın bazı kısıtlılıkları bulunmaktadır. Klinik örneklere ilişkin olarak, bu çalışmada öncelikle tek bir merkezden elde edilen veriler kullanıldığından, miR-1298'in CRC'deki tümör baskılayıcı rolünü daha güçlü bir şekilde doğrulamak için gelecekte çok merkezli doğrulama çalışmalarına ihtiyaç vardır. Bu çalışma, in vivo tümör mikroçevresinin karmaşıklığını tam olarak yansıtmayan in vitro hücresel deneylere odaklanmıştır. Ksenogreft tümör modellerinin eksikliği, bu çalışmanın kısıtlılıklarından biriydi. Gelecekteki araştırmalar, miR-1298/BMP7 aksının tümör mikroçevresindeki rolünü daha fazla aydınlatmak için in vivo doğrulamaları içermelidir. Ek olarak, gelecekteki deneyler, biyoinformatik öngörüler ile in vitro ve in vivo deneyler aracılığıyla miR-1298/BMP7 aksının yukarı akış ve aşağı akış yollarını daha fazla doğrulayabilir. Takip süresi nispeten kısa olup, bu durum uzun süreli sağkalım tahmininin olgunluğunu sınırlamıştır. Kaplan–Meier ve Cox regresyon analizleri yapılmış olsa da, sonuçlar nispeten kısa takip süresinden etkilenmiş olabilir. CRC'de miR-1298'in prognostik değerini doğrulamak için halihazırda genişletilmiş bir takip süreci yürütülmektedir. Ayrıca, miR-1298/BMP7 aksı tarafından CRC hücrelerinin davranışını kontrol etmek için düzenlenen aşağı akış sinyal yolları (SMAD, PI3K/AKT, EMT) bu çalışmada deneysel olarak doğrulanmamıştır ve daha fazla araştırılmaya ihtiyaç duymaktadır. Bu çalışmada ters kurtarma deneyleri (miR-1298 inhibitörü + BMP7 siRNA) gerçekleştirilmemiştir. Bu tür deneyler, BMP7 nakavtının miR-1298 inhibisyonunun tümör destekleyici etkilerini tersine çevirip çeviremeyeceğine dair tamamlayıcı kanıtlar sağlayacaktır. Bu tip bir kurtarma deneyinin eksikliği, mekanistik sonuçlarımızı zayıflatmaktadır. miR-1298/BMP7 aksının CRC'deki işlevini tam olarak belirlemek için bu ters kurtarma deneysel tasarımını ve in vivo doğrulamayı içeren gelecekteki çalışmalara ihtiyaç vardır.
Özetle, miR-1298'nin CRC progresyonu ile ilişkili olabileceği görülmektedir. Fonksiyonel olarak miR-1298, CRC hücrelerinin proliferasyonunu, invazyonunu ve migrasyonunu inhibe edebilir. BMP7, CRC'de miR-1298'nin potansiyel bir fonksiyonel medyatörü olabilir.
Açıklamalar
Yazarların beyan edilecek herhangi bir ilgili finansal veya finansal olmayan çıkarı yoktur.
Teşekkürler
Yazarlar, bu makalenin hazırlanması sırasında herhangi bir fon, hibe veya başka bir destek alınmadığını beyan ederler.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| %0.1 kristal viyole çözeltisi | Sigma-Aldrich | C0775 | |
| %10 SDS-PAGE Kiti | Epizyme | PG12 | |
| %4 paraformaldehit | Sigma-Aldrich | P6148 | |
| 6 kuyucuklu hücre kültür plakası | Corning | 3516 | |
| 96 kuyucuklu hücre kültür plakası | Corning | 359 | |
| Annexin V-FITC/PI Apoptoz Tespit Kiti | Various (e.g., Elabscience, BD Biosciences) | E-CK-A21 (Elabscience) or 56547 (BD) | |
| Anti-BMP7 | Abcam | ab176707 | |
| Anti-GAPDH | Abcam | ab181602 | |
| BCA Kiti | Sangon | C503021 | |
| BMP7 Mutant 3‘-UTR raporlayıcı plazmit | Özel olarak oluşturulmuş (pmirGLO'ya klonlanmış) | Custom | |
| BMP7 primerleri | Sangon Biotech (Shanghai, China) | Özel sentez | |
| BMP7 Vahşi Tip 3‘-UTR raporlayıcı plazmit | Özel olarak oluşturulmuş (pmirGLO'ya klonlanmış) | Custom | |
| Hücre Sayım Kiti-8 (CCK-8) | Dojindo (Japan) | CK04 | |
| Hücre kültür balonu (T-25) | Corning | 430639 | |
| DMEM (Dulbecco‘s Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 195065 | |
| Fetal Bovine Serum (FBS) | Invitrogen (Thermo Fisher Scientific) | 1614071 | |
| FHC hücre hattı (normal insan kolon epitelyal) | ATCC | CRL-1831 | |
| Akış sitometresi | BD Biosciences | FACSCanto™ II | |
| FlowJo V10 yazılımı | FlowJo, LLC | — | |
| GAPDH primerleri (mRNA için endojen kontrol) | Sangon Biotech (Shanghai, China) | Özel sentez | |
| HCT-16 hücre hattı (insan kolorektal karsinom) | ATCC | CCL-247 | |
| HRP-konjuge ikincil antikor | Beyotime | A0208 | |
| İnvert mikroskop | Nikon (veya eşdeğeri) | Eclipse Ts2 | |
| Lipofectamin 300 Transfeksiyon Reaktifi | Invitrogen (Thermo Fisher Scientific) | L30015 | |
| Lusiferaz Ölçüm Sistemi | Promega | E150 | |
| Matrigel Bazal Membran Matrisi | Corning | 354230 | |
| Mikroplaka okuyucu | BioTek (Agilent) | Synergy H1 | |
| miR-1298 inhibitörü | GenePharma (Shanghai, China) | Özel (sipariş üzerine sentezlenmiş) | |
| miR-1298 mimigı | GenePharma (Shanghai, China) | Özel (sipariş üzerine sentezlenmiş) | |
| miR-1298 primerleri | Sangon Biotech (Shanghai, China) | Özel sentez | |
| Mir-X miRNA Birinci Zincir Sentez Kiti | Takara Bio | 638313 | |
| OE-NC | GenePharma (Shanghai, China) | Özel (sipariş üzerine sentezlenmiş) | |
| Opti-MEM | Gibco | 31985070 | |
| Pasif Lizis Tamponu | Promega | E194A | |
| pcDNA3.1 vektörü (boş vektör kontrolü) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (OE-BMP7 aşırı ekspresyon plazmidi) | GenePharma (Shanghai, China) | Özel (sipariş üzerine sentezlenmiş) | |
| pmirGLO Dual-Lusiferaz miRNA Hedef Ekspresyon Vektörü | Promega | E130 | |
| PMSF | Beyotime | ST506 | |
| PrimeScript RT Reaktif Kiti (Perfect Real Time) | Takara (Japan) | RR037A | |
| gDNA Eraser içeren PrimeScript RT reaktif Kiti | Takara Bio | RR047A | |
| Proteaz inhibitör kokteyli | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| RNaz-free mikrosantrifüj tüpleri (1.5 mL) | Axygen (Corning) | MCT-150-C | |
| RNaz-free pipet uçları | Axygen (Corning) | T-30 (10 µL), T-20-Y (20 µL), T-10-B (10 µL) | |
| si-BMP7 | GenePharma (Shanghai, China) | Özel (sipariş üzerine sentezlenmiş) | |
| si-NC | GenePharma (Shanghai, China) | Özel (sipariş üzerine sentezlenmiş) | |
| Staurosporin (apoptoz pozitif kontrolü) | Sigma-Aldrich | S5921 | |
| SW480 hücre hattı (insan kolorektal adenokarsinom) | ATCC | CCL-28 | |
| SYBR Green qPCR Master Mix | Takara (Japan) | RR036A | |
| Transwell haznesi (24 kuyucuklu, 8.0 µm gözenek boyutu) | Corning (Costar) | 3422 | |
| TRIzol Reaktifi | Invitrogen (Thermo Fisher Scientific) | 1596026 | |
| U6 primerleri (miRNA için endojen kontrol) | Sangon Biotech (Shanghai, China) | Özel sentez |
Kaynaklar
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.