Bu çalışma, METTL3 ile ilişkili FOXD1 düzenlemesini incelemek ve post-transkripsiyonel onkojenik mekanizmaların araştırılması için tekrarlanabilir bir çerçeve sunmak amacıyla; eşleşmiş insan dokularını, iki akciğer skuamöz hücreli karsinom hücre hattını, RNA ve protein stabilitesi analizlerini, genetik kurtarma deneylerini ve bir FOXD1-knockdown ksenogreft modelini birleştirmektedir.
Araştırma makalesi
METTL3 İlişkili FOXD1 Regülasyonu Akciğer Skuamöz Hücreli Karsinom Progresyonunu Teşvik Eder: Çok Modelli Deneysel Bir Yaklaşım
* These authors contributed equally
Bu makalede
Özet
Özet
Akciğer skuamöz hücreli karsinomu (LUSC) sınırlı tedavi seçeneklerine sahiptir ve bu durum, tümör hücre büyümesini destekleyen moleküler yolakların araştırılmasını teşvik etmektedir. Eşleştirilmiş dokularda ve hücre hatlarında FOXD1 (Forkhead box D1) ekspresyonu; gen ekspresyon profilleme interaktif analizi (GEPIA), kantitatif ters transkripsiyon polimeraz zincir reaksiyonu (qRT-PCR), western blotting ve immünohistokimya kullanılarak değerlendirilmiştir. LUSC hücrelerinde FOXD1 veya METTL3 (metiltransferaz benzeri 3) azaltılmış ve hücre canlılığı, apoptoz, migrasyon, global N6-metiladenozin (m6A), transkript stabilitesi ve protein stabilitesi değerlendirilmiştir. Bir FOXD1-knockdown xenograft modeli ile FOXD1'in in vivo rolü test edilmiştir; hayvanlarda METTL3 manipüle edilmemiştir.
FOXD1 ekspresyonu, LUSC doku ve hücrelerinde karşılık gelen kontrollere göre daha yüksekti. FOXD1 nakavt işlemi canlılığı ve migrasyonu azaltmış, apoptozu artırmış ve ksenogreft büyümesini baskılamıştır. Eşleşmiş LUSC dokularında METTL3 ekspresyonu FOXD1 ile korelasyon göstermiştir. Kültürlenmiş hücrelerde, METTL3 nakavtı global m6A ve FOXD1 bolluğunu düşürürken, FOXD1'in yeniden ekspresyonu ilişkili fenotipleri kısmen kurtarmıştır. Actinomycin D, sikloheksimid ve MG132 analizleri, METTL3 ile ilişkili FOXD1 RNA ve protein stabilitesindeki değişikliklerle tutarlılık göstermiştir.
Bu veriler, LUSC hücrelerinde METTL3 ve FOXD1 arasında fonksiyonel bir ilişki olduğunu desteklemektedir. In vivo koşullarda, FOXD1 nakavt edilmesi ksenogreft büyümesini baskılamış ve Ki-67 boyanmasını azaltarak FOXD1'in ksenogreft büyümesini teşvik eden bir faktör olduğunu kanıtlamıştır. Doğrudan METTL3–FOXD1 bağlanması, bölgeye özgü m6A modifikasyonu, okuyucu bağımlılığı ve tüm METTL3–FOXD1 yolağının in vivo doğrulanması henüz gerçekleştirilmemiştir.
Giriş
Akciğer kanseri, dünya çapında kansere bağlı ölümlerin önde gelen nedenlerinden biri olmaya devam etmektedir1,2. Küçük hücreli dışı akciğer kanserinin (NSCLC) ana histolojik alt tipi olan akciğer skuamöz hücreli karsinomu (LUSC), genellikle küratif lokal tedavinin artık uygulanabilir olmadığı aşamada teşhis edilir3,4. Sistemik tedaviler gelişmiş olsa da birçok hasta hâlâ kötü sonuçlar yaşamaktadır5. Bu nedenle, LUSC büyümesini sürdüren moleküler programların tanımlanması, test edilebilir biyobelirteçler ve terapötik hipotezler ortaya çıkarabilir.
Forkhead box D1 (FOXD1); kolorektal, baş ve boyun, gastrik, oral skuamöz ve meme kanserleri ile ilişkili bir transkripsiyon faktörüdür6,7,8,9,10. KHYNS'de, FOXD1 ekspresyonu kötü sonuçlar ile deneysel hücre büyümesi ve metastaz ile ilişkilendirilmiştir11,12. MicroRNA-30a-5p ayrıca FOXD1'i hedefleyerek LUSC hücresi proliferasyonunu ve migrasyonunu baskılamaktadır13. Bu gözlemler FOXD1'i olası bir LUSC regülatörü olarak tanımlasa da, bu hastalıkta ekspresyonunun nasıl sürdürüldüğünü ortaya koymamaktadır.
N6-metiladenozin (m6A); yazar, silici ve okuyucu proteinler tarafından eklenen, kaldırılan ve yorumlanan geri dönüşümlü bir RNA modifikasyonudur. Bu düzenleyici sistem RNA işlemesini, translasyonu ve bozunmayı etkileyebilir; sistemdeki bozulmalar ise malign fenotipler ve tedavi yanıtı ile ilişkilendirilmiştir14,15,16,17. Metiltransferaz benzeri 3 (METTL3), m6A yazar kompleksinin katalitik bir bileşenidir; ancak, tek başına METTL3 ve FOXD1 arasındaki bir korelasyon, doğrudan metilasyonun veya okuyucu aracılı düzenlemenin varlığını kanıtlayamaz.
METTL3'ün, m6A ile ilişkili transkripsiyon sonrası düzenleme aracılığıyla FOXD1 ekspresyonunu sürdürerek LUSC progresyonunu teşvik ettiğini hipotez ettik. Eşleştirilmiş klinik örneklerin, iki tümör hücre hattının, fonksiyon kaybı ve kurtarma deneylerinin, transkript ve protein stabilite analizlerinin ve bir FOXD1-nakavt xenograft modelinin entegre edilmesiyle bu çalışma, ilişkilendirmeyi doğrudan bölgeye özgü metilasyondan ayırırken METTL3–FOXD1 ilişkisini araştırmak için fonksiyonel bir çerçeve sunmaktadır.
Protokol
İnsan doku toplama işlemi Helsinki Deklarasyonu'na uygun olarak gerçekleştirilmiş ve Jilin Üniversitesi Birinci Hastanesi Kurumsal İnceleme Kurulu tarafından onaylanmıştır (onay no. 2022-339; 22 Temmuz 2022) ve tüm katılımcılardan yazılı bilgilendirilmiş onam alınmıştır. Hayvan protokolü, Jilin Üniversitesi Birinci Hastanesi Hayvan Yönetim Komitesi tarafından onaylanmış (onay no. 2022-0015; 25 Ocak 2022) ve hayvan bakımı ve kullanımıyla ilgili kurumsal kılavuzlara uygun olarak yürütülmüştür.
Çalışma denekleri
Arşivlenmiş örnekler, Ocak 2019 ile Aralık 2020 arasında cerrahi operasyon geçirmiş hastalardan toplanan 12 çift primer LUSC ve komşu tümör dışı dokudan oluşmaktadır. Uygun hastalar; patolojik olarak doğrulanmış primer LUSC'ye sahip, belgelenmiş metastazı olmayan ve önceki 6 ay içinde LUSC odaklı tedavi almamış kişilerden seçilmiştir. Vakalar rastgele sayı tablosu ile belirlenmiş olup, 30–65 yaşları arasında yedi erkek ve beş kadını kapsamaktadır. Tüm katılımcılardan yazılı onam alınmıştır.
Hücre hatları
İnsan bronşiyal epitel BEAS-2B hücreleri (RRID: CVCL_0168), LUSC SK-MES-1 (RRID: CVCL_0630) ve NCI-H226 hücreleri (RRID: CVCL_1544), Çin Bilimler Akademisi Hücre Bankası'ndan temin edilmiştir. Hücreler %10 fetal bovine serum ve %1 penisilin-streptomisin içeren Dulbecco's modified Eagle ortamında, 37 °C'de ve %5 CO2 altında kültüre edilmiştir. Ticari tanımlayıcılar beraberindeki Materyaller Tablosu'nda birleştirilmiştir.
Küçük interferan RNA tarama ve kurtarma
FOXD1 veya METTL3'ü hedefleyen üç farklı küçük interfer eden RNA, SK-MES-1 ve NCI-H226 hücrelerinde tarandı. Knockdown durumu, transfeksiyondan 48 sa sonra kantitatif ters transkripsiyon PCR (qRT-PCR) ve western blotting ile değerlendirildi. Her iki hücre hattında da en yüksek azalmayı sağladığı için sonraki FOXD1 fonksiyonel analizlerinde FOXD1 siRNA-1 kullanıldı. Sonraki METTL3 deneylerinde, tarama sonucunda seçilen si-METTL3 reaktifi kullanıldı. Arşivlenmiş kayıtta bir SmartPool tanımlanmamıştır ve güvenle atanabilecek bir sekans veya tedarikçi tanımlayıcısı korunmamıştır. Kurtarma (rescue) deneyleri için hücrelere seçilen si-METTL3 reaktifi, FOXD1 aşırı ekspresyon konstrüktü veya her ikisi birden verildi; ekspresyon ve hücresel fenotipler transfeksiyondan 48 sa sonra değerlendirildi.
RNA izolasyonu ve qRT-PCR
Toplam RNA, dokulardan veya hücrelerden fenol-guanidinyum reaktifi ile izole edilmiş ve ticari bir ters transkripsiyon kiti kullanılarak ters transkribe edilmiştir. qRT-PCR, bir gerçek zamanlı PCR sisteminde (RRID: SCR_018051) TB Green master mix kullanılarak gerçekleştirilmiştir. Primer dizileri Tablo 1'de verilmiştir. Göreli ekspresyon, gliseraldehit 3-fosfat dehidrogenaz (GAPDH) ile normalize edilmiştir. Reaksiyon hazırlama ve termal döngü, belirtilen master mix için üretici protokolüne uygun olarak yapılmıştır.
Western blotting
Dokular veya hücreler, proteaz inhibitörleri içeren radyoimmünopresipitasyon analizi (RIPA) tamponunda lizlendi. Eşdeğer protein miktarları, sodyum dodesil sülfat-poliakrilamid jel elektroforezi (SDS-PAGE) ile ayrıldı ve poliviniliden florür (PVDF) membranlara aktarıldı. Membranlar, FOXD1 (1:1.000), METTL3 (1:1.000; RRID: AB_2142033) veya GAPDH (1:2.000; RRID: AB_10622025) karşıtı antikorlar ile 4 °C'de gece boyunca inkübe edildi ve ardından oda sıcaklığında 1 saat boyunca yaban turpu peroksidaz-konjuge anti-tavşan immünoglobulin G ile inkübasyona tabi tutuldu. Sinyaller, yükleme kontrolü olarak GAPDH kullanılarak, geliştirilmiş kemilüminesans ile görüntülendi. Malzemeler Tablosu, ticari birincil antikorları tanımlamakta ve sekonder reajenti bir anti-tavşan immünoglobulin G deteksiyon antikoru olarak kaydetmektedir.
Hücre canlılığı ve apoptoz
Canlılık ölçümleri için, kontrol ve transfekte edilmiş LUSC hücreleri 96 kuyucuklu plakalara kuyucuk başına 2.000 hücre olacak şekilde ekildi. 12 saatlik aralıklarla, kuyucuk başına 10 µL hücre sayım kiti-8 reaktifi eklendi, plakalar 37 °C'de 1 saat boyunca inkübe edildi ve absorbans 450 nm'de kaydedildi. Apoptoz analizi için, 6 kuyucuklu plakalara kuyucuk başına 1 × 10⁵ hücre ekildi ve transfeksiyondan 48 saat sonra analiz edildi. Hasat edilen hücreler Annexin V–fluorescein isothiocyanate (FITC)/ propidium iodide (PI) kiti talimatlarına göre işlendi, 100 µL bağlanma tamponunda yeniden süspande edildi, her bir reaktiften 5 µL ile oda sıcaklığında karanlıkta 30 dakika boyunca boyandı ve 4 saat içinde akış sitometrisi ile analiz edildi.
Transwell migrasyonu
Transfekte edilen LUSC hücreleri, üst transwell bölmesindeki serumsuz medyuma yerleştirildi; alt bölme ise %10 fetal bovine serum ile takviye edilmiş 500 µL medyum içeriyordu. 24 saat sonra, göç eden hücreler %4 paraformaldehit ile fikse edildi ve 10 dakika boyunca kristal viyole ile boyandı. Üst membran yüzeyindeki göç etmemiş hücreler bir pamuklu çubukla temizlendi. Göç eden hücreler, aynı görüntüleme ayarları altında mikroskopla görüntülendi ve ImageJ (RRID: SCR_003070) kullanılarak nicelleştirildi.
m6A metilasyon modifikasyonu
Global m6A bolluğu, kolorimetrik bir RNA metilasyon testi ile ölçülmüştür. RNA ekstraksiyonu ve kalite değerlendirmesinin ardından, her bir test kuyucuğuna 200 ng RNA uygulanmıştır. Oda sıcaklığında 60 dakika boyunca yakalama antikoru (50 µL) eklenmiştir. Kuyucuklar üç kez yıkanmış, 50 µL deteksiyon antikoru ile 30 dakika inkübe edilmiş, dört kez yıkanmış ve sinyal güçlendirme çözeltisi ile 30 dakika inkübe edilmiştir. Absorbans 450 nm'de ölçülmüştür. Tüm adımlar, kit talimatlarında belirtilen prosedürlere uygun olarak gerçekleştirilmiştir.
mRNA stabilitesinin belirlenmesi
LUSC hücreleri 6 kuyucuklu plakalara ekildi ve negatif kontrol küçük müdahale RNA'sı (si-NC) veya METTL3 hedefli küçük müdahale RNA'sı (si-METTL3) ile transfekte edildi. 48. saatte, transkripsiyonu durdurmak için 5 µg/mL actinomycin D eklendi. Hücreler 0 sa, 2 sa, 4 sa ve 6. saatlerde toplandı, toplam RNA izole edildi ve FOXD1 transkript bolluğu qRT-PCR ile ölçüldü.
Sikloheksimid (CHX) ve MG132 analizleri
Her bir inhibitör son nokta analizi için; işlem görmemiş vektör kontrol hücreleri, inhibitör ile işlem görmüş vektör kontrol hücreleri ve inhibitör ile işlem görmüş METTL3-aşırı eksprese eden hücreler karşılaştırılmıştır. MG132 10 µM ve CHX 20 µM konsantrasyonlarında kullanılmış; lizatlar 12 saat sonra western blotting için toplanmıştır. CHX zaman seyri için, si-NC veya si-METTL3 transfekte edilmiş hücreler 20 µM CHX ile işleme tabi tutulmuş ve 0 saat, 3 saat, 6 saat ve 9. saatlerde toplanmıştır. FOXD1 protein bolluğu western blotting ile ölçülmüştür.
In vivo deneyler
Beş haftalık atimik BALB/c nude fareler, negatif kontrol ve FOXD1-knockdown SK-MES-1 gruplarına ayrıldı (grup başına n = 8 fare). Her fareye yaklaşık 8 × 10⁶ hücre içeren subkütan bir enjeksiyon yapıldı. Tümör takibi implantasyondan 1 hafta sonra başladı; tümör boyutu 20 ardışık gün boyunca her 4 günde bir kaydedildi. Fareler, inokülasyondan sonraki 27. günde, son ölçümün hemen ardından onaylanmış kurumsal protokoller kullanılarak ötanize edildi ve tümörler eksize edilerek tartıldı ve fotoğrafları çekildi. İmplantasyon için stabil FOXD1-knockdown ve eşleşmiş negatif kontrol SK-MES-1 hücre popülasyonları kullanıldı.
İmmünokimya
Eksize edilen tümörler parafine gömülmüş ve 4–5 µm kalınlığında kesitler alınmıştır. Kesitlerin deparafinizasyonu ve rehidrasyonu yapılmış, birincil antikor ile 4 °C'de gece boyunca inkübe edilmiş ve ardından uygun ikincil antikor ile 30 dk boyunca inkübe edilmiştir. Antijen pozitif hücreler, diaminobenzidin substratı ile görüntülenmiştir. Ksenogreftlerde FOXD1 ve Ki-67 değerlendirilmiş; eşleştirilmiş kesitler aynı boyama serisinde işlenmiş ve özdeş görüntüleme ayarları altında görüntülenmiştir.
İstatistiksel analiz
Analizler GraphPad Prism versiyon 8 (RRID: SCR_002798) ve R (RRID: SCR_001905) ile gerçekleştirilmiştir. İki grup arasındaki karşılaştırmalarda Student's t-testi, ikiden fazla grubun yer aldığı karşılaştırmalarda ise varyans analizi kullanılmıştır. Eşleştirilmiş insan dokusu analizlerinde 12 hasta çifti kullanılmıştır; in vitro özetler üç bağımsız biyolojik deneyi temsil etmektedir; ksenogreft analizlerinde grup başına sekiz fare kullanılmıştır. Teknik tekrarlar bağımsız gözlemler olarak değerlendirilmemiştir. Veriler ortalama ± standart sapma olarak sunulmuştur. İki yönlü P < 0.05 istatistiksel olarak anlamlı kabul edilmiştir.
Sonuçlar
İnsan LUSC dokularında FOXD1 ekspresyonu artmıştır
Bir gen ekspresyon profilleme etkileşimli analiz (GEPIA) sorgusu, LUSC'de normal akciğer örneklerine göre daha yüksek FOXD1 transkript bolluğu olduğunu göstermiş, ancak akciğer adenokarsinom karşılaştırması anlamlılık düzeyine ulaşmamıştır (Şekil 1A). 12 eşleşmiş LUSC ve komşu tümör dışı dokunun analizi, qRT-PCR ve western blotting ile aynı değişim yönünü ortaya koymuştur (Şekil 1B,C). İmmünohistokimyasal boyama da tümör kesitlerinde, eşleşmiş komşu dokuya göre daha güçlü bir FOXD1 sinyali göstermiştir (Şekil 1D).
FOXD1 nakavtlaması LUSC hücrelerinde canlılığı ve migrasyonu azaltır, apoptozu artırır
FOXD1 transkript bolluğu, SK-MES-1 ve NCI-H226 hücrelerinde BEAS-2B hücrelerine göre daha fazlaydı (Şekil 2A). FOXD1'i hedefleyen üç küçükye müdahale eden RNA (siRNA) taranmış; qRT-PCR ve western blotting ile tespit edilen en büyük azalmayı sağlayan siRNA-1, sonraki analizler için seçilmiştir (Şekil 2B,C). Negatif kontrole kıyasla, FOXD1 nakavt işlemi (knockdown), her iki LUSC hücre hattında Hücre Sayım Kiti-8 sinyalini azaltmış (Şekil 2D), Annexin V-pozitif hücreleri artırmış (Şekil 2E) ve Transwell migrasyonunu düşürmüştür (Şekil 2F). Sürece tek bir seçilmiş reaktif ile devam edildiğinden, fonksiyonel sonuçlar hedef dışı etkilerin sekans bağımsız olarak dışlandığı anlamına gelmemektedir.
LUSC örneklerinde METTL3 ekspresyonu FOXD1 ile korelasyon göstermektedir
m6A metilasyonu, okaryotlarda yaygın olarak bulunan, metiltransferazlar ve demetilazlar tarafından düzenlenen, m6A-bağlayıcı proteinler tarafından tanınan ve işlenen dinamik ve tersine çevrilebilir bir kimyasal modifikasyondur18. Global m6A sinyali, 12 LUSC dokusunda eşleşen komşu dokulara göre daha yüksek çıkmış ve ayrıca her iki LUSC hücre hattında BEAS-2B hücrelerine göre daha yüksek bulunmuştur (Şekil 3A). METTL3, METTL14, WTAP ve RBM15 kodlayan transkriptler, eşleşen tümör örneklerinde artış göstermiştir (Şekil 3B). GEPIA verileri ve 12 tümörlü set genelinde, FOXD1'in METTL3 ile en belirgin pozitif ilişkisi görülmüş; RBM15 ile olan ilişki ise daha zayıf kalmıştır (Şekil 3C,D). Western blotting, tümör dokularında daha yüksek METTL3 bolluğunu daha net bir şekilde göstermiştir (Şekil 3E). Bu analizler doğrudan bir düzenlemeyi değil, birlikte varyasyonu kanıtlamaktadır.
METTL3 susturulması FOXD1 bolluğunu ve LUSC hücre fenotiplerini değiştirir
Üç METTL3 hedefli küçük interferan RNA, SK-MES-1 ve NCI-H226 hücrelerinde qRT-PCR ve western blotting ile tarandı (Şekil 4A,B). METTL3 nakavt işlemi global m6A sinyalini düşürdü (Şekil 4C). FOXD1 aşırı ekspresyonu, METTL3'ü artırmadan FOXD1'i artırdı (Şekil 4D) ve dört gruplu kurtarma deneyi, METTL3 nakavt sonrası FOXD1 bolluğunun azaldığını ve bunun FOXD1 konstrüktü ile geri kazandığını doğruladı (Şekil 4E,F). METTL3 nakavtı canlılığı ve migrasyonu azalttı, apoptozu artırdı; FOXD1'in yeniden ekspresyonu bu değişiklikleri kısmen tersine çevirdi (Şekil 4G–I). Dolayısıyla, kurtarma verileri kültür hücrelerinde FOXD1'in METTL3'ün aşağısında (downstream) etki gösterdiği ile tutarlıdır.
METTL3 pertürbasyonu, FOXD1 RNA ve protein stabilitesi ile ilişkilidir
Artan kanıtlar, m6A mRNA modifikasyonunun pre-mRNA eklenmesi (splicing), translasyon, nükleositoplazmik ihracat, yıkım ve eklenme dahil olmak üzere mRNA döngüsünün çeşitli yönlerini modüle ettiğini göstermektedir19,20. SRAMP, FOXD1 RNA'sında aday m6A motiflerini belirlemiş ve m6A2Target, H1299 hücrelerinde METTL3'ü öngörülen bir FOXD1 ilişkili yazar (writer) olarak listelemiştir (Şekil 5A,B). Bu veri tabanı çıktıları hipotez oluşturucu niteliktedir ve LUSC hücrelerinde bağlanmayı veya bölgeye özgü metilasyonu kanıtlamamaktadır. Aktinomisin D ile transkripsiyonel blokajın ardından, METTL3 nakavt sonrası FOXD1 RNA'sı, kontrol hücrelerine kıyasla daha hızlı azalmıştır (Şekil 5C). MG132 ile işlem görmüş METTL3 aşırı eksprese eden hücrelerde FOXD1 bolluğu, MG132 ile işlem görmüş vektör kontrollerine göre daha yüksekken; CHX işlemi sonrası bu örüntü gözlemlenmemiştir (Şekil 5D,E). CHX zaman seyri, METTL3 nakavt sonrası FOXD1 proteininin daha hızlı kaybolduğunu göstermiştir (Şekil 5F). Toplu olarak bu analizler, FOXD1 RNA ve protein stabilitesindeki METTL3 ilişkili değişikliklerle uyumludur; ancak modifiye edilen adenozini tanımlamamış, doğrudan bağlanmayı kanıtlamamış veya bir m6A okuyucusu (reader) belirlememiştir.
FOXD1 knockdown LUSC ksenogreft büyümesini baskılar
FOXD1 fonksiyonunu in vivo test etmek için, kontrol ve FOXD1-knockdown SK-MES-1 hücreleri nude farelere subkütan olarak implante edildi (grup başına n = 8). İmplantasyondan 1 hafta sonra başlanarak, tümörler 20 gün boyunca her 4 günde bir ölçüldü ve inokülasyondan sonraki 27. günde toplandı. Eksize edilen tümörler FOXD1-knockdown grubunda daha küçüktü (Şekil 6A), büyüme eğrileri daha yavaş yükseldi (Şekil 6B) ve final ağırlıkları daha düşüktü (Şekil 6C). Knockdown tümörlerde FOXD1 ve Ki-67 boyanması da azalmıştı (Şekil 6D). Bu deneyler yalnızca FOXD1 knockdown işlemini değerlendirmektedir; METTL3 inhibisyonunu in vivo test etmemektedir.
Hepsi birlikte değerlendirildiğinde, FOXD1 akciğer skuamöz hücreli karsinom dokularında ve hücrelerinde aşırı eksprese edilmişti; proliferasyonu, migrasyonu ve ksenogreft büyümesini destekliyordu. METTL3 nakavt edilmesi global m6A seviyelerini azaltmış, FOXD1 ekspresyonunu düşürmüş ve malign hücresel fenotipleri bozmuşken, FOXD1'in yeniden ekspresyonu bu etkileri kısmen tersine çevirmiştir. Stabilite analizleri, METTL3 ile ilişkili FOXD1 post-transkripsiyonel düzenlemesini desteklemektedir ancak doğrudan bölgeye özgü metilasyonu veya tüm yolağın in vivo kurtarılmasını kanıtlamamaktadır. Çalışma tasarımı Şekil 7'de özetlenmiştir.
VERİLERİN ERİŞİLEBİLİRLİĞİ:
Bu çalışmada analiz edilen tüm veriler makale ve şekillerinde yer almaktadır. Raporlanan özetlerin temelini oluşturan kimliksizleştirilmiş sayısal veriler; kurumsal yönetim ve katılımcı koruma gerekliliklerine tabi olmak kaydıyla, makul talep üzerine sorumlu yazardan temin edilebilir. Herhangi bir simülasyon dosyası veya özel analiz kodu kullanılmamıştır.
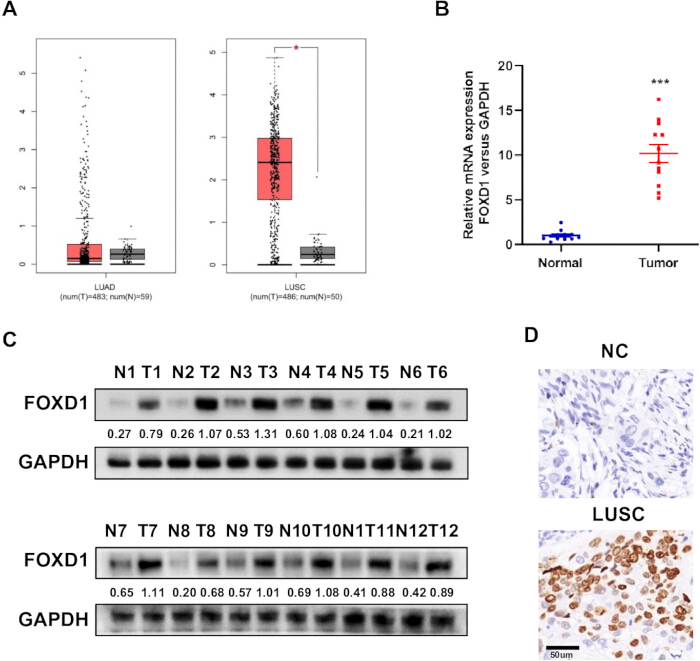
Şekil 1: İnsan akciğer kanseri örneklerinde FOXD1 ekspresyonu. (A) Akciğer adenokarsinomu (LUAD) ve akciğer skuamöz hücreli karsinomunda (LUSC) FOXD1 transkript bolluğunun normal akciğer örnekleri ile GEPIA karşılaştırması. (B) 12 eşleştirilmiş LUSC ve komşu tümör dışı dokularda FOXD1 transkript bolluğu. (C) Aynı eşleştirilmiş dokularda FOXD1 protein bolluğu. (D) Temsili FOXD1 immünohistokimyası. İnsan dokusu n = 12 çift; in vitro tarzı teknik tekrarlar hasta düzeyindeki n değerini değiştirmez. D panelindeki ölçek çubuğu = 50 µm. ***P < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
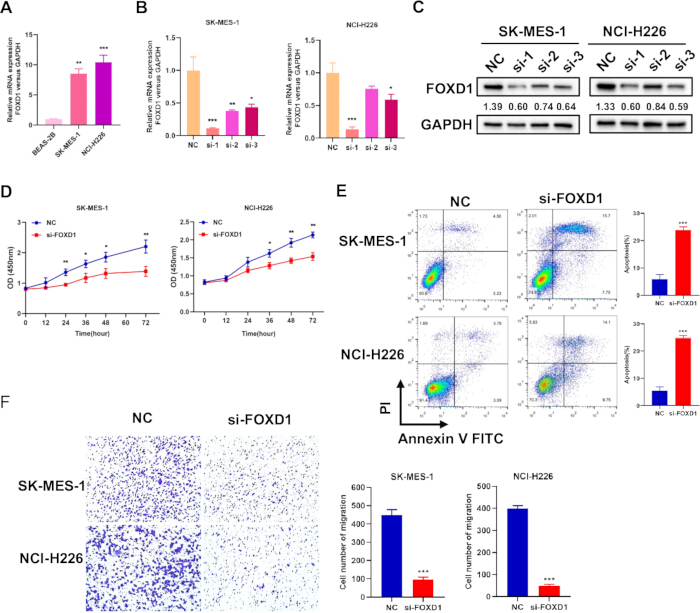
Şekil 2: SK-MES-1 ve NCI-H226 hücrelerinde FOXD1 susturulmasının etkileri. (A) BEAS-2B, SK-MES-1 ve NCI-H226 hücrelerindeki FOXD1 transkript bolluğu. (B) Transfeksiyondan 48 sa sonra FOXD1'i hedefleyen üç küçük müdahale eden RNA'nın qRT-PCR taraması. (C) Aynı üç FOXD1 hedefli küçük müdahale eden RNA'nın Western-blot taraması. (D) FOXD1 susturulması sonrası hücre sayım kiti-8 analizi. (E) 48. saatteki Annexin V–florescein izotiyosiyanat/propidyum iyodür apoptoz analizi. (F) Transfektesi hücrelerin ekilmesinden 24 sa sonra ölçülen Transwell migrasyonu; arşivlenmiş görüş alanı görüntüleri, kalibrasyon meta verileri mevcut olmadığı için geriye dönük ölçek çubuğu olmadan sunulmuştur. Üç bağımsız biyolojik deney gerçekleştirilmiştir. *P < 0.05; **P < 0.01; ***P < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
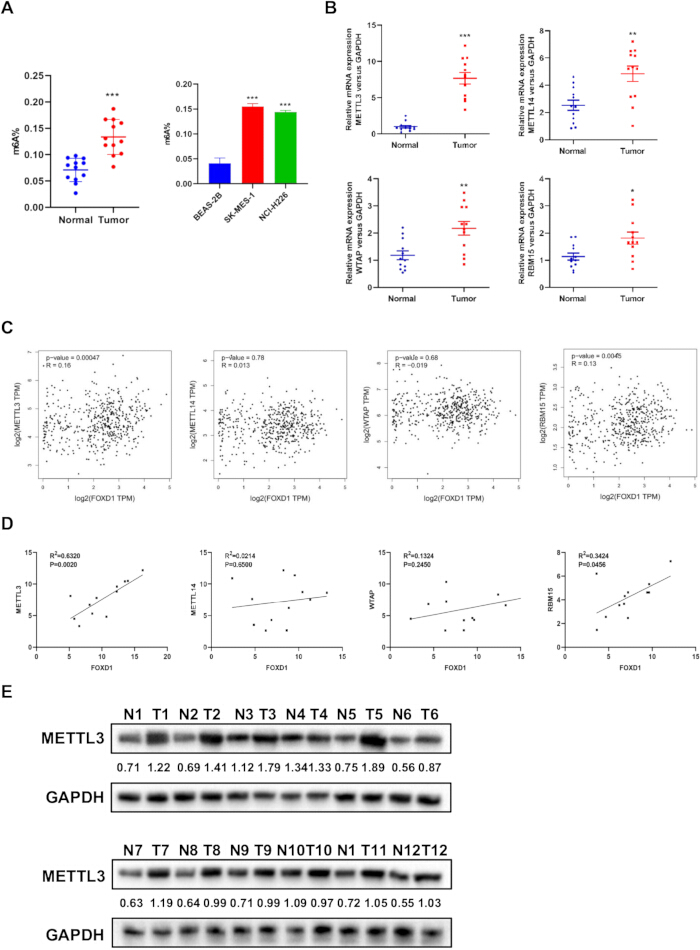
Şekil 3: Global N6-metiladenozin ve METTL3 ile FOXD1 arasındaki ilişki. (A) Eşleşmiş dokularda ve BEAS-2B, SK-MES-1 ve NCI-H226 hücrelerinde global m6A sinyali. (B) 12 eşleşmiş LUSC ve komşu dokuda METTL3, METTL14, WTAP ve RBM15 transkriptleri. (C) FOXD1 ile her bir writer arasındaki GEPIA korelasyonları. (D) 12 LUSC tümöründe FOXD1 ile writer transkriptleri arasındaki korelasyonlar. (E) Eşleşmiş LUSC ve komşu dokularda METTL3 proteini. İnsan dokusu n = 12 çift; hücre analizleri üç bağımsız biyolojik deneyi temsil eder. *P < 0.05; **P < 0.01; ***P < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
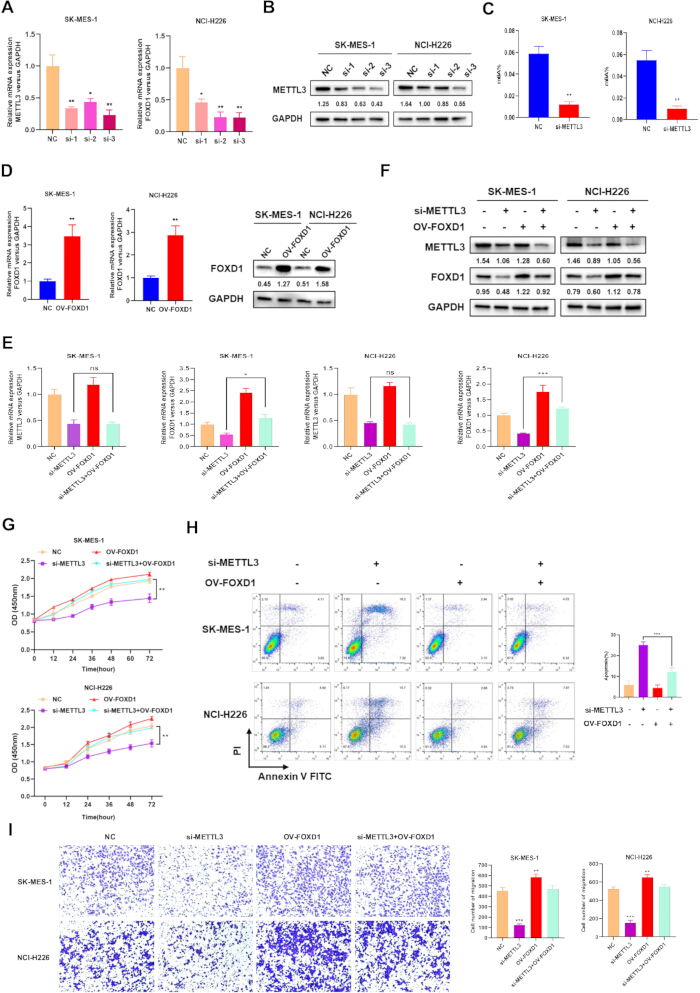
Şekil 4: METTL3 nakavdownu, FOXD1 kurtarması ve LUSC hücresi fenotipleri. (A) Transfeksiyondan 48 sa sonra üç METTL3 hedefli küçük interfere eden RNA'nın qRT-PCR taraması. (B) Aynı üç METTL3 hedefli küçük interfere eden RNA'nın Western-blot taraması. (C) METTL3 nakavdownu sonrası global m6A sinyali. (D) FOXD1 aşırı ekspresyonu sonrası FOXD1 transkript ve protein bolluğu. (E) Kontrol, si-METTL3, ov-FOXD1 ve kombine si-METTL3 + ov-FOXD1 koşullarında qRT-PCR ile ölçülen METTL3 ve FOXD1 transkript bolluğu. (F) Aynı kurtarma gruplarında western blotting ile ölçülen METTL3 ve FOXD1 protein bolluğu. (G) Cell Counting Kit-8 analizi. (H) Akış sitometrisi ile apoptoz. (I) Transwell migrasyonu. Üç bağımsız biyolojik deney gerçekleştirilmiştir. Western-blot bantlarının altındaki sayılar normalize edilmiş hedef protein/GAPDH oranlarını göstermektedir. ns, anlamlı değil; *P < 0.05; **P < 0.01; ***P < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
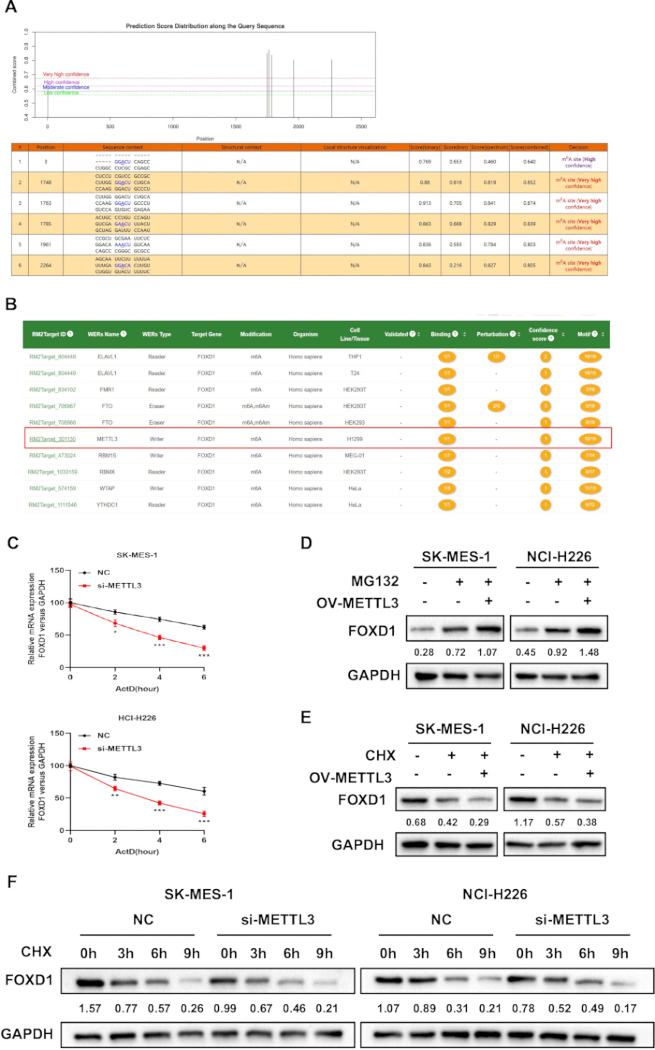
Şekil 5: METTL3, FOXD1 transkript ve protein regülasyonu ile ilişkilidir. (A) FOXD1 transkripti içindeki SRAMP tarafından öngörülen N6-metiladenozin bölgeleri. (B) METTL3'ü FOXD1 ile ilişkili bir aday yazıcı (writer) olarak tanımlayan m6A2Target öngörüsü. (C) Negatif kontrol ve METTL3-knockdown hücrelerinde 5 µg/mL actinomycin D uygulaması sonrası 0 h, 2 h, 4 h ve 6 h zaman noktalarındaki göreceli FOXD1 mRNA bolluğu. (D) İşlem görmemiş vektör-kontrol hücrelerinde, MG132 ile işlem görmüş vektör-kontrol hücrelerinde ve MG132 ile işlem görmüş METTL3-overexpressing hücrelerde (10 µM MG132) FOXD1 protein bolluğu. (E) İşlem görmemiş vektör-kontrol hücrelerinde, CHX ile işlem görmüş vektör-kontrol hücrelerinde ve CHX ile işlem görmüş METTL3-overexpressing hücrelerde (20 µM CHX) FOXD1 protein bolluğu. (F) Negatif kontrol ve METTL3-knockdown hücrelerinde 20 µM CHX uygulaması sonrası 0 h, 3 h, 6 h ve 9 h zaman noktalarındaki FOXD1 protein ekspresyonu. GAPDH yükleme kontrolü olarak kullanılmıştır. Hücre deneyleri üç bağımsız biyolojik tekrarda gerçekleştirilmiştir. Gösterilen blotlar temsilidir; bantların altındaki sayılar normalize edilmiş FOXD1/GAPDH oranlarını belirtmektedir. *P < 0.05; **P < 0.01; ***P < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
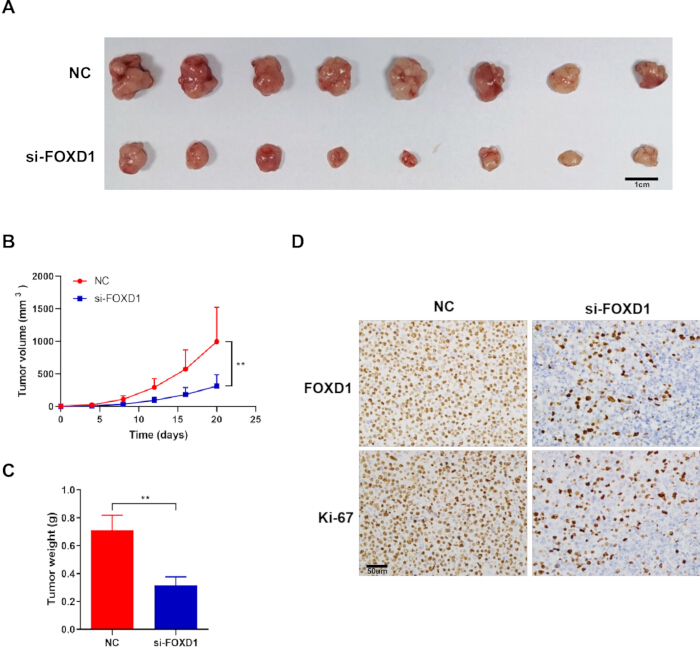
Şekil 6: FOXD1 knockdown'ı SK-MES-1 ksenogreft büyümesini baskılar. (A) Negatif kontrol ve FOXD1-knockdown gruplarından çıkarılan tümörler; ölçek çubuğu = 1 cm. (B) İmplantasyondan 1 hafta sonra başlayarak 20 gün boyunca her 4 günde bir ölçülen tümör büyümesi; örnekler inokülasyondan sonraki 27. günde toplanmıştır. (C) Toplama anındaki tümör ağırlığı. (D) Ksenogreft dokudaki temsili FOXD1 ve Ki-67 immünohistokimyası; ölçek çubuğu = 50 µm. n = grup başına 8 fare; **P < 0.01. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
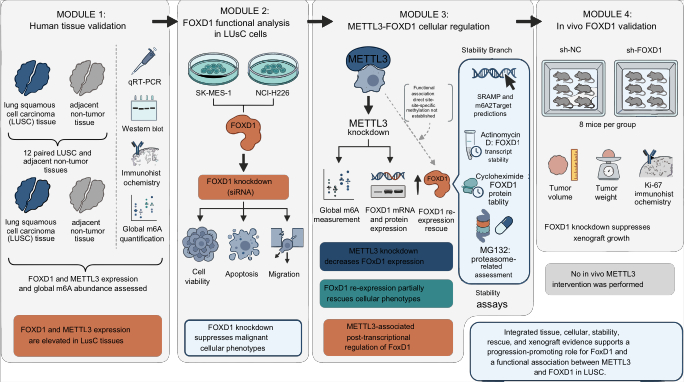
Şekil 7: Genel çalışma tasarımı ve kanıt sınırları. FOXD1, METTL3 ve global m6A profillemesi için eşleşmiş LUSC dokuları (n = 12 çift) ve hücre hatları kullanılmıştır; genetik pertürbasyon ve kurtarma işlemlerini canlılık, apoptoz, migrasyon ve stabilite analizleri izlemiştir. Bir FOXD1-knockdown ksenogreft modeli (grup başına n = 8 fare) 20 gün boyunca izlenmiştir. Diyagram, hücre tabanlı METTL3 kanıtlarını FOXD1-spesifik in vivo kanıtlardan ayırmakta; doğrudan bağlanma, bölgeye özgü m6A, okuyucu kimliği ve in vivo METTL3 aktivitesini test edilmemiş olarak tanımlamaktadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Gen | Yön | Dizilim (5′–3′) |
| FOXD1 | İleri (Forward) | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Geri (Reverse) | CGGAATCGGACGCAAGTCTT |
| GAPDH | İleri (Forward) | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Geri (Reverse) | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | İleri (Forward) | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Geri (Reverse) | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | İleri (Forward) | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Geri (Reverse) | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | İleri (Forward) | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Geri (Reverse) | CACTTAAAACACCGGCATTGG |
| WTAP | İleri (Forward) | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Geri (Reverse) | CTGCTGGACTTGCTTGAGGTAC |
Tablo 1: Kantitatif ters transkripsiyon polimeraz zincir reaksiyonu primer dizileri. Diziler 5′–3′ yönünde bildirilmiştir.
Tartışma
Mevcut iş akışı; eşleşmiş dokular, iki hücre hattı ve bir xenograft modeli üzerinden FOXD1'in LUSC'deki rolünü desteklemektedir. FOXD1, tümör örneklerinde ve LUSC hücrelerinde daha yüksekti; FOXD1'in azaltılması ise canlılığı ve migrasyonu düşürürken apoptozu artırdı. Bu bulgular, FOXD1'i çeşitli kanserlerde büyüme, invazyon, terapi direnci ve olumsuz sonuçlarla ilişkilendiren raporlarla uyumludur 10,11,12,13,21,22,23,24,25,26,27,28. Ayrıca bu bulgular, hücre tabanlı fenotipleri FOXD1-knockdown xenograft deneyi ile ilişkilendirerek önceki LUSC gözlemlerini genişletmektedir.
Eşleştirilmiş doku ve hücre analizleri, FOXD1 bolluğunu METTL3 ve global m6A ile daha ileri düzeyde ilişkilendirmiştir. 12 tümör çiftinde dört yazıcı gen yükselmişti, ancak METTL3, FOXD1 ile en güçlü pozitif ilişkiyi göstermiştir. Kültürlenmiş hücrelerde METTL3 eksiltilmesi global m6A ve FOXD1 bolluğunu azaltmış; FOXD1'in yeniden ekspresyonu ise ilişkili canlılık, apoptoz ve migrasyon fenotiplerini kısmen düzeltmiştir. Bu veriler, m6A düzenlemesinin malign fenotipler üzerindeki geniş etkisiyle uyumlu olarak, test edilen hücrelerde bir METTL3-FOXD1 fonksiyonel ilişkisini desteklemektedir29,30,31,32,33,34,35,36.
Tekrarlanabilirlik için birkaç protokol noktası önem arz etmektedir. Fonksiyonel analizlerden önce her hücre hattında knockdown verimliliği doğrulanmalı ve rescue koşulları, konstrüktü METTL3 aşırı ekspresyonu olarak yorumlamadan FOXD1 restorasyonunu doğrulamalıdır. Actinomycin D, CHX ve MG132 uygulamalarında protokolde belirtilen konsantrasyonlar ve örnekleme süreleri kullanılmalıdır. Transwell analizlerinde hücre yoğunluğu, serum gradyanı ve tutarlı bir görüntüleme alanı kontrol edilmelidir. Eğer bir araştırmacı iş akışını uyarlarsa, uzun süreli in vivo deneyler için stabil kısa saç tokası RNA (shRNA) veya genom düzenleme daha tercih edilebilir, ancak bu alternatifler bağımsız doğrulama gerektirir.
Çalışmanın çeşitli kısıtlılıkları bulunmaktadır. İnsan kohortu 12 eşleştirilmiş örnekten oluşmuştur ve sonuç modellemesi için tasarlanmamıştır. Fonksiyonel analizlere yalnızca seçilen bir küçük müdahale edici RNA dahil edildiğinden, sekanstan bağımsız hedef dışı doğrulama gerçekleştirilememiştir. Western-blot yorumlaması, şekillerde gösterilen normalize edilmiş değerlerle sınırlıdır; post hoc çıkarımsal testler uygulanmamıştır. SRAMP ve m6A2Target öngörüleri, küresel m6A ölçümleri ve stabilite analizleri; RNA immünopresipitasyonun, metillenmiş RNA immünopresipitasyonun, bölgeye özgü mutajenezin veya okuyucuya özgü kurtarmanın yerini tutmaz. METTL3 in vivo olarak manipüle edilmediğinden, ksenogreft verileri in vivo METTL3 iddiasını destekleyemez.
Gelecekteki çalışmalar; farmakolojik METTL3 inhibisyonunu test etmeli, FOXD1 ile ilişkili m6A bölgelerini ve doğrudan bağlanmayı haritalandırmalı, ilgili okuyucu proteini belirlemeli ve kurtarma stratejisini in vivo olarak tekrarlamalıdır. Klinik sonuçların değerlendirilmesi için ayrıca bağımsız olarak açıklanmış daha geniş bir kohorta ihtiyaç duyulacaktır. Mevcut kapsamı dahilinde bu çalışma, FOXD1'in fonksiyonel bir LUSC düzenleyicisi olduğunu desteklemekte ve METTL3'ün FOXD1 bolluğunu etkilediğine dair hücre tabanlı kanıtlar sunmaktadır; ancak eksiksiz bir METTL3-m6A-okuyucu-FOXD1 yolağı kurmamaktadır.
Açıklamalar
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler.
Yazar Katkıları:
D.A. ve Q.D. veri toplama ve klinik bilgilerin edinilmesine katkıda bulundu. K.W. ve S.F. moleküler biyoloji deneylerini ve veri analizini gerçekleştirdi. L.G. çalışma tasarımına ve verilerin yorumlanmasına katıldı. H.Z. istatistiksel analizleri yürüttü ve veri doğrulama sürecine yardımcı oldu. Y.S. hayvan deneylerini ve immünohistokimyasal analizi gerçekleştirdi. Q.P. migrasyon deneylerine ve deneysel kaynaklara katkıda bulundu. G.L. çalışmayı tasarladı, denetledi ve taslağı hazırladı. Tüm yazarlar metni inceledi, revize etti ve onayladı.
Teşekkürler
Yazarlar, sırasıyla kantitatif polimeraz zincir reaksiyonu ve western blotting konularındaki teknik yardımları için Zhe Tang ve Yan Zhang'e; hücre canlılığı ve apoptoz analizlerindeki yardımları için ise Yang Li'ye teşekkür ederler. Bu araştırma, Tibet Özerk Bölgesi Doğa Bilimleri Vakfı (No. XZ202001ZR0040G) tarafından finanse edilmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 7500 Fast Real-Time PCR Sistemi | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| Aktinomisin D | Sigma-Aldrich | SBR00013 | RNA stabilite analizi, 5 µg/mL |
| Annexin V-FITC/PI apoptoz kiti | BD Biosciences | 556547 | Akış sitometrik apoptoz |
| Atimik BALB/c nude fareler | N/A | N/A | Subkütan ksenogreft |
| BEAS-2B | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_0168 | Tümör dışı bronşiyal epitelyal referans; RRID: CVCL_0168 |
| Cell Counting Kit-8 | Beyotime | C0037 | Hücre canlılığı |
| Kristal viyole | N/A | N/A | Transwell boyama, 10 dk |
| Sikloheksimid | MedChemExpress | HY-12320 | Protein stabilite analizleri, 20 µM |
| DAB substrat kiti | N/A | N/A | İmmünohistokimya görselleştirme |
| Dulbecco modifiye Eagle ortamı | Gibco | 11995065 | Hücre kültürü |
| Geliştirilmiş kemilüminesans reaktifi | Thermo Fisher Scientific | A38556 | Western blot tespiti |
| Fetal bovin serum | Gibco | 10091148 | Hücre kültürü, %10 |
| Akış sitometresi | N/A | N/A | Apoptoz ölçümü |
| FOXD1 antikoru | Thermo Fisher Scientific | PA5-27142 | Western blot, 1:1.000; immünohistokimya |
| FOXD1 aşırı ekspresyon konstruktü | N/A | N/A | FOXD1 rescue |
| GAPDH antikoru | Cell Signaling Technology | 5174 | Western blot yükleme kontrolü, 1:2.000 (RRID: AB_10622025) |
| GEPIA | Peking University | http://gepia.cancer-pku.cn/ | Ekspresyon ve korelasyon sorguları; RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Sürüm 8 | İstatistiksel analiz; RRID: SCR_002798 |
| Yaban turbu peroksidaz-konjuge anti-tavşan immünoglobulin G | N/A | N/A | Western blot, oda sıcaklığında 1 sa |
| ImageJ | National Institutes of Health | https://imagej.nih.gov/ij/ | Migrasyon görüntüsü kantifikasyonu; RRID: SCR_003070 |
| Ki-67 antikoru | N/A | N/A | Ksenogreft immünohistokimyası |
| m6A2Target | Web kaynağı | http://m6a2target.canceromics.org/ | Öngörülen m6A regülatör-hedef etkileşimi |
| Metiltransferaz benzeri 3 antikoru | Proteintech | 15073-1-AP | Western blot, 1:1.000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Proteazom inhibisyon analizi, 10 µM |
| N6-metiladenozin kolorimetrik analiz | Epigentek | P-9005-96 | Global m6A ölçümü |
| NCI-H226 | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_1544 | LUSC hücre modeli; RRID: CVCL_1544 |
| Olympus mikroskobu | Olympus | Model kaydedilmedi | Transwell görüntüleme |
| Penisilin-streptomisin | Gibco | 10378016 | Hücre kültürü, %1 |
| Poliviniliden florür membran | Merck | IPVH00010 | Western blot transferi |
| PrimeScript ters transkripsiyon reaktif kiti | Takara | RR037A | Komplementer DNA sentezi |
| R Project for Statistical Computing | R Foundation | https://www.r-project.org/ | İstatistiksel analiz; RRID: SCR_001905 |
| Radyoimmünopresipitasyon analizi liz tamponu | Beyotime | P0013B | Protein ekstraksiyonu |
| RNAiso Plus | Takara | 9108 | RNA ekstraksiyonu |
| siRNA reaktifleri | N/A | N/A | FOXD1 ve METTL3 nakavt; siRNA-1 seçildi |
| SK-MES-1 | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_0630 | LUSC hücre ve ksenogreft modeli; RRID: CVCL_0630 |
| SRAMP | Web kaynağı | http://www.cuilab.cn/sramp | Aday FOXD1 m6A-bölge öngörüsü |
| TB Green PCR master mix | Takara | RR820A | qRT-PCR |
| Transfeksiyon reaktifi | N/A | N/A | siRNA ve plazmid iletimi |
| Transwell insertler | N/A | N/A | Migrasyon analizi |
Kaynaklar
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.