蛋白质转导技术能够将具有生物活性的蛋白质直接递送至细胞内。与传统的DNA转染或病毒转导方法相比,这种非侵入性策略能够以可调节的方式实现高效的细胞操控,避免了因永久性基因修饰所导致的细胞毒性及致癌转化风险。
本文内容
摘要
摘要
蛋白质转导技术能够将具有生物活性的物质直接递送至哺乳动物细胞内[综述见1,2]。该技术可利用一类被称为细胞穿透肽(cell penetrating peptides, CPPs)的分子,也称为蛋白质转导结构域(protein transduction domains, PTDs)。来源于人类免疫缺陷病毒1型(HIV-1)的Tat(转录反式激活因子)蛋白的TAT-CPP已被广泛应用。带正电荷的TAT可通过内吞作用和/或直接穿透细胞膜的方式促进细胞通透性,从而克服细胞膜屏障2。当与核定位信号(nuclear localization signal, NLS)结合时,融合蛋白能够进入细胞核并发挥功能。我们的视频展示以可穿透细胞的蛋白质构建为例,演示了DNA修饰酶Cre的一种细胞可穿透形式的构建、生产及其应用。
Cre 是一种位点特异性重组酶,能够在哺乳动物细胞中识别并重组 34 个碱基对长的 loxP 位点 体外 和 体内因此,Cre/loxP 系统被广泛用于在活细胞基因组中条件性地诱导突变3,4然而,将有活性的Cre重组酶递送至细胞仍存在局限性。
我们介绍了pSESAME载体系统,该系统允许将目的基因直接插入,并提供了一个平台,可方便、标准化地快速克隆载体内不同的结构域和标签。已证实,重组不同标签的排列顺序可改变融合蛋白的生化特性,从而有可能获得更高的表达产量和更好的溶解性。我们展示了如何在大肠杆菌(E. coli)中表达并纯化重组的细胞通透性蛋白。最后,通过评估重组Cre蛋白在细胞内的重组酶活性,在细胞培养中验证了其功能活性。
方案
表达载体的构建与表达:
通过标准克隆方法,利用AvrII和NheI限制性酶切位点将编码Cre的片段插入pSESAME载体,构建了pSESAME-Cre表达载体。pSESAME编码一种融合蛋白,包含组氨酸标签、TAT结构域、NLS序列和Cre,缩写为HTNCre。为表达HTNCre,将pSESAME-Cre转化至TUNER (DE3) pLacI菌株中,并用于制备甘油菌种保存液。
- 使用移液枪头蘸取甘油保种管中的转化菌,接种于过夜培养液中。过夜培养液包含添加了0.5%葡萄糖 [v/v] 和羧苄西林(终浓度为50 μg/mL)的LB培养基,并在37°C下培养16小时。
- 次日,将生长浓密的过夜培养物按1:40的比例接种至表达培养液中,并置于37°C培养箱中培养。表达培养液包含添加了0.5%葡萄糖 [v/v] 和氨苄青霉素(终浓度为100 μg/mL)的TB培养基。
- 当OD595达到1.5时,加入0.5 mM IPTG诱导表达1小时。
- 随后,使用SLA3000转子在5000 rpm条件下离心10分钟收集菌体。
- 菌体沉淀在-20°C保存,直至进行纯化。
细胞通透性蛋白的纯化:
- 将每升摇瓶培养物的冷冻细菌沉淀在10 mL裂解缓冲液中重悬,在室温下孵育15分钟。
- 随后加入终浓度为1 mg/mL的溶菌酶,继续在室温下混匀孵育15分钟。
- 再加入25 U/mL苯并核酸酶,在室温下混匀孵育15分钟。
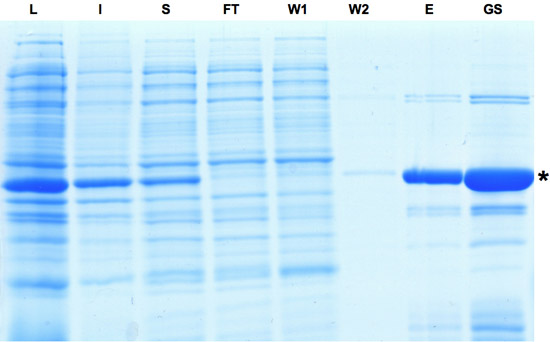
- 在冰上进行超声处理,功率为45%,脉冲0.5秒,总时长1.5分钟;之后每毫升悬液中缓慢加入1 mL预冷的酒石酸盐缓冲液(TSB),边加边混匀,并在冰上孵育5分钟。取裂解组分(L)用于SDS-PAGE分析。
- 在4°C、30,000g条件下离心30分钟,获得澄清裂解液。分别取可溶性组分(S)和不溶性组分(I)用于SDS-PAGE分析。
- 将上清转移至新的50 mL Falcon管中,每升初始表达培养物加入2 mL 50% Ni-NTA悬液,在4°C轻柔混匀1小时。
- 将悬液装入重力流EconoPac层析柱中(收集穿流组分(FT)用于SDS-PAGE分析),并用2倍柱体积的洗涤缓冲液洗涤两次。分别收集两步洗涤组分(W1和W2)用于SDS-PAGE分析。
- 用3倍柱体积的洗脱缓冲液洗脱含HTNCre的组分,并取洗脱组分(E)用于SDS-PAGE分析。
- 通过高盐缓冲液透析两次,去除咪唑。
- 进一步使用甘油缓冲液透析两次以浓缩蛋白溶液。所有透析步骤中,缓冲液体积与样品体积之比至少为50。该过程最终获得含HTNCre的甘油储存液,蛋白浓度通常为200至450 μM,即每升表达培养物可获得约12 mg蛋白。取甘油储存液(GS)样品用于SDS-PAGE分析。HTNCre储存液可在-20°C保存。

图1: Cre重组酶纯化过程中所收集样品的SDS-PAGE分析。裂解液组分中出现的主条带表明Cre蛋白已成功诱导表达。尽管部分蛋白不溶,但Cre蛋白在洗脱组分和甘油保存组分中得到了进一步富集。L:裂解液,I:不溶组分,S:上清液,FT:穿流组分,W:洗涤组分,E:洗脱组分,GS:甘油保存液。请点击此处查看图1的放大版本。
蛋白质转导至小鼠胚胎干细胞(ES细胞):
- 使用 TrypLE™ Express 将携带条件性 β-半乳糖苷酶报告基因5 构建体的 ES 细胞解离为单细胞后接种。4 至 6 小时后细胞重新贴壁,弃去培养基。
- 随后,ES 细胞在含有 HTNCre 的培养基中孵育 16 小时。
- 从甘油保存液中取适量 HTNCre 蛋白(相当于 10 μM),稀释于 ES 培养基中,随后经无菌过滤(0.22 μm)。
- 蛋白转导完成后,更换为正常生长培养基。
- 两天后,用 PBS 洗涤细胞,并用 4% 多聚甲醛(PFA)固定 10 分钟。
- 在进行 X-Gal 染色前,再用 PBS 额外洗涤两次。
- 将固定后的细胞覆盖一层 X-Gal 染色液6,于 37°C 过夜孵育。
代表性结果:
次日吸除X-Gal染色液,细胞用一层PBS覆盖,用于显微镜分析。根据β-半乳糖苷酶活性判断,在小鼠ES细胞中可观察到80%至100%的重组细胞。
讨论
在Cre融合蛋白的纯化过程中,离心前必须加入冰 冷的TBS缓冲液,不可省略此步骤,否则Cre重组酶容易在甘油缓冲液中发生沉淀。
如果由于融合蛋白浓度过高导致洗脱组分出现浑浊,应加入更多的洗脱缓冲液,直至溶液重新变澄清。
使用10 μM的Cre融合蛋白通常可达到80%至100%的重组效率。胎牛血清(FCS)作为胚胎干细胞培养基的主要成分,会强烈抑制蛋白转导,因此必须使用高浓度的Cre重组酶。在无血清条件下,仅需使用较低浓度的蛋白(0.5 - 2 μM)即可达到相似的重组效率。
利用pSESAME载体系统,可将蛋白质转导技术应用于其他蛋白质,包括Oct4和Sox27以及Scl/Tal18等转录因子。
致谢
感谢奥利弗·布吕斯勒(Oliver Brüstle)以及波恩大学干细胞工程组的全体成员提供的支持和宝贵讨论。感谢萨宾娜·申克(Sabine Schenk)在 SDS-PAGE 制备以及整个项目过程中持续的支持。妮可·鲁斯(Nicole Russ)和安娜·马格亨斯(Anna Magerhans)提供了出色的技术支持。此外,我们感谢安德烈亚斯·贝尔(Andreas Bär)和希拉·默滕斯(Sheila Mertens)参与影片的制作。本工作得到了大众基金会(Volkswagen Foundation,项目编号 I/77864)和德国联邦教育与研究部(BMBF,项目编号 01 GN 0813)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| TUNER (DE3) pLacI | Novagen, EMD Millipore | 70625 | |
| 甘油 | Carl Roth GmbH | 3783.2 | |
| Na2HPO4 | Carl Roth Gmbh | T876.1 | |
| Trizma Base | Sigma-Aldrich | T1503 | |
| HCl | Carl Roth Gmbh | 4625.1 | |
| 咪唑 | Carl Roth Gmbh | X998.4 | |
| NaCl | Carl Roth Gmbh | 9265.2 | |
| 酵母提取物 | Carl Roth Gmbh | 2363.4 | |
| 胰蛋白胨/蛋白胨 | Carl Roth Gmbh | 8952.4 | |
| K2HPO4 | Carl Roth Gmbh | P749.2 | |
| KH2PO4 | Carl Roth Gmbh | 3904.1 | |
| 氨苄青霉素 | Sigma-Aldrich | A9518 | |
| 羧苄青霉素 | Sigma-Aldrich | 6344.2 | |
| HEPES | Sigma-Aldrich | H3375 | |
| 溶菌酶 | Sigma-Aldrich | 62971 | |
| 苯并核酸酶 | Novagen, EMD Millipore | ||
| L-酒石酸二钠盐 | Sigma-Aldrich | ||
| 50% Ni-NTA 悬浮液 | Invitrogen | R901-15 | |
| EconoPac 层析柱 | Bio-Rad | 732-1010 | |
| 0.22μm 无菌滤器 | Whatman, GE Healthcare | ||
| 多聚甲醛(PFA) | Sigma-Aldrich | ||
| LB 培养基 | 酵母提取物,胰蛋白胨/蛋白胨,NaCl | ||
| TB 培养基 | 酵母提取物,胰蛋白胨/蛋白胨,甘油,K2HPO4,KH2PO4 | ||
| 裂解缓冲液 | 50 mM Na2HPO4,5 mM Tris,pH 7.8 | ||
| 酒石酸盐缓冲液(TSB) | PTB 含 2 M L-酒石酸二钠盐和 20 mM 咪唑 | ||
| 洗涤缓冲液 | PTB,500 mM NaCl,15 mM 咪唑 | ||
| 洗脱缓冲液 | PTB,500 mM NaCl,250 mM 咪唑 | ||
| 高盐缓冲液 | 600 mM NaCl,20 mM HEPES,pH 7.4 | ||
| 甘油缓冲液 | 50% 甘油,500 mM NaCl,20 mM HEPES,pH 7.4 | ||
| TrypLE™ Express | Invitrogen | ||
| ESGRO(LIF) | EMD Millipore | ||
| NEAA | GIBCO, by Life Technologies | 11140035 | |
| L-谷氨酰胺 | GIBCO, by Life Technologies | 25030024 | |
| β-巯基–乙醇 | GIBCO, by Life Technologies | 31350010 | |
| DMEM | GIBCO, by Life Technologies | 11960044 | |
| PBS | GIBCO, by Life Technologies | ||
| 胎牛血清(FCS) | PAA Laboratories | ||
| X-Gal 染色液: | 4 mM K3(FeIII(CN)6),4 mM K4(FeII(CN)6), 2 mM MgCl2,0.4 mg/mL X-Gal 溶于 PBS | ||
| K3(FeIII(CN)6) | Sigma-Aldrich | P-3367 | |
| K4 (FeII(CN)6) | Sigma-Aldrich | P-9387 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| X-Gal | Sigma-Aldrich | B4252 |
参考文献
- Gump, J. M., Dowdy, S. F. TAT transduction: the molecular mechanism and therapeutic prospects. Trends Mol Med. 13 (10), 443-448 (2007).
- Edenhofer, F. Protein transduction revisited: novel insights into the mechanism underlying intracellular delivery of proteins. Curr Pharm Des. 14 (34), 3628-3636 (2008).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6 (1), 7-28 (2004).
- Nolden, L. Site-specific recombination in human embryonic stem cells induced by cell-permeant Cre recombinase. Nat Methods. 3 (6), 461-467 (2006).
- Zhang, Y. Inducible site-directed recombination in mouse embryonic stem cells. Nucleic Acids Res. 24 (4), 543-548 (1996).
- Peitz, M. Enhanced purification of cell-permeant Cre and germline transmission after transduction into mouse embryonic stem cells. Genesis. 45 (8), 508-517 (2007).
- Bosnali, M., Edenhofer, F. Generation of transducible versions of transcription factors Oct4 and Sox2. Biol Chem. 389 (7), 851-861 (2008).
- Landry, J. R. Runx genes are direct targets of Scl/Tal1 in the yolk sac and fetal liver. Blood. 111 (6), 3005-3014 (2008).
重印与许可
