神经系统的活动通常需要特定神经元群体内神经元的同步动作电位发放。例如,促性腺激素释放激素(GnRH)的脉冲式分泌很可能依赖于GnRH神经元之间的协调活动。本文介绍了我们用于可靠获取广泛分布的GnRH神经元同步电生理记录的方法学策略。
本文内容
摘要
摘要
促性腺激素释放激素(GnRH)是一种小分子神经肽,可调节垂体释放黄体生成素(LH)和卵泡刺激素(FSH)。这些促性腺激素对生殖功能的调控至关重要。含有GnRH的神经元弥散分布于下丘脑,并投射至正中隆起,在此处通过轴突末梢将GnRH释放到垂体门脉系统中(1)。在门脉毛细血管中,GnRH被运送至腺垂体,刺激促性腺激素释放入体循环。GnRH的释放并非持续不断,而是以脉冲形式间歇性释放。已有充分证据表明,GnRH的间歇性释放对生殖功能至关重要(2, 3)。
多个促性腺激素释放激素(GnRH)神经元活动的协调可能是GnRH脉冲产生的基础。GnRH神经元中的总肽含量约为1.0 pg/细胞(4),其中约30%可能属于可释放池。脉冲期间GnRH的水平(5, 6)提示,神经分泌过程可能涉及多个GnRH神经元。同样,在黄体生成素(LH)释放期间,从下丘脑多单位记录中提取的单个神经元活动表明多个神经元的活动发生变化(7)。在LH脉冲期间记录到活动的电极与GnRH胞体或纤维相关(8)。因此,至少部分该活动来源于GnRH神经元。
导致下丘脑促性腺激素释放激素(GnRH)神经元同步放电的机制尚不清楚。阐明协调GnRH神经元放电活动的机制是一个复杂的问题。首先,GnRH神经元数量相对较少,在啮齿类动物中仅有800至2500个。目前尚不明确是否所有GnRH神经元都参与脉冲式GnRH的释放。此外,GnRH神经元呈弥散性分布(1),这增加了我们对放电协调机制的理解难度,也使得许多技术手段难以实施。我们已优化了电流钳模式下的松散贴附细胞记录技术,用于直接检测动作电位,并建立了一种可同时记录成对GnRH神经元活动的记录方法。
方案
- 按照先前所述方法制备、孵育下丘脑脑片,并将其转移至记录室(9),实验动物的促性腺激素释放激素(GnRH)神经元在GnRH肽启动子调控下表达绿色荧光蛋白(GFP)(10)。从动物体内取出脑组织后,使用剃刀刀片对脑组织进行修块,以去除无关区域。为确定需切除的区域,将脑组织置于背侧表面,以便观察下丘脑。无论是冠状切片还是矢状切片方向,均需切除小脑。在制备冠状切片时,需切除大脑前部皮层。此切片方向中,皮层的外侧区域可为切片提供支撑,并为银丝固定脑组织于记录室提供足够的附着面积。在制备矢状切片时,则需切除脑组织的外侧部分,而皮层的前部区域则提供切片支撑及银丝固定位置。在整个修块过程中,需持续使用玻璃移液管将冷的人工脑脊液(ACSF)滴加至脑组织表面,以保持其湿润。
- 在切片平台上滴加少量超级胶水。使用刮铲将脑组织轻轻托起,并用Kimwipe纸巾接触刮铲表面,吸除多余的ACSF。随后将脑组织缓慢向前滑入胶水中。注意不要直接触碰脑组织或向下按压以固定,脑组织自身的重量通常已足以确保其稳固。
- 将脑组织与切片平台固定于振动切片机上,并向切片槽内注入冷ACSF。低温溶液可使脑组织变硬,并在切片过程中起到保护作用。不同脑区对最佳切片温度的需求有所不同,制备下丘脑切片时,ACSF的温度通常为0°C。
- 切片应缓慢进行,每一片应能自由漂离脑组织。若切片在切割过程中出现卷曲,应降低刀片推进速度。可使用小号画笔轻柔展开卷曲的切片,但此操作存在损伤切片的风险,应尽量避免。优先选择降低刀片推进速度,而非使用画笔处理。
- 每当一片切片从脑组织上切下后,应立即将其从切片槽中取出,并转移至预热的孵育室(水浴温度约32°C)。切片孵育室持续通入95% O2 和5% CO2 的混合气体。通常,记录前的切片孵育时间为30分钟至2小时。
- 玻璃移液管(3–6 MΩ)采用垂直拉制仪按先前方法制备(9)。拉制温度和时间取决于所用拉制仪型号、玻璃类型以及加热丝的使用寿命。移液管尖端的形状也可根据使用者偏好进行调整。我们发现,尖端均匀锥形、开口直径为0.1 mm的移液管效果良好。开口过大的移液管容易损伤神经元,而开口过小则难以实现长时间记录。
- 使用Sylgard包被移液管以降低电容。用另一支移液管将Sylgard 184轻涂于已拉制的移液管尖端,随后使用热风枪加热固化。包被后的移液管用灌流液填充。为增强移液管尖端的可视性,可在用于填充移液管的灌流液中加入少量Alexa-568染料。我们不称量Alexa-568的用量,而是凭肉眼观察使溶液呈现粉红色即可。此后可在Texas red滤光镜下清晰观察移液管尖端。
- 我们已建立一种通过低阻封接获取电流钳记录以检测动作电位的方法(见讨论部分)。记录在细胞自身静息电位下进行,不施加额外电流,使用Axon Instruments的2B Axoclamp放大器。但由于封接电阻较低,仅使用2B放大器无法有效检测动作电位。为增强信号,采用第二台放大器(AM Systems 3000)与Axoclamp 2B串联。该方法兼具松散封接的简便性与长期记录的实用性。从技术上讲,可直接测量动作电位,从而避免电压钳记录模式中存在的问题(见讨论部分)。
- 采用与全细胞记录配置类似的方法,同时将两根移液管移至两个预先选定的神经元表面。相比分别独立尝试封接两个神经元,同时接近两个神经元更有利于成功获得双细胞记录。在此过程中,如同全细胞记录操作,通过2B放大器施加电流注入脉冲。
- 必须对两根移液管持续施加正压,以防止尖端堵塞。双记录中的正压最好通过将一个未填充的3 ml空注射器经一段软管连接至移液管持夹器来实现。使用注射器可同时维持两根移液管的压力。一旦移液管进入记录室的灌流液中,即应立即施加正压。随后依次将移液管接近目标神经元。将第一根移液管准确定位于神经元最大表面积的正上方后,通过保持注射器位置不变来维持正压,并将移液管固定在此位置。然后返回记录室上方,将第二根记录移液管下放至目标位置。所选神经元通常位于切片的不同深度,应先将第一根移液管置于切片较深位置的神经元上方,再将第二根移液管置于较表浅的神经元上方。此举可避免因移液管进入切片时引起的切片垂直方向轻微移动,从而干扰第二根移液管的定位。
- 采用松散封接(18–30 MΩ)。正压会在每个细胞表面产生微小凹陷。通过释放正压并施加极轻微的负压,尝试对第一个神经元形成封接。释放正压的方法是取下注射器,然后用嘴对软管的自由端施加吸力。健康的神经元膜会迅速响应正压释放并贴附于移液管尖端,轻微吸力即可在健康神经元上形成具有适当电阻的封接。
- 当尝试封接神经元失败时,该移液管不可重复使用,因为细胞膜仅能与非常洁净的玻璃表面形成封接。此时应将移液管(及显微镜物镜)从切片表面抬升至灌流槽顶部,将移液管移出灌流液,更换为洁净移液管后,再返回切片尝试封接另一个细胞。因此,预先选择多个潜在记录神经元至关重要。若切片中可供选择的高质量记录神经元少于4–6个,则获得双记录的成功率将显著降低。
- 在基于电阻确认形成松散封接后,停止来自2B放大器的电流注入脉冲。将2B放大器与3000系列放大器串联连接。在此配置中,2B放大器的输出作为3000系列放大器的输入,后者提供用于数据采集的信号。
- 随后对第二个神经元重复封接(步骤4)和放大器重新配置(步骤5)操作。
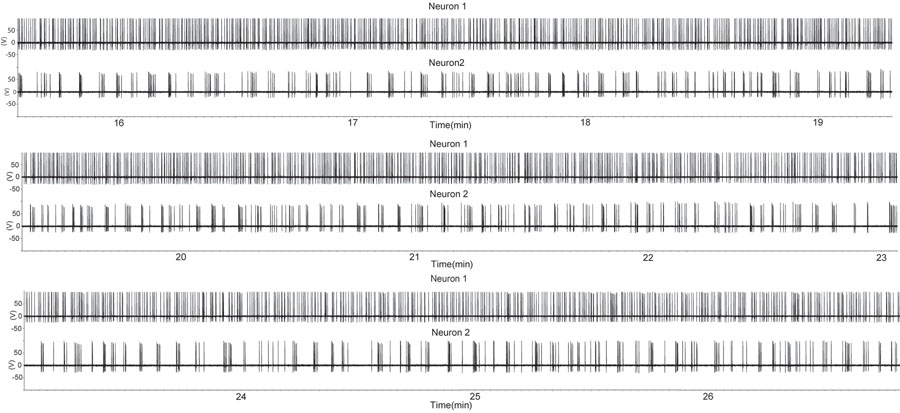
图1. 使用松密封附着记录模式在矢状切片标本中记录到的两个 GnRH 神经元放电增加时期。切片来源于去势雄性动物。每个向上的偏转代表一个动作电位。注意,其中一个 GnRH 神经元(上方轨迹)表现出近乎持续的放电,而另一个 GnRH 神经元则表现出间歇性簇状放电。这种来自单个 GnRH 神经元的活动模式与激素分泌期间从多单位记录中分离出的单个单位放电模式相似
关键词:GnRH 神经元,松密封附着记录,矢状切片,去势雄性,动作电位,簇状放电,多单位记录,激素分泌 体内 (7)请 点击此处 查看图1的放大版本。
讨论
某些神经元(包括基于激素分泌的GnRH神经元)中感兴趣的活动发生在数小时的时间尺度上(5–7)。因此,由于全细胞记录模式会导致细胞内信使被透析,全细胞构型并非某些实验目标的最佳选择。其次,全细胞记录通常仅限于年龄小于约120天的动物。随着年龄增长,神经元膜似乎变得更僵硬,难以形成高阻封接。此外,即使获得了高阻封接,穿破膜片也会破坏封接,在移液管与膜之间留下孔洞。这将导致记录无法使用,且神经元会因离子失衡而迅速死亡。规律的卵巢周期以及由此产生的GnRH脉冲发生器的稳定活动直到生命后期才出现(C57Bl6雌性小鼠为7–10月龄;11, 12),这已超出能够可靠获得全细胞记录的年龄范围。最后,全细胞记录会破坏细胞内外离子浓度的内源性比例。在全细胞记录中,任何离子的胞内浓度均等于移液管溶液中该离子的浓度。这是因为移液管溶液的相对较大体积会迅速与细胞相对较小的内源体积达到平衡或将其取代。
松散细胞贴附法克服了全细胞记录的许多局限性。首先,可以使用低电阻封接(15–30 MΩ),这种封接相对容易形成,即使在来自较年老动物的神经元中也是如此。其次,该方法不需要击破已封接的膜区域,因此在技术上比全细胞记录容易得多。此外,由于细胞膜保持完整,细胞内成分不会发生透析,内源性离子比例得以维持。虽然松散细胞贴附法不能用于研究突触电流,但它非常适合以相对非侵入的方式对神经元进行长期记录。细胞贴附记录还可以使用任何标准的细胞内溶液填充记录电极,这带来另一个优势:在完成长期记录后,可击破膜片,从而通过细胞内标记物对神经元进行标记。
松散细胞贴附法已用于电压钳记录模式。然而,在松散细胞贴附构型下进行电压钳记录存在若干方法学问题。首先,所记录的信号是对细胞活动的间接测量。所测得的信号(即所谓动作电流)实际上是用于给细胞膜充电的电容电流(13)。这是一个极为重要的方法学问题。记录电极的电容和电阻可能对所记录的信号产生滤波效应。由于前置放大器的高电阻,大多数放大器无法充分补偿电极的电容,因此微小的动作电流很可能在给电极电容充电过程中丢失。当这些信号未被检测到时,神经元表现出的放电模式并不能真实反映其实际放电模式。同样地,未补偿的电极电阻和封接电阻在动作电流表达等变化过程中会导致测量出现显著误差(13)。某些放大器提供针对电极和封接的电容与电阻“补偿”功能,可在一定程度上减少信号损失,但大多数放大器的高电阻前置级仍会阻碍最佳补偿效果。其次,该方法使细胞处于一种人为状态。在电压钳模式下,细胞膜周围区域被固定于某一恒定电位,在这些研究中为0 mV。这并不意味着没有电流施加于细胞膜。电压钳模式下所测量的信号,实际上是为维持该恒定电位而施加于膜上的电流大小。因此,这种外加电流可能改变细胞的活动状态。
由于促性腺激素释放激素(GnRH)神经元数量有限且分布弥散,对GnRH系统进行双细胞记录尤为困难。要成功实现双记录,操作器必须具有极高的稳定性。即使电极发生轻微移动,也可能导致移液管从神经元上滑脱,从而终止记录。此外,移液管在细胞上的移动(例如为补偿漂移而重新定位)可能改变神经元的放电模式。某些离子通道(如N型钙通道)具有机械敏感性:膜的牵拉可导致全细胞和细胞贴附记录模式下均出现重复性放电活动(14)。最后,操作器系统必须能够实现极其精细且平滑的运动。如前所述,在进行双记录时,需同时将两根移液管移至两个预先选定的神经元表面,并尝试对其中一个神经元形成封接。若成功,则再尝试对第二个细胞形成封接。通常情况下,不能期望每次尝试都能成功封接并获得高质量的记录。然而,这对双记录带来了一个特殊问题:若第一个神经元封接成功而第二个失败,则必须更换移液管并尝试另一个细胞。因此,必须能够在不干扰已成功封接的神经元的前提下,将显微镜的浸液物镜和移液管同时移动至灌流槽的顶部(以更换移液管)。
我们开发并采用松散细胞贴附法进行双记录,这是研究 GnRH 神经元的一项重要技术进步。该方法有望产生有益的结果,有助于推动领域发展,以回答一个关键科学问题:何种机制介导了协调性活动,从而导致脉冲式激素分泌。
致谢
感谢 Ronald L. Calabrese、Dieter Jaeger(埃默里大学)和 Ward Yuhas(Axon Instruments)在技术问题上的有益讨论。
参考文献
- Silverman, A. J. The gonadotropin releasing-hormone (GnRH) neuronal systems: immunocytochemistry. The Physiology of Reproduction. Knobil, E., Neill, J. D. , Raven Press. New York. (1994).
- Freeman, M. E. The neuroendocrine control of the ovarian cycle of the rat. In: The physiology of reproduction. The Physiology of Reproduction. Knobil, E., Neill, J. D. , Raven Press. New York. (1994).
- Belchetz, P. E., Plant, T. M., Nakai, Y., Keogh, E. J., Knobil, E. Hypophysial responses to continuous and intermittent delivery of hypopthalamic gonadotropin-releasing hormone. Science. 202, 631-633 (1978).
- Maurer, J. A., Wray, S. Luteinizing hormone-releasing hormone quantified in tissues and slice explant cultures of postnatal rat hypothalami. Endocrinology. 140, 791-799 (1999).
- Harris, G. C., Levine, J. E. Pubertal acceleration of pulsatile gonadotropin-releasing hormone release in male rats as revealed by microdialysis. Endocrinology. 14, 163-171 (2003).
- Sisk, C. L., Richardson, H. N., Chappell, P. E., Levine, J. E. In vivo gonadotropin-releasing hormone secretion in female rats during peripubertal development and on proestrus. Endocrinology. 142, 2929-2936 (2001).
- Cardenas, H., Ordog, T., O'Byrne, K. T., Knobil, E. Single unit components of the hypothalamic multiunit electrical activity associated with the central signal generator that directs the pulsatile secretion of gonadotropic hormones. Proc Natl Acad Sci U S A. 90, 9630-9634 (1993).
- Silverman, A. J., Wilson, R., Kesner, J. S., Knobil, E. Hypothalamic localization of multiunit electrical activity associated with pulsatile LH release in the rhesus monkey. Neuroendocrinology. 44, 168-171 (1986).
- Roberts, C. B., O'Boyle, M. P., Suter, K. J. Dendrites determine the contribution of after depolarization potentials (ADPs) to generation of repetitive action potentials in hypothalamic gonadotropin releasing-hormone (GnRH) neurons. J Comput Neurosci. 26, 39-53 (2009).
- Spergel, D. J., Kruth, U., Hanley, D. F., Sprengel, R., Seeburg, P. H. GABA- and glutamate-activated channels in green fluorescent protein-tagged gonadotropin-releasing hormone neurons in transgenic mice. J Neurosci. 19, 2037-2050 (1999).
- Nelson, J. F., Felicio, L. S., Randall, P. K., Sims, C., Finch, C. E. A longitudinal study of estrous cyclicity in aging C57BL/6J mice: I. Cycle frequency, length and vaginal cytology. Biol Reprod. 27, 327-339 (1982).
- Gee, D. M., Flurkey, K., Finch, C. E. Aging and the regulation of luteinizing hormone in C57BL/6J mice: impaired elevations after ovariectomy and spontaneous elevations at advanced ages. Biol Reprod. 28, 598-607 (1983).
- Anson, B. D., Roberts, W. M. Loose-patch voltage-clamp technique. Neuromethods, Patch-clamp analysis: Advanced techniques. Walz, W., Boulton, A. A., Baker, G. B. 35, Humana Press. Place Unknown. 265-286 (2002).
- Calabrese, B., Tabarean, T., Juranka, P., Morris, C. E. Mechanosensitivity of N-type calcium channel currents. Biophys J. 83, 2560-2574 (2002).
- Higure, Y., Katayama, Y., Takeuchi, K., Ohtubo, Y., Yoshii, K. Rapid killing of single neurons by irradiation of intracellularly injected dye. Science. 206, 702-704 (1979).
- Higure, Y., Katayama, Y., Takeuchi, K., Ohtubo, Y., Yoshii, K. Lucifer Yellow slows voltage-gated Na+ current inactivation in a light-dependent manner in mice. J Physiol. 550, 159-167 (2003).
重印与许可
