本文介绍了一种在siRNA转染后对活体哺乳动物组织培养细胞进行有丝分裂时间成像与定量分析的基本实验方案。
本文内容
摘要
摘要
有丝分裂过程中发生的细胞结构变化和染色体动态变化受到严密协调,以确保基因组和细胞内容物的准确遗传。利用表达特定GFP标记蛋白的哺乳动物细胞系,通过延时荧光显微镜观察,可轻松在单细胞水平追踪有丝分裂的标志性事件,例如染色体运动。结合RNA干扰介导的蛋白敲低,该方法可有效确定特定蛋白水平降低后,有丝分裂中出现缺陷的具体阶段。本实验方案介绍了一种评估潜在有丝分裂调控蛋白缺失对有丝分裂时序影响的基本方法。细胞经siRNA转染后,置于载物台培养舱中,使用自动荧光显微镜进行成像。我们阐述了如何利用软件设置延时实验,如何处理图像序列以生成静态图像拼接图或动态视频,以及如何利用表达mCherry标记组蛋白H2B的细胞系对有丝分裂各阶段的持续时间进行定量与分析。最后,我们讨论了设计延时成像实验时需考虑的关键因素。该策略与其他方法互为补充,具有以下优势:1)能够灵敏检测到在群体细胞分析中可能被忽略的动力学变化;2)无需使用药物处理同步细胞周期,即可对有丝分裂进行分析。此类成像实验所提供的可视化信息不仅可用于评估有丝分裂的亚阶段,还可能揭示流式细胞术(FACS)细胞周期分析所无法显现的意外发现。
关键词:有丝分裂,延时成像,荧光显微镜,RNA干扰,siRNA,组蛋白H2B,mCherry,GFP,细胞周期,染色体动态
方案
siRNA 转染与细胞制备
- 向将要使用的每个孔中加入 0.5 mL 纤连蛋白(10 μg/mL),准备 4 孔 LabTek II 培养皿腔载玻片,在室温下孵育 10–15 分钟。
- 根据生产商说明书,制备用于反向转染的 siRNA/Lipofectamine RNAiMAX(Invitrogen)复合物。每腔使用相当于 24 孔板一孔的推荐用量(总体积 100 μL)。可使用类似的 siRNA 转染产品或方案替代。
- 从腔载玻片的各孔中移除纤连蛋白,向将要使用的每个孔中加入 100 μL siRNA/Lipofectamine RNAiMAX 复合物。
- 将表达组蛋白 H2B-mCherry 的细胞按每孔 20,000 个(溶于 500 μL 中)分装至含有转染混合物的孔中。
- 让细胞孵育约 24 小时,然后将转染混合物更换为 1 mL 常规细胞培养基。
- 在成像前再孵育细胞 24 小时(转染后 48 小时)。
显微镜设置与图像采集
- 图像采集装置包含三个主要部分:1)可放置在显微镜载物台上的细胞培养箱,用于维持37°C、5% CO2的恒定湿润环境;2)配备自动载物台、自动荧光和明场快门以及自动滤光轮的倒置显微镜;3)集成并控制载物台、快门和滤光轮的软件包。在我们的成像系统中,使用的是OKO Lab定制的细胞培养箱,可与LabTek II腔室盖玻片配合使用。载物台、快门和滤光轮由Metamorph软件控制。提示:OKO Lab的载物台培养箱系统配有适用于多种不同规格培养板、培养皿或盖玻片的适配器。
- 打开已预热并平衡好的培养箱盖子,将LabTek II腔室盖玻片放入适配器中,并用油泥固定位置,确保其稳固。保持腔室盖玻片的盖子处于关闭状态,以防止细胞培养基干燥。关闭培养箱盖子后,将整个培养箱放置在显微镜载物台上,确保其牢固固定。
- 在Metamorph软件中,通过菜单栏选择“Apps/Multidimensional Acquisition”来设置实验参数。该操作将弹出一个窗口,可在其中设定延时成像的时间频率和持续时间、每种荧光通道的曝光时间(如使用多个设置)、载物台位置的数量与坐标、以及z轴层数(如需要)。同时选择数据文件的保存路径。提示:如果使用非Metamorph的其他软件,具体操作可能略有不同,但整体原理相同。Micromanager是一款基于开源ImageJ的采集软件,兼容大多数硬件配置,是优秀的替代选择。
- 本实验方案中,将在15个载物台位置,每隔15分钟采集一次两个波长(明场和mCherry)的图像,持续8小时。提示:若需更高的时间分辨率,可缩短采集间隔;但可用的载物台位置将减少,从而可用于分析的有丝分裂细胞数量也会减少。在设定时间间隔时,必须考虑滤光轮在不同滤光片组之间切换所需的时间。
- 首先使用明场照明聚焦到一个细胞视野,以确定每个波长的最佳曝光时间。在软件中,仅对明场通道启用自动对焦功能(这将使软件在每次采集前自动在每个载物台位置进行对焦)。提示:我们使用40倍干式相差物镜,可在无需浸油的情况下提供优异的分辨率。根据所需的光学分辨率,也可选用其他物镜。
- 切换至mCherry波长,使用50毫秒曝光时间拍摄一张图像,并调整曝光时间至能够清晰成像所需的最低水平。必须严格限制光照剂量,以确保细胞长期存活。通常情况下,最有效的方法是使用中性密度滤光片(以降低激发光通量)并延长相机曝光时间,而不是增强照明强度。对所有其他拟使用的波长重复此步骤。提示:为评估特定曝光条件下细胞的长期存活能力,可通过临时将时间点间隔从分钟调整为秒(例如10分钟改为10秒),预估细胞在整个延时成像过程中可耐受的图像采集次数。若细胞能耐受100–200次曝光(或相应次数),则当前曝光条件是可接受的;否则,应降低激发光强度、曝光时间或总采集图像数量,以模拟完整实验条件。
- 接下来,选择并标记适当数量的载物台位置,以实现对细胞群体的充分取样。Metamorph将记录这些位置,并在每次采集时自动返回。提示:我通常选择细胞数量充足但不过于密集的区域。此外,应确保选取足够多的位置,以提高观察到大量经历有丝分裂过程细胞的概率。
- 在完成所有延时设置、波长曝光时间及载物台位置信息的设定后,点击屏幕上的“Preview”按钮,以确认软件是否能正确控制设备运行。
- 确认无误后,点击屏幕上的“Acquire”按钮开始图像采集。随后可静待计算机与显微镜自动完成后续工作。提示:建议至少观察一轮完整的采集过程,以确保所有设备正常运行。
图像处理与分析
- 采集完成后,下一步是将图像数据转换为更易于处理的形式。在本实验方案中,我将首先演示如何使用 Metamorph 生成视频,然后演示如何使用 ImageJ 程序生成图像拼接图。这两种格式均适用于定量分析。
- 第一步是查看数据。为此,请在菜单栏中选择“Apps/Review Multidimensional Data”。选择文件所在位置,然后点击“View”。这将允许您单独查看每个载物台位置的图像序列。选择目标载物台位置,然后点击“Load Images”。您可逐帧浏览数据。
- 对于细胞经历有丝分裂的载物台位置(通过DNA和细胞形态确定),可使用 Metamorph 或其他程序(如美国国立卫生研究院 NIH 提供的免费软件 ImageJ)生成视频或图像拼接图。
- 在 Metamorph 中生成视频时,请在菜单栏中选择“Process/Save movie”。您可以选择要使用的帧、视频速度和文件类型,然后点击“Save Movie”。
- 为生成拼接图,我将图像序列保存为 .stk 文件,该格式可在 ImageJ 等其他程序中使用。
- 在 ImageJ 中打开文件,并逐帧浏览,直到找到正在进行有丝分裂的细胞。裁剪细胞周围的区域,然后选择“Image/Duplicate”。“提示:确保复制所有帧。”
- 要生成拼接图,请在菜单栏中选择“Image/Stacks/Make Montage”。在此可指定要包含的帧、拼接图的尺寸与布局,以及是否在帧之间添加边框。设置完成后点击“Okay”。将拼接图保存为 .tif 文件,并可在 ImageJ 或 Adobe Photoshop 中进行进一步处理。“提示:将 Metamorph 生成的 16 位格式拼接图转换为 8 位格式,以便于图像处理。”
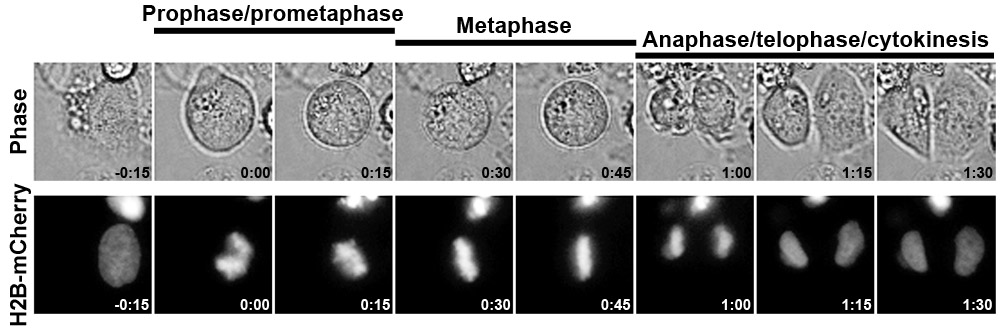
- 为计算细胞在有丝分裂各阶段的时间,需确定 t=0 时刻(DNA 开始凝集或细胞变圆的第一个可见迹象),然后计算至染色体排列在赤道板时的帧数(前期/前中期持续时间)、至染色体开始分离的帧数(中期持续时间),以及至细胞开始变扁平的帧数(后期/末期/胞质分裂期持续时间)。各阶段的计算时间取决于每帧之间的时间间隔。
代表性结果

图1展示了使用表达组蛋白H2B-mCherry的HeLa细胞系进行典型对照siRNA转染实验的结果。该方法已成功用于量化有丝分裂的时间进程,揭示了核孔蛋白Nup153在晚期有丝分裂时序调控中的意外作用1。请点击此处查看图1的放大版本。
讨论
随着成像技术和荧光蛋白技术的最新进展,活细胞成像已成为细胞分析中的常规手段2。多种GFP(及其他颜色变体3)标记的蛋白质已广泛可得,或相对容易构建,可用于追踪细胞分裂过程中的多个标志性事件,包括DNA/染色体动态变化4,5、中心体复制6、细胞周期蛋白B动态变化7、核膜破裂与重建8,9、有丝分裂纺锤体形成10以及胞质分裂的各个阶段11。当荧光标签的激发/发射光谱相容时,可单独或联合使用标记蛋白,从而评估特定事件之间的协调关系。若需要更高的空间和/或时间分辨率,可采用共聚焦显微镜技术,无论是激光扫描、转盘式还是共振扫描共聚焦显微镜,且具备日益提升分辨率的先进显微成像技术选项列表仍在不断扩展。哺乳动物细胞有丝分裂的活体成像也已被应用于高通量RNA干扰和小分子筛选12-14。因此,尽管使用该技术的初步实验可能相对简单,但在此策略基础上进一步拓展的可能性极为广泛。
致谢
本工作由美国癌症协会(PF-07-103-01-CSM)、美国国立卫生研究院(R01 GM61275 和 P30 CA042014)、白血病与淋巴瘤学会以及亨茨曼癌症基金会资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Lipofectamine RNAiMAX | Invitrogen | 13778-075 | |
| Lab Tek II 培养皿盖玻片(4 孔) | Thermo Fisher Scientific, Inc. | 12-565-337 | 也可提供其他规格的培养腔 |
| 纤连蛋白 | Sigma-Aldrich | F1141 | |
| 载物台细胞培养箱 | OKO Lab | 可使用任何合适的培养腔 | |
| 自动倒置荧光显微镜 | Olympus Corporation | 可使用任何合适的显微镜 | |
| 软件包 | Metamorph | 可使用任何合适的软件 |
参考文献
- Mackay, D. R., Elgort, S. W., Ullman, K. S. The nucleoporin Nup153 has separable roles in both early mitotic progression and the resolution of mitosis. Mol Biol Cell. 20, 1652-1660 (2009).
- Khodjakov, A., Rieder, C. L. Imaging the division process in living tissue culture cells. Methods. 38, 2-16 (2006).
- Shaner, N. C., Steinbach, P. A., Tsien, R. Y. A guide to choosing fluorescent proteins. Nat Methods. 2, 905-909 (2005).
- Meraldi, P., Draviam, V. M., Sorger, P. K. Timing and checkpoints in the regulation of mitotic progression. Dev Cell. 7, 45-60 (2004).
- Mora-Bermudez, F., Ellenberg, J. Measuring structural dynamics of chromosomes in living cells by fluorescence microscopy. Methods. 41, 158-167 (2007).
- Prosser, S. L., Fry, A. M. Fluorescence imaging of the centrosome cycle in mammalian cells. Methods Mol Biol. 545, 165-183 (2009).
- Malureanu, L. A. BubR1 N terminus acts as a soluble inhibitor of cyclin B degradation by APC/C(Cdc20) in interphase. Dev Cell. 16, 118-131 (2009).
- Anderson, D. J., Hetzer, M. W. Reshaping of the endoplasmic reticulum limits the rate for nuclear envelope formation. J Cell Biol. 182, 911-924 (2008).
- Beaudouin, J., Gerlich, D., Daigle, N., Eils, R., Ellenberg, J. Nuclear envelope breakdown proceeds by microtubule-induced tearing of the lamina. Cell. 108, 83-96 (2002).
- Marcus, A. I. Visualization of spindle behavior using confocal microscopy. Methods Mol Med. 137, 125-137 (2007).
- Steigemann, P. Aurora B-mediated abscission checkpoint protects against tetraploidization. Cell. 136, 473-484 (2009).
- Draviam, V. M. A functional genomic screen identifies a role for TAO1 kinase in spindle-checkpoint signalling. Nat Cell Biol. 9, 556-564 (2007).
- Neumann, B. High-throughput RNAi screening by time-lapse imaging of live human cells. Nat Methods. 3, 385-390 (2006).
- Stegmeier, F. Anaphase initiation is regulated by antagonistic ubiquitination and deubiquitination activities. Nature. 446, 876-881 (2007).
重印与许可
