在本视频中,我们演示了小鼠囊胚的分离以及从囊胚中建立滋养层干细胞的方法。同时介绍了维持干细胞特性的培养条件,以及在体外诱导其分化的方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
滋养层的特化是哺乳动物发育过程中最早的分化事件之一。源自滋养外胚层的滋养层细胞系介导胚胎着床,并形成胎盘的胎儿部分。因此,该细胞系的发育对胚胎存活至关重要。从小鼠囊胚中分离滋养层干细胞(TS细胞)最早由Tanaka报道等1998年。滋养层干细胞(TS细胞)在适当刺激后能够维持滋养层特有的特性,并表达特定发育阶段和细胞类型的标志物,这为研究滋养层谱系发育及模拟早期胎盘形成过程提供了一个有价值的模型系统。此外,滋养层细胞是少数经历自然基因组扩增的体细胞类型之一。尽管调控滋养层多倍体化的分子通路已开始被揭示,但滋养层基因组扩增的生理功能及其优势仍尚不明确。在体外培养中,二倍体干细胞向多倍体滋养层细胞的转变使这一ex vivo系统成为阐明健康与疾病中基因组复制及其不稳定性调控机制的优秀工具。本文所述方案基于此前发表的文献报道,并参考了Chiu等人发表的改进方法等2008年
方案
在本实验方案中,我们描述了小鼠囊胚的制备以及滋养层干细胞系的建立。在收集囊胚之前的小鼠操作,包括自然交配的设置和超数排卵的诱导,基本遵循Nagy et al. 2003(第146–150页)所述的标准方案。
滋养层干细胞的分离与培养
- 设置目标小鼠之间的交配繁殖组合。
- 制备小鼠胚胎成纤维细胞(MEFs)作为饲养层细胞。在囊胚收集前两天,将 MEFs(2 × 10⁶ 个细胞)接种于 100 mm 培养皿中。次日,用含有丝裂霉素 C(20 mg/ml)的 10 ml TS 培养基在 37°C、5% CO2 条件下孵育 2 小时处理细胞。随后用 PBS 洗涤细胞两次。将经丝裂霉素 C 处理的细胞接种至 12 孔板(每孔 1 × 10⁵ 个细胞)。
- 在囊胚收集当天(胚胎发育第 3.5 天,记为第一天),将 MEF 培养基更换为含 1× FGF4/肝素的 TS 培养基(每孔 0.5 ml)。
- 准备子宫组织的收集:处死小鼠并定位子宫(图 1A)。
- 用镊子夹住子宫颈(位于膀胱后方)以摘除子宫,并在子宫与子宫颈连接处剪断(图 1B)。拉出子宫,去除膜和脂肪组织,并在子宫与输卵管连接处下方剪断(图 1C)。将子宫(图 1D)置于 60 mm 培养皿中,加入少量(0.2 ml)TS 培养基。
- 使用带 26 号针头的 1 ml 注射器,以 1 ml TS 培养基冲洗每侧子宫角。将针头插入子宫基部,缓慢将内容物冲洗至另一含有 1 ml TS 培养基的新 60 mm 培养皿中。冲洗过程中子宫应充分膨胀并伸展。
- 使用口控移液器小心收集并转移囊胚,将其置于含有 TS 培养基的洁净 12 孔板中。通过在 12 孔板中连续转移的方式用 TS 培养基清洗囊胚三次。每个孔中放置一个囊胚(图 2A),置于含有经丝裂霉素 C 处理的 MEF 饲养层的 12 孔板中,在 37°C、5% CO2 条件下培养。
- 囊胚将在 24 至 36 小时内从透明带孵出并贴附于孔底。第 3 天可明显观察到微小的外延生长。每次换液时加入 500 μl 新鲜 TS 培养基并补充 1× FGF4/肝素。
- 第 4 或第 5 天,根据外延生长的大小决定是否进行消化分散。TS 细胞消化的最佳尺寸如图 3B 所示。用 0.5 ml PBS 洗涤培养物一次。加入 100 μl 0.25% 胰蛋白酶/EDTA,在 37°C、5% CO2 条件下孵育 5 分钟。使用 P100 移液器剧烈吹打,将外延生长物打碎成小细胞团。加入 TS-70CM-1.5F4H(30% TS 培养基,70% MEF-CM 加 1.5× FGF4/肝素)终止消化反应。消化后 8 小时更换培养基,并继续每 2 天换液一次。
- 在第 6 至第 10 天(时间差异较大),可观察到 TS 细胞克隆。其形态呈扁平、上皮样单层结构,克隆边界清晰(图 2C)。继续每 2 天换液一次。
- 当 TS 细胞达到约 50% 汇合度(通常在第 15 至第 20 天),用 PBS 洗涤一次,加入 100 μl 0.25% 胰蛋白酶/EDTA。在消化过程中反复吹打,以获得接近单细胞的悬液。加入 TS-70CM-1.5F4H 终止消化反应,并将细胞转移至新的 6 孔板或 60 mm 培养皿中,其中含有经丝裂霉素 C 处理的 MEF 饲养层(每 6 孔板 2.5 × 10⁵ 个细胞,或每 60 mm 培养皿 5 × 10⁵ 个细胞)。
- 传代后 8 小时更换培养基,并继续每 2 天换液一次。
- 在 MEF 饲养层上再传代一至两次(每次间隔 3–5 天)后,TS 细胞可脱离饲养层进行培养。由于胰酶消化后 MEFs 的贴壁速度显著快于 TS 细胞,可利用这一贴壁速率差异将 TS 细胞与 MEF 饲养层分离。传代后,将细胞在 37°C、5% CO2 条件下孵育 30 分钟,大多数 MEFs 将贴壁,而 TS 细胞仍悬浮于上清中。收集上清转移至新培养板。重复此过程数次,可获得纯化的 TS 细胞群体。
- 将 TS 细胞维持在 TS-70CM-1.5F4H 培养基中,每 4 天传代一次(按 1:10 至 1:20 比例传代),或在培养物达到 70% 汇合度时进行传代。高密度传代(高于 1:5 的比例)或在过度汇合状态下继续培养可能导致细胞分化。
- 可通过免疫染色检测细胞标志物 Cdx2 来确认 TS 细胞的身份(图 3)。
冻存滋养层干细胞
- 配制2倍浓缩的冻存液(50% 胎牛血清、30% TS培养基和20% DMSO)。
- 用胰酶消化收集TS细胞,随后在450×g离心6分钟。用等体积的2倍浓缩冻存液重悬细胞。
- 使用异丙醇冻存盒于-70°C缓慢降温冻存细胞,并在24–48小时后转移至液氮中保存。
- 通常将一个60 mm培养皿(70%汇合度)的细胞分装至2支冻存管中。
解冻滋养层干细胞
- 将冻存管在37°C快速解冻,通过离心(450g,6分钟)收集细胞于10 ml TS培养基中,并重悬于30% TS培养基、70CM-1.5F4H中。
- 将一管细胞接种至60 mm培养皿中。
滋养层干细胞向滋养层巨细胞的分化
通过去除MEF-CM、FGF4和肝素可诱导TS细胞向滋养层巨细胞(TGCs)分化。诱导后四天可检测到TGC表型(大细胞核)(Tanaka et al., 1998 和 Chiu 等 2008)。对p450scc进行免疫染色可检测到该滋养层巨细胞(TGC)标志物在分化培养物中的表达(图4A)。对碘化丙啶(PI)染色细胞进行流式细胞术分析进一步显示,存在DNA含量更高的分化细胞(图4B)。这些结果表明,滋养层干细胞(TS细胞)通过内复制过程转变为多倍体TGCs。
代表性结果
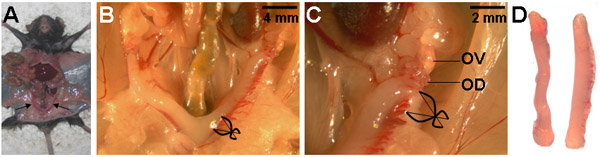
图1. 小鼠子宫的解剖。(A)箭头所示为子宫的位置。(B)按图示在子宫与宫颈连接处横向剪开。(C)在卵巢(OV)下方、输卵管(OD)下方稍低位置剪开子宫。(D)子宫的图像。
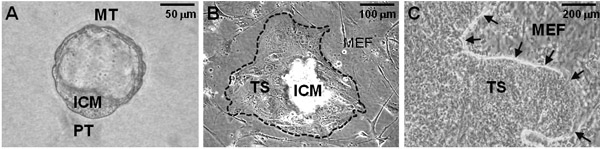
图2. 代表性图像展示小鼠囊胚、囊胚孵出及滋养层细胞集落。(A)显示在E3.5时获取的小鼠囊胚。ICM,内细胞团;MT,壁滋养外胚层;PT,极滋养外胚层。(B)显示在MEF饲养层上的滋养层细胞孵出物。TS,滋养层干细胞。(C)滋养层干细胞集落在MEF饲养层上具有清晰的边界。箭头指示细胞边界。
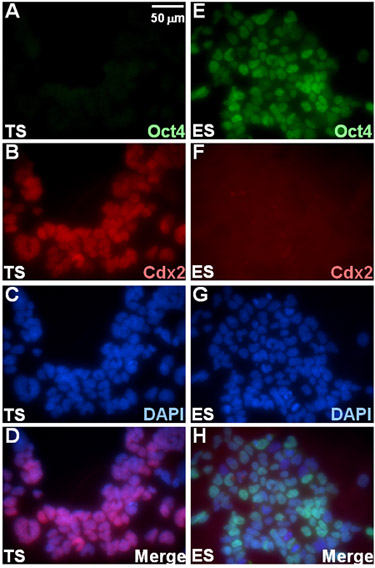
图3. 通过免疫染色分析鉴定TS细胞。TS细胞(A-D)和ES细胞(对照,E-H)进行标志物鉴定。细胞经抗体免疫染色以检测Oct4(A,E)或Cdx2(B,F),并用DAPI复染(C,G),合并图像如(D,H)所示。比例尺,50 μm。
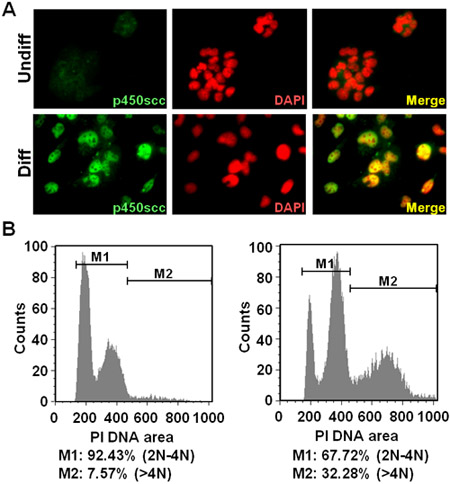
图4. TS细胞体外分化。(A)培养中的未分化(未分化)或已分化(分化)细胞经检测TGC标志物p450scc(绿色)的表达情况,并用DAPI复染(红色)。(B)经PI染色的已分化细胞进行流式细胞术分析,测定其DNA含量(M1:2至4个拷贝;M2:超过4个拷贝)。M2群体代表多倍体滋养层细胞。
访问受限。请登录或开始试用以查看此内容。
讨论
在本视频中,我们演示了从子宫中收集E3.5囊胚以及建立滋养层干细胞(TS细胞)系的实验操作流程。我们还介绍了维持TS细胞干性以及诱导其分化为成熟细胞的培养条件。获得纯化TS细胞系的两个关键步骤是:囊胚贴壁后组织块解离的时机(步骤9)以及首次传代处理(步骤11)。已有报道指出,在步骤9中若囊胚贴壁生长过度,或在步骤11中TS细胞集落过度生长(>50%融合度),培养中可能出现原始内胚层来源的细胞(Kunath等,2005)。尽管原始内胚层来源的细胞可通过其独特的形态特征(如细胞呈圆形、细胞间接触减少)与TS细胞相区分,但由于这些细胞在TS培养基中生长良好,且似乎无需MEF饲养层或FGF4因子支持,因此很难从培养体系中彻底清除。
即使在含有MEF-CM和FGF4的条件下,TS细胞培养中仍可能持续产生已分化的TGCs。若需要获得纯的TS细胞群体,可根据其贴壁速度的差异来分离这些已分化的细胞。与MEFs类似,TGCs贴附于培养皿的速度快于TS细胞,因此可通过第13步所述方法获得纯化的TS细胞群体。另外,由于TGCs具有高度贴壁性且对胰蛋白酶消化更具抗性,也可通过短时间胰蛋白酶消化(3...
访问受限。请登录或开始试用以查看此内容。
致谢
作者感谢Janet Rossant提供的原始实验方案。本研究由美国国立卫生研究院基金CA106308资助WH。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 试剂 | |||
| TS 培养基: RPMI-1640,20% 胎牛血清,1 mM 丙酮酸钠,100 mM β-巯基乙醇–乙醇和100 mg/ml青霉素-链霉素 | |||
| 丝裂霉素C: 将 2 mg 丝裂霉素 C(Sigma M-0503)溶解于 2 ml PBS 中,将此 2 ml 混合液加入 200 ml TS 培养基中(终浓度 10 ng/ml)。分装为 20 份(每份 10 ml),于 -20 ℃ 保存°C 保存至使用。每 100 mm 培养皿加入一份等分试样。 | |||
| 小鼠胚胎成纤维细胞条件培养基(MEF-CM): 将MEFs接种于100 mm培养皿中(1 × 10⁶细胞/皿)6/孔)。次日,每皿加入10 ml TS培养基,继续培养48小时。收集培养液,经0.45 μm滤器过滤后,于-20℃保存。°C,分装成35 ml每份。根据需要解冻每份,解冻后可在4°C. 胚胎成纤维细胞(MEF)在汇合前还可用于制备两批条件培养基。 | |||
| PBS/BSA: 将牛血清白蛋白(BSA,第五组分,Sigma A3311,0.1% (w/v))溶于 PBS(10 ml)中,经 0.45 mm 注射器滤器过滤,分装为每管 1 ml 至 1.5 ml 离心管中。于 -70 ℃ 保存°根据需要解冻一管以制备 FGF4。 | |||
| FGF4(1000倍): 将冻干的 FGF4(Sigma F8424,25 mg)用 1 ml PBS/BSA 溶液重悬。充分混匀后,分装为 10 份(每份 100 μl)至 1.5 ml 离心管中,于 -70 °C 保存°C. 根据需要解冻每管,并将剩余的保存在 4°C,切勿重新冷冻。用TS培养基稀释1000倍,得到1× FGF4(25 ng/ml)。 | |||
| 肝素(1000 倍): 将肝素(Sigma H3149,10,000 单位)用 PBS 溶解,配制成终浓度为 1 mg/ml(1000 倍)的溶液。分装成每管 100 μl 至 1.5 ml 离心管中,于 -70 °C 保存°C. 根据需要解冻分装样品,其余部分储存于 4°C,切勿再次冷冻。用 TS 培养基稀释 1000 倍,得到 1x 肝素(1 ng/ml)。 |
参考文献
- Chiu, S. Y., Asai, N., Costantini, F. &, Hsu, W. SUMO-specific protease 2 is essential for modulating p53-Mdm2 in development of trophoblast stem cell niches and lineages. PLoS Biol. 6, E310-E310 (2008).
- Kunath, T., Arnaud, D., Uy, D. G., Okamoto, I., Chureau, C., Yamanaka, Y., Heard, E., Gardner, R. L., Avner, P., Rossant, J. Imprinted X-inactivation in extra-embryonic endoderm cell lines from mouse blastocysts. Development. 132, 1649-1661 (2005).
- Nagy, A., Gertsenstein, M., Vintersten, K., Behringer, R. Manipulating the Mouse Embryo: The Laboratory Manual. , Cold Spring Harbor Laboratory Press. Cold Spring Harbor, NY. (2003).
- Tanaka, S., Kunath, T., Hadjantonakis, A. K., Nagy, A., Rossant, J. Promotion of trophoblast stem cell proliferation by FGF4. Science. 282, 2072-2075 (1998).
访问受限。请登录或开始试用以查看此内容。
重印与许可
