本文介绍了一种研究新生齿状回颗粒细胞在成年动物体内整合的方法。该技术利用改造后的逆转录病毒标记新生神经元,随后通过体内电生理记录来确定其功能性整合情况。
本文内容
摘要
摘要
在成年哺乳动物大脑中,神经发生终生持续存在于侧脑室的室下区(SVZ)以及海马齿状回的颗粒下区(SGZ)。先前的研究表明,成年海马神经发生与多种脑部疾病相关,包括癫痫、精神分裂症、抑郁症和焦虑症(1)。解析正常与异常的成年新生神经元整合过程,可能有助于阐明这些疾病的病因,并为开发新的治疗方法提供依据。
SGZ 成年神经发生过程与胚胎期及出生后的神经元发育相似,包括命运决定、迁移、突触整合和成熟等阶段。然而,完全整合需要经历一个漫长的6周时期。新生 SGZ 齿状回颗粒细胞(DGCs)最初的突触输入为GABA能性,随后在第14天出现谷氨酸能输入(2)。目前尚不清楚调控齿状回新生神经元环路形成的特定因素。
本实验室采用基于莫洛尼鼠白血病病毒的复制缺陷型逆转录病毒载体,将荧光蛋白和假设的调控基因递送至这些增殖细胞。该病毒技术可对细胞出生时间、谱系、形态以及突触形成进行高特异性和高分辨率的分析。
一个典型的实验通常会使用两种或三种含有独特标记、转基因和启动子元件的病毒,以对特定的发育过程进行单细胞水平的分析 体内以下方案描述了一种利用单一绿色(GFP)或红色(dTomato)荧光蛋白逆转录病毒结合膜片钳电生理技术分析新生神经元功能整合的方法。
方案
1. 病毒注射
通过将逆转录病毒载体和VSVG共转染到HEK293T细胞中,随后对病毒上清液进行超速离心,可制备出高滴度的重组逆转录病毒(1×10⁹ 单位/ml)。有关来源和制备方法,请参见JoVE的优秀演示(3)。
注意:使用4至6周龄的雌性C57Bl/6小鼠(Charles River),在标准条件下饲养。所有操作均遵循美国国家研究委员会《实验动物护理与使用指南》,并经石溪大学动物护理与使用委员会(IACUC)批准的方案进行。
- 将每只动物 2 μl 冻存的逆转录病毒置于冰上解冻。
- 使用每克体重 100 μg 氯胺酮和 10 μg 哌替啶进行麻醉,并将动物固定于立体定位仪(Steolting)上。去除头部毛发,并用 70% 乙醇擦拭皮肤。
- 暴露颅骨,使用牙科钻(0.6 mm 钻头)在以下坐标位置钻四个浅孔:
- 前后方向 = 从前囟后 2 mm;左右方向 = ±1.6 mm;腹背方向 = 2.5 mm;前后方向 = 从前囟后 3 mm;左右方向 = ±2.6 mm;腹背方向 = 3.2 mm。
- 前后方向 = 从前囟后 2 mm;左右方向 = ±1.6 mm;腹背方向 = 2.5 mm;前后方向 = 从前囟后 3 mm;左右方向 = ±2.6 mm;腹背方向 = 3.2 mm。
- 安装 1 μl Hamilton 平头注射器,以 0.25 μl/min 的速度向每个位点注射 0.5 μl 逆转录病毒至齿状回。(腹背方向深度参见上述坐标。)每次注射后停留 2 分钟,再缓慢撤出注射器,以防止液体回流。两次注射之间,用无菌 PBS 和涂抹棒短暂清洗注射器尖端外表面,以去除残留血液。
- 使用 无菌 外科缝合材料(P-1 型,6-0 规格)缝合伤口,并将动物放回标准饲养环境,直至达到预定的注射后时间点。
2. 切片制备
为了从成年小鼠获得高质量的急性脑片,我们采用改良的切割液进行脑片制备(见下文)。
- 将切割液预冷至 0-4 °C 冰浴中,并用 95% O2-5% CO2 气体饱和至少 30 分钟。
- 麻醉动物后,经心脏灌注冰冻且充氧的切割液。
- 迅速将脑组织取出,置于含有经冷切割液润湿的滤纸的培养皿中。切除小脑,并在(可见的)注射坐标前至少 1 mm 处切出一个用于固定的平面。将脑组织粘附于振动切片机的切片台上,并将其置入充满冷且充氧切割液的切片室中。
- 制备冠状面或水平面切片(厚度 300-350 μm),并用大口径移液管转移至含有室温人工脑脊液(ACSF)的孵育 chamber 中,该液体以 95% O2/5% CO2 持续充氧。
- 在 32°C 下持续充氧孵育切片 30-60 分钟。记录期间将孵育 chamber 恢复至室温。
3. 电生理学实验
- 将脑片转移至记录室中,持续用32°C - 34°C的含氧饱和人工脑脊液(ACSF)灌流。
- 使用低倍物镜(10X)在显微镜下将双极钨刺激电极置于齿状回的分子层。
- 通过GFP或dTomato的表达,在颗粒下层/颗粒细胞层中识别新生的齿状回颗粒细胞(DGCs)。在高倍镜(40X)下对新生神经元进行全细胞膜片钳记录。
- 在电流钳模式下,通过注入一系列电流来获取记录细胞的动作电位特性。
- 通过由记录软件控制的刺激隔离器,经刺激电极施加电刺激,并记录新生DGCs中诱发的突触后电流。
4. 数据分析
分析成年新生神经元在不同发育阶段诱发的突触后反应的幅度。
5. 典型结果
采用上述方案,新生齿状回神经元中的GFP表达通常与图1相似。需要注意的是,新生神经元易于观察,其树突和轴突均能被清晰标记。细小的齿状颗粒细胞(DGC)轴突和小树突棘的表达水平取决于病毒的质量与滴度、所使用的启动子以及体内表达时间的长短。在我们的实验中,注射后数天内通常即可观察到新生细胞及其亚细胞器,树突棘的表达可从发育的最早阶段开始追踪。对不同时间点的新生神经元进行全细胞记录,可研究其独特的细胞特性,例如动作电位(图2a),以及在成熟过程中突触整合到现有神经环路的过程(图2b)。
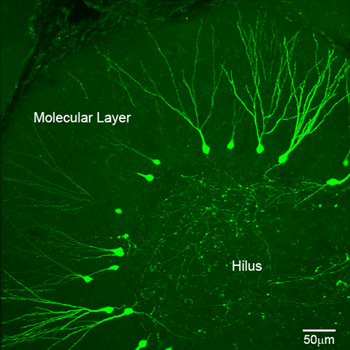
图1 成年小鼠水平齿状回切片中新出生神经元的双光子共聚焦图像。绿色细胞为注射后21天(dpi)表达GFP的新生颗粒细胞(DGCs),由pUX-GFP逆转录病毒感染标记。
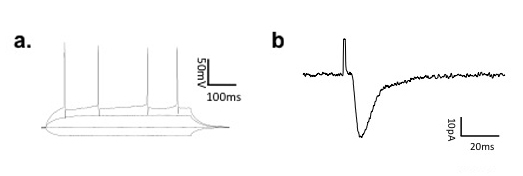
图 2 a) 21 天感染后(dpi)新生颗粒细胞(DGC)的动作电位发放特性。b) 在 21 dpi 记录的新生 DGC 上诱发的典型兴奋性突触后电流(EPSCs)。
讨论
成年哺乳动物大脑海马体中的持续神经发生为研究成熟大脑中神经元的发育与整合提供了一个独特的实验模型系统。本文介绍的实验方案结合了逆转录病毒标记和电生理学方法,用于研究新生齿状回颗粒神经元在成年小鼠大脑中的整合过程。
为确保实验成功,我们建议在实验关键步骤中注意以下事项:
为避免不必要的感染和炎症,所有器械在手术前应进行灭菌处理(通过高压灭菌、其他类型的灭菌设备或70%乙醇)。注射前应用无菌PBS清洗注射器针头的尖端。
进行病毒注射时,动物必须牢固地固定在立体定位仪上,并在注射过程中尽量减少不必要的移动。确保头部固定良好且稳固,并在计算注射坐标前调整小鼠鼻部位置,使前囟和后囟处于同一水平。应迅速将病毒吸入注射器,以尽量减少其暴露于室温环境——逆转录病毒对温度尤其敏感。按照推荐速度缓慢注射病毒,以尽量减少压力造成的损伤。使用推荐的平头注射器(而非常见的斜面针头) 可确保齿状回感染区域分布均匀。
在制备脑片之前,切割液和孵育用人工脑脊液(ACSF)必须用95% O2-5% CO2 气体饱和至少30分钟,以确保溶液充分氧合。动物应迅速灌注,并将组织保存在冰冷且氧气饱和的溶液中,以获得最佳的脑片质量。
记录时,逐渐增加刺激强度,直至出现突触后反应。根据需要,在齿状回分子层内调整刺激电极的位置。
总之,推荐的方法为研究成年新生神经元在早期整合到活跃的成熟神经环路过程中所具有的独特特性及潜在功能作用提供了一种途径。
披露
未声明任何利益冲突。
致谢
本工作由NINDS和美国心脏协会资助予S.Ge。该方法最初由作者在约翰斯·霍普金斯大学洪军宋博士的实验室中建立并发展。我们感谢洪军宋博士提供的指导与支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
|
参考文献
- Zhao, C., Deng, W., Gage, F. H. Mechanisms and functional implications of adult neurogenesis. Cell. 132, 645-660 (2008).
- Ge, S., Goh, E. L., Sailor, K. A., Kitabatake, Y., Ming, G. L., Song, H. GABA regulates synaptic integration of newly generated neurons in the adult brain. Nature. 439, 589-593 (2006).
- Gavrilescu, L. C., Van Etten, R. A. Production of replication-defective retrovirus by transient transfection of 293T cells. J Vis Exp. , (2007).
重印与许可
