研究神经元雪崩(即具有时空尺度不变性的活动爆发)的一种可靠方法,可反映大脑皮层中临界状态动力学特征。在培养的皮层浅层发育过程中,雪崩会自发出现,从而可在精确控制的条件下,利用平面集成多电极阵列(MEA)对神经活动进行长期测量。
本文内容
摘要
摘要
大脑皮层即使在没有任何特定输入或运动输出的情况下也会自发活动。在发育过程中,这种活动对于皮层细胞类型的迁移和分化以及神经元连接的形成具有重要作用1。在成年动物中,持续的自发活动反映了动物过去和当前的状态,感觉刺激会无缝整合到这一状态中,以计算未来的行动。因此,要理解皮层功能,必须首先清楚地认识持续存在的即自发活动的组织方式。
多种记录技术表明,大脑皮层的持续活动由大量神经元组成,这些神经元的个体活动短暂叠加,形成可在局部场电位(LFP)中通过细胞外微电极检测到的较大事件,也可在脑电图(EEG)、脑磁图(MEG)以及功能磁共振成像(fMRI)的BOLD信号中被观测到。目前,LFP是在介观尺度(数千个神经元)上以高时间和空间分辨率研究神经元群体活动的首选方法。在细胞外微电极处,空间上邻近的神经元局部同步活动会导致LFP出现快速偏转,幅度可达数百微伏。当使用微电极阵列时,可方便地在时间和空间上监测这些偏转的组织模式。
神经元雪崩描述了大脑中持续神经元活动在时空组织上的尺度不变性2,3。它们特异性地分布于皮层的浅层,这一点已得到证实。 体外4,5, 体内 在麻醉大鼠中 6,以及清醒猴7重要的是,理论研究和实证研究2,8-10 表明神经元雪崩现象指示了大脑皮层处于一种精妙平衡的临界状态动力学,该状态可优化信息传递与信息处理。
为了研究神经元雪崩活动的发展、维持和调控机制,体外(in vitro)实验体系具有显著优势,因其可在精确控制的条件下实现对雪崩活动的稳定记录。本实验方案描述了如何利用生长在平面集成微电极阵列(MEA;另见11-14)上的皮层组织切片培养(即切片培养物)中表浅层的发育特性,在体外研究神经元雪崩活动。
方案
1. 用于长期记录的带MEA的无菌、可密封玻璃腔室
- 使用带聚四氟乙烯(Teflon)塑料盖的螺纹玻璃圆筒(Ace Glass),该部件用于确保培养室的牢固密封,需在螺纹底部约 2 mm 处切割(Aceglass)(图 1A、B)。通过用水冲洗(3 次)并用 200 证明乙醇煮沸 5 分钟来清洁玻璃环,然后晾干。
- 分装用于将玻璃环固定在 MEA 表面的硅溶液。将 Sylgard 184 硅胶弹性体试剂盒的 A 和 B 组分各 15 ml 充分混合,静置 15 分钟以去除气泡,并以 1 ml 分装量储存于 -20 °C。
- 将玻璃环粘接到 MEA 上(8×8 网格,内置接地电极,电极直径为 30 μm,大鼠/小鼠用的电极间距为 200/100 μm)(图 1A、B)。用带细针头的注射器吸取 1 ml 硅胶(23 °C),将硅胶涂于玻璃环未抛光的切割面,将玻璃环居中放置在 MEA 上,并在环外周再涂一层硅胶以增强密封性,然后在加热板上约 60 °C 条件下固化 1–2 小时。
- 在超净工作台中对 MEA 培养室及盖子进行灭菌:先用去离子水冲洗 3 次,再用 70% 乙醇冲洗 3 次(最后一次冲洗后让乙醇在内部停留 10 分钟),随后将培养室和盖子的内表面暴露于紫外光下照射 10 分钟。然后将 MEA 培养室进行高压蒸汽灭菌(120 °C,湿热,45 分钟),并晾干。
- 用聚-D-赖氨酸包被 MEA 培养室内的表面。对于新的 MEA(通常较具疏水性),通过反复吸取电极网格上的溶液液滴进行包被;对于已使用过的 MEA,则将溶液覆盖整个培养室底部,吸除多余液体,并在超净工作台内无菌条件下使其自然蒸发。将盖子装上以密封 MEA 培养室,用于储存和后续使用。
2. 器官型培养物制备与培养所需试剂
- 将无菌琼脂溶解于0.9% NaCl中,倒入无菌培养皿(Falcon,100 × 15;厚度约5 mm),冷却后用Parafilm封口膜无菌包裹保存。使用时从固体琼脂中切取20 × 10 × 5 mm的琼脂块。
- 将超级胶水(例如Devcon Super Glue II)在开启前用70%乙醇擦拭包装表面,然后置于超净工作台内存放,以维持无菌状态。
- 通过将40 g葡萄糖加入40 ml去离子培养用水(Sigma)中配制50% D-葡萄糖溶液(SIGMA ultra, G7528)。分装为2 ml等份,于-20°C保存。
- 将4 ml 50% D-葡萄糖溶液加入500 ml Gey's平衡盐溶液中,使用前在冰箱中冷冻至冰沙状(液体与冰晶混合物)。
- 用5 ml去离子培养用水溶解鸡血浆(轻柔振荡,避免产生气泡),静置5–10分钟,轻轻旋转混匀,将澄清液体倾入无菌培养皿中。用0.22 μm孔径滤膜(适用于蛋白)对血浆溶液进行无菌过滤,分装为350 μl每管至冻存管(NuncTM),于-20°C保存。
- 按相同方法重悬牛血浆来源的凝血酶,经0.22 μm孔径滤膜无菌过滤后,分装为40 μl每管至冻存管(NuncTM),于-20°C保存。工作液配制:将40 μl凝血酶溶液加入375 μl含D-葡萄糖的Gey's平衡盐溶液中稀释。
- 通过混合100 ml马血清、200 ml Eagle基础培养基和100 ml Hank's缓冲盐溶液,并向其中加入4 ml 50%葡萄糖和2 ml 200 mM L-谷氨酰胺,配制400 ml培养基。可分装至100 ml PYREX瓶中,于4°C保存4–8周。
- 通过混合0.3 mM尿苷、0.3 mM阿糖胞苷(cytosine-β-D-arabinofuranoside)和0.3 mM 5-氟-2'-脱氧尿苷配制有丝分裂抑制剂,经无菌过滤后分装为200 μl每管,于-20°C保存,可稳定保存6–12个月。
3. 大脑皮层和腹侧被盖区(VTA)组织解剖(时间:< 1小时)
- 该操作可从大鼠或小鼠获得约 12 套共培养用的皮层和腹侧被盖区(VTA)组织切片,需在超净工作台内无菌条件下进行。组织采集总时间应少于 1 小时。
- 选取健康、营养状况良好的新生幼鼠(每窝约 10 只;腹部可见“乳斑”),日龄为出生后 1–2 天(PND)。轻轻握住幼鼠鼻部,使其自然悬垂,用锋利剪刀在颈部基部迅速断头。
- 为取出脑组织,先用剪刀做两条侧向切口以去除头皮,再用精细眼科剪在颅骨上进行一次矢状中线切开和一次在皮层与小脑交界处的冠状切开,翻起四片颅骨瓣。用 sharpened 刮匙在嗅球处做额状切割,并将刮匙向后下方插入脑组织下方,轻柔地将脑组织从颅腔中抬起,使其滑入无菌、预冷的 Gey’s 溶液中以快速降温并临时保存。重复步骤 3.2 至 3.3,共处理另外 2 个脑组织(总时间:<20 分钟)。
- 为获取 VTA 组织,使用小刮匙将脑组织转移至无菌干燥的培养皿中。通过将每个脑组织轻轻侧向滑动约 1 cm 去除多余液体。使用刀片在小脑水平处做冠状垂直切口,去除脑干。
- 将琼脂块粘附于切片机载物盘上,以在切片过程中实现脑组织的机械稳定。在载物盘上琼脂块前方几毫米处涂上一条微量超级胶水(注意避免胶水接触琼脂)。
- 使用小刮匙将每个脑组织转移并固定在载物盘上,前端(额极)朝下。确保额极牢固粘附于载物盘,腹侧面紧贴琼脂,且无胶水残留,以保证切片过程中良好的机械稳定性,并便于切片后顺利剥离。
- 小心将带有脑组织的载物盘浸入充满无菌预冷 Gey’s 溶液的振动切片机托盘中(例如 Leica VT1000),并固定稳妥。使用经仔细清洁的刀片(用 90% EtOH 处理),在最高振动频率和相对较低前进速度下,以 400–500 μm 厚度切取中脑冠状切片。使用带吸球的倒置巴斯德移液管,将含有 VTA 的切片转移并收集至盛有无菌预冷 Gey’s 溶液的 35 × 10 mm 培养皿中(图 1C;另见参考文献15中 E22 胚胎期冠状切片图谱第 18–20 片)。
- 为获取皮层切片,重复步骤 3.2–3.6,但在皮层与小脑之间做垂直切口,并将前脑以额极朝上的方向固定。从纹状体水平开始,收集约 3 张冠状切片(厚度 350 μm),用于后续皮层分离。
- 在体视显微镜下,使用由断裂刀片制成的微型刀具,分离出包含 VTA 的腹侧被盖区及额叶皮层的约 2 mm 宽冠状组织块(图 1C)。将分离的组织切片分别收集于盛有预冷 Gey’s 溶液的小型培养皿(例如腔室载玻片)中。
4. 在MEA上安装皮层和VTA组织切片(时间:<1小时)
- 将MEA置于室温下的体视显微镜下,使电极阵列处于焦点中心。居中放置一个 25 μl 将一滴血浆置于洁净、无尘且无菌的电极阵列基质上。使用小型刮铲,小心地将皮层和腹侧被盖区(VTA)切片移入血浆液滴中。
- 将MEA置于冷却板上,重新对焦视野,静置冷却约15秒,然后加入 25 μl 将凝血酶加入血浆液滴中。使用凝血酶移液枪头,以轻微的环形动作小心地将血浆/凝血酶混合物均匀铺展在MEA表面。切勿直接接触脆弱的电极阵列。将皮层组织轻柔地放置在阵列上,使其背侧边缘与阵列的第二排电极对齐。这样,发育中的表层结构最终将覆盖阵列的其余部分。VTA置于皮层切片腹侧边缘的邻近位置(图1D)。
- 盖上MEA腔室盖并轻轻合拢,以保持高湿度,将MEA/培养物组件在室温下的生物安全柜内静置约5分钟,使血浆/凝血酶充分凝固。同时,重复步骤4.1–4.3,再完成另外3组培养物的处理。
- 小心地加入 600 μl 使用1 cc注射器配25 × 5/8针头,将培养基以小滴形式加入培养室。
- 紧密关闭MEA腔室,并将MEA/培养组件放置于培养箱内的摇床储存托盘上(图1B)。为加快操作流程,可依次重叠组装3–4个MEA。组装12个MEA所需时间应为 <1小时
- 2 天后 体外 (体外培养天数),加入 10 μl 加入有丝分裂抑制剂。在4 DIV时更换60%的培养基,之后每4天更换一次。
5. 电生理记录与刺激生成
- 为了建立局部场电位(LFP)显著偏转与神经元产生动作电位倾向之间的关系,在培养约 ˜1 周后5,6,使用微电极阵列(MEA)的每个电极以 24 kHz 采样率记录约 10 分钟的自发活动(硬件:MEA1060,带消隐电路,放大倍数 x1200,12 位 A/D,范围 0–4096 mV,MultiChannel Systems;软件:MC_Rack)。接地可通过内部接地电极实现,也可通过外接 Ag/AgCl 半电池提供。
- 使用 1 – 200 Hz 带通滤波器将 LFP 与细胞外锋电位活动(300 – 3,000 Hz 带通)分离。锋电位活动可进一步通过离线锋电位分类器(如 Plexon Inc.)分为单单位和多单位活动。计算每个电极的锋电位触发平均值。对于皮层培养物,大多数平均结果会显示负向 LFP 偏转(nLFP)为神经元放电的偏好时间点。
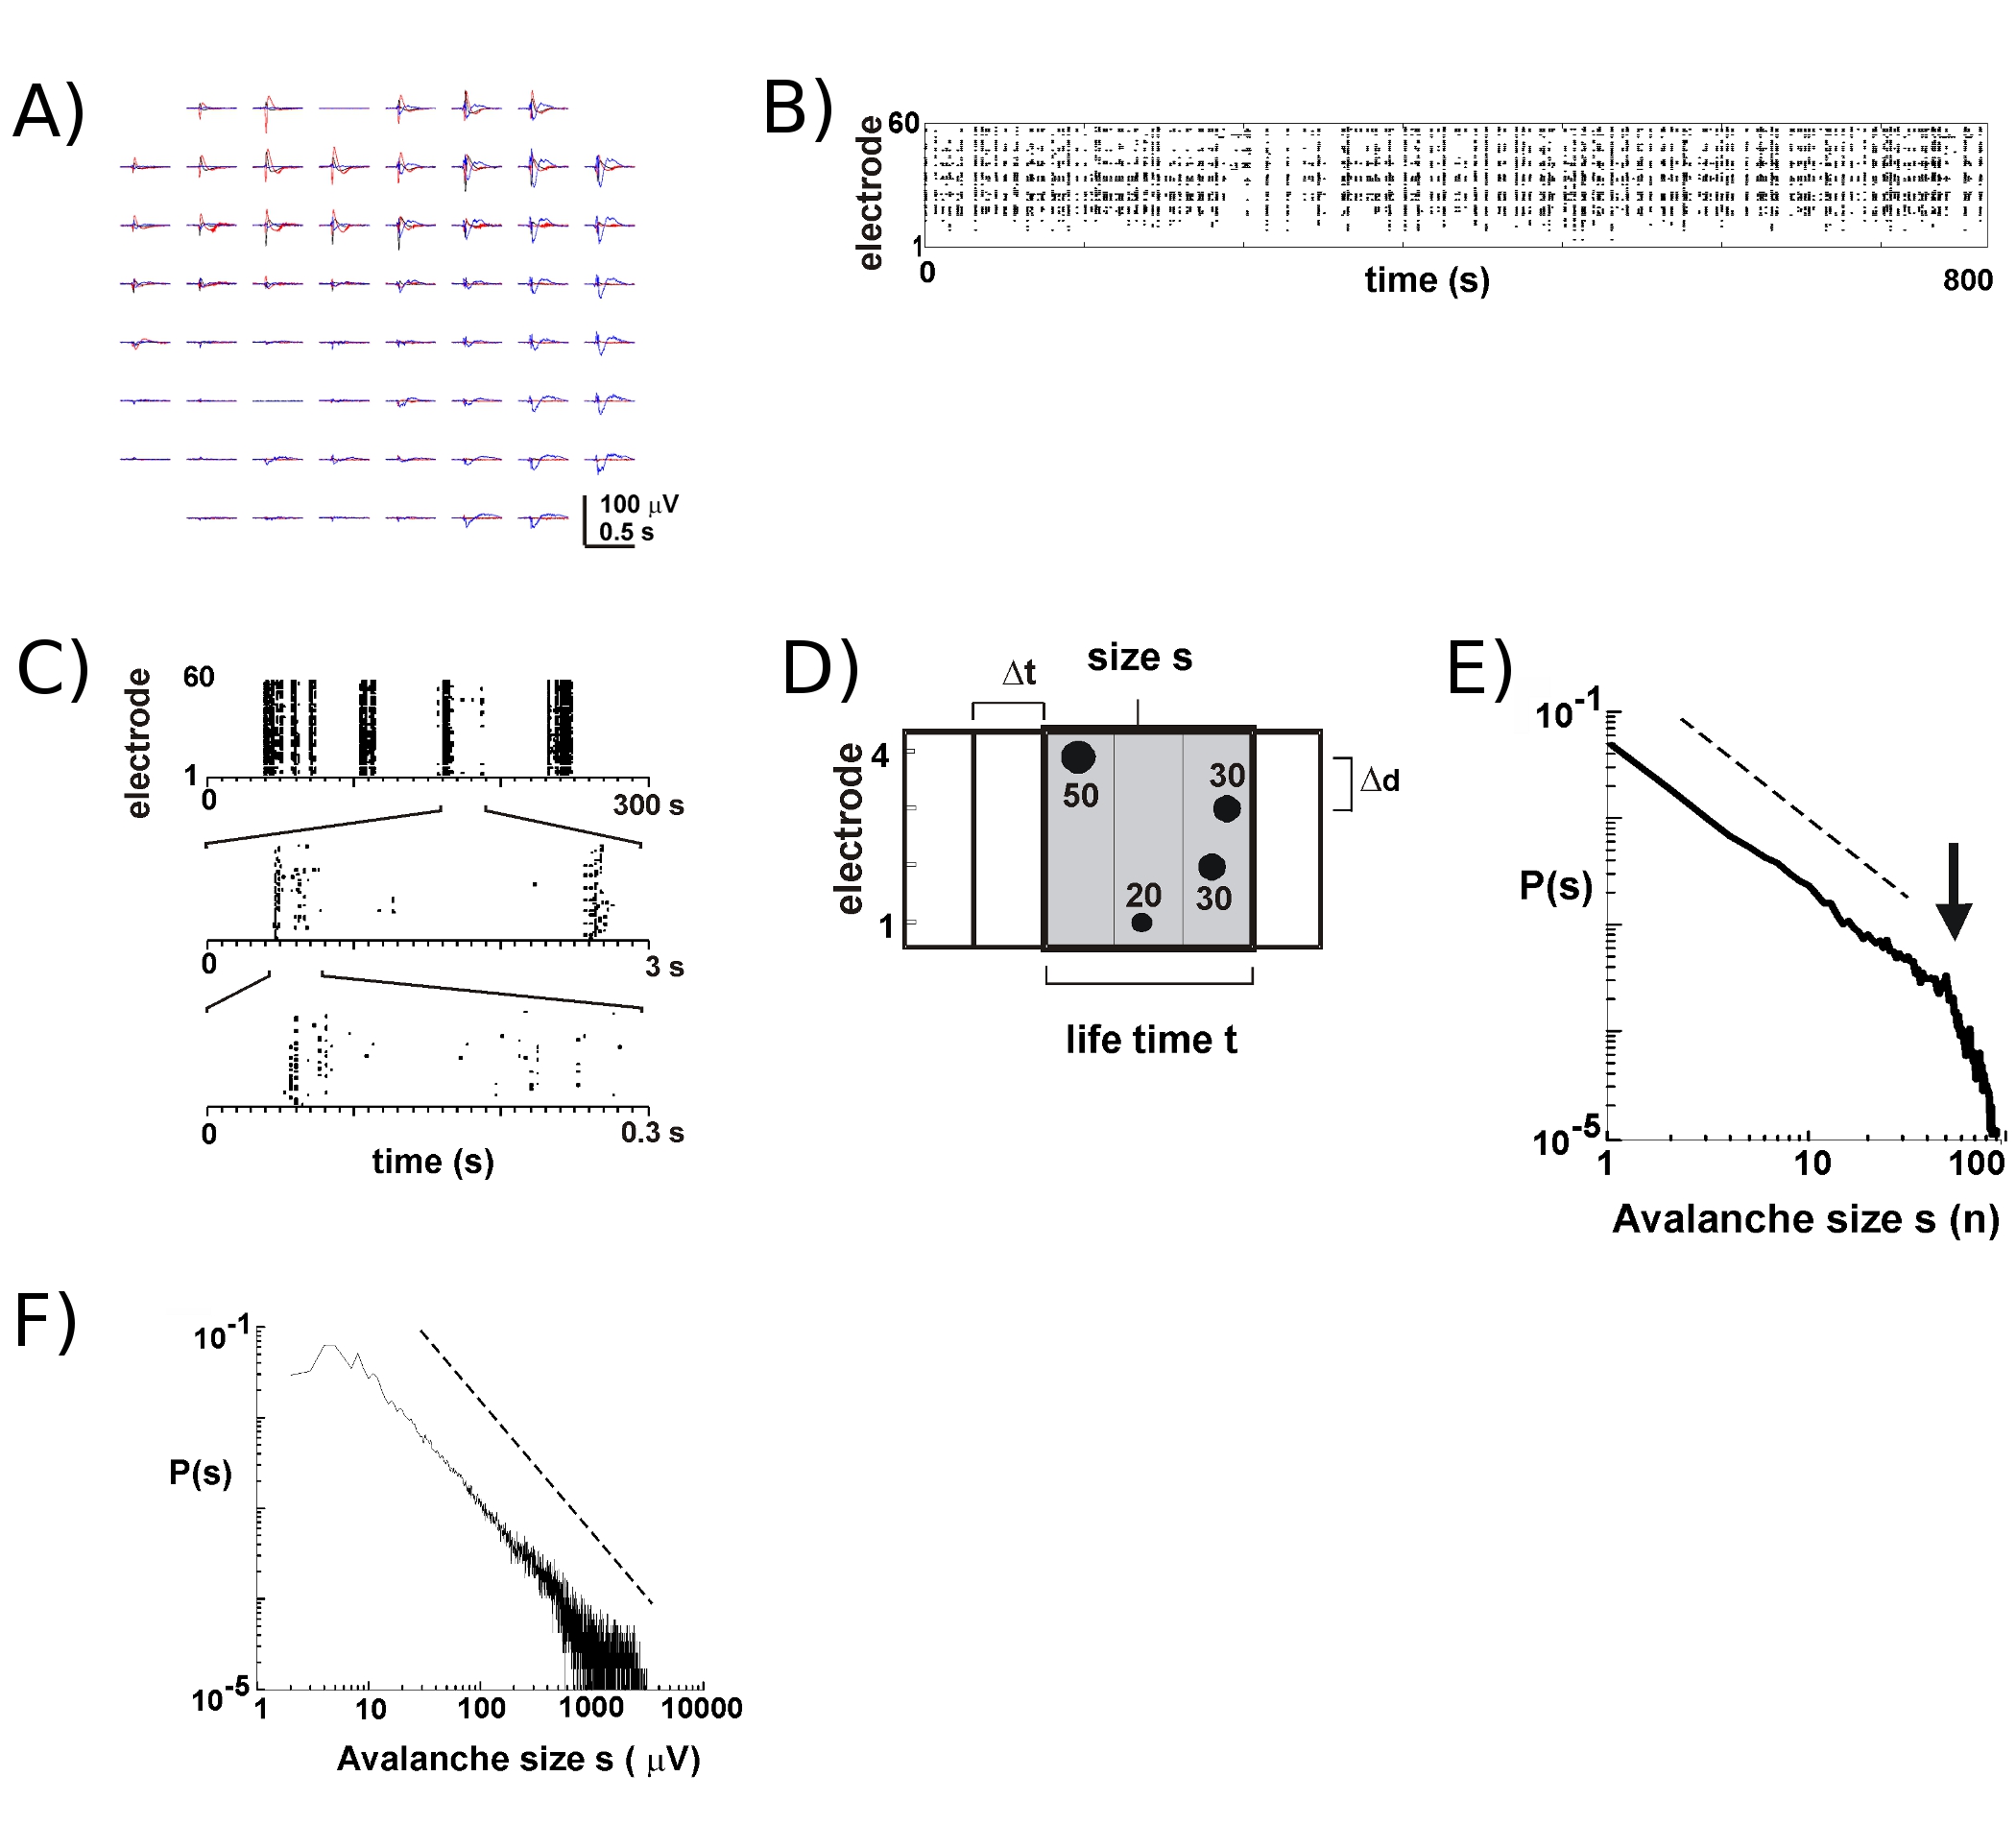
- 对每个电极,计算 LFP 轨迹噪声的标准差(SD)的 -3 倍作为阈值(图 2),确定跨越该阈值的 nLFP 的峰值时间和幅度(图 2B, C)。选择一个时间窗 Δt(例如 2 – 8 ms),通过连接所有电极中处于相同或连续时间窗 Δt 内的 nLFP,识别阵列上的时空 nLFP 簇(图 2D;详见2,4,5)。
- 为了识别神经元雪崩现象,计算每个 nLFP 簇的大小,例如活跃电极数量或 nLFP 幅度之和,构建大小分布直方图,并在双对数坐标系中绘制。对于神经元雪崩,其大小分布遵循幂律,表现为双对数坐标系中近似一条直线2(图 2E,F)。关于幂律的统计检验,参见16。
- 通过选择一个电极施加电流控制的刺激(强度为 S),在组织中诱发反应(刺激发生器 STG 1008,Multichannel Systems)。为减少电极损伤,采用范围受限、电荷中性的单脉冲双相方波刺激:先以幅度 -S 持续 50 μs,随后以幅度 +S/2 持续 100 μs,S 的范围为 10 – 200 μA。更多细节请参阅设备使用手册。
- 为记录动态范围9,刺激后以 4 kHz 采样率在所有电极上记录刺激诱发的 LFP 响应,持续至刺激后 500 ms。使用消隐电路(Multi-channel systems),在刺激期间断开头级放大器连接,以减少刺激伪迹并防止前置放大器饱和。
6. 代表性结果:
使用新的MEA,大约每10个培养物中可有8至9个存活数周。我们的大多数长期记录均在培养箱内的培养基中进行,从而能够连续数周追踪单个培养物的发育过程5根据我们的实验结果,使用超过100天培养时间的微电极阵列(MEAs)仍可稳定获取局部场电位(LFP)记录。相比之下,细胞外锋电位活动更可靠地通过较新的微电极阵列(MEAs)进行测量<40 天培养)。在典型实验中,我们将MEA从储存托盘(图1B,右)转移至连接有探头的托盘(图1B,左),同时保持培养腔密封。对于皮层5,皮层-腹侧被盖区共培养6,以及在麻醉大鼠中6 以及清醒的猴子 体内 7,浅层神经元在神经元雪崩期间的放电主要发生在局部场电位(LFP)负向偏转峰值附近(nLFP)。因此,可通过测量阵列上空间和时间中nLFP的发生情况,来估计局部同步神经元群的时空组织特性 17.
MEA 上的活动往往以时间簇的形式出现,即一个电极上的活动伴随着其他位点的活动。在活动期间,局部场电位(LFP)的典型波形如图 2A 所示,通过叠加几个相隔数秒的簇来呈现。对于每个簇,在 1 秒时间窗内可在多个电极上观察到负向场电位偏转。当提取超过多个负标准差阈值的 nLFP 峰时,以 nLFP 峰时间为形式的活动可方便地以点阵图(raster)形式可视化,其中“列”状的点代表在不同电极上几乎同时发生的 nLFP 事件(图 2B)。这种活动在时空上的组织结构相当复杂;在较低时间分辨率下看似较为均一的“列”,在更高时间分辨率下则由多个独立的簇组成,依此类推(图 2C)。事实上,皮层网络中 nLFP 时空簇的出现具有高度组织性。更具体地说,神经元雪崩(neuronal avalanches)的组织具有尺度不变性。这一点可通过计算在给定时间分辨率 Δt 下簇大小的概率来验证。此处,簇由在同一或连续时间 bin 内发生的 nLFP 组成(图 2D)。当簇的大小以每个簇中 nLFP 的总数或每个簇中 nLFP 振幅的积分值表示时,簇大小的分布呈现出幂律关系,其斜率已被证实为 -1.5 2,4,5,7(图 2E,F)。需注意,该分布揭示了一种簇大小的尺度不变性排序,即大小 s 与 k x s 之间的比例关系,其中 k 为常数因子,其比值为 k-1.5,且与 s 无关。这种幂律组织特性与电极阵列的大小 2、时间分辨率 Δt 2 以及用于识别显著 nLFP 偏转的阈值 7 无关。由于 nLFP 振幅与神经元群体大小成正比 7,nLFP 的尺度不变性组织反映了局部同步神经元群体的尺度不变性(即分形)排序,涵盖所有尺度。

图1. (A)安装了带螺纹玻璃环及对应盖帽的多电极阵列(MEA)的侧视图和顶视图。(B)培养箱内部视图。左侧:头部支架,可在培养箱条件下对单个培养物进行记录;右侧:用于培养多个MEA的托盘。侧面滚轮:由步进电机控制的摇摆装置,用于在培养过程中交替实现浸没与暴露于空气中的阶段。(C)用于皮层-腹侧被盖区(VTA)共培养的大鼠冠状切片示意图。沿虚线切割可获得皮层切片(左)和包含VTA腹侧被盖区(vta;灰色区域)的中脑切片(中、右)。Ctx:皮层;wm:白质;cpu:纹状体;vta:腹侧被盖区;pons:脑桥区域。另见参考文献15对应的冠状切片图谱第8、18和20板。(D)单个皮层-VTA共培养物在MEA上的放置、生长情况及其在培养前9天内(DIV)的发育过程。注意培养物逐渐展平并在阵列表面逐步扩展。反光的组织部分提示细胞退化及组织碎片。健康组织在可见光透射照明下呈不透明灰白色。

图 2. 皮层类器官培养物中的神经元雪崩。(A)阵列上三个自发活动时期的叠加图,各时期之间相隔数秒。注意每个活动时期均由阵列上多个电极记录到的负向局部场电位偏转组成(每种颜色代表一个活动时期)。(B)从每个电极提取的负向局部场电位(nLFP)负峰时间点被整合为活动的点阵图。“柱状”结构表示接近同步的活动时期。(C)注意在某一时间尺度下看似高度同步的柱状结构,在更高时间分辨率下实际上由多个柱状结构组成(图中显示了三个时间尺度)。(D)神经元雪崩算法的示意图。在 2 × 2 电极阵列上,识别出超过噪声阈值 –x SD 的负向局部场电位偏转(nLFP)的峰值时间和振幅。nLFP 的时空活动被聚类为连续活跃的时间窗口,窗口宽度为 Δt。簇的大小可通过活跃位点数量(即出现 nLFP 的电极数,s = 4)或 nLFP 振幅的积分总和(s = 130 μV)来确定。寿命以 Δt 的倍数表示。(E, F)簇大小分布中的幂律关系表明这些簇为神经元雪崩。注意,阵列中特定的电极间距 Δd(此处为 200 μm)决定了应观察动力学行为的特定 Δt。更具体地说,当 Δd/Δt 接近网络中平均传播速度时,神经元雪崩的幂律斜率 α 约为 -1.52,4,5。请点击此处查看图 2 的放大版本。
讨论
1. 技术问题:
- 无菌技术 MEA 的制备及细胞培养的准备工作均在超净工作台内无菌条件下进行。在制备及培养过程中,始终不使用任何会影响神经元活性的抗生素。
- MEA上的血浆/凝血酶凝固及组织黏附 在MEA上维持组织存活需要精确平衡血浆/凝血酶凝固所需时间与组织暴露于大气的时间。凝固时间过短可能导致组织切片过早从MEA脱落,而长时间暴露于大气则会引发组织退化。由于凝血酶溶液的浓度决定了凝固过程的速度,因此它是实现组织成功贴附并维持MEA表面健康培养的关键参数。我们使用1000单位(1KU;1 NIH单位 = 0.324 ± 0.073 mg)。重要的是,血浆/凝血酶溶液混合不充分会导致在培养过程中出现空间上不均一的凝固,从而引发血浆破裂。这些血浆“空洞”会严重损害培养物的健康状态,并使培养物从微电极上脱落,进而影响电生理记录的质量。在MEA/组织组装过程中使用冷却板可减缓凝固速度,有助于血浆/凝血酶溶液的均匀混合,并确保组织切片的准确定位。
类似地,在凝固仅5分钟后,向培养室中以单滴形式加入培养基以浸没组织,可大幅降低因表面张力导致的组织脱落风险。成功的培养表现为组织在MEA上逐渐变平并轻微扩展,持续数周呈现健康生长状态,且无明显的组织与MEA接触不全或组织退化迹象(例如图1D)。 - 组织解剖。 微型刀具极大地改进了我们的解剖流程。我们使用双刃剃须刀片(Fine Science Tools – 可折分手术刀片 – 100050-00),并将其劈开 ˜使用镊子制备2 mm宽的“刀片”,并用手术刀柄夹持。利用刀片对冠状切片中的组织样本进行解剖,采用平稳、垂直且有力的移动方式,从而显著减少因牵拉组织而产生的机械应力,整体上改善培养组织的健康状况。
- 组织冷却。在制备过程中,对切片和组织切片进行适当的冷却对于培养成功至关重要。我们使用定制的冷盘,其由贴附在金属圆盘下方的帕尔帖元件构成。帕尔帖元件产生的热量通过冷水灌注去除。这显著缩短了制备时间,并在制备的各个阶段实现了冷却过程的标准化(Dold Labs) & 工程部。131 Plantation Dr.,美国德克萨斯州塞金,邮编 78155;(830) 560-1471
- 培养箱条件 一种定制的培养箱,其内部具有精确的摇动条件,对我们成功在多电极阵列(MEA)上培养脑片至关重要。该培养箱基于Multichannelsystems公司早期自主研发的设计(目前未商业化),其内部摇动装置由连接在两个大型侧轮上的托盘组成。通过步进电机和计算机控制,可实现精确的摇动轨迹(包括摇动角度、摇动速度以及间歇性暂停)。最终,脑片培养物需要在空气与培养基之间进行缓慢交替暴露。传统方法是将脑片培养物置于细长管中,沿其最长轴缓慢旋转。在此方法中,缓慢旋转本身不会产生机械应力,且旋转速度足以实现约5–10分钟一次的最优“供食/呼吸”循环。相比之下,MEA培养室内部结构更为紧凑,其总体积为 ˜2 cc,以及组织自身进行培养基预处理所需的少量培养基体积,构成了重大挑战。通过在MEA之间轻轻摇动 ±˜70° 角度(循环时间: ˜200 秒),并在培养物在液相与大气之间转换时减慢摇动速度,且在极端角度暂停摇动以延长对大气的暴露时间,这对培养物的存活至关重要。
2. 用于研究神经元雪崩的皮层培养物的发育年龄
大鼠皮层的急性脑片通常取自出生后0至1天(PND 0–1),并在微电极阵列(MEA)上培养数周。早期研究已明确表明,单个皮层脑片培养物在培养数周后 体外,保持具有可识别细胞类型的分层结构,可轻松与之进行比较 体内 细胞类型 18,18-21. 这种分层结构组织 体外 该系统已被方便地用于研究发育过程中丘脑对大脑皮层的神经支配 22-24以及驱动纹状体等皮层下结构 25,26事实上,神经元连接在脑区内部及不同脑区之间的特异性形成,使得复杂神经网络的构建成为可能 体外 能够重建多个精细投射系统的成像技术,例如皮层-基底神经节环路的投射系统 27-30.
体外培养4–6周后,单个皮层切片 31 与纹状体共培养的皮层切片 26 或丘脑 32 表现出典型的自发性上状态和下状态 体内 在乌拉坦麻醉的大鼠中 33这些上状态的精细时间组织具有嵌套特征 θ- 和 γ-振荡,提示存在电生理学上成熟的锥体神经元和快速放电的GABA能中间神经元网络 31重要的是,在缺乏多巴胺D2受体刺激的情况下,皮层切片培养中表达小清蛋白的皮层中间神经元的成熟会延迟约2周 34与这些发现一致,嵌套的发育时间进程 θ-, β- 和 γ-振荡在与含有投射至皮层的多巴胺能神经元的腹侧被盖区(VTA)共培养时,其活动模式与体内情况相匹配 6.
这些研究表明,在研究神经元雪崩活动时,必须特别注意确保皮层组织的充分成熟,因为神经元雪崩活动高度依赖于成熟的快速GABA能抑制,并且主要位于皮层的浅层2,4。虽然在单层皮层培养中,神经元雪崩可在2至5周的时间内自发出现4,但在需要与体内发育时间进程相匹配的情况下,皮层切片需要适当的多巴胺受体刺激,例如通过将皮层切片与腹侧被盖区(VTA)共培养来实现6。
致谢
本研究由美国国家心理健康研究所(国家卫生研究院)院内研究计划(DIRP)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 集成平面多电极阵列 |  Multi Channel System MCS GmbH | 200/30iR-ITO-w/o | 硝酸钛(TiN)电极(直径 30 mm)具有较大的表面积,从而产生低阻抗(~1.5 kΩ)。Ω 在1 kHz时)以及出色的宽带记录(无 -– 无环状结构 |
| 玻璃培养皿 | www.aceglass.com | 7620-32 | 带螺纹的玻璃圆筒 |
| 腔室盖 | www.aceglass.com | 7622-114 | 带聚四氟乙烯衬垫的塑料盖 |
| Sylgard 184 | World Precision Instruments, Inc. | SYLG184 | 双组分硅胶弹性体 |
| 聚-D-赖氨酸 | Sigma-Aldrich | P6407-5mg | γ- 经辐照、冻干粉末,经细胞培养检测。使用前用 5 ml 去离子水重悬。 |
| Gey’s 平衡盐溶液 | Sigma-Aldrich | G9779-500mL | 无菌过滤且经培养检测 |
| 鸡血浆 | Sigma-Aldrich | P3266-5mL | 冻干粉,使用前用 5 ml 去离子水重悬。 |
| thrombin | Sigma-Aldrich | T6634-1KU | 来自牛血浆,冻干粉形式。 |
| 马血清 | Sigma-Aldrich | H1138-100mL | 供体畜群,热灭活,经细胞培养检测 |
| 巴斯尔培养基Eagle | Invitrogen | 21010-046 | 1x,500 ml - (+) Earle’s 盐,(-) L-谷氨酰胺), |
| 汉克’s 缓冲盐溶液 | Invitrogen | 24020-117 | 500 ml - 含镁,含钙,含酚红 |
| 载玻片培养皿 | Lab-Tek | 177429 | |
| 尿苷 | Sigma-Aldrich | U3003 | |
| 阿糖胞苷(cytosine-β-D-阿拉伯呋喃糖苷)β-D-阿拉伯呋喃糖苷 | Sigma-Aldrich | C6645 | |
| 5-氟-2’-脱氧尿苷 | Sigma-Aldrich | F0503 |
参考文献
- Spitzer, N. C. Electrical activity in early neuronal development. Nature. 444, 707-712 (2006).
- Beggs, J. M., Plenz, D. Neuronal avalanches in neocortical circuits. J. Neurosci. 23, 11167-11177 (2003).
- Beggs, J. M., Plenz, D. Neuronal avalanches are diverse and precise activity patterns that are stable for many hours in cortical slice cultures. J Neurosci. 24, 5216-5229 (2004).
- Stewart, C. V., Plenz, D. Inverted-U profile of dopamine-NMDA-mediated spontaneous avalanche recurrence in superficial layers of rat prefrontal cortex. J. Neurosci. 26, 8148-8159 (2006).
- Stewart, C. V., Plenz, D. Homeostasis of neuronal avalanches during postnatal cortex development in vitro. J. Neurosci. Meth. 169, 405-416 (2007).
- Gireesh, E. D., Plenz, D. Neuronal avalanches organize as nested theta- and beta/gamma-oscillations during development of cortical layer 2/3. Proc. Natl. Acad. Sci. U. S. A. 105, 7576-7581 (2008).
- Petermann, T. Spontaneous cortical activity in awake monkeys composed of neuronal avalanches. Proc. Natl. Acad. Sci. U. S. A. 106, 15921-15926 (2009).
- Kinouchi, O., Copelli, M. Optimal dynamical range of excitable networks at criticality. Nature Physics. 2, 348-351 (2006).
- Shew, W. L., Yang, H., Petermann, T., Roy, R., Plenz, D. Neuronal avalanches imply maximum dynamic range in cortical networks at criticality. J. Neurosci. 29, 15595-15600 (2009).
- Shew, W. L., Yang, H., Yu, S., Roy, R., Plenz, D. Information capacity is maximized in balanced cortical networks with neuronal avalanches. J Neurosci. 5, 55-63 (2011).
- Karpiak, V., Plenz, D. Preparation and maintenance of organotypic cultures for multi-electrode array recordings. Current Protocols in Neuroscience. 1, 6-6 (2002).
- Hammerle, H., Egert, U., Mohr, A., Nisch, W. Extracellular recording in neuronal networks with substrate integrated microelectrode arrays. Biosens. Bioelectron. 9, 691-696 (1994).
- Nisch, W., Bock, J., Egert, U., Hammerle, H., Mohr, A. A thin film microelectrode array for monitoring extracellular neuronal activity in vitro. Biosens. Bioelectron. 9, 737-741 (1994).
- Egert, U. A novel organotypic long-term culture of the rat hippocampus on substrate-integrated multielectrode arrays. Brain Res. Protoc. 2, 229-242 (1998).
- Altman, J., Bayer, S. A. Atlas of Prenatal Rat Brain Development. , CRC Press. Boca Raton. (1995).
- Clauset, A., Shalizi, C. R., Newman, M. E. J. Power-law distributions in empirical data. arXiv. , (2009).
- Plenz, D., Thiagarajan, T. C. The organizing principles of neuronal avalanches: cell assemblies in the cortex? Trends Neurosci. 30, 101-110 (2007).
- Cäser, M., Bonhoeffer, T., Bolz, J. Cellular organization and development of slice cultures from rat visual cortex. Exp. Brain Res. 477, 234-244 (1989).
- Cäser, M., Schüz, A. Maturation of neurons in neocortical slice cultures. A light and electron microscopic study on in situ and in vitro material. J. Hirnforsch. 33, 429-443 (1992).
- Götz, M., Bolz, J. Development of vasoactive intestinal polypeptide (VIP)-containing neurons in organotypic slice cultures from rat visual cortex. Neurosci. Lett. 107, 6-11 (1989).
- Götz, M., Bolz, J. Formation and Preservation of cortical layers in slice cultures. J. Neurobiol. 23, 783-802 (1992).
- Bolz, J., Novak, N., Götz, M., Bonhoeffer, T. Formation of target-specific neuronal projections in organotypic slice cultures from rat visual cortex. Nature. 346, 359-362 (1990).
- Bolz, J., Novak, N., Staiger, V. Formation of specific afferent connections in organotypic slice cultures from rat visual cortex cocultured with lateral geniculate nucleus. J. Neurosci. 12, 3054-3070 (1992).
- Novak, N., Bolz, J. Formation of specific efferent connections in organotypic slice cultures from rat visual cortex cocultured with lateral geniculate nucleus and superior colliculus. Eur. J. Neurosci. 5, 15-24 (1993).
- Plenz, D., Aertsen, A. Neural dynamics in cortex-striatum co-cultures. I. Anatomy and electrophysiology of neuronal cell types. Neurosci. 70, 861-891 (1996).
- Plenz, D., Aertsen, A. Neuronal dynamics in cortex-striatum co-cultures. II. Spatio-temporal characteristics of neuronal activity. Neurosci. 70, 893-924 (1996).
- Plenz, D., Kitai, S. T. Organotypic cortex-striatum-mesencephalon cultures: the nigro-striatal pathway. Neurosci. Lett. 209, 177-180 (1996).
- Plenz, D., Kitai, S. T. Up' and 'down' states in striatal medium spiny neurons simultaneously recorded with spontaneous activity in fast-spiking interneurons studied in cortex-striatum-substantia nigra organotypic cultures. J. Neurosci. 18, 266-283 (1998).
- Plenz, D., Herrera-Marschitz, M., Kitai, S. T. Morphological organization of the globus pallidus-subthalamic nucleus system studied in organotypic cultures. J. Comp. Neurol. 397, 437-457 (1998).
- Plenz, D., Kitai, S. T. A basal ganglia pacemaker formed by the subthalamic nucleus and external globus pallidus [see comments]. Nature. 400, 677-682 (1999).
- Plenz, D., Kitai, S. T. Generation of high-frequency oscillations in local circuits of rat somatosensory cortex cultures. J Neurophysiol. 76, 4180-4184 (1996).
- Klostermann, O., Wahle, P. Patterns of spontaneous activity and morphology of interneuron types in organotypic cortex and thalamus-cortex cultures. Neurosci. 92, 1243-1259 (1999).
- Cowan, R. L., Wilson, C. J. Spontaneous firing patterns and axonal projections of single cortico-striatal neurons in the rat medial agranular cortex. J. Neurophysiol. 71, 17-32 (1994).
- Porter, L. L., Rizzo, E., Hornung, J. P. Dopamine affects parvalbumin expression during cortical development in vitro. J Neurosci. 19, 8990-9003 (1999).
重印与许可
