流式细胞术是一种强大的工具,可用于分离和研究特定的细胞群体。本方案描述了从新生转基因小鼠耳蜗组织中分离表达LacZ的细胞的步骤。在通过流式细胞术进行分离之前,将解离的耳蜗细胞使用荧光标记的β-半乳糖苷酶底物进行标记。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
分离特定细胞类型有助于分析稀有细胞群体,例如干细胞/祖细胞。由于目标细胞数量稀少且转基因报告小鼠模型有限,对内耳组织进行此类研究面临独特挑战。本文介绍了一种利用荧光标记探针选择性标记新生小鼠耳蜗中LacZ阳性细胞的实验方案。
感音神经性听力损失最常见的根本病理是耳蜗感觉毛细胞的不可逆损伤和丧失,而这些细胞是将声波转化为神经冲动所必需的。最近的研究表明,小鼠的听觉和前庭器官中含有具有再生潜能的干细胞/祖细胞1,2。这些发现值得进一步研究,包括鉴定具有干细胞/祖细胞特性的特定细胞类型。Wnt信号通路已被证明在维持多个器官系统的干细胞/祖细胞群体中发挥关键作用3-7。我们最近在新生小鼠耳蜗中鉴定出对Wnt有响应并表达Axin2的细胞,但其功能在很大程度上仍不清楚8。
为了更好地理解这些 Wnt 响应细胞在体外(in vitro)的行为,我们建立了一种从 Axin2-LacZ 报告小鼠耳蜗中分离 Axin2 表达细胞的方法9。通过流式细胞术从新生小鼠耳蜗中分离 Axin2-LacZ 阳性细胞,可进一步对活细胞开展多种实验,以研究其作为干细胞/前体细胞的生物学行为。本文详细描述了新生小鼠耳蜗显微解剖、组织解离、利用荧光底物标记 LacZ 阳性细胞以及细胞分选的具体步骤。已有研究报道过将耳蜗组织解离为单细胞及通过流式细胞术分离耳蜗细胞的技术2,10-12。我们在这些技术基础上进行了改进,建立了一种分离新生小鼠耳蜗中 LacZ 表达细胞的全新实验方案。
方案
1. 耳蜗的显微解剖
- 在通风橱内准备好解剖显微镜,用70%乙醇擦拭表面,并放置冰块。
- 在无菌条件下准备10-15个35 mm培养皿,每个培养皿中加入约一半体积(~2 ml)无菌含钙汉克斯平衡盐溶液(HBSS)。
- 在无菌条件下准备两个35 mm培养皿,每个培养皿中加入约一半体积(~2 ml)无菌1x磷酸盐缓冲液(PBS)。
- 将微型镊子置于50 ml圆锥形Falcon管中,用70%乙醇进行灭菌处理。
- 在与无菌操作台隔离的另一房间内,使用虹膜剪刀将12-15只出生后(P)0-3天龄的Axin2LacZ/+报告基因小鼠断头,并将头部置于冰块上的60 mm培养皿中。
- 使用#5 Dumont镊子和虹膜剪刀切除下颌骨和舌头,并在腭部水平处剪断颅底。
- 去除颅骨顶部的皮肤,将剪刀从枕骨大孔下部插入,沿中线剪至腭部,以横断颅底。
- 使用虹膜剪刀从腭部切口边缘向颅骨顶部两侧各做一延伸切口,注意避免损伤耳囊。
- 从枕骨大孔上缘开始,向硬腭的冠状切面方向做两个呈45度角的切口,完成颞骨的完全分离。
- 将分离出的颞骨置于含有HBSS并放置于冰块上的35 mm培养皿中。
- 收集约12-15只已处死动物的颞骨,共计24-30个颞骨。
- 将含有分离颞骨的培养皿转移至先前准备好的无菌解剖操作台(1.1)。
- 将四个颞骨转移至每个预先准备好的含HBSS的35 mm培养皿(1.2)中,并置于冰块上。
- 使用两把#55镊子开始显微解剖,轻柔地去除覆盖在耳囊上方颞骨中的皮质、脑干和小脑组织。
- 在不取出耳囊的前提下,从前庭耳蜗神经进入耳囊的入口处开始,逐步剔除耳蜗囊的部分骨质。
- 暴露耳蜗基部后,轻柔地拉出耳蜗及其周围组织。从基部开始,去除残留的螺旋神经节和血管纹。
- 将耳蜗转移至含有PBS并置于冰块上的35 mm培养皿中。
- 为保证组织最佳活性,整个解剖过程总时长应少于60分钟。
- 重复上述步骤,处理3-5只野生型(WT)P0-P3小鼠,作为Axin2-LacZ小鼠的对照组。
2. 细胞解离(改良自先前描述的方法)2,10
- 在6孔无涂层培养板的每个孔中央加入50 μl无菌PBS。
- 将最多20个Axin2LacZ/+耳蜗组织转移至每滴50 μl的PBS液滴中。若样本超过20个耳蜗,应使用新的50 μl PBS液滴。
- 将0.125%胰蛋白酶预热约2分钟:取50 μl分装液置于37°C水浴中预温。
- 向含有耳蜗组织的PBS中加入50 μl预温的0.125%胰蛋白酶。
- 将6孔板置于37°C孵育8分钟,注意避免震荡培养板。
- 为终止消化,向每100 μl液滴中加入50 μl大豆胰蛋白酶抑制剂。
- 每孔再加入50 μl完全培养基(FM)(含IGF-1、EGF、bFGF、HS、氨苄青霉素的DMEM/F12)2。
- 使用300 μl钝头移液吸头,配合调至125 μl的P200移液器,轻柔吹打细胞80次,注意避免产生气泡。
- 完成每滴样本的吹打后,向每孔再添加200 μl FM。
- 将细胞悬液通过40 μm蓝色Falcon细胞滤网转移至新孔中。
- 将细胞转移至标准Falcon FACS管中(吹打和过滤后每管约剩余300 μl)。
- 将野生型耳蜗来源的细胞分装至三根FACS管中,每管用300 μl FM稀释100 μl细胞悬液。其中一管作为空白对照,一管仅用碘化丙啶(PI,1 μg/ml)染色(此步骤暂不添加),最后一管用3-羧基伞形酮-β-D-半乳糖吡喃糖苷(CUG,见2.15)染色以检测背景荧光。
- 向每根FACS管中加入400 μl来自Axin2-LacZ耳蜗的解离细胞。作为仅含CUG的对照,将10 μl细胞悬液用390 μl FM稀释(见步骤2.15中的F管)。其余各管补加FM至终体积400 μl。
- 将细胞置于37°C恒湿培养箱中孵育10分钟。
- 配制CUG溶液:
- 为每根需要染色的FACS管准备200 μl CUG溶液。
- 在避光操作台中,将CUG用FM按1:50比例稀释,尽量减少光照暴露。
- 将稀释后的CUG溶液在37°C预温3–5分钟。
- 随后,向各相应FACS管中加入200 μl稀释后的CUG溶液。未指定添加CUG的管中仅加入FM(见2.15)。
- 此时应有以下五类FACS管(此步骤暂不加入PI):
- 野生型 — 不含CUG和PI(用于补偿调节,见步骤3.5–6)
- 野生型 — 仅含PI(用于补偿调节)
- 野生型 — 含CUG和PI(作为Axin2-LacZ细胞的对照)
- Axin2-LacZ — 仅含CUG(用于补偿调节)
- Axin2-LacZ — 含CUG和PI(用于实际细胞分选)
- Axin2-LacZ — 含CUG和PI(用于事件分析)
- 所有FACS管避光处理,并在37°C恒湿培养箱中孵育25分钟。
- 孵育结束后,准备新鲜的HEPES + 胎牛血清(FBS)溶液以终止反应:
- 在15 ml Falcon管中,将400 μl新鲜解冻的FBS加入10 ml无菌10 mM HEPES(溶于PBS)中稀释。
- 将该管置于冰上,直至完成步骤2.16。
- 在无菌操作台内关闭灯光的条件下,向每根FACS管中加入1.8 ml预冷的HEPES溶液,以减少光照暴露。
- 以1200 rpm离心5分钟。
- 吸除上清液,将细胞重悬于300 μl FM中,并将所有分装液合并为一个分选样本(Axin2-LacZ经CUG和PI染色的样本)。
- 向每根FACS管中加入PI,使其终浓度达到1 μg/ml。
- 将细胞置于冰上并避光保存。
3. 流式细胞术
- 我们使用配备有 488-nm、633-nm 和 407-nm 激光器的 BD Aria II 流式细胞分选仪。在斯坦福共享 FACS 设施中,CUG 的检测使用 407-nm 紫色激光,PI 的检测使用 488-nm 蓝色激光。
- 操作需由经过培训的流式细胞仪操作人员完成。按照制造商说明完成激光预热、细胞仪检测器校准并设定最佳分选参数后,进入下一步。根据我们的经验,使用 100 μm 喷嘴可优化后续实验的细胞活力。
- 使用以下参数:阈值设为 5,000 个事件,流速低于 3,000 事件/秒,前向散射(FSC)设为 125 伏,侧向散射(SSC)设为 250 伏,PE-Cy5 通道用于 PI 检测,Cascade Blue 通道用于 CUG 检测。
- 依次使用 70% 乙醇和 PBS 各冲洗细胞仪腔室两次。
- 从未经染色的野生型细胞(步骤 2.15 中的 A 管)开始分析。采集 1,000 个事件,以确定 FSC 与 SSC 图上的细胞分布情况。如无需散射信号,可调整 FSC 和 SSC 参数。
- 使用未经染色的野生型细胞(A 管)、PI 染色的野生型细胞(B 管)以及 CUG 染色的 Axin2-LacZ 细胞(D 管)进行补偿调节。补偿可提高不同激光波长间信号的准确分辨能力。
- 开始分析野生型细胞中经 PI 和 CUG 染色的样本(C 管),并设置以下门控参数:
- 根据 FSC 与 SSC 图排除碎片。
- 利用 FSC-高度与 FSC-面积图排除双联体和细胞团块。
- 根据 FSC-面积与 PE-Cy5-面积图排除死细胞。
- 设置 FSC-面积与 Cascade Blue-面积图,并任意设定门控位置。
- 接下来,分析含有 Axin2-LacZ 细胞并经 PI 和 CUG 染色的分选样本管(F 管)中的 10,000 个事件。
- 使用野生型细胞设定的所有门控参数应在此处应用。
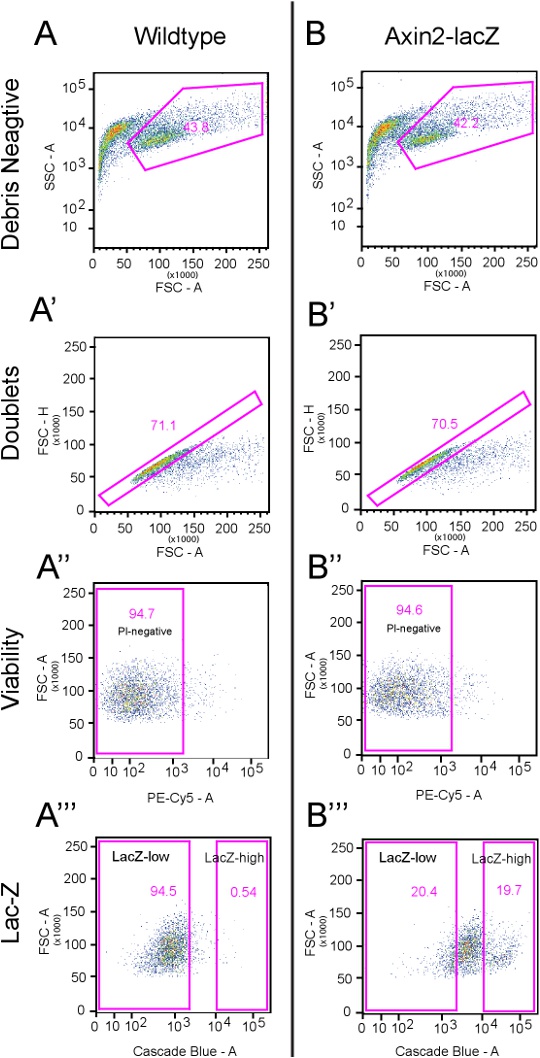
- 根据野生型细胞的图谱,创建 Cascade Blue 高表达细胞门控,其数量应少于总事件数的 1%。
- 在 Axin2-LacZ 样本中,相同的 Cascade Blue 高表达门控将涵盖约 15–20% 的细胞,定义为 Axin2 高表达细胞。
- 根据 Axin2-LacZ 细胞的分析图谱,创建荧光信号最低的 15–20% 细胞门控,定义为 Axin2 低表达细胞。
- 根据上述门控策略,将细胞分选至含有 500 μl FM 的 FACS 管中,分别收集 Axin2 高表达和 Axin2 低表达细胞。确保收集管在分选过程中置于 4°C 冷却室中。
- 记录流式细胞仪对每个细胞群计数的细胞数量。
4. 典型结果(见图2):
采用上述方案,我们通常从野生型和Axin2LacZ/+耳蜗组织中分别回收到40-45%无碎片的细胞(图2A和2B),其中约70%的细胞无双细胞聚集体(见图2A'和2B')。大多数分选后的细胞具有活性,未摄取PI(约95%)(图2A''和2B'')。平均而言,CUG阳性信号最强的约前20%细胞被定义为Axin2-LacZ阳性细胞(图2B'''),相当于每10-12只动物获得约15,000个Axin2-LacZ高表达细胞。
对Axin2高表达细胞进行流式细胞术再分选分析,结果显示Cascade Blue通道的纯度超过93%。为进一步确认这些细胞的身份,我们对Axin2高表达和Axin2低表达细胞分选后均进行了抗β-半乳糖苷酶抗体的免疫染色,发现Axin2高表达细胞中约93.4%为β-半乳糖苷酶阳性细胞(分析细胞数超过1,500个),而Axin2低表达细胞中约4.8%为β-半乳糖苷酶阳性细胞。
图与表:

图1.实验流程示意图。上图展示了本实验的整体策略与技术路线,具体操作详见实验方案部分。分别采集野生型和Axin2LacZ/+小鼠的耳蜗组织,并将其解离为单细胞悬液,随后使用CUG(β-半乳糖苷酶的荧光底物)进行处理。接着通过流式细胞术分离出Axin2-LacZ高表达与低表达的细胞群体。点击此处查看该图像的完整尺寸版本。


图 2.设门策略。本图展示了所使用的流式细胞术设门策略。A) 对经过与Axin2-LacZ细胞相同处理的解离野生型细胞进行分析,共采集10,000个事件。第一张图显示侧向散射面积(SSC-A)对前向散射面积(FSC-A)的散点图。其中,一组明显较大的事件与靠近y轴的事件相比尺寸显著更大,这些事件被定义为“碎片阴性”群。下一设门A'分析来自A图的“碎片阴性”细胞,占总事件数的43.8%(见下表)。在此图中,使用前向散射高度(FSC-H)对FSC-A作图以排除双联体。偏离图中预期线性分布的事件被排除。该样本通常在指定门内保留约70%的事件,其余细胞被排除。在A''图中,通过PE-Cy5通道检测的碘化丙啶(PI)用于标记死细胞(5.3%)。在下一张图(A''')中,使用Cascade blue通道检测荧光底物CUG。此处,LacZ高表达门所包含的事件少于总事件的1%。B) 对来自经CUG和PI处理的Axin2-LacZ小鼠的解离细胞进行分析,共采集10,000个事件。此处应用与A图相同的设门策略。B'显示29.5%的细胞因被识别为双联体而被排除,B''显示5.4%的细胞无活力。LacZ高表达和低表达细胞的初始设门依据B'''图设定,其中LacZ高表达群初始设为19.7%,LacZ低表达群设为20.4%。点击此处查看该图像的完整尺寸版本。
| 事件数 | 百分比 | ||
| A | 野生型分析 | 10,000 | |
| A' | 碎片阴性 | 4,381 | 43.80% |
| A'' | 双联体阴性 | 3,116 | 71.10% |
| A''' | PI 阴性 | 2,951 | 94.70% |
| LacZ-高 | 16 | 0.54% | |
| LacZ-低 | 2,790 | 94.50% | |
| B | Axin2-LacZ 分析 | 10,000 | |
| B' | 碎片阴性 | 4,218 | 42.2% |
| B'' | 双联体阴性 | 2,973 | 70.50% |
| B''' | PI 阴性 | 2,813 | 94.6% |
| LacZ-高 | 553 | 19.70% | |
| LacZ-低 | 573 | 20.40% |
表1. 图2中门控策略的定量分析。
访问受限。请登录或开始试用以查看此内容。
讨论
独立的研究已证实新生小鼠耳蜗的再生能力有限2,10,12,13。White 及其同事利用表达 GFP 报告基因的小鼠和流式细胞术分离出特定的耳蜗支持细胞,并发现这些细胞具有祖细胞特性12。
经典Wnt信号通路已被证实可标记多种器官系统中的干细胞/祖细胞群体,包括大脑、乳腺、造血系统、皮肤以及胃肠道隐窝。近期研究发现,在新生小鼠耳蜗中一个尚未充分表征的细胞群体存在活跃的Wnt信号传导8。Axin2-LacZ报告小鼠9能够像在其他系统中一样5,7,准确反映耳蜗中活跃的Wnt信号活动8。为了更深入地表征这一Axin2-LacZ阳性细胞群体,我们改进并整合了多种已建立的方法,以研究Wnt信号在调控新生小鼠耳蜗再生过程中的作用。
在细胞分选前使用荧光标记底物对 LacZ 阳性耳蜗细胞进行标记时,会遇到若干技术挑战,而这些挑战在分选转基因小鼠来源的荧光报告细胞(例如 GFP 阳性细胞)时通常不会出现。我们使用...
访问受限。请登录或开始试用以查看此内容。
披露
未声明任何利益冲突。
致谢
我们感谢 S. Heller、K. Oshima、R. Nusse 和 Y. Zeng 的有益讨论,以及 C. Tang、A. Lee、E. Liaw 和斯坦福共享 FACS 设施工作人员的技术支持。本研究得到了霍华德·休斯医学研究所医学研究培训奖学金、斯坦福大学医学学者项目(均授予 T.A.J.)、斯坦福大学院长奖学金(授予 R.C.)、美国耳科协会、耳鼻喉科研究学会、珀西纪念奖、安子山崎与杨致远教员学者基金以及 NIDCD/NIH K08 DC011043(以上均授予 A.G.C.)的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 培养皿,聚苯乙烯,无菌,Geriner Bio-one 35 × 10 mm | VWR 国际公司 | 82050-540 | |
| BD Falcon 细胞筛,无菌,BD Biosciences,蓝色,40 μm | VWR 国际公司 | 21008-949 | |
| 汉克斯’ 平衡盐溶液(HBSS),含钙、镁,不含酚红,无菌 | VWR 国际公司 | 45000-456 | |
| Cellstar 离心管,聚丙烯材质,无菌,Greiner Bio-One,50 ml | VWR 国际公司 | 82050-346 | |
| Cellstar 离心管,聚丙烯材质,无菌,Greiner Bio-One,15 ml | VWR 国际公司 | 82050-278 | |
| B-27 无血清添加剂(50倍浓缩液),液体 | Invitrogen | 17504-044 | |
| N-2 补充剂(100倍浓缩液),液体 | Invitrogen | 17502-048 | |
| bFGF,碱性成纤维细胞生长因子-人 | Sigma-Aldrich | F0291 | |
| IGF-1,小鼠胰岛素样生长因子-1 | Sigma-Aldrich | I8779 | |
| EGF,人表皮生长因子 | Sigma-Aldrich | E9644 | |
| 杜尔贝科’s 改良伊格尔’s 培养基/Ham’F-12 50/50 混合培养基:1X,含 L-谷氨酰胺和 15 mM HEPES | VWR 国际公司 | 45000-350 | |
| BD Falcon 一次性圆底管,聚苯乙烯,12×75 | VWR 国际公司 | 60819-295 | |
| 胰蛋白酶,0.25%(1×),含EDTA 4Na,液体 | Invitrogen | 25200-056 | |
| ep Dualfilter TIPS 300μL,960个吸头 | Eppendorf | 22491245 | |
| 大豆胰蛋白酶抑制剂,纯化 | 沃辛顿生物化学 | LS003570 | |
| BD Falcon 40 μm 细胞滤网 | BD 生物科学 | 21008-949 | |
| 多孔板,聚苯乙烯,Greiner Bio-One,未处理板,6 孔 | VWR 国际公司 | 82050-846 | |
| 标记基因 FACS Blue LacZ β-半乳糖苷酶检测试剂盒 | 标记基因技术 | M0255 |
参考文献
- Li, H., Liu, H., Heller, S. Pluripotent stem cells from the adult mouse inner ear. Nat. Med.. 9, 1293-1299 (2003).
- Oshima, K. Differential distribution of stem cells in the auditory and vestibular organs of the inner ear. J. Assoc. Res. Otolaryngol. 8, 18-31 (2007).
- Barker, N. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 449, 1003-1007 (2007).
- Jaks, V. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat. Genet. 40, 1291-1299 (2008).
- Kalani, M. Y. Wnt-mediated self-renewal of neural stem/progenitor cells. Proc. Natl. Acad. Sci. U.S.A. 105, 16970-16975 (2008).
- Willert, K. Wnt proteins are lipid-modified and can act as stem cell growth factors. Nature. 423, 448-452 (2003).
- Zeng, Y. A., Nusse, R. Wnt proteins are self-renewal factors for mammary stem cells and promote their long-term expansion in culture. Cell Stem Cell. 6, 568-577 Forthcoming.
- Chai, R. Dynamic Expression of Lgr5, a Wnt Target Gene, in the Developing and Mature Mouse Cochlea. J. Assoc. Res. Otolaryngol. , Forthcoming.
- Lustig, B. Negative feedback loop of Wnt signaling through upregulation of conductin/axin2 in colorectal and liver tumors. Mol. Cell Biol. 22, 1184-1193 (2002).
- Diensthuber, M., Oshima, K., Heller, S. Stem/progenitor cells derived from the cochlear sensory epithelium give rise to spheres with distinct morphologies and features. J. Assoc. Res. Otolaryngol. 10, 173-190 (2009).
- Savary, E. Cochlear stem/progenitor cells from a postnatal cochlea respond to Jagged1 and demonstrate that notch signaling promotes sphere formation and sensory potential. Mech. Dev. 125, 674-686 (2008).
- White, P. M., Doetzlhofer, A., Lee, Y. S., Groves, A. K., Segil, N. Mammalian cochlear supporting cells can divide and trans-differentiate into hair cells. Nature. 441, 984-987 (2006).
- Zhang, Y. Isolation, growth and differentiation of hair cell progenitors from the newborn rat cochlear greater epithelial ridge. J. Neurosci. Methods. 164, 271-279 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
