通过联合使用BrdU对核酸进行代谢标记以及碘化丙啶对总基因组DNA染色,可实现对细胞周期各阶段进展及动力学的细微变化进行追踪。该方法无需对增殖细胞进行化学同步化处理,从而避免了非特异性DNA损伤的引入,进而防止对细胞周期进程造成影响。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
在增殖细胞中,精确控制细胞周期各个阶段的起始及后续进程至关重要。细胞周期分裂是生长和繁殖的固有组成部分,关键细胞周期组分的失调已被认为与致癌事件的发生密切相关1,2。抗癌治疗中的分子靶向药物常作用于调控和协调细胞周期分裂的生物学通路3。尽管细胞周期动力学通常因细胞类型不同而有所差异,但由于有丝分裂原和生长因子表达模式的一致性,特定细胞系中细胞在细胞周期四个阶段的分布相对稳定。基因毒性事件及其他细胞应激因素可导致细胞周期进程的暂时性阻滞,使细胞停留在某一特定细胞周期阶段,以启动相应的应答机制。
能够通过实验观察细胞群体在细胞周期进展不同阶段的行为,是细胞生物学领域的一项重要进展。常用的方法包括有丝分裂摇落法、差速离心法或基于流式细胞术的分选技术,用于分离处于细胞周期特定阶段的细胞4-6。随后,将这些经过分离、富集了特定细胞周期时相的细胞群体用于实验处理。然而,这些物理分离方法常常会影响所获得细胞组分的得率、纯度和活力。此外,细胞群体分离后到实验处理开始之间的时间延迟,可能导致已分离的细胞离开原本选定的细胞周期阶段,从而为实验的顺利实施和结果的准确解读带来显著挑战。
研究细胞周期阶段的其他方法包括使用化学物质来同步细胞。通过使用针对每个细胞周期阶段关键代谢过程的化学抑制剂处理细胞,可有效阻断细胞周期向下一阶段的进程。例如,核糖核苷酸还原酶抑制剂羟基脲通过限制脱氧核苷酸(DNA的基本组成单位)的供应,使细胞停滞在G1/S交界处。其他重要的化学物质还包括:使用DNA聚合酶α抑制剂阿非迪可林诱导G1期阻滞;使用秋水仙素和诺考达唑处理,二者均可干扰有丝分裂纺锤体的形成,从而使细胞停滞在M期;最后,使用DNA链终止剂5-氟脱氧尿苷诱导S期阻滞7-9。这些化学物质处理是将整个细胞群体同步于特定阶段的有效手段。去除化学物质后,细胞会同步重新进入细胞周期。在解除细胞周期阻滞之后再给予待测药物处理,可确保所观察到的药物反应来自处于同一细胞周期阶段的均一群体。然而,由于许多化学同步剂本身是已知的具有基因毒性的化合物,因此区分不同应答通路的激活原因(是由同步剂还是由待测药物引起)具有挑战性。
本文介绍了一种代谢标记方法,用于追踪处于活跃增殖状态的细胞亚群,观察其从DNA复制阶段开始,直至子细胞分裂与分离的整个过程。结合流式细胞术进行定量分析,该方案能够在无需采用机械或化学方法诱导细胞应激的条件下,实现对细胞周期动力学进程的测量,而此类细胞应激通常与其他细胞周期同步化方法相关联10。在后续章节中,我们将讨论该方法的技术细节及其在生物医学研究中的一些应用。
方案
1. 细胞准备

- 以每10 cm培养皿接种5 × 10⁵个细胞的密度接种MCF7细胞,或以每6 cm培养皿接种6 × 10⁵个细胞的密度接种HT29和LS180细胞,使用含10% FBS和1×青霉素/链霉素的适当培养基,使细胞在收集时达到约60%融合度,并处于对数生长期。除待测样本外,还需正确设置相应的阳性和阴性对照组培养皿。具体包括以下内容:
| i | 阳性对照 | BrdU 单独染色 |
| ii | 阳性对照 | PI 单独染色 |
| iii | 阴性对照 | BrdU 阴性,PI 阴性 |
(需要注意的是,可通过包含多个时间点的预实验(如本方案中所述)来缩小后续样本采集的时间范围。)
- 将接种的细胞在 37 °C、5% CO2 条件下孵育 24–48 小时,以使细胞恢复并贴壁。
- 为用溴脱氧尿苷(BrdU)进行脉冲标记,将 DMEM 替换为含有 10 μM BrdU 的新鲜培养基。细胞在 37 °C、5% CO2 条件下继续孵育 1 小时,以使 BrdU 掺入 DNA 中。务必保留一孔细胞不加处理,作为阴性对照。
- 移除脉冲标记培养基,并用 1× PBS 快速冲洗细胞。
- 加入新鲜生长培养基(不含 BrdU),并将细胞继续在 37 °C、5% CO2 条件下孵育,直至达到合适的收获时间点。
2. 收获与固定
- 步骤 1.3 中未经处理的细胞被视为零时间点。该样本可与 BrdU 处理后立即收集的 1 小时时间点样本一同收获。
- 收获细胞时,移除培养基,并用 1X PBS 清洗培养板一次。
- 用胰蛋白酶消化细胞,将其收集至培养基中,随后在 1500 rpm 条件下离心 5 分钟以沉淀细胞,弃去上清液。
- 将 1–10 × 106 个细胞用 5 ml 冰冷的 1X PBS 洗涤一次,于 1500 rpm 离心 5 分钟,弃去上清液。
- 将细胞沉淀重悬于 100 μl 冰冷的 PBS/1% FBS 中。在 PBS 中添加 1% FBS 有助于防止细胞聚集。
- 将上述细胞逐滴加入 5 ml 预冷至 -20 °C 的 70% 乙醇中以固定细胞。
- 冰上孵育 30 分钟,或在 4 °C 过夜保存。此步骤是暂停收集各时间点样本的理想节点。样本可在乙醇中保存数天,以便后续统一进行实验流程的其余步骤。
3. BrdU 和 PI 染色
- 通过离心沉淀细胞,1500 rpm 离心 5 分钟。
- 去除固定液,但保留约 50 μl 用于通过涡旋振荡松散沉淀。
- 为使 DNA 变性,边涡旋振荡边逐滴缓慢加入 1 ml 2N HCl/Triton X-100。在室温下孵育样本 30 分钟。
- 将样本以 1500 rpm 离心 5 分钟沉淀细胞。吸除并弃去上清液。
- 用 1 ml 0.1 M 硼砂溶液(pH 8.5)重悬细胞沉淀,以中和变性步骤。
- 以 1500 rpm 离心细胞 5 分钟。吸除并弃去上清液。
- 用 75 μl BrdU 染色混合液(50 μl 0.5% Tween 20/1% BSA/PBS + 20 μl FITC 标记的抗 BrdU 抗体 + 5 μl 10 mg/ml RNase)重悬细胞沉淀。
- 在避光条件下于室温孵育 45 分钟。
- 为沉淀细胞,将样本以 1500 rpm 离心 5 分钟。吸除并弃去上清液。
- 用含 5 μg/ml 碘化丙啶的 1 ml PBS 重悬细胞沉淀。
4. 流式细胞术
- 分析细胞时,需要配备488 nm激光器及相应滤光片的流式细胞仪。还需使用CellQuest等分析软件,以生成下文所述的图谱。
- 将样本上机进行流式检测时,需创建前向散射(SSC-H)对侧向散射(FSC-H)的散点图,以确认细胞大小分布的合理性(图1A)。这两个参数均采用线性刻度绘制。
- 同时查看FL3-H(PI染色)对FL2-W的图谱(图1B)。该图用于设定门控(R3),以分离出细胞周期中呈正常分布模式的细胞亚群。通常,该分布模式表现为两个细胞聚簇,分别对应PI染色的2N和4N DNA含量,代表细胞周期的G1期和G2期。位于这两个聚簇之间的细胞链代表正在进行DNA复制的S期细胞。
- 创建来自步骤4.3的门控细胞(R3)图谱,以FL1-H(FITC,对数图)为纵轴,PI(线性图)为横轴(图1C)。该图将用于根据1.1中所述的各种对照设置其余参数,并用于采集分析所需的数据。
- 将仅用PI染色的样本上机检测。调节增益使G1峰位于横轴约200处。在PI染色的直方图中可更清晰地观察该位置。
- 第二个对照为仅用BrdU染色的样本,在流式细胞仪上运行该样本。调节增益,使细胞的两个群体(BrdU阳性与BrdU阴性)在图谱中清晰可见。理想情况下,BrdU阴性细胞应位于10-1稍下方。
- 最后一个对照为BrdU/PI双阴性样本。运行该阴性对照,以确认在图谱的上方或右侧象限中无细胞出现。
- 在完成上述各图谱参数设置后,流式细胞仪即完成校准,可开始检测BrdU和PI染色的细胞。每次采集至少需读取10,000个位于正确PI区段(参见步骤4.3)的门控细胞。
- 分析采集的数据时,可使用FlowJo或FacsDiva等软件。上述各类图谱均可在这些程序中重建,并进行定量与统计分析。
- 分析的最终步骤包含多个连续操作。通过在PI对FL2-W图谱中门控PI阳性的细胞,再创建FITC对PI的图谱,可区分出处于周期中的细胞群体。从该图谱中进一步设定门控,分离BrdU阳性细胞群体。将该特定群体以PI为横轴绘制直方图,可追踪细胞周期进程的时间变化。通过绘制G1或G2 DNA含量的BrdU阳性细胞数量随时间的变化曲线,可进一步可视化该动态过程。
5. 代表性结果
正常周期性增殖的细胞经碘化丙啶染色后,在G1期和G2期分别出现明显的峰,对应于含有2N和4N DNA含量的细胞(图2)。通过BrdU脉冲标记,可选择性地标记正在活跃合成DNA的细胞亚群(即S期细胞)。在去除BrdU试剂后不久,所有被标记的细胞均处于S期(图3)。通过将标记时间限制在短暂的脉冲阶段,即可追踪这一已明确区分的细胞亚群在细胞周期后续各阶段中的动态变化。在图3的1小时时间点上,可观察到G1期和G2期峰的明显缺失,从而直观地体现这一现象。
BrdU 标记步骤还可提供额外信息。不仅可以测量处于活跃分裂状态的细胞比例,还可以估算两个样本之间细胞周期各阶段的分布情况。在去除 BrdU 试剂后,以相等时间间隔收集细胞,可追踪细胞继续循环、进入 G2 期,并最终完成原始细胞的分裂,最终产生具有 G1 期 DNA 含量的 BrdU 阳性子代细胞(图 4)。图 5 提供了细胞周期时相定量与动力学分析的一个示例。

图 1. (A)代表性 mcf7 细胞群体的前向散射(FSC)与侧向散射(SSC)散点图。(B)代表性 mcf7 细胞群体的碘化丙啶(PI)与脉冲宽度(FL-W)散点图。图中显示设门(R3)以在最终分析中排除细胞双联体。细胞双联体通过激光束所需时间更长,因此其脉冲宽度大于单个细胞,可据此从分析中排除。(C)代表性 mcf7 细胞群体的碘化丙啶(PI)与异硫氰酸荧光素(FITC,BrdU)散点图。图中显示设门(R4)仅包含 FITC(BrdU)阳性细胞。

图2. 正常周期性增殖细胞总群体的代表性直方图。

图3. 在撤除 BrdU 脉冲标记后1小时收集的细胞经 FITC(BrdU)阳性门控后的直方图。在撤除标记后的早期时间点,BrdU 阳性细胞的 PI 谱图显示其 DNA 含量与处于细胞周期 S 期的细胞一致,证实了仅在 DNA 合成期间对细胞进行了成功标记。

图4. 比较结直肠癌细胞系HT29(A)和LS180(B)以及乳腺癌细胞系mcf7(C)之间的细胞周期进程动力学。在撤除BrdU脉冲后,每隔1小时收集细胞,持续8小时。本实验中,我们观察到结直肠癌细胞系LS180在细胞周期G2期的进程明显加快。比较两种结直肠癌细胞系的动力学特征,LS180细胞在BrdU处理后4小时(T=4h)已出现明显的G1峰,而HT-29细胞系在同一时间点则未出现该峰。与两种结直肠癌细胞系相比,mcf7细胞的周期进程速率显著减慢。点击此处查看高清大图。


图 5. (A)BrdU 标记的癌细胞的细胞周期时相定量分析。采用 Dean/Jett/Fox 算法对 HT29、LS180 和 mcf7 细胞系(图中以绿色表示)进行分析。各样本所得的细胞周期时相分布以各时相中 BrdU 阳性细胞占总阳性细胞的百分比表示。仅展示各细胞系的部分时间点,因为部分较早时间点的分析结果无效。在这些较早的时间点,所有 BrdU 阳性细胞均处于 S 期,因此缺乏明显的 G1 和 G2 峰,而这些峰是算法应用所必需的。(B)癌细胞的直方图,显示细胞通过细胞周期 G2/M 时相的动态过程。LS180 细胞通过 G2/M 时相的速度最快,其次是 HT29 和 mcf7 细胞。点击此处查看高清大图。
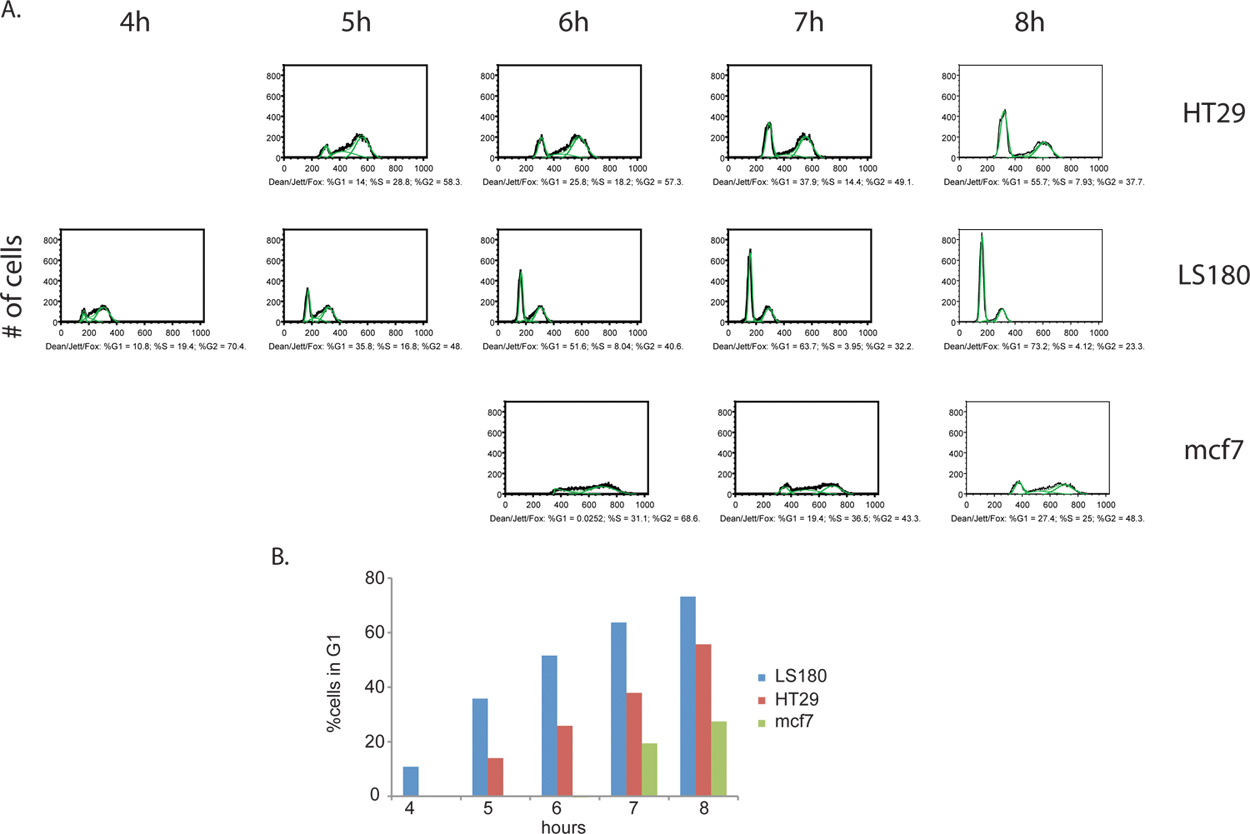

图 S1. 流式细胞术对照。MCF7 细胞显示为:(A) 阴性对照,细胞未用 PI 或 BrdU 染色;(B) 仅用 PI 染色;(C) BrdU-FITC 标记的样本。

图S2. 示意图显示PI与FITC(BrdU)荧光发射光谱之间的关系。荧光通道1(FL1,用于FITC)和荧光通道3(FL3,用于PI)的光谱采集窗口分别在相应方框中示出。FL1与FL3检测之间无荧光探针光谱重叠。显然,当分别在FL1和FL3通道中采集PI与FITC-BrdU共标记细胞的实验数据时,无需进行荧光补偿。荧光光谱数据来源于BD BioSciences网站:http://www.bdbiosciences.com/research/multicolor/spectrum_viewer。点击此处查看高清图。
访问受限。请登录或开始试用以查看此内容。
讨论
通过结合流式细胞术与溴脱氧尿苷(BrdU)掺入法,我们具备了研究细胞周期动力学所需的必要工具。BrdU能够作为胸腺嘧啶核苷类似物的独特性质,使其可用于定量分析增殖细胞的DNA含量。在细胞周期的合成期(S期),BrdU被掺入正在延伸的子代DNA链中,这一特性使得研究人员能够追踪一群增殖细胞,从S期的DNA复制,经过G2期的生长阶段,最终进入细胞分裂。子代BrdU阳性细胞可被持续追踪,直至细胞分裂导致BrdU标记被稀释到信号降低至背景水平为止。
利用碘化丙啶测定总DNA含量,我们能够追踪细胞周期从S期→G2/M期→G1期的进程。在多种应用中,尤其是涉及细胞周期特异性DNA损伤诱导药物的临床前研究,或在药物开发过程中确定新化合物对不同细胞周期阶段敏感性时,监测细胞周期速率的能力具有重要意义和实用价值11。采用代谢标记技术最明显的优势在于无需使用化学方法对细胞进行同步化处理。由于大多数诱导细胞周期阻滞的化学处理本身具有基因毒性,因此在这些化学物质存在的情况下,难以准确解析新化合物对细胞周期敏感性的影响。
我们通过...
访问受限。请登录或开始试用以查看此内容。
披露
我们没有需要披露的内容。
致谢
感谢不列颠哥伦比亚大学生物医学研究中心的Andy Johnson在FACS分析方面提供的帮助。Wong实验室的癌症研究经费由加拿大癌症协会研究所(运行资助#019250)以及不列颠哥伦比亚大学药学院研究再投资资金提供。JMYW获得加拿大研究讲席计划和Michael Smith健康研究基金会职业发展计划的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 溴脱氧尿苷 | BD Biosciences | 55089 | |
| 碘化丙啶 | Sigma-Aldrich | 287075 | 1mg/ml 储存液 |
| FITC 标记抗 BrdU 抗体 | BD Biosciences | 347583 | |
| 四硼酸钠 | Fisher Scientific | S80172 | 0.1M,pH 8.5 |
| FACS Caliber | BD Biosciences |
参考文献
- Musgrove, E. A., Caldon, C. E., Barraclough, J., Stone, A., Sutherland, R. L. Cyclin D as a therapeutic target in cancer. Nat. Rev. Cancer. 11, 558-572 (2011).
- Molchadsky, A., Rivlin, N., Brosh, R., Rotter, V., Sarig, R. p53 is balancing development, differentiation and de-differentiation to assure cancer prevention. Carcinogenesis. 31, 1501-1508 (2010).
- Dickson, M. A., Schwartz, G. K. Development of cell-cycle inhibitors for cancer therapy. Curr. Oncol. 16, 36-43 (2009).
- Banfalvi, G. Cell cycle synchronization of animal cells and nuclei by centrifugal elutriation. Nat. Protoc. 3, 663-673 (2008).
- van Opstal, A., Boonstra, J. Inhibitors of phosphatidylinositol 3-kinase activity prevent cell cycle progression and induce apoptosis at the M/G1 transition in CHO cells. Cell Mol. Life Sci. 63, 220-228 (2006).
- Gasnereau, I. Flow cytometry to sort mammalian cells in cytokinesis. Cytometry. A. 71, 1-7 (2007).
- Harper, J. V. Synchronization of cell populations in G1/S and G2/M phases of the cell cycle. Methods Mol. Biol. 296, 157-166 (2005).
- Pedrali-Noy, G. Synchronization of HeLa cell cultures by inhibition of DNA polymerase alpha with aphidicolin. Nucleic Acids Res. 8, 377-387 (1980).
- Merrill, G. F. Cell synchronization. Methods Cell Biol. 57, 229-249 (1998).
- Fleisig, H. B., Wong, J. M. Telomerase promotes efficient cell cycle kinetics and confers growth advantage to telomerase-negative transformed human cells. Oncogene. , (2011).
- Cai, D., Byth, K. F., Shapiro, G. I. AZ703, an imidazo[1,2-a]pyridine inhibitor of cyclin-dependent kinases 1 and 2, induces E2F-1-dependent apoptosis enhanced by depletion of cyclin-dependent kinase 9. Cancer Res. 66, 435-444 (2006).
- Pozarowski, P., Darzynkiewicz, Z. Analysis of cell cycle by flow cytometry. Methods Mol. Biol. 281, 301-311 (2004).
- Sherwood, S. W., Rush, D. F., Kung, A. L., Schimke, R. T. Cyclin B1 expression in HeLa S3 cells studied by flow cytometry. Exp. Cell Res. 211, 275-281 (1994).
访问受限。请登录或开始试用以查看此内容。
重印与许可
标签
