本文详细描述了一种在小鼠胚胎发育第14.5天(E14.5)对大脑皮层和海马体进行子宫内电穿孔的实验方案。我们还证明,该方法是研究这两个脑区中树突和树突棘的有力工具。
本文内容
摘要
摘要
子宫内电穿孔(IUE)已成为研究胚胎神经系统不同区域发育的强有力技术1-5。迄今为止,该工具已被广泛用于研究细胞增殖、分化和神经元迁移的调控,尤其是在发育中的大脑皮层中6-8。本文详细介绍了我们在子宫内对大脑皮层和海马体进行电穿孔的实验方案,并提供了证据表明该方法可用于研究这两个脑区中的树突和树突棘。
原代培养神经元的可视化与操控有助于深入理解树突、树突棘及突触发育过程中所涉及的机制。然而,体外培养的神经元并未暴露于正常发育过程中可能影响树突和/或树突棘形成与维持的全部生理信号。我们对树突和树突棘结构的认知 在体 在野生型或突变型小鼠中的研究结果主要来自高尔基-考克斯染色法的观察 9然而,高尔基染色被认为具有不可预测性。实际上,神经元细胞群和纤维束的标记是随机的,某些区域常常被完全染色,而相邻区域则完全无染色。近期研究表明,荧光载体的子宫内电穿孔(IUE)是一种研究突变型/野生型小鼠树突、树突棘以及突触的颇具吸引力的替代方法 10-11 (图1A此外,与小鼠基因敲除模型的构建相比,子宫内电穿孔(IUE)是一种快速实现特定细胞群体在特定时间窗口内进行基因功能获得和功能缺失研究的方法。同时,IUE已成功结合可诱导的基因表达系统或可诱导的RNA干扰(RNAi)技术,以进一步精确控制目标基因或短发夹RNA(shRNA)的表达时间。 12因此,IUE 的这些优势为研究基因表达/抑制对特定脑结构中树突和树突棘的影响开辟了新的维度图1B)而且在发育的特定时间点上(图1C).
最后,IUE 提供了一种有效的工具,可用于鉴定参与树突、棘突和/或突触发育的基因之间的功能相互作用。事实上,与其他基因转移方法(如病毒)相比,在同一细胞群体中同时组合多种 RNAi 或转基因的操作更为简便。
总之,体内电穿孔(IUE)是一种强大的方法,已为揭示脑功能和脑疾病相关的分子机制做出了贡献,同时也应在树突和树突棘的研究中具有重要应用价值。
方案
在英国,小鼠的饲养、繁殖和处理均遵循内政部根据《1986年动物(科学程序)法案》批准的指南进行。
1. 准备:DNA 溶液与针头
- 使用无内毒素大提试剂盒纯化质粒DNA。将质粒DNA用纯水配制成所需浓度的溶液,并加入快绿染料(终浓度为0.05%),以便观察注射过程。电穿孔效率高度依赖于DNA浓度,通常使用的浓度为1 μg/μl。该浓度足以清晰观察转染的神经元,同时不影响其正常发育。然而,根据质粒载体中所用启动子的类型(如巨细胞病毒启动子/增强子表达水平较低,而巨细胞病毒早期增强子与鸡β-actin启动子融合的CAG启动子表达较强)、表达蛋白的大小及其稳定性,可对DNA浓度进行调整(范围为0.25 μg/μl至5 μg/μl)。
- 使用微量移液器拉制仪拉制玻璃针。
2. 手术准备
- 将手术器械和磷酸盐缓冲液(PBS)进行高压灭菌。
- 用 PBS 配制镇痛溶液(布托啡诺,Vetergesic,终浓度为 30 μg/ml)。称量怀孕小鼠体重,并在手术前至少 30 分钟皮下注射 0.1 mg/kg 的 Vetergesic。在此期间,准备手术区域:打开加热垫和恢复舱,将无菌 PBS 置于温水浴中,所有无菌器械和材料放置在无菌手术单上。将铂电极放入盛有 PBS 的烧杯中,并连接至电穿孔仪。使用微量加样吸头将 DNA 溶液吸入针头,将针头连接至毛细管固定器,并用镊子夹断针头尖端。
3. DNA注射与电穿孔前的手术操作
- 使用麻醉诱导室,以氧气(2 L/min)为载体,通过异氟烷麻醉一只怀孕小鼠(E14.5–E15.5)。等待动物失去翻正反射。
- 将动物转移至“术前”面罩。在每只眼睛上涂抹一滴眼用凝胶,以防止母鼠在全身麻醉期间发生角膜溃疡。使用电动剃刀剃除腹部毛发。用氯己定擦拭剃毛区域一次,以清除飘落的毛发。
- 将动物转移至手术区域的第二个面罩。将小鼠背部朝下放置于加热垫上。当足底反射消失时,开始手术。
- 佩戴口罩和无菌手套。用无菌手术巾(腹部位置留有小孔)覆盖动物,以防止未剃毛和未消毒的皮肤区域污染组织和器械。用氯己定对剃毛区域至少消毒三次,每次使用新的无菌棉签。使用手术刀沿腹中线做一纵向切口(长约2.5 cm),切开皮肤。使用剪刀沿白线(主要由胶原结缔组织构成的白色条带)对腹肌做相似的切口。
- 选择最容易操作的胚胎,将环形镊置于两个胚胎之间,小心地将胚胎链从腹腔中拉出。此后,始终使用无菌预热的PBS保持胚胎湿润。
观察时无需使用显微镜。
4. DNA 注射与电穿孔
- 从最外侧的胚胎开始操作,以便更容易追踪哪些胚胎已进行电转染。操作时不要过度牵拉胚胎,以免增加出血风险。使用环形镊子调整胚胎在羊膜囊内的位置,并将胚胎头部稳定在镊子环之间。轻轻挤压,使胚胎更贴近子宫壁。
- 另一只手握住毛细管固定器,小心地将针头插入半球中部,以靶向侧脑室。踩下脚踏开关,注入约 1 μl 混有快绿(Fast Green)的 DNA 溶液(若用于树突研究,则注入少于 1 μl)。应观察到绿色染料充满侧脑室。关键步骤:- 针头的锋利程度至关重要,以确保能顺利刺穿子宫壁。需尽量减少针头在子宫壁表面及进入脑室后的移动,否则会导致穿刺孔扩大,引起羊水泄漏和胚胎死亡。避免刺破子宫壁中的血管,否则会引起出血并导致胚胎死亡。
- 注入侧脑室的 DNA 体积不宜过大,否则会诱发脑积水(在 E14.5 时不得超过 2 μl)。DNA 注入体积应根据实验目的进行调整。通常大多数实验使用 1 μl,而进行树突和树突棘分析时则需要更小的体积(约 0.5 μl)。这是因为需要仅靶向少数孤立细胞,以便观察和测量电转染神经元的树突分支结构。 - 将电极置于胚胎头部两侧,进行皮层电转染时,正极(+)电极板应放在与注射侧脑室同侧;进行海马电转染时,则应放在对侧(图 2)。随后施加五个 30V 的电脉冲(每个脉冲持续 50 毫秒),间隔 1 秒。关键步骤:避免电流穿过胎盘,否则会导致胚胎死亡。
可对怀孕小鼠体内的所有胚胎进行电转染,通常使用相同的 DNA 构建体以避免混淆。然而,手术时间过长会降低胚胎存活率。腹腔开放时间不应超过 30 分钟。
5. 电穿孔术后手术
- 电转胚胎后,向腹腔内加入 PBS,并用环形镊子将子宫角复位至原始位置。使用 Vicryl 可吸收缝线缝合腹壁和皮肤。
- 将动物置于恢复室中直至苏醒(通常为 5-10 分钟),然后转移到放置在加热垫上的笼子中。
6. 术后处理
观察小鼠行为以评估疼痛、痛苦或不适,并在手术后24 h和48 h称量动物体重。如有需要,可给予镇痛药以减轻疼痛和不适。
7. 组织处理
根据实验要求,在胚胎期或出生后阶段收集电转胚胎或幼崽。
- 对于胚胎期的分析(例如研究细胞增殖或迁移):
通过颈椎脱位法处死母鼠并取出胚胎。在断头后,根据荧光双目显微镜透过颅骨观察到的荧光信号强度和位置,挑选出转染效果良好的脑组织。将脑组织从颅骨中解剖出来,用4%多聚甲醛固定过夜,随后在20%蔗糖/PBS溶液中浸泡过夜。包埋于OCT包埋剂中,在-80 °C下冷冻,使用冷冻切片机进行切片。
- 对于出生后阶段的分析(例如用于研究树突和树突棘):
使用戊巴比妥钠(40–60 mg/kg)经腹腔注射麻醉幼鼠或成年小鼠,随后用PBS进行经心脏灌注,接着使用含4%多聚甲醛(PFA)的PBS灌注。取出脑组织并置于4% PFA中过夜后固定。在PBS中洗涤后,使用振动切片机对脑组织进行切片(树突分析切片厚度为100 μm)。使用厚度为0.16–0.19 mm的盖玻片,将切片封片于Aqua Poly/mount封片剂中,用于树突和树突棘的成像。
8. 代表性结果
图3展示了在大脑皮层(图3A, B)、海马CA1区(图3C, D)以及海马齿状回(图3E, F)中进行电穿孔的细胞示例。在胚胎14.5天(E14.5)时,对野生型小鼠使用GFP质粒(pCA-b-EGFPm5 silencer 3)进行电穿孔,并在出生后第14天(P14)取脑组织。通过注射少量DNA溶液(0.5 μl或更少,浓度为1 μg/μl),可标记少数细胞,从而能够在较低倍镜下观察孤立的GFP+细胞的树突分支结构(图3),并在更高放大倍数下观察其树突棘(图4)。
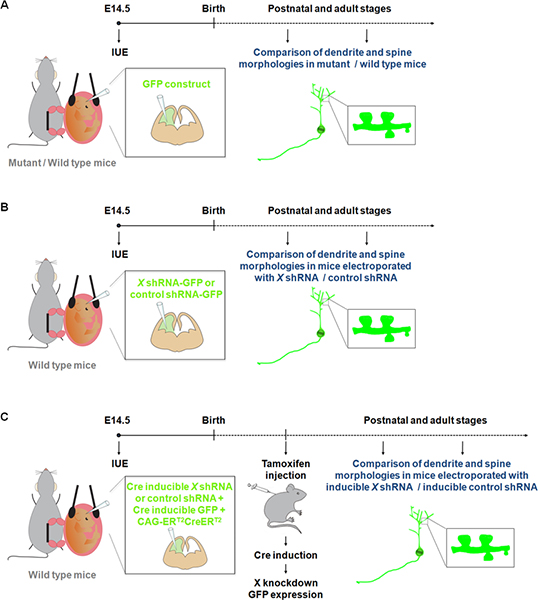
图 1. 可用于研究树突和树突棘的电穿孔实验方案示意图。(A)转染 GFP 载体,用于比较野生型与突变型小鼠中的树突和树突棘。(B)转染 GFP-shRNA(GFP 由同一载体表达),用于比较经特异性针对目标基因(X)的 shRNA 载体或对照 shRNA 载体电穿孔处理的小鼠中的树突和树突棘。(C)宫内电穿孔(IUE)可与 Cre 诱导系统联合使用,以将 shRNA 的表达限制在特定时间窗口。在本实验中,将一个表达可被 4-羟基他莫昔芬激活的 Cre 重组酶(CAG-ERT2CreERT2;1 μg/μl)10 的载体,与一个以 Cre 依赖方式表达特异性 shRNA 的载体(1 μg/μl)以及一个重组指示载体(CALNL-GFP 构建体,GFP 表达由 Cre 诱导;1 μg/μl)10 共同进行电穿孔。通过提高 shRNA 的浓度以及增加 CAG-ERT2CreERT2 的浓度,可提高基因敲低效率。

图 2. 电穿孔的空间控制。该图显示了根据DNA注射位点放置板状电极的位置,以靶向大脑皮层或海马体。

图3. 树突分支的可视化 在子宫内 大脑皮层和海马体中的电穿孔细胞。(A,B)冠状切面显示大脑皮层中的GFP+锥体细胞,(C,D)海马体CA1区的锥体细胞,以及(E,F)P14时期齿状回的颗粒细胞。在E14.5时电穿孔导入GFP质粒(pCA-b-EGFPm5 silencer 3)。高倍放大图像(B,D,F)表明,子宫内电穿孔(IUE)是可视化树突的一种高效方法。比例尺代表 50 μm (B、D 和 F), 150 μm (A,C,E)。

图4. P14期神经元树突棘的电穿孔可视化 在子宫内 在E14.5时使用表达GFP的载体转染。(A,B)海马锥体神经元基底树突棘的高倍镜图像。标尺代表 5 μm (A)和 2 μm (B)。
讨论
子宫内电穿孔(IUE)是一种强大的工具,不仅可在空间上,也可在时间上操控基因表达。本文展示了该技术可用于可视化并进行遗传学操控小鼠大脑皮层和海马中的树突及树突棘。除了前述优点外,值得注意的是,与高尔基染色法相比,IUE可与免疫组织化学或原位杂交相结合,从而能够对电穿孔细胞进行表型鉴定。此外,尽管该操作具有一定侵入性,但并不会引起明显的大脑畸形。在细胞水平上,IUE也不会改变电穿孔神经元的电生理特性13。虽然我们的演示重点在于树突和树突棘形态的可视化,但在E14.5时期对皮层或海马神经元进行IUE也可用于研究其他发育过程,例如轴突的形成与导向。此外,类似的实验方案也可应用于胚胎发育的其他阶段,以靶向不同的细胞群体。例如,可在E18.5时期实施一种发育晚期的皮层电穿孔范式,以驱动星形胶质细胞前体细胞中的基因表达1。类似地,虽然在E14.5时期对海马进行电穿孔可同时靶向CA1-CA3区锥体神经元前体和齿状回颗粒细胞前体,但在较晚时期进行海马电穿孔(E18.5或出生早期)则可靶向不同的齿状回颗粒前体细胞14。在此情况下,可增加DNA的注射体积以及电流强度。
通过体内电穿孔(IUE)导入的转基因似乎保持在附加体状态,因此在细胞连续分裂后会从细胞中丢失。然而,在有丝分裂后的细胞(如神经元)中,这些附加体形式的转基因在电穿孔后可长期保持活性达数月之久,从而允许进行长期研究13,15。在本研究中,我们观察到出生后长达7周时仍存在明亮的GFP+细胞(这是我们分析的最晚时间点),表明利用IUE在胚胎期靶向皮层或海马神经前体细胞,可使转基因从早期发育阶段持续表达至成年阶段。
该技术目前的一个局限性在于,难以精确控制电穿孔细胞的总数。然而,通过减少注射的DNA溶液体积,我们已证明可以标记少量细胞,并能够观察孤立的GFP+细胞的树突分支及其树突棘。此外,还可通过调整电穿孔参数(如电流强度、脉冲次数或电穿孔电极板的直径)来调节转染区域的范围。
总的来说,IUE 是一种易于实施、快速且高效的研究树突和树突棘的方法 体内.
致谢
作者感谢 Kathleen Mathers 博士、Jean-Philippe Mocho 博士和 Yolanda Saavedra Torres 博士在实验实施过程中提供的帮助 在子宫内 在无菌操作条件下进行电穿孔实验,以及 Hayley Wood 在绘制插图过程中提供的帮助。
E.P. 获得了欧洲生物化学学会联合会(FEBS)的长期博士后奖学金和英国医学研究理事会(MRC)的职业发展奖学金资助;M.A.H. 获得了惠康基金会(Wellcome Trust)向 Elizabeth Fisher 和 Victor Tybulewicz 提供的资助(编号:080174/B/06/Z);H.W. 获得了欧洲分子生物学组织(EMBO)的长期博士后奖学金;R.A. 获得了英国医学研究理事会(MRC)的研究生奖学金。本研究工作得到了惠康基金会项目资助(编号:086947/Z/08/Z)以及英国医学研究理事会资助(U117570528)的支持,资助对象为 F.G.。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 注射用针头和DNA溶液的制备 | |||
| 内毒素清除型质粒大提试剂盒 | Qiagen | 12362 | |
| 快绿染料 | Sigma | F-7258 | |
| 硼硅酸盐玻璃毛细管 1.0 mm 外径 × 0.58 mm 内径 | Harvard Apparatus | 30-0016 | |
| 微量加样器吸头 | Eppendorf | 5242956003 | 适用于 Eppendorf 移液器 0.5 μl–10 μl / 2–20 μl |
| 手术材料 | |||
| 超薄虹膜剪 | Fine Science Tools | 14088-10 | |
| 弯头镊 | Fine Science Tools | 91197-00 | |
| 环形镊 | Fine Science Tools | 11103-09 | |
| 持针器 | Fine Science Tools | 12002-12 | |
| Graefe 镊 | Fine Science Tools | 11050-10 | |
| 薇乔可吸收缝线 | Ethicon Inc (Johnson Johnson) | W9074 | |
| 无菌手术单(30 cm × 45 cm) | Buster | 141765 | |
| 无菌棉签 | Shermond | HUBY-340 | |
| 棉签棒 | Clean Cross Co., Ltd | 1860 | |
| 布托啡诺(Vetergesic) | Alstoe Animal Health | ||
| 氯己定 | Vetasept | XHG007 | |
| 眼用凝胶 Viscotears | Novartis | ||
| 异氟烷 | Abbott Laboratories | B506 | |
| Pentoject,戊巴比妥钠 20% | Animalcare | ||
| 电穿孔 | |||
| 电穿孔仪 | BTX | ECM830 | |
| 铂金镊式电极(5 mm) | BTX, Harvard Apparatus | 45-0489 | |
| Femtojet 微注射仪 | Eppendorf | 5247000030 | |
| Femtojet 微注射仪脚踏控制器 | Eppendorf | 5247623002 | |
| 毛细管固定架 | Eppendorf | 5176190002 | |
| 组织处理 | |||
| 多聚甲醛 | Sigma | P6148 | |
| 蔗糖 | VWR (Prolabo) | 27480.294 | |
| 显微镜载玻片 | ThermoScientific (Menzel-Gläser) | J1800AMNZ | |
| 盖玻片 | Menzel-Gläser | 22 × 50 mm #1.5 | |
| Aqua Poly/mount 封片剂 | Polysciences, Inc | 18606 |
参考文献
- Kolk, S. M., de Mooij-Malsen, A. J., Martens, G. J. Spatiotemporal Molecular Approach of in utero Electroporation to Functionally Decipher Endophenotypes in Neurodevelopmental Disorders. Front Mol. Neurosci. 4, 37(2011).
- Saito, T., Nakatsuji, N. Efficient gene transfer into the embryonic mouse brain using in vivo electroporation. Dev. Biol. 240, 237-246 (2001).
- Shimogori, T., Ogawa, M. Gene application with in utero electroporation in mouse embryonic brain. Dev. Growth Differ. 50, 499-506 (2008).
- Tabata, H., Nakajima, K. Efficient in utero gene transfer system to the developing mouse brain using electroporation: visualization of neuronal migration in the developing cortex. Neuroscience. 103, 865-872 (2001).
- Tabata, H., Nakajima, K. Labeling embryonic mouse central nervous system cells by in utero electroporation. Dev. Growth Differ. 50, 507-511 (2008).
- Castro, D. S. A novel function of the proneural factor Ascl1 in progenitor proliferation identified by genome-wide characterization of its targets. Genes Dev. 25, 930-945 (2011).
- Pacary, E. Proneural transcription factors regulate different steps of cortical neuron migration through Rnd-mediated inhibition of RhoA signaling. Neuron. 69, 1069-1084 (2011).
- Marteau, L. Angiopoietin-2 regulates cortical neurogenesis in the developing telencephalon. Cereb Cortex. 21, 1695-1702 (2011).
- Ramon Moliner, E. Comparative Methods in Neuroanatomy. , Springer. New york. (1970).
- Banks, G. T. Behavioral and other phenotypes in a cytoplasmic Dynein light intermediate chain 1 mutant mouse. J. Neurosci. 31, 5483-5494 (2011).
- Elias, G. M., Elias, L. A., Apostolides, P. F., Kriegstein, A. R., Nicoll, R. A. Differential trafficking of AMPA and NMDA receptors by SAP102 and PSD-95 underlies synapse development. Proc. Natl. Acad. Sci. U.S.A. 105, 20953-20958 (2008).
- Matsuda, T., Cepko, C. L. Controlled expression of transgenes introduced by in vivo electroporation. Proc. Natl. Acad. Sci. U.S.A. 104, 1027-1032 (2007).
- Navarro-Quiroga, I., Chittajallu, R., Gallo, V., Haydar, T. F. L. ong-term selective gene expression in developing and adult hippocampal pyramidal neurons using focal in utero electroporation. J. Neurosci. 27, 5007-5011 (2007).
- Nakahira, E., Yuasa, S. Neuronal generation, migration, and differentiation in the mouse hippocampal primoridium as revealed by enhanced green fluorescent protein gene transfer by means of in utero electroporation. J. Comp. Neurol. 483, 329-340 (2005).
- Ramos, R. L., Bai, J., LoTurco, J. J. Heterotopia formation in rat but not mouse neocortex after RNA interference knockdown of DCX. Cereb Cortex. 16, 1323-1331 (2006).
重印与许可
