原位 膜片钳记录用于对完整神经环路中神经元的电生理特性进行表征。在完整的 果蝇 遗传模型中的膜片钳技术具有挑战性,因为其中枢神经系统体积较小且被一层坚韧的鞘膜包裹。本文描述了去除鞘膜并清理神经元以进行后续膜片钳记录的操作步骤。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
较短的世代周期和简便的遗传操作技术使果蝇 Drosophila melanogaster 基础神经科学研究中一种优良的遗传学模型。离子通道是所有行为的基础,因为它们介导神经元的兴奋性。首个被克隆的电压门控离子通道是 果蝇 电压门控钾通道 Shaker1,2为了理解离子通道和膜兴奋性在神经系统功能中的作用,结合在 果蝇 与 原位 膜片钳记录。多年来,此类记录一直受限于细胞尺寸过小 果蝇 中枢神经系统。此外,由胶质细胞和胶原构成的坚固鞘膜成为膜片钳电极接触中枢神经元的障碍。去除该鞘膜是进行成年个体任意神经元膜片钳记录的必要前提 果蝇 中枢神经系统。近年来,科学家已能够开展 原位 成年大脑神经元的膜片钳记录3,4 胚胎的腹神经索5,6幼虫7,8,9,10,以及成年个体 果蝇11,12,13,14稳定的吉欧密封是获得良好膜片记录的主要前提,其关键在于膜片钳电极与细胞膜之间保持清洁的接触,以避免漏电流的产生。因此,在全细胞记录中 原位 成年个体的膜片钳记录 果蝇 神经元必须彻底清洗。第一步,需对神经节鞘进行酶解处理,并通过机械方法将其去除,以暴露目标细胞。第二步,需对细胞膜进行抛光处理,确保无胶质细胞层、胶原或其他物质干扰吉欧封接(giga-seal)的形成。本文介绍如何制备一个已鉴定的中枢神经元 黑腹果蝇 腹神经索,飞行运动神经元5(MN5)15),用于体细胞全细胞膜片钳记录。通过在MN5中特异性表达GFP,实现神经元的识别与可视化。本文不旨在解释膜片钳技术本身。
方案
以下描述不针对某一特定运动神经元,可适用于任何神经元。在本示例中,我们使用支配背侧纵肌(DLM)最背侧两根肌纤维的飞行运动神经元5(MN5)。为了识别和观察MN5,我们采用UAS/GAL4系统在飞行运动神经元(以及少数其他神经元)中表达GFP。
1. 解剖成年 Drosophila 以获取腹神经索(VNC)的背侧部分
- 解剖一只成年个体 果蝇 背腹面朝上,沿其背侧中线置于硅胶包被的培养皿(直径35 mm)中,具体方法见Ryglewski和Duch(2009)13)。该解剖过程的视频可通过 JoVE 在线获取(Boerner 和 Godenschwege16以下是解剖步骤的简要说明。
- 将成年果蝇置于冰上冷却约1分钟以进行麻醉。可将一个无食物的空果蝇小瓶预先在冰上冷却,然后将果蝇放入已冷却的小瓶中。使用剪刀去除翅膀和腿部。
- 将果蝇背侧朝上固定于涂有硅胶的培养皿中(我们使用直径35 mm培养皿的皿盖,内盛硅胶至边缘); 图1A、B用凡士林将塑料环(内径 9 mm,厚 1.3 mm)粘附于硅胶表面。
- 使用35 mm培养皿的皿盖有助于在水浸物镜观察下通过膜片钳玻璃微电极接近腹神经索(VNC),从而实现微电极的浅层插入,避免触碰培养皿壁。
- 塑料环可通过在薄塑料片(我们使用厚度为1.3 mm的塑料片)上钻孔制备。我们使用金属丝切割器定义环的外周轮廓,使其能够适配培养皿。
- 将果蝇浸入生理盐水(normal saline)中图1C;生理盐水成分(单位:mM):NaCl 128,KCl 2,CaCl2 1.8, MgCl2 4,HEPES 5,蔗糖约35,具体数值根据溶液的渗透压调整;用1 M NaOH将pH调至7.25,用蔗糖将渗透压调至290 mOsM。
- 沿背侧中线解剖动物,将大型背侧纵行飞行肌向两侧拉伸并用针固定,以暴露其下方的肠道、食管和腹神经索。移除肠道和食管后,腹神经索即被暴露图1D).
- 可选地,可在该步骤将果蝇断头图1E)。去除头部可更方便地使用酶和膜片钳电极,且在清洁胞体时不会干扰MN5树突(树突位于胞体后方) 图2B、C)。但是,如果实验设计需要,头部也可以保持完整(例如 研究下行输入对胸段运动神经元的影响)。此时,移液管可从后侧或侧侧(侧侧, 图 2A).
- 为在实验过程中快速更换生理盐水,可通过在解剖后的动物周围放置一个塑料环(内径 9 mm),并用凡士林将其粘附于培养皿上,以减小记录 chamber 的容积图1A、B;记录室的体积约为 ~200 μl).
- 然后将样品置于直立式固定载物台荧光显微镜上观察(我们使用蔡司Axioskop 2 FS plus,蔡司,德国),并采用高数值孔径(NA)物镜进行观察> 0.75),长工作距离(> 2 mm),40倍水浸物镜。灌流系统(盐水输入、盐水输出)、接地线以及酶移液管均插入记录室中(图1F - J,L).
2. MN5 的可视化观察(见图 2 和图 3),关闭头部
- 将培养皿安装在直立式固定载物台的落射荧光显微镜上。
- 调整培养皿位置,使果蝇的头部朝向电极夹持装置所在的一侧(图1)。
- 使用高倍率(40倍或更高)、高数值孔径的水浸物镜(数值孔径NA ≥ 0.75)和GFP滤光片来观察腹神经索(VNC)。为了在清洁过程中清晰观察细胞,我们使用40倍水浸物镜,其数值孔径为0.8(Olympus LUMPlanFl 40xW)或0.75(Zeiss W N-Achroplan 40x/0.8 M27)。为便于膜片钳电极接近,物镜的工作距离应不小于2 mm。
- 两个MN5运动神经元均位于中胸神经节的背侧表面,靠近中线,部分可能被明显的气管覆盖(图2和图3)。带有树突的MN5在荧光下呈现为弥散的绿色区域。清洁后胞体轮廓会变得更加清晰,但由于树突仍被组织覆盖,因此无法呈现锐利图像,而保持模糊状态(图2A、B)。
- 在我们的实验装置中,使用HBO 100荧光光源,该光源的输出强度不可调节。我们采用中性密度滤光片以避免组织暴露于过强的荧光照明(尤其是蓝光)下,否则可能导致光损伤并最终杀死细胞。我们使用的中性密度滤光片值为0.8。在整个清洁过程中不应出现荧光淬灭现象;若发生淬灭,说明光照强度过高,细胞已遭受光损伤。
- 若使用LED照明,实验人员需自行确定合适的光照强度。荧光淬灭是光损伤的征兆,必须避免。
3. MN5 可视化的替代方法
对于本实验应用而言,对细胞进行标记非常重要,例如通过靶向表达GFP来实现标记。或者,也可使用脂溶性染料DiI对这类神经元进行逆行标记。在此情况下,需用昆虫微细针将染料晶体插入飞行肌中,随后使用紫外光固化胶封闭伤口。
- 通过将少量DiI晶体(无需特定量)溶解于100 μl 70%乙醇中制备DiI储存液。该溶液可保存在-20 °C直至用完,反复冻融不会影响其性能。
- 用移液器吸取5 μl上述溶液滴加至未经处理的盖玻片上,等待乙醇完全挥发,此过程仅需数分钟。
- 将果蝇放入预冷的离心管中(将管子插入冰中冷却),并在冰上短暂冷却(低于1分钟)。将已冷却并处于麻醉状态的果蝇置于解剖显微镜下的冷却板上。
- 将果蝇居中放置并固定,确保在使用微细针戳刺时果蝇不会轻易移位。
- 使用两把镊子,一把用于夹持微细针,另一把用于压住果蝇身体。
- 使用较粗的镊子夹持昆虫用微细针,从盖玻片上刮取部分DiI,使微细针尖端附着DiI晶体(每次使用同一盖玻片的同一位置有助于在重复操作时使针尖携带更多染料)。针尖不宜过尖,否则容易弯曲,影响操作。
- 用带有DiI的微细针刺穿果蝇背侧胸部中央部位。背侧纵行飞行肌(DLM,每侧的肌纤维5和6)最背侧的两条肌纤维由运动神经元MN5支配。因此,将染料晶体准确放置于胸部中央,可确保两侧MN5均被标记,因为两侧DLM的肌纤维6均会受损并摄入染料。
- 染料应直接置于表皮下方。若插入过深,可能刺伤果蝇或同时标记其他神经元(e.g. MN1-4)。
- 重复上述操作,直至有足够量的染料(具体量取决于操作者的经验)被插入胸部。
- DiI不溶于水,因此不会溶解于肌细胞的细胞质中,必须“塞入”表皮下方。
- 另取一根微细针,蘸取一滴紫外光固化胶(我们将胶滴置于称量舟中)。
- 利用针尖所携带的胶封闭染料插入部位造成的伤口。
- 涂抹少量胶(仅需足够封闭伤口,无需覆盖整个胸部)后,使用紫外灯照射固化。我们采用两次、每次10秒的紫外光照射。
- 处理后的果蝇转移至装有新鲜培养基的果蝇管中。注意确保果蝇胸部的胶点不粘附管壁,以免果蝇被困。
- 染料需数小时才能到达靶神经元。由于DiI具有脂溶性,其沿细胞膜扩散而非通过细胞质运输。我们通常在下午处理果蝇,并过夜孵育。
- 次日进行膜片钳实验。与遗传表达的GFP相比,神经元的可见度会较低。
4. 用于清洗的酶移液管的制备
必须确保记录室中有稳定的生理盐水流动。应避免灌流液体体积的上升和下降,因为这会在实验过程中引起振动并导致偏移电位变化。需要相应地设置灌流和吸引。这使得溶液更换更加容易,从而在实验前快速洗脱蛋白酶以及在实验过程中快速更换药理学试剂变得尤为重要。
- 确保记录室的灌流(流速约为每分钟 2 ml)。可通过使用旋塞或特定直径的管路来调节流速(管路直径越大,流速越高)。记录室的容积应尽可能小,以保证室内溶液能够快速更换,从而迅速清除记录室中的蛋白酶和阻断剂。
- 记录室的容积取决于灌流系统的盐水出口(图 1)插入记录室的方式(当水浸物镜下降至浴槽中时)。
- 确保盐水出口的位置不会导致记录室液面持续上下波动(抽吸、上升、抽吸、上升),而是保持恒定(稳定抽吸)。我们通过持续、不间断的咕噜声来判断灌流是否稳定,该声音由持续从浴槽中抽吸盐水产生。
- 盐水的进液和出液端使用弯曲的皮下注射针头,连接细管路,并用橡皮泥固定在记录室附近(图 1F)。
- 拉制一个膜片电极,并在显微观察下轻微折断其尖端。使用洁净的精细镊子操作。在 40 倍水浸物镜下观察时,电极尖端直径应约为细胞胞体直径的 40% 至 70%。也可使用非常大的尖端(约等于或大于细胞直径),但由于毛细作用力,细胞体被撕脱的风险增加。若电极尖端过小(小于胞体直径的 10%),则容易堵塞,导致在清洁过程中需更换一个或多个新电极。
- 用含 2% 蛋白酶的 PBS 缓冲液或生理盐水填充电极,避免堵塞。
- 将酶电极插入电极夹持器中。为确保对施加压力的有效控制,夹持器必须密封良好。
- 将管路连接至电极夹持器的小型出口,并固定牢靠,使拉动管路自由端时不会影响已插入夹持器的电极。需在显微镜下检查是否存在移动。
- 在管路自由端插入一个塑料移液枪头(即自动移液器所用枪头,我们使用蓝色 1000 μl 枪头,但可根据个人偏好选择;其他规格也可使用),或插入带旋塞的注射器,以便对酶/膜片电极施加正压和负压。正压可通过向枪头吹气(将其作为吹管)或推动注射器活塞实现;负压则通过吸气(用嘴通过吹管吸)或拉动注射器活塞实现。
- 施加正压和负压的目的是松动并清除目标细胞周围的细胞和碎片。正压可将清洁电极中的酶液推出,并吹走中枢神经系统表面的碎片;负压则用于从腹神经索(VNC)上吸除碎片(类似真空吸尘器的作用)。
5. GFP标记的MN5的清洗(图3 和视频)
致读者:MN5在清洁前后的图像在图3中较难区分。这正是实际实验中所呈现的效果。需要经过一定训练才能学会辨别清洁与未清洁神经元之间的细微差异。请注意,这些细微差异在动态图像中更易观察。因此,视频比静态图像(图3)能提供更清晰的视觉印象。
- 在40倍水浸物镜下用亮光观察装有酶的移液管(图3B,白色箭头)。
- 聚焦于移液管尖端。若发生堵塞,尝试通过施加正压或负压将污物清除。若污物无法排出,则需重新制备一支含酶的移液管。
- 切换至荧光光源(图3A)。
- 小心降低酶移液管,并重新对焦,直至可见细胞体。
- 当酶移液管接近细胞体时,关闭灌流系统。
- 向细胞体方向短暂施加正压脉冲,使阻碍接触细胞的所有物质松动。此操作需持续进行,直至细胞体周围组织松脱。
- 同时将酶移液管向背侧移动,以吸取可能残留的碎片,这些碎片可能来自包裹腹神经索(VNC)的神经节鞘。在将样本安装至显微镜前的解剖过程中,该鞘可能已被部分或完全去除(情况并不总是如此)。
- 交替施加正压与负压,将酶移液管如同吸尘器一般使用,在细胞体周围进行清理。无需完全松动整个细胞体,仅清理胞体前部即可(或根据移液管接近胞体的方向,清理后部或侧部)。
- 持续执行此清洁步骤,直至细胞膜表面无可见碎片。
- 仅使用荧光光观察时,若细胞与周围组织之间无“阴影”或弥散性对比,则表明膜已清洁。高亮度蓝光下最易判断此状态。因此,可短暂增强光照强度(可通过移除中性密度滤光片实现)。需注意,常规HBO 100汞灯提供的强烈蓝光照射约1分钟即可导致光损伤,表现为细胞死亡后GFP信号逐渐减弱。
- 切换回亮光,清除在荧光光下无法观察到的细胞和碎片。注意:通过在亮光与荧光光之间切换,有助于观察气管结构及评估清洁程度。
- 当清洁过程完成且细胞体外观洁净后,重新开启灌流系统(若清洁过程持续超过3至5分钟,也应开启灌流并继续在稳定灌流条件下清洁),并关闭照明。
- 用生理盐水或后续实验所用溶液冲洗细胞约15至20分钟。为确保蛋白酶完全洗脱,至少应有40 ml溶液流经记录室。细胞表面残留的蛋白酶可能导致原本稳定的膜片钳记录过程中细胞突然死亡。
6. 电生理学
- 使用 Axopatch 200B 放大器(Molecular Devices, USA)进行传统的in situ全细胞膜片钳实验,电压钳和电流钳模式下记录;信号通过 Digidata 1320(Molecular Devices, USA)进行数字化,并使用 pClamp 10.2 软件进行分析。
- 膜片钳电极由硼硅酸盐玻璃毛细管使用垂直电极拉制仪(Narishige, PC-10)拉制而成。
- 电极尖端电阻分别为 5.8 至 6.2 MΩ(用于电流钳和钾电流记录)和 2.8 至 3.5 MΩ(用于钙电流记录)。尖端电阻取决于所使用的细胞内和细胞外溶液(详见13, 14)。
7. 代表性结果
清洁程序完成后,MN5 神经元即可进行in situ全细胞膜片钳记录(图3)。以下部分展示了使用上述清洁程序后,从 MN5 胞体记录到的典型电压钳和电流钳曲线。MN5 表达多种电压门控离子通道(另见13,14)。本文展示了电压门控钙电流(图4)、电压门控钾电流(图5)以及动作电位记录(图6)的示例。电压门控钙电流和钾电流通过相似的电压刺激程序诱发,但所用溶液不同,以确保仅被研究的离子通道能够通过电流(详见13,14)。所有其他主要的电压门控离子通道均已被阻断(电压门控钠通道使用 100 nM 河豚毒素——直接加入灌流液中,灌流暂停两分钟;钙通道使用 500 μM 氯化镉;钾通道使用 2 mM 4-氨基吡啶(4-AP)和 30 mM 氯化四乙基铵进行细胞外阻断,以及通过膜片钳电极内的细胞内灌流液加入 0.5 mM 4-AP、20 mM 溴化四乙基铵和 144 mM 氯化铯进行细胞内阻断(详见13,14)。动作电位记录通过向 MN5 胞体注入电流诱发(图6),未使用任何离子通道阻断剂12。
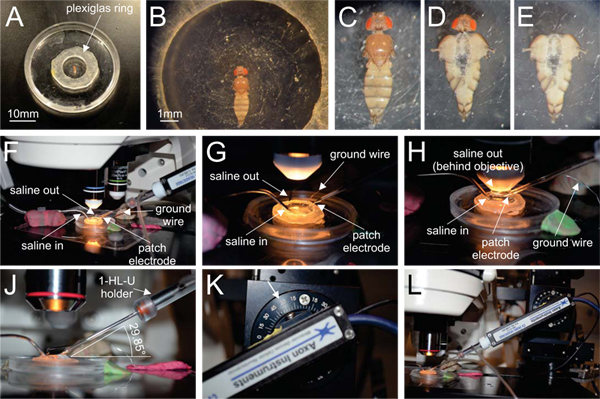
图 1. 清理装置示意图。 将果蝇固定于涂有聚二甲基硅氧烷(Sylgard)的35 mm培养皿盖内,在其中用凡士林将一个塑料环(内径9 mm,厚1.3 mm)粘附于底部(A,B)。将果蝇浸入生理盐水中后(C),沿背中线切开。移除肠道和食道以暴露腹神经索(D)。为更方便地接触胸部神经节,需去除头部(E)。将制备好的样本安装至直立式落射荧光显微镜后,将灌流系统(F,G,生理盐水进液口与出液口,左侧白色箭头)以及接地导线置于适当位置(F,G,右侧白色箭头)。在将水浸物镜(40倍,数值孔径0.8)浸入浴液后,再将充满酶的清理移液管置于适当位置(H)。为便于说明,图中提前展示了移液管的位置(F,G,右侧白色箭头)。酶移液管由1-HL-U型电极夹持器(J)固定,其进入记录腔的角度至关重要,需确保移液管不同时接触物镜和塑料环。该角度因实验装置而异,此处约为30°(见J中的示意图,K中的箭头)。图(L)展示了移液管在其连接于前置放大器头段的夹持装置中的排列方式。头段连接至电动显微操作器。点击此处查看高清大图。
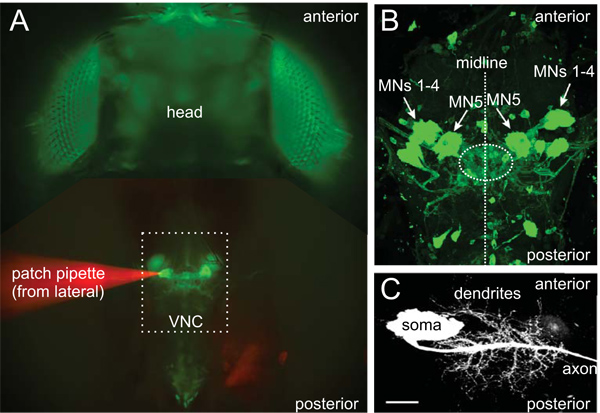
图 2. 腹神经索中的 MN5 神经元。 当利用运动神经元特异性的 GAL4 驱动子在 Drosophila 腹神经索(VNC)中遗传性表达 GFP 时,MN5 可根据其位置被轻易识别(A)。虚线矩形表示胸段神经节。为便于理解各结构的相对大小,图中显示一支清洁的膜片钳移液管从背纵飞行肌左侧接近左侧 MN5。为增强可视化效果,膜片钳移液管内填充了红色染料(葡聚糖-四甲基罗丹明,A)。对侧投射的 MN5 位于 VNC 中胸神经节背侧表面,分布在中线两侧(B 为共聚焦图像堆栈的投射视图)。同侧投射的 MN1-4 相对于 MN5 更靠外侧和前侧(B 中箭头所示)。两个 MN5 之间的虚线圆圈表示飞行运动神经元在神经 Neuropil 中的树突,包括 MN5(B)。B 中的 GFP 标记通过使用抗 GFP 抗体进行免疫组织化学染色而增强。通过细胞内(离子电泳)填充无色示踪剂神经生物素,并随后进行共聚焦成像,可清晰显示 MN5 形态的细节(C)。染色信号通过与荧光染料偶联的链霉亲和素显影。比例尺为 30 μm。

图3. MN5神经元清洁前与清洁后。 通过UAS/GAL4系统表达GFP实现对MN5神经元的可视化(A,C,见标签)。图中显示清洁程序前(A,B)和清洁后(C,D)的MN5神经元。每幅图像的左侧代表腹侧,右侧代表背侧。用于记录的神经元使用尖端破损、内含蛋白酶的膜片钳移液管进行清洁。酶处理移液管在图中仅轻微可见(A,B,见标签)。A图插图为下方MN5神经元的放大图像,显示酶移液管正接近细胞。在清洁程序之前,明场光下无法观察到MN5神经元(B)。如果气管覆盖了待研究的细胞,则需要将其去除。清洁程序完成后,细胞与其周围组织之间的对比度更清晰(C,下方MN5),现在可在明场光下观察到细胞(D)。使用明场照明时,移液管尖端更为清晰可见。放大图展示了虚线方框内的区域,其中MN5细胞体的边界以虚线圈出,以便更准确识别。明场下的可视化通常有助于判断清洁程度。
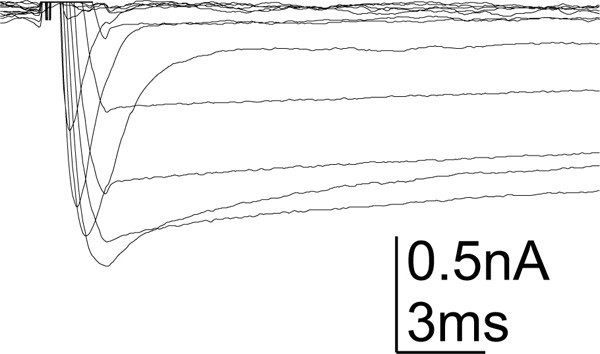
图4. MN5细胞中的钙电流。 从MN5细胞记录的全细胞钙电流示例。结果显示至少两种不同的钙电流:一种为低电压激活的瞬时性钙电流,另一种为持续性的高电压激活钙电流。实验从-90 mV的钳制电位开始,施加从-90 mV至+20 mV的电压阶跃以诱发电流。使用阻断剂抑制了大多数其他离子通道。为清晰起见,省略了伪迹(有关MN5钙电流的详细表征,请参见Ryglewski et al., 2012)。
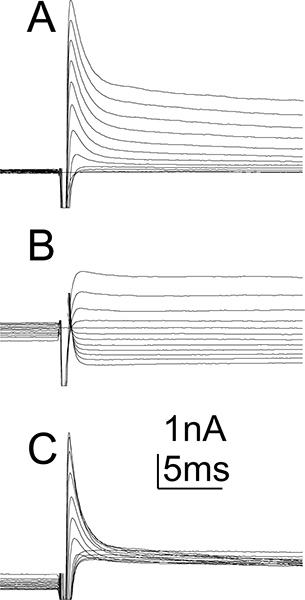
图 5. MN5 中的钾电流。 从 MN5 记录的全细胞钾电流的示例。所显示的电流包括钙激活钾电流,因未使用钙通道阻断剂。总钾电流(A)从 -90 mV 的保持电位诱发,而持续性钾电流(B)从 -20 mV 的保持电位诱发,以使瞬时钾电流失活。电压阶跃从 -90 mV 到 +20 mV 以 10 mV 递增施加。通过离线减去从 -90 mV(A)和 -20 mV(B)保持电位诱发的钾电流,可分离出纯瞬时钾电流(C)。电压门控钠通道已被阻断。为清晰起见省略了伪迹(有关 MN5 电压及钙激活钾电流的表征,参见 Ryglewski 和 Duch,2009)。
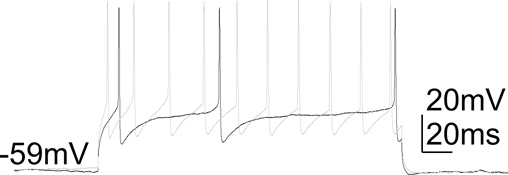
图6. MN5神经元表现出的放电模式。通过胞体注入持续200 ms的电流(0.4 nA,黑色;0.5 nA,灰色)在MN5神经元中诱发的放电模式示例记录。静息膜电位为-59 mV。未使用离子通道阻断剂。(有关MN5放电模式的电流钳分析,请参见Duch et al., 2008)。
访问受限。请登录或开始试用以查看此内容。
讨论
在使用GFP等荧光蛋白观察细胞时,应避免样品暴露于过强的光照下,以免造成光损伤。我们采用100 W HBO短弧汞灯作为照明光源,并使用0.8的中性密度(ND)滤光片(Chroma ND滤光片0.3和0.5组合)。为了准确判断清洗效果,良好的可视性至关重要。因此,可在短时间内(约20秒)多次暂时移除ND滤光片以提高亮度。
施加一定正压时,细胞体会轻微“摆动”,这有助于判断清洁的质量。腹神经索的对比度很低,而细胞的运动对于观察细胞极为有帮助。用于清洁操作(以及膜片钳制)的电极 holder 必须密封严密,否则无法实现可控的压力施加。压力泄漏会影响组织和碎片的有效清除,并阻碍吉欧封接(giga-seal)的形成。
如果在清理细胞后需要进行in situ膜片钳记录,请注意:不仅腹神经索整体被一层鞘膜包裹(对成年果蝇任何中枢神经元进行膜片钳记录时均需去除该鞘膜),细胞本身也可能被一层鞘膜包围。例如,MN5细胞即被一层非细胞性鞘膜包裹,该鞘膜仅在短暂高强度光照下可见。此外,细胞可能位于气管下方。若细胞无法接触,需将气...
访问受限。请登录或开始试用以查看此内容。
披露
未声明任何利益冲突。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 蛋白酶类型 XIV | Sigma Aldrich USA | P5147 | |
| Microfil 灵活注射针 | World Precision Instruments USA | MF28G-5 | |
| 硼硅酸盐玻璃毛细管,外径 1.5 mm,内径 1.0 mm,无纤维 | World Precision Instruments USA | PG52151-4 | |
| DiI | Invitrogen USA | D3899 | |
| Sylgard 弹性体试剂盒 184(Dow Corning) | www.ellsworth.com | 184 SIL ELAST KIT | |
| ND 滤光片组(未安装) | Chroma Technology Corp. | 22000b 系列 | |
| 电极夹持器 1-HL-U | Molecular Devices | 1-HL-U |
参考文献
- Papazian, D. M., Schwarz, T. L., Tempel, B. L., Jan, Y. N., Jan, L. Y. Cloning of genomic and complementary DNA from Shaker, a putative potassium channel gene from Drosophila. Science. 237, 749-753 (1987).
- Tempel, B. L., Papazian, D. M., Schwarz, T. L., Jan, Y. N., Jan, L. Y. Sequence of a probable potassium channel component encoded at Shaker locus of Drosophila. Science. 237, 770-775 (1987).
- Gu, H., O'Dowd, D. K. Whole Cell Recordings from Brain of Adult Drosophila. J. Vis. Exp. (6), e248(2007).
- Gu, H., Jiang, S. A., Campusano, J. M., Iniguez, J., Su, H., Hoang, A. A., Lavian, M., Sun, X., O'Dowd, D. K. Cav2-type calcium channels encoded by cac regulate AP-independent neurotransmitter release at cholinergic synapses in adult Drosophila brain. J. Neurophysiol. 101, 42-53 (2009).
- Baines, R. A., Bate, M. Electrophysiological development of central neurons in the Drosophila embryo. J. Neurosci. 18, 4673-4683 (1998).
- Lin, W. H., Wright, D. E., Muraro, N. I., Baines, R. A. Alternative splicing in the voltage-gated sodium channel DmNav regulates activation, inactivation, and persistent current. J. Neurophysiol. 102, 1994-2006 (2009).
- Worrell, J. W., Levine, R. B. Characterization of voltage-dependent Ca2+ currents in identified Drosophila motoneurons in situ. J. Neurophysiol. 100, 868-878 (2008).
- Srinivasan, S., Lance, K., Levine, R. B. Segmental differences in firing properties and potassium currents in Drosophila larval motoneurons. J. Neurophysiol. , (2011).
- Choi, J. C., Park, D., Griffith, L. C. Electrophysiological and morphological characterization of identified motor neurons in the Drosophila third instar larva central nervous system. J. Neurophysiol. 91, 2353-2365 (2004).
- Pulver, S. R., Griffith, L. C. Spike integration and cellular memory in a rhythmic network from Na+/K+ pump current dynamics. Nat. Neurosci. 13, 53-59 (2010).
- Fayyazuddin, A., Zaheer, M. A., Hiesinger, P. R., Bellen, H. J. The nicotinic acetylcholine receptor Dalpha7 is required for an escape behavior in Drosophila. PLoS Biol. 4, e63(2006).
- Duch, C., Vonhoff, F., Ryglewski, S. Dendrite elongation and dendritic branching are affected separately by different forms of intrinsic motoneuron excitability. J. Neurophysiol. 100, 2525-2536 (2008).
- Ryglewski, S., Duch, C. Shaker and Shal mediate transient calcium-independent potassium current in a Drosophila flight motoneuron. J. Neurophysiol. 102, 3673-3688 (2009).
- Ryglewski, S., Lance, K., Levine, R. B., Duch, C. Cav2 Channels Mediate LVA and HVA Calcium Currents in Drosophila Motoneurons. J. Physiol. , (2011).
- Ikeda, K., Koenig, J. H. Morphological identification of the motor neurons innervating the dorsal longitudinal flight muscle of Drosophila melanogaster. J. Comp. Neurol. 1273, 436-444 (1988).
- Boerner, J., Godenschwege, T. A. Whole Mount Preparation of the Adult Drosophila Ventral Nerve Cord for Giant Fiber Dye Injection. J. Vis. Exp. (52), e3080(2011).
访问受限。请登录或开始试用以查看此内容。
重印与许可
