蛋白质棕榈酰化修饰的可逆性添加是细胞内蛋白质转运的重要调控机制。这一过程在神经元中尤为关键,因为许多突触蛋白均会发生棕榈酰化修饰。我们采用一种简单的生物化学方法来检测培养神经元中的棕榈酰化蛋白,该方法可适用于多种细胞类型和组织。
本文内容
摘要
摘要
棕榈酰化是一种翻译后脂质修饰,涉及将一个16碳饱和脂肪酸(棕榈酸)通过不稳定的硫酯键共价连接到底物蛋白的半胱氨酸残基上[综述见1]。底物蛋白的棕榈酰化会增加其疏水性,通常促进其向细胞膜的转运。最近的研究表明,棕榈酰化是神经元中最常见的脂质修饰之一1, 2,提示棕榈酸的动态循环是这些细胞调控蛋白质定位与转运的重要机制。因此,鉴定和检测棕榈酰化底物有助于我们更深入地理解神经元中蛋白质的转运过程。
由于底物蛋白缺乏共识序列,以及依赖使用3H-棕榈酸对棕榈酰化蛋白进行代谢标记——这一生化检测方法耗时且灵敏度低,过去在检测蛋白棕榈酰化方面面临技术上的困难。酰基-生物素交换(ABE)检测法的开发实现了更快速、高灵敏度的棕榈酰化蛋白检测2-4,尤其适用于测量神经元蛋白上棕榈酸的动态转换。ABE检测法包含三个生化步骤(图1):1)使用N-乙基马来酰亚胺(NEM)不可逆地阻断未修饰的半胱氨酸巯基;2)通过羟胺(HAM)特异性切割并暴露棕榈酰化半胱氨酸的巯基;3)利用巯基反应性生物素化试剂生物素-BMCC对棕榈酰化半胱氨酸进行选择性标记。在完成ABE步骤后,对巯基-生物素标记蛋白的纯化方法则根据实验的总体目标而有所不同。
本文介绍了一种在原代海马神经元中纯化目标棕榈酰化蛋白的方法,该方法首先使用针对目标蛋白的特异性抗体进行免疫沉淀(IP),随后结合ABE检测与蛋白质印迹(western blotting)技术,直接测定该蛋白的棕榈酰化水平,此方法称为IP-ABE检测法。低密度培养的胚胎大鼠海马神经元已被广泛用于研究神经元蛋白的定位、功能及转运过程,因此非常适合用于IP-ABE检测法研究神经元蛋白的棕榈酰化。IP-ABE检测法主要依赖常规的免疫沉淀和蛋白质印迹试剂,其应用仅受限于针对目标底物的特异性抗体的可获得性。该方法可轻松适用于异源细胞培养体系中转染的棕榈酰化蛋白的纯化与检测,也可用于小鼠和大鼠不同脑组织来源的原代神经元培养物,甚至可用于原代脑组织本身。
方案
1. 从培养的原代海马神经元中提取目标蛋白
- 从原代海马神经元细胞中收获内源性蛋白之前,使用蛋白酶抑制剂配制裂解缓冲液(LB;表1)。向10 ml裂解缓冲液中加入0.1 ml苯甲基磺酰氟溶液(PMSF),使其终浓度为10 mM,并加入1片蛋白酶抑制剂混合物片剂。
- 用冻干粉末配制N-乙基马来酰亚胺(NEM)溶液(表1)。在室温下用100%乙醇(EtOH)轻轻溶解。NEM溶液必须在实验当天新鲜配制。
- 接下来将裂解缓冲液与NEM混合。取0.5 ml 2 M NEM溶液加入一个新的50 ml锥形管中,再加入20 ml LB,迅速将LB + NEM混合液(终浓度为50 mM)置于4 °C的摇床上,轻轻混匀5分钟。务必先加入NEM/EtOH溶液,再加入LB,以确保充分混匀。
- 将培养的神经元从培养箱中取出,置于冰上*。轻轻吸去细胞培养基,用冰冷的1×磷酸盐缓冲液(PBS)轻柔洗涤两次。向第一孔海马神经元中加入300 μl LB + 50 mM NEM,使用一次性细胞刮刀刮取细胞。收集细胞裂解物后,将其转移至该组的下一孔中。用细胞刮刀刮取第二孔中的细胞,收集裂解物,并根据需要重复操作至第三孔,以进一步浓缩裂解物。
- 将细胞裂解物收集至预冷(置于冰上)的1.5 ml微量离心管中。使用100 μl LB + 50 mM NEM重复步骤1.4,以收集残留的细胞裂解物。将总裂解物通过26½号针头抽吸5–6次,以促进机械裂解,注意避免产生气泡。如有设备,也可在冰上超声处理15秒。将细胞裂解物在4 °C下旋转孵育至少30分钟。
- 将细胞裂解物在16,000 × g条件下离心30分钟,以去除未裂解的细胞和去垢剂不溶性物质,获得澄清的上清液。
- 将澄清后的细胞裂解物(上清液)收集至新的预冷1.5 ml离心管(置于冰上)。对所有细胞组重复上述收获步骤。使用BCA法测定所有裂解物样品的蛋白浓度,并调整各组裂解物体积,使其总蛋白量完全相等,建议最低总量为500 μg。用LB + 50 mM NEM将所有样品补至终体积500 μl。
- 向每份裂解物样品中加入1–5 μg针对目标蛋白的一抗。将抗体与裂解物混合样品在4 °C下旋转孵育过夜。
原代大鼠海马神经元应以每孔约250,000个细胞的密度接种于6孔板中,使用含B27神经元补充剂的无血清培养基进行培养,具体方法如前所述5,培养所需时间,通常为14至16天-体外 (体外培养天数,DIV)以达到成熟状态。为成功进行目标神经元蛋白的免疫沉淀和生物素标记,建议至少使用 500 μg 总蛋白,通常需要 2–3 个六孔板孔中的细胞量。
2. 抗体结合靶蛋白的沉淀
- 在沉淀和固定目标蛋白之前,准备50%的蛋白A或蛋白G包被的Sepharose珠悬浮液。具体操作为:每份样品向1.5 ml离心管中加入≥60 μl Sepharose珠,确保所有样品中的珠量相等。如果有相应设备,也可使用磁珠。
- 向每份抗体-裂解液样品中加入等体积的50%悬浮液,在4 °C下旋转孵育≥1小时。
3. 酰基-生物素交换:羟胺(HAM)裂解
- 执行步骤 2.2 时,准备若干含有不同 pH 值裂解缓冲液(LB)的离心管。这些步骤中 pH 值非常关键,必须始终使用 pH 计进行调节。每个样品准备 2 ml pH 7.2 的 LB,以及每个样品 0.5 ml 的严紧缓冲液(表 1)。同时按照步骤 1.1–1.3 的方法,为每个样品准备 0.5 ml LB + 10 mM NEM。向所有裂解缓冲液中加入 PMSF 和蛋白酶抑制剂片剂,操作同步骤 1.1。
-
- 羟胺(HAM)是一种强效还原剂,可裂解半胱氨酸上的棕榈酸,这是生物素标记所必需的步骤(图 1);省略 HAM 裂解步骤作为阴性对照。将每份珠子样品均分为两份,一份省略 HAM 裂解步骤(-HAM),另一份包含 HAM 步骤(+HAM)。为校正 HAM 处理引起的蛋白质降解,应将每个样品均分为三份,其中 1/3 的珠子用于 -HAM 对照,剩余 2/3 用于 +HAM 处理。
- 在冰上准备额外的 1.5 ml 离心管,并标记为各样品的 -HAM 对照。完成步骤 2.2 后,将所有样品的珠子在 4 °C 下以 0.5 × g 离心 1 分钟(除非另有说明,后续所有步骤均以此速度、时间和温度离心),将离心管置于冰上,吸除上清液,并用 600 μl LB + 10 mM NEM 重悬珠子。
- 在用裂解缓冲液 + 10 mM NEM 重悬样品珠子后,立即取 200 μl 样品裂解液-珠子混合液,转移至对应样品的 -HAM 管中并置于冰上。向 -HAM 样品中额外加入 300 μl LB + 10 mM NEM,向 +HAM 样品中额外加入 100 μl,使每个样品总体积均为 500 μl。将离心管置于冰上孵育 10 分钟。
- 用每份样品 0.5 ml 的严紧缓冲液轻柔地重悬(洗涤)-HAM 和 +HAM 样品。此步骤需快速完成,因为过长的 SDS 孵育会导致珠子上结合的抗体脱落。
- 用每份样品 0.5 ml pH 7.2 的 LB 缓冲液对所有样品进行三次轻柔洗涤,每次洗涤之间按步骤 3.2b 的条件离心沉淀。
- 执行步骤 3.5 时,准备 HAM 缓冲液(表 1)。取适量羟胺溶液加入新离心管中,使每份 +HAM 样品在 0.5 ml pH 7.2 的 LB 中终浓度达到 1 M。每次实验当天必须新鲜配制 HAM 缓冲液。向所有 -HAM 样品中加入 0.5 ml/样品的 pH 7.2 LB,向所有 +HAM 样品中加入 0.5 ml/样品的 HAM 缓冲液。
- 将所有样品在室温(RT)下轻轻振荡孵育 1 小时。孵育时间不得超过 1 小时。
4. 酰基-生物素交换:生物素-BMCC标记
- 执行步骤 3.6 时,按步骤 3.1 的方法为每个样品制备 2 ml pH 6.2 的 LB 培养基(表 1),并将 pH 6.2 的 LB 培养基置于冰上备用。在使用前立即配制 Biotin-BMCC 储存液(表 1)。准确称取 2.1 mg Biotin-BMCC,收集至 1.5 ml 离心管中,加入 0.5 ml 二甲基亚砜(DMSO),在室温下置于摇床上轻轻溶解,以获得 8 mM 的浓度(切勿使用移液器搅动粉末)。
- 完成步骤 3.6 后,用 pH 6.2 裂解缓冲液轻柔洗涤磁珠一次,以去除残留的 HAM 缓冲液。吸除上清液,并将样品置于冰上。
- Biotin-BMCC 是一种与马来酰亚胺偶联的生物素分子,可高亲和力结合半胱氨酸的游离巯基(图 1)。在执行步骤 4.2 时,为每个样品配制 0.5 ml Biotin-BMCC 缓冲液(表 1),工作浓度介于 0.5 μM 至 5 μM 之间。浓度超过 5 μM 可能导致目标蛋白饱和6,通常不应超过此浓度,但具体浓度可能因目标蛋白的不同而有所差异。向每个样品中加入 0.5 ml Biotin-BMCC 缓冲液,在 4 °C 下精确旋转孵育 1 小时,切勿超过 1 小时。
5. 生物素偶联靶蛋白的洗脱及SDS-PAGE
- 完成步骤4.3后,用LB pH 6.2缓冲液轻轻洗涤所有样品一次。洗涤期间将所有样品置于冰上。从-20 °C冰箱中取出不含还原剂的2×SDS上样缓冲液(表1),并在冰上缓慢解冻。
- 用LB pH 7.5 + PMSF/蛋白酶抑制剂缓冲液轻轻洗涤样品三次,每次洗涤间隔将样品保持在冰上。
- 移除第三次洗涤的上清液,使沉淀的磁珠以少量残留缓冲液形成的悬液保留在离心管底部。使用小口径吸头(如加样枪头或P2吸头)插入离心管底部穿过悬液,迅速吸走残留缓冲液,注意避免吸起磁珠。
- 向2×SDS上样缓冲液中加入DL-二硫苏糖醇(DTT),使其终浓度达到5 mM。向每个样品中加入40–50 μl含5 mM DTT的2×上样缓冲液。如有必要,短暂涡旋混匀磁珠与上样缓冲液,然后立即高速离心,使所有磁珠完全沉淀并浸没于上样缓冲液中。
- 将所有样品在75–80 °C下煮沸10分钟。随后在室温下冷却至少10分钟,再以16,000 × g离心3分钟,确保磁珠完全沉淀。
- 将各样品洗脱出的全部蛋白(上清液)加入适合用于Western blot的聚丙烯酰胺凝胶中的单个泳道,进行SDS-PAGE7。在进行SDS-PAGE时,应将同一组样品的-HAM对照洗脱液与+HAM洗脱液相邻上样(图2)。SDS-PAGE结束后,将蛋白转移至PVDF或硝酸纤维素膜上。
6. 蛋白质印迹法及靶蛋白棕榈酰化检测
- 完成步骤5.6后,在室温下于摇床上用Tris缓冲盐水(TBS 1x)洗涤膜两次,每次10分钟。
- 配制封闭缓冲液以阻断非特异性标记:称取牛血清白蛋白(BSA),使其在TBS 1x + 0.05% Tween-20(TBS-T)的溶液中达到3%的质量浓度,体积需足以完全浸没膜。进行链霉亲和素印迹时,必须使用BSA而非脱脂奶粉进行封闭。在室温下于摇床上封闭膜1小时。
- 配制含0.3% BSA的TBS-T抗体稀释液。将溶于蒸馏水中的Streptavidin-HRP抗体(浓度1 mg/ml)按1:5,000至1:10,000比例稀释。完成步骤6.2后,先用TBS-T洗涤膜一次,每次10分钟,然后在摇床上将膜与链霉亲和素抗体溶液孵育,可选择在室温下孵育1小时,或在4 °C过夜孵育。
- 在摇床上用TBS-T洗涤膜三次,每次10分钟。为检测棕榈酰化信号,使用化学发光底物试剂盒显影HRP的发光信号。
- 为将棕榈酰化水平归一化至免疫沉淀所得目标蛋白的量,使用Western blot stripping缓冲液在室温摇床上孵育5–10分钟剥离膜。随后使用最初用于免疫沉淀的目标蛋白的一抗,重复步骤6.1–6.4。
- 使用图像分析软件对目标蛋白的棕榈酰化水平进行定量,并将其归一化至免疫沉淀蛋白的量。
结果
IP-ABE 检测法可特异性检测底物蛋白中半胱氨酸残基的巯基棕榈酰化修饰,可用于检测免疫沉淀神经元蛋白的棕榈酰化,其操作流程如图1所示。将免疫沉淀所得的神经元蛋白用 HAM(图1)处理,可切断棕榈酸与半胱氨酸巯基之间的硫酯键,从而使生物素-BMCC 特异性地连接到新暴露的巯基上,随后可通过蛋白质印迹法(western blotting)进行检测。在对照组中省略 HAM 处理(即“无 HAM”组),可阻止生物素-BMCC 的结合,从而作为“加 HAM”样品中特异性棕榈酰-生物素标记的阴性对照,因此在 SDS-PAGE 蛋白质印迹分析中,“无 HAM”对照组应始终与“加 HAM”实验组并列运行(图2)。
在优化的实验条件下(图2A),使用链霉亲和素-HRP偶联物,通过在1 μM浓度下对生物素-BMCC进行印迹,可清晰检测到神经元蛋白δ-catenin2的棕榈酰化信号,检测样本为平行设置的去-HAM组与加-HAM组。δ-catenin的特异性棕榈酰化信号仅在加-HAM样本中出现,且位于其预测分子量160 kD处。该信号的特异性通过使用最初用于免疫沉淀δ-catenin的特异性抗体进行二次探针验证,结果显示在两种HMA处理组中,均在相同的预测分子量位置出现信号。IP-ABE实验的优化(图2A)将获得清晰可区分的Western印迹图谱:去-HAM样本与加-HAM样本明显不同,且几乎无或仅有极微弱的棕榈酰化信号。
用于标记棕榈酰化半胱氨酸的生物素-BMCC浓度需仔细优化,若在ABE化学步骤中使用过饱和浓度的生物素-BMCC(图2B),会出现过高的背景和非特异性信号。此前已确定使用生物素-BMCC 对棕榈酰化神经元蛋白 α7 烟碱型乙酰胆碱受体进行生物素化时的线性响应曲线6,且在 5- 浓度下显示出接近完全饱和10 μM尽管生物素-BMCC 的最佳浓度会因神经元靶蛋白的不同而略有差异,但使用超过该浓度的生物素-BMCC 处理 5 μM 可能会使目标蛋白过饱和,导致Western印迹图谱出现明显的背景和非特异性信号。建议浓度为 0.5 μM 曾使用生物素-BMCC检测其他神经元蛋白的棕榈酰化修饰,包括SNAP-25、亨廷顿蛋白、AMPA受体亚基GluA1和GluA2以及副lemnin8,且通过线性试错法即可确定新型靶蛋白的最佳浓度,起始范围为0.5–5 μM 我们在此描述的结果显示,在处理 δ-catenin 棕榈酰化时,无 HAM 与含 HAM 样品的链霉亲和素 Western 印迹谱图相似。 4 μM 生物素-BMCC(图2B),并伴有不同大小的额外背景信号,表明发生了不适当的生物素标记。
羟胺是一种强效还原剂,除了能有效裂解硫酯键外,还会导致目标蛋白发生一定程度的降解。因此,为了优化ABE化学反应,必须对“无-HAM”和“加-HAM”样品中用于免疫沉淀的蛋白量进行归一化处理(步骤3.2 - 3.3)。归一化要求在“加-HAM”样品中使用的固定化目标蛋白量应为“无-HAM”样品中的两倍,这样可使目标蛋白在Western blot中的信号强度基本一致,如δ-catenin的结果所示(图2A, B)。然而,如果“无-HAM”和“加-HAM”样品之间固定化目标蛋白的用量未进行归一化,则在两个样品中使用等量蛋白时,“加-HAM”样品中目标蛋白的Western blot信号可能会完全丢失,如δ-catenin的实验结果所示(图2C)。
ABE化学法用于标记棕榈酰化蛋白的特异性非常敏感,需要进行优化。在进行IP-ABE实验时常见的问题包括图2B和2C中所示的非理想结果,以及与HAM处理无关的靶蛋白降解,这些问题通常由试剂和缓冲液存放时间过长或pH值不正确所导致。为避免上述问题并纠正非理想的ABE化学反应,应始终检查表1所列缓冲液中所需试剂的新鲜程度和浓度,并在实验前始终核对所有缓冲液的pH值调节情况。
| 缓冲液 | 工作浓度 | 备注 | |
| 裂解缓冲液 (LB) | 在蒸馏 H2O 中:1% IGEPAL CA-630,50 mM Tris-HCl pH 7.5,150 mM NaCl,10% 甘油 | N/A | 实验前配制,并于 4 °C 保存 |
| NEM 溶液 | 在 100% EtOH 中:NEM 冻干粉末 | 2 M | 使用前新鲜配制,立即使用 |
| 严格缓冲液 | 在 LB 中:10 mM MEM,0.1% SDS | N/A | 使用前短时间内配制,置于冰上保存 |
| LB pH 7.2 | 在 LB 中:将 pH 精确调节至 7.2 | N/A | 使用 pH 计在使用前立即调节 pH |
| HAM 缓冲液 | 在 LB pH 7.2 中:加入 HAM 储存液 | 1 M(最终 HAM 浓度) | 使用前立即配制 |
| LB pH 6.2 | 在 LB 中:将 pH 精确调节至 6.2 | N/A | 操作同 LB pH 7.2 |
| 生物素-BMCC 储存液 | 在 DMSO 中:2.1 mg 生物素-BMCC 溶液 | 8 mM | 使用前立即配制 |
| 生物素-BMCC 缓冲液 | 在 LB pH 6.2 中:加入生物素-BMCC 溶液 | 1 - 5 μM(最终生物素-BMCC 浓度) | 使用前立即配制 |
| 2x SDS 上样缓冲液,不含还原剂 | 在蒸馏 H2O 中:5% SDS,5% 甘油,125 mM Tris-HCl pH 6.8,0.01% 溴酚蓝 | N/A | 实验前配制,-20 °C 保存至使用。使用前补充 5 mM DTT |
表1. IP-ABE 实验所需缓冲液和试剂。 许多裂解缓冲液可在实验开始前配制,但在使用前必须立即用pH计检测并调整pH值,以确保ABE化学反应的成功。大多数储存液应在每次实验前新鲜配制,并立即使用。多数缓冲液所需的试剂为具备生物化学实验条件的常规实验室常见试剂,特殊试剂及供应商信息列于试剂与仪器表格中。
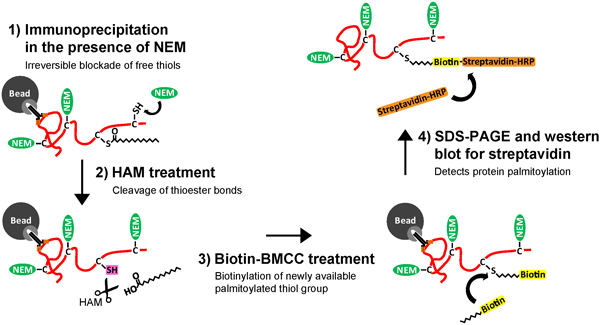
图 1. 免疫沉淀与酰基-生物素交换法(IP-ABE)检测神经元蛋白质棕榈酰化的示意图。 培养的海马神经元被裂解后,(1)使用靶蛋白特异性抗体纯化目标蛋白,并将其固定在涂有蛋白G或A的葡聚糖珠上。纯化后的目标蛋白随后(2)用N-乙基马来酰亚胺(NEM)处理,以不可逆地结合并封闭未修饰半胱氨酸(C)上的游离巯基(-SH)。接着,目标蛋白(3)经羟胺(HAM)处理,特异性断裂棕榈酰化半胱氨酸上的硫酯键,暴露出游离的巯基(-SH)。随后,目标蛋白(4)与巯基反应性生物素分子生物素-BMCC反应,实现对棕榈酰化半胱氨酸的特异性生物素标记。最后,(5)将生物素标记的目标蛋白从抗体和珠子上洗脱下来。此时,带有生物素标记的棕榈酰化半胱氨酸的目标蛋白可用于SDS聚丙烯酰胺凝胶电泳(SDS-PAGE)以及链霉亲和素Western blot检测,以鉴定纯化神经元蛋白的棕榈酰化状态。 点击此处查看高清大图。
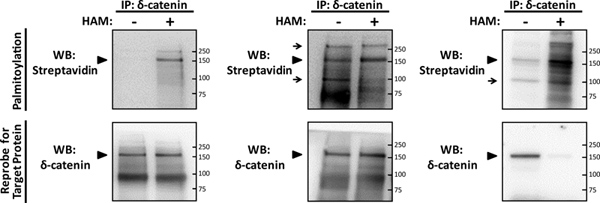
图 2. 利用免疫沉淀-乙酰基生物素交换法(IP-ABE)检测神经元蛋白 δ-catenin 的棕榈酰化修饰。 原代大鼠海马神经元按先前所述方法培养5,密度为 130 个细胞/mm2,培养至 14 天体外成熟期(14DIV)后裂解,并进行 IP-ABE 检测,以鉴定一种新近发现的棕榈酰化神经元底物蛋白 δ-catenin2 的修饰状态。通过每样本 5 μg 的 δ-catenin 抗体(BD Transduction Laboratories)对 δ-catenin(目标蛋白)进行免疫沉淀(IP),纯化后的免疫沉淀物在含或不含羟胺(HAM)的条件下平行进行 SDS-PAGE 分离。采用链霉亲和素-HRP(streptavidin-HRP)进行蛋白质印迹(WB)检测棕榈酰化信号,随后将膜剥离并重新杂交检测 δ-catenin 蛋白。(A) 使用 1 μM 生物素-BMCC 处理后获得的代表性优化 IP-ABE 结果,显示了棕榈酰化 δ-catenin(箭头所示)的特异性信号,说明 ABE 化学法可特异性地从免疫沉淀样本中检测巯基棕榈酰化蛋白。(B) 一个次优的代表性 IP-ABE 结果,其中使用了过量的 4 μM 生物素-BMCC,导致在含或不含 HAM 的样本中均出现非特异性信号和背景干扰(箭头所示)。(C) 另一个次优的代表性 IP-ABE 蛋白质印迹结果,同样使用了过高的 4 μM 生物素-BMCC 浓度,且 HAM 处理组 IP 样本中未对 HAM 介导的蛋白降解进行蛋白量归一化,导致 δ-catenin 重探信号丢失。 点击此处查看高清大图。
讨论
本文介绍的IP-ABE检测方法是一种简单且高灵敏度的技术,用于检测培养的原代海马神经元中的棕榈酰化蛋白,主要采用常规的生物化学技术。这使得已配备蛋白质印迹实验材料的实验室能够轻松地应用该检测方法。IP-ABE检测结合了标准的免疫沉淀方案,用于分离和固定目标蛋白,随后采用先前描述的ABE化学方法2-4,快速检测底物蛋白上的棕榈酸化水平。ABE技术可广泛应用于多种组织和细胞系中棕榈酰化蛋白的研究,包括大规模棕榈酰化蛋白质组学筛查以分析全基因组棕榈酰化谱,以及对单一目标蛋白棕榈酰化水平的快速检测。
以往对ABE化学方法的描述根据实验应用的不同,采用了不同的细胞裂解和去垢剂提取神经元蛋白2, 9、游离巯基封闭10, 11、生物素标记以及目标蛋白纯化4等方法。棕榈酸修饰神经元蛋白会使其靶向定位于细胞膜,因此检测目标蛋白的棕榈酰化组分需要将其从这些膜结构中提取出来。以往报道的ABE方法曾使用多种离子型9和非离子型去垢剂8来提取目标蛋白,具体选择哪种去垢剂取决于目标蛋白及其已知的膜转运特性。本文中,我们采用非变性非离子型去垢剂IGEPAL CA-630提取棕榈酰化蛋白,并已验证该方法适用于棕榈酰化神经元蛋白δ-catenin的提取与检测(图2)。IGEPAL CA-630的结构包含一个庞大且刚性的非极性头部基团,不会破坏蛋白的天然构象或相互作用,但可与膜结合蛋白的疏水区域结合,从而使其具有可混溶性并实现提取。许多定位于突触膜或突触后致密区的神经元蛋白应使用IGEPAL CA-630进行提取,但部分蛋白可能无法完全溶解,此时可能需要采用其他非变性去垢剂(如Triton X-100),后者此前已在ABE化学方法中被使用过2, 8。
已有若干关于ABE化学的描述采用了与本文所述不同的巯基反应性生物素标记试剂,称为Biotin-HPDP(Thermo Scientific),该试剂也需要采用不同的蛋白质纯化方法4。Biotin-HPDP是另一种巯基反应性马来酰亚胺偶联的生物素分子,其马来酰亚胺连接臂中含有一个二硫键,这在结构上区别于不含此二硫键的Biotin-BMCC。当Biotin-HPDP对蛋白质的游离半胱氨酸或棕榈酰化半胱氨酸进行巯基生物素标记后,目标蛋白与生物素基团之间形成的二硫键可通过还原试剂断裂,从而释放生物素基团并使蛋白质恢复为未修饰状态,因此Biotin-HPDP介导的生物素标记是瞬时且可逆的。因此,使用该生物素标记试剂需要通过固定化的亲和素试剂(如链霉亲和素包被的微珠)对目标蛋白进行纯化。然而,正如本文所述,采用Biotin-BMCC对目标蛋白进行的巯基生物素标记则较为稳定且相对永久,需使用针对目标蛋白的特异性抗体(固定于Sepharose微珠上)进行目标蛋白的纯化。两种ABE技术此前均已用于大规模筛选及单个蛋白质棕榈酰化的检测2, 8–10, 12,而本文所述的IP-ABE检测方法最适合快速检测单个神经元目标蛋白的棕榈酰化。
绝大多数细胞内的棕榈酰化涉及将棕榈酸可逆地添加到半胱氨酸的巯基上(称为S-棕榈酰化,本方案中将其泛称为“棕榈酰化”),然而极少数蛋白质可通过形成稳定的酰胺键,在甘氨酸和半胱氨酸残基上发生不可逆的棕榈酰化,称为N-棕榈酰化13。ABE化学法的一个局限性在于其无法检测N-棕榈酰化,原因是酰胺键具有较高的稳定性,因此对新靶标蛋白进行棕榈酰化筛查时,应通过³H-棕榈酸代谢标记法加以验证1。
如前所述,IP-ABE 检测法可轻松适用于检测来自多种来源的蛋白提取物中的棕榈酰化修饰,包括转染的异源细胞系、原代组织以及来自多个脑区的原代神经元培养物。IP-ABE 检测法已被用于评估半胱氨酸突变为丝氨酸的突变蛋白是否仍具有棕榈酰化能力,以确定靶蛋白上发生棕榈酰化修饰的半胱氨酸位点8;也可用于在基础条件下检测培养神经元中突触蛋白的棕榈酸动态转换10,以及在神经元活动诱导后检测神经元蛋白棕榈酰化水平的变化9。IP-ABE 检测法具有高灵敏度和良好的可适性,非常适合分析神经元蛋白的棕榈酰化谱型,尤其适用于检测棕榈酰化修饰的动态变化。
致谢
本工作获得了加拿大卫生研究院研究资助 MOP-81158 的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| IGEPAL CA-630 | Sigma | I8896 | |
| PMSF | Fluka | 93482 | |
| 蛋白酶抑制剂混合物 | Roche Complete Mini | 11 836 153 001 | |
| NEM | Sigma | E3876 | |
| HAM 溶液 | Sigma | 46780-4 | |
| BCA 蛋白定量试剂盒 | Thermo Scientific | 23225 | 确保与所选去垢剂兼容 |
| 蛋白G/A包被的Sepharose微珠 | GE Healthcare | 17-6002-35 | |
| 生物素-BMCC | Thermo Scientific | 21900 | |
| 链霉亲和素-HRP | Thermo Scientific | 21126 | 用纯水配制成 1 mg/ml 溶液 |
| Western Blot 剥脱缓冲液 | Thermo Scientific | 21059 |
参考文献
- Fukata, Y., Fukata, M. Protein palmitoylation in neuronal development and synaptic plasticity. Nat. Rev. Neurosci. 11, 161-175 (2010).
- Kang, R., et al. Neural palmitoyl-proteomics reveals dynamic synaptic palmitoylation. Nature. 456, 904-909 (2008).
- Drisdel, R. C., Green, W. N. Labeling and quantifying sites of protein palmitoylation. Biotechniques. 36, 276-285 (2004).
- Wan, J., Roth, A. F., Bailey, A. O., Davis, N. G. Palmitoylated proteins: purification and identification. Nat. Protoc. 2, 1573-1584 (2007).
- Xie, C., Markesbery, W. R., Lovell, M. A. Survival of hippocampal and cortical neurons in a mixture of MEM+ and B27-supplemented neurobasal medium. Free Radic. Biol. Med. 28, 665-672 (2000).
- Drisdel, R. C., Alexander, J. K., Sayeed, A., Green, W. N. Assays of protein palmitoylation. Methods. 40, 127-134 (2006).
- Eslami, A., Lujan, J. W. estern Blotting: Sample Preparation to Detection. J. Vis. Exp. (44), e2359(2010).
- Huang, K., et al. Neuronal palmitoyl acyl transferases exhibit distinct substrate specificity. FASEB J. 23, 2605-2615 (2009).
- Noritake, J., et al. Mobile DHHC palmitoylating enzyme mediates activity-sensitive synaptic targeting of PSD-95. J. Cell Biol. 186, 147-160 (2009).
- Thomas, G. M., Hayashi, T., Chiu, S. L., Chen, C. M., Huganir, R. L. Palmitoylation by DHHC5/8 Targets GRIP1 to Dendritic Endosomes to Regulate AMPA-R Trafficking. Neuron. 73, 482-496 (2012).
- Hayashi, T., Thomas, G. M., Huganir, R. L. Dual palmitoylation of NR2 subunits regulates NMDA receptor trafficking. Neuron. 64, 213-226 (2009).
- Ho, G. P., et al. S-Nitrosylation and S-Palmitoylation Reciprocally Regulate Synaptic Targeting of PSD-95. Neuron. 71, 131-141 (2011).
- Iwanaga, T., Tsutsumi, R., Noritake, J., Fukata, Y., Fukata, M. Dynamic protein palmitoylation in cellular signaling. Prog. Lipid Res. 48, 117-127 (2009).
重印与许可
