可通过在 E16 时期对大鼠的皮层或海马体进行子宫内电穿孔(IUE),在发育过程中操控基因,从而实现对成年动物神经元连接的快速且靶向的修饰,以用于后续的行为学或神经病理学研究。通过共转染的荧光素酶的生物发光,对 IUE 成功与否进行出生后的体内成像监测。
本文内容
摘要
摘要
体内电穿孔(IUE)是一种可用于研究神经元发育的脑内细胞基因改造技术。迄今为止,在活体动物出生后阶段,由于缺乏通过非侵入性技术监测IUE转染效率的足够方法,限制了IUE在成年脑行为或神经病理学研究中的应用。
本研究使用 E16 大鼠进行子宫内电转染(IUE)。在将核酸注射到胚胎脑室内后,镊形电极的定位对于靶向发育中的大脑皮层或海马体至关重要。
通过向心室共注射并电穿孔导入荧光素酶基因,可在出生后对麻醉状态下的P7幼鼠腹腔注射荧光素后,活体监测转染细胞 体内 生物发光,使用配备3D定量软件的IVIS Spectrum设备。
通过生物发光成像可以清晰区分皮层和海马的电穿孔区域,并能在出生后长达5周的时间内纵向检测信号。该成像技术使我们能够筛选出转染细胞数量足够、被认为足以引发生物学效应的幼鼠,随后在3月龄时进行行为学研究。例如,本研究证明,在大鼠皮层中通过子宫内电穿孔(IUE)导入全长人源DISC1基因会导致安非他明超敏反应。死后荧光显微镜在冷冻切片中可检测到共转染的GFP,表明基因表达在出生后至少6个月仍持续存在。
我们得出结论:出生后生物发光成像能够评估在大鼠中通过子宫内电穿孔(IUE)实现瞬时转染的效果。该技术极大地方便了对神经发育期间局部基因操作对成年大脑及其连接性影响的研究。对于许多科学问题,此技术可作为转基因大鼠的补充,甚至替代方案,为行为神经科学提供一种新颖的技术手段。
引言
The development of the 发育过程 在子宫内 电穿孔(IUE)技术作为一种可在发育中的大脑中调控基因表达的方法,自问世以来取得了突破性进展,因其使得神经发育的研究得以相对简便地进行。1-7 在啮齿类动物胚胎期和/或围产期发育过程中,特定脑区靶基因表达水平的变化被证明对神经元的增殖、迁移、树突分支及突触连接具有关键性影响。8-10
精神分裂症是一种复杂的神经系统疾病,具有急性和慢性症状,被认为与神经发育异常相关11, 12,因此许多已鉴定的精神分裂症候选基因被研究其对神经发育的潜在调控作用,例如disrupted-in-schizophrenia-1(DISC1)基因13-15。
大脑发育受遗传因素及其与环境相互作用的调控,这些因素在产前、围产期和产后发育阶段均发挥作用。多种行为障碍的一个主要遗传风险因素是DISC116基因。DISC1基因表达下调会导致小鼠出现迁移缺陷13, 17,而在发育中的皮层中通过子宫内电穿孔(IUE)技术调控DISC1的表达已被证明会影响成年小鼠的行为18。
通过子宫内电穿孔(IUE)操控脑基因表达相较于构建转基因动物品系具有多项优势19。首先,可在数周至数月内实现目标脑区的基因表达,而无需经历多代转基因啮齿类动物的繁育过程。其次,可避免生殖系基因编辑动物在早期发育过程中可能存在的表型代偿机制20。第三,若采用单侧电穿孔,可通过仅靶向特定细胞群体或特定脑区,直接将细胞迁移或增殖的差异与未突变或对照侧的对侧进行比较。然而,IUE无法实现启动子驱动的Cre/lox系统所具有的精确表达时序控制,且仅能靶向特定区域内的部分细胞,导致基因表达呈嵌合模式。
对于成年啮齿类动物的许多实验应用而言,仅对脑区中有限数量的细胞进行瞬时转染可能已足够,甚至更受青睐,此时稳定遗传转基因啮齿类动物的主要优势便不再显著。事实上,子宫内电穿孔(IUE)可用于研究某些异常发育的细胞是否会影响整个细胞网络或神经环路。另一个优势在于,由于转染具有嵌合特性,可借此证明基因的非细胞自主性效应。此外,转基因和基因敲除大鼠的制备仍处于起步阶段,因此利用IUE技术在该物种中研究异常脑发育后果具有重要意义。
到目前为止,利用宫内电穿孔(IUE)研究动物成年后的干预效应时,一个主要障碍是缺乏对电穿孔成功与否的监测手段。迄今为止,在活体新生大鼠中与GFP共转染的荧光标记神经元,尚无法通过合适的双目荧光显微镜或IVIS Spectrum荧光成像系统检测到。
为了克服这一障碍,我们共转染了荧光素酶报告基因,并通过对子宫内电穿孔(IUE)脑区进行三维(3D)定量,对幼鼠进行了生物发光活体成像。
为了展示该方法在后续功能性检测中用于神经发育相关基因操作的适用性,以大鼠胚胎侧脑室共注射含有human DISC1、荧光素酶和绿色荧光蛋白(GFP)的质粒,并使用镊形电极进行电穿孔为例进行了实验3。尽管在出生后阶段体内无法检测到荧光信号,但通过共转染的荧光素酶基因对荧光素的代谢所产生的生物发光信号在出生后长达五周内仍可被检测到。通过对电穿孔脑区进行三维测量,实现了定量分析,从而在实验初期即可识别出电穿孔不足或位置错误的幼鼠,进而能够将IUE动物(目的基因组与乱序对照组)分配至电穿孔脑区面积相近、变异度低的实验组中。本研究还以成年IUE大鼠在行为学范式中的应用为例,展示了该实验方案的实用性。
方案
所有动物实验均依照国家和欧洲法律法规,由负责的北莱茵-威斯特法伦州自然、环境与消费者保护部(LANUV NRW;87-51.05.2010.A301)批准授权。
1. 在子宫内 电穿孔
该方法已由 Walantus 等3 以及 Rice 等4 在 JoVE 中针对大鼠进行了详细描述,此处仅作简要概述。每窝6-8只幼鼠可获得较好的实验结果。应至少保留两只未进行电转染的胚胎,以提高总体存活率(见下文)。
- 制备DNA混合液,其中包含1.5 μg/μl的目标质粒(shRNA:pENTR-U6;Invitrogen, Eugene, OR / DISC1过表达:pCAX21)、0.5 μg/μl含荧光素酶的质粒(pCAX)和0.5 μg/μl含GFP的质粒(pCAGGS22),溶于用Fast Green染料染成浅蓝色的1×PBS溶液中。
- 使用玻璃毛细管和针头拉制仪制备注射针。通过高压灭菌或使用酒精类消毒剂(kodan Tinktur forte)孵育对手术器械进行灭菌。
- 在妊娠大鼠受精后第16天(E16),于手术前15分钟给予布托啡诺预处理剂量(0.05 mg/kg)。随后将动物置于异氟烷麻醉舱中进行麻醉。
- 麻醉后,将大鼠仰卧位放置于37 °C预热的手术台上,连接呼吸面罩至麻醉装置,氧气流速设为0.4 L/min,异氟烷浓度为1.8%。
- 剃除腹部毛发后,使用酒精类消毒剂(kodan Tinktur Forte)对剃毛区域消毒三次。
- 用无菌布覆盖大鼠,仅暴露剃毛的手术区域。
- 进行子宫内电穿孔(in utero electroporation)。
- 沿腹白线(linea alba)用剪刀切开腹部(约2 cm)。
- 用环形镊小心暴露子宫角。
- 在整个手术过程中,注意保持子宫壁湿润,使用预热的无菌PBS溶液。
- 用细玻璃针将DNA溶液注射至胚胎的一个侧脑室中。
- 将7 mm电极置于胚胎头部周围。若要靶向大脑皮层上层的细胞群体,应在E1623进行子宫内电穿孔,并将正极电极置于注射侧脑室上方的大脑半球,略偏向背侧/外侧方向。若要靶向海马细胞,则将正极电极置于与注射侧脑室相对的一侧,方向为外侧至轻度背侧(图1)。
- 使用方波脉冲电穿孔仪,施加5次50毫秒的脉冲,电压为55 V,脉冲间隔为950毫秒。
- 保留每个子宫角靠近阴道端的第一个胚胎,以提高所有胚胎的存活几率。
- 将子宫角复位回母鼠体内。
- 使用可吸收的Vicryl外科缝合线缝合腹壁。
- 使用Vicryl缝合线或缝合夹闭合皮肤。
- 将母鼠放回其饲养笼,并保持温暖2–3小时。
- 将大鼠单独饲养于动物房的饲养笼中,自由进食(ad libitum)。分娩时间通常在E22–24之间。
- 让仔鼠与母鼠共同饲养三周,之后按性别分开饲养。
2. 荧光素酶反应的生物发光活体成像
该方法用于分析位置 在子宫内 转染的细胞。共电穿孔的萤火虫荧光素酶cDNA被翻译成有活性的荧光素酶,该酶在将D-荧光素转化为氧荧光素的过程中释放出一个光子(图2)。在出生后约35天内,可通过IVIS Spectrum在电穿孔成功的幼鼠脑中检测到相应的发光信号。图4).
在本研究中,荧光素酶检测和生物发光成像从出生后第7天(P7)开始进行。选择这一时间点是为了让母鼠和幼鼠从分娩应激中得到恢复。在出生后第0天(P0)初次处理幼鼠时,幼鼠存活率受到严重影响,表现为幼鼠死亡或被母鼠吃掉。
首先,通过曝光时间为三分钟的二维生物发光图像鉴定成功转染的幼鼠。随后,选取阳性幼鼠进行三维成像,以确定电穿孔区域的位置。
- 将D-荧光素钠盐溶于PBS中,配制成15 mg/ml的溶液,并通过无菌注射器滤器过滤除菌。
- 称量仔鼠体重。
- 一手握住仔鼠,使其腹部朝上,轻轻拉伸腹部。按每克体重10 μl的剂量,将荧光素溶液经腹腔注射。对于年龄较大、活动较敏捷的仔鼠,可在注射荧光素前,先在诱导室中使用异氟烷进行预麻醉。
- 在IVIS Spectrum系统中启动XGI-8气体麻醉系统的异氟烷气流,浓度设为3%。
- 将动物的鼻部放入麻醉系统的玻璃鼻锥中。
- 保持动物俯卧位,直至其进入深度麻醉状态(2–3分钟),随后将异氟烷气流浓度降低至1.5%。
- 选择二维生物发光成像,以从整窝仔鼠中筛选阳性个体。使用以下设置
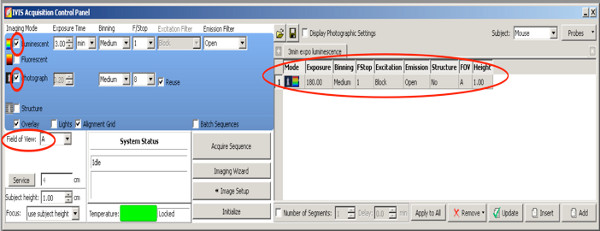
点击此处查看大图。- 勾选“Photograph”选项,选择中等binning模式,F/Stop设为8;启动测量后,相机会从上方拍摄一张照片。
- 激发滤光片设置为“block”(阻断)。
- 发射滤光片设置为“open”(开放)。
- binning模式设为中等。
- F/Stop设为1。
- 载物台高度设为A级。
- 生物发光曝光时间设为180秒。
- 为更准确量化阳性仔鼠中电穿孔区域,需生成三维图像,请使用以下针对萤火虫荧光素酶的DLIT成像设置。
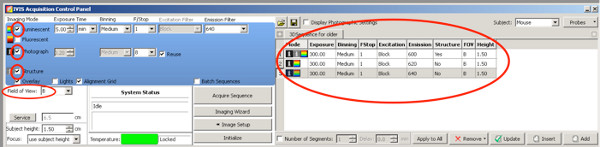
点击此处查看大图。- 勾选“Photograph”选项;启动测量后,相机会从上方拍摄一张照片。
- 勾选“Structure”选项;IVIS系统将在生物发光测量前对动物体表进行扫描。
- 在两周龄之前,使用以下发射滤光片及曝光时间设置:
发射滤光片1:590 nm,曝光时间300秒
发射滤光片2:600 nm,曝光时间240秒
发射滤光片3:620 nm,曝光时间180秒
发射滤光片4:640 nm,曝光时间120秒
对于P20日龄以上的仔鼠:
发射滤光片1:600 nm,曝光时间300秒
发射滤光片2:620 nm,曝光时间300秒
发射滤光片3:640 nm,曝光时间300秒
点击此处查看大图。
由于较年长动物信号强度下降,因此对三个最佳发射滤光片延长了曝光时间。 - 载物台高度设为B级。
- binning模式设为中等。
- F/Stop设为1。
- 成像结束后,通过耳孔编码标记各只大鼠,以便相互区分,并与IVIS活体成像图片对应。
- 测量程序结束时,关闭异氟烷气流,将大鼠留在加热板上数分钟后,再放回笼中。
3. 生物发光图像分析
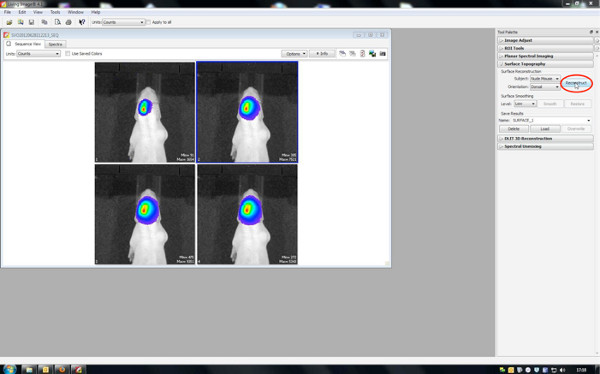
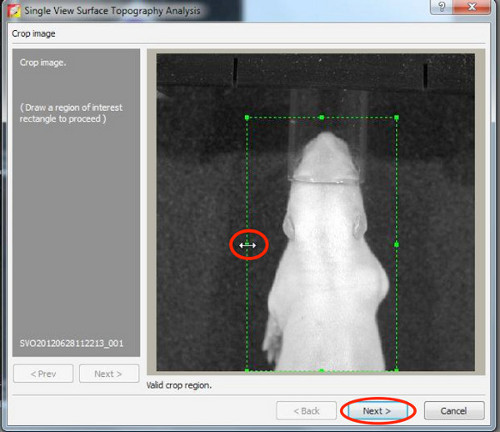
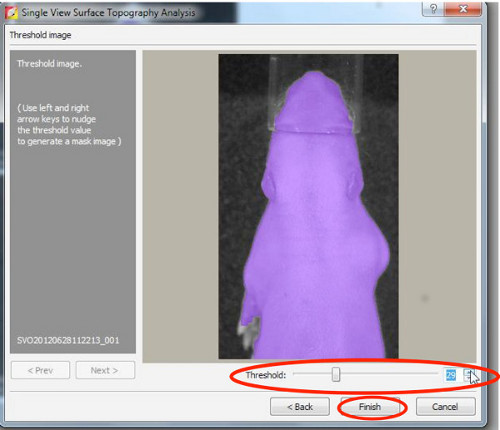
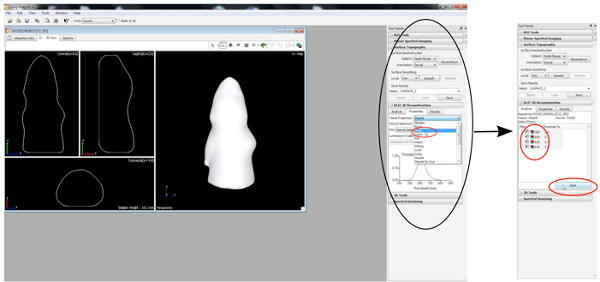
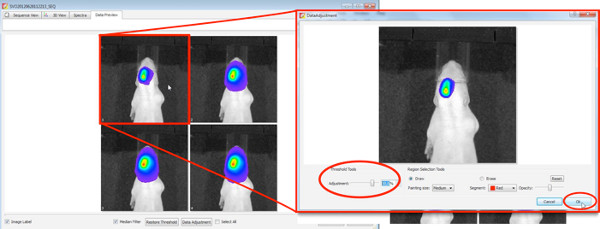
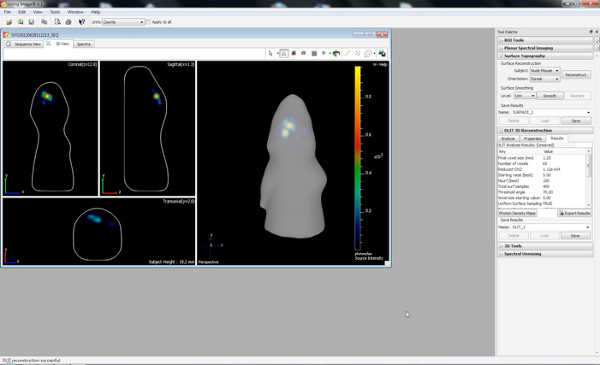
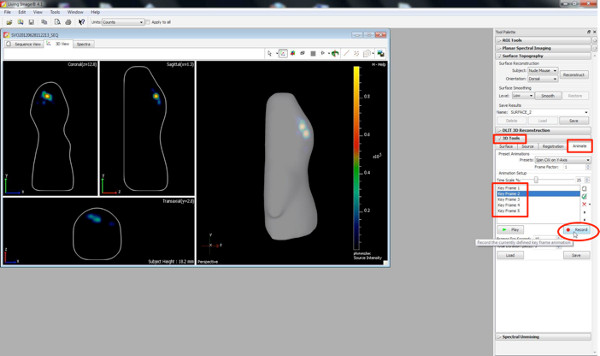
通过 IVIS Spectrum 上预安装的 Living Image 软件生成三维图像、三维视频,并对信号源的体积进行定量分析。
- 生成3D图像
4. 行为学测试
为了确定大鼠体内通过子宫内电穿孔(IUE)介导的基因操作是否可能引发持续至成年期的长期效应,进行了行为学测试。在本研究的具体案例中,通过在有或无低剂量苯丙胺的情况下进行开放旷场(OF)实验测试运动活性,以评估IUE后短暂的单侧全长度人源DISC1基因在皮层过表达对多巴胺相关行为的影响24。Niwa et al. 在使用DISC1基因敲低的IUE小鼠模型中采用类似方法,结果显示,IUE处理的小鼠表现出对苯丙胺的超敏反应,而对照组小鼠则无此现象18。
大鼠 在子宫内 使用DISC1过表达载体进行电穿孔后,在实验室条件下饲养,每天上午7点至下午7点提供12小时光照,并定时喂食 随意摄取在3月龄时,大鼠接受行为学测试。
为了量化安非他明效应下的运动活动,采用置于声光隔离室内的Tru Scan活动系统开放场装置。该系统可测量动物运动的持续时间与距离、在开放场边缘或中心区域停留的时间与距离,以及直立行为25。
- 第一天,注射生理盐水后进行测试
- 称量动物体重。
- 按每克体重1 μl的剂量,腹腔注射生理盐水溶液(1×PBS)。
- 注射后立即将动物放入开放旷场,并启动TruScan系统开始记录,持续记录15分钟,并将数据分为3个5分钟时间段。
- 将动物放回其原有饲养笼中。
- 第二天,注射苯丙胺后进行测试
- 称量动物体重。
- 按每克体重1 μl的剂量,腹腔注射0.5 mg/ml的苯丙胺溶液。
- 注射后立即将动物放入开放旷场,并启动TruScan系统开始记录,持续记录15分钟,并将数据分为3个5分钟时间段。
- 将动物放回其原有饲养笼中。
- 使用特定的TruScan软件分析动物的运动和直立行为。使用GraphPad(Prism)软件绘制图表,并通过SPSS Statistics软件进行统计分析。
结果
图3展示了在注射150 mg luciferin/kg体重后,P7时期三只幼鼠的活体成像测量结果。信号强度的差异反映了IUE效率的变异性。强生物发光信号可记录至P36时期(图4)。图5显示了通过生物发光成像区分皮层(图5A和图5C)和海马(图5B和图5D)电穿孔的能力。图6–8展示了P14时期生物发光信号(图7A)与去颅骨后荧光信号(图7B)以及冷冻切片脑组织中相应GFP电穿孔细胞(图8)的相关性。值得注意的是,在任何时间点均未在活体大鼠中检测到荧光信号。
体内生物发光成像可通过二维图像(图5A 和 5B)大致区分不同电穿孔的脑区,而使用 IVIS Spectrum 软件的 DLIT 程序生成三维图像后,分辨效果显著提升(图5C 和 5D)。在所示实例中,可区分前额叶皮层和海马体的电穿孔区域。需要注意的是,在靶向海马体进行电穿孔时,位于海马体背侧、作为皮层前体细胞的部分细胞也可能同时被转染(图7)。
大鼠单侧 在子宫内 通过电穿孔将pCAX载体导入皮层并随后过表达全长人源DISC1的成年大鼠,被用于研究其自发性活动及安非他明诱导的活动过度情况。经pCAX-DISC1电穿孔的大鼠对低剂量安非他明表现出高度敏感性。这些大鼠在安非他明处理后的运动量显著高于生理盐水注射后的运动量,而对照动物则无此差异。图10).
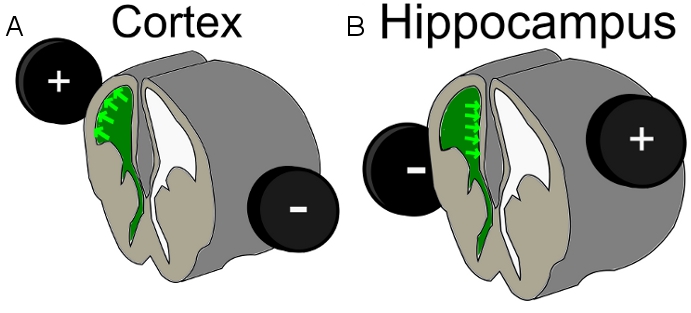
图1. A) 大脑皮层电穿孔和 B) 海马体电穿孔的电极位置示意图;绿色 = 注入脑室内DNA混合物。
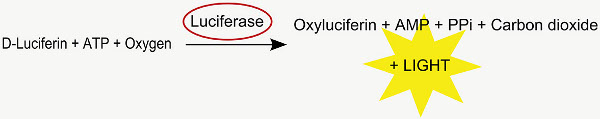
图2. 荧光素酶反应。
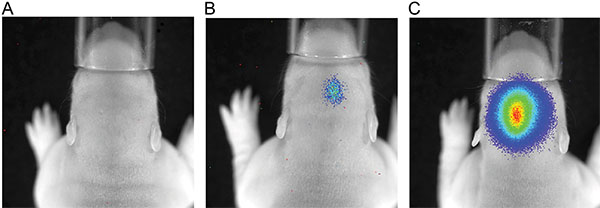
图3. 注射150 mg/kg体重荧光素后P7大鼠的发光检测;曝光时间180秒;A)无发光信号的大鼠;B)发光信号较弱的大鼠;C)发光信号较强的大鼠。
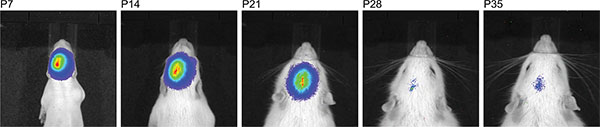
图4. 同一只大鼠在注射150 mg/kg荧光素后连续进行生物发光检测的时间线,显示了可用于检测IUE成功结果的较长时间窗口。
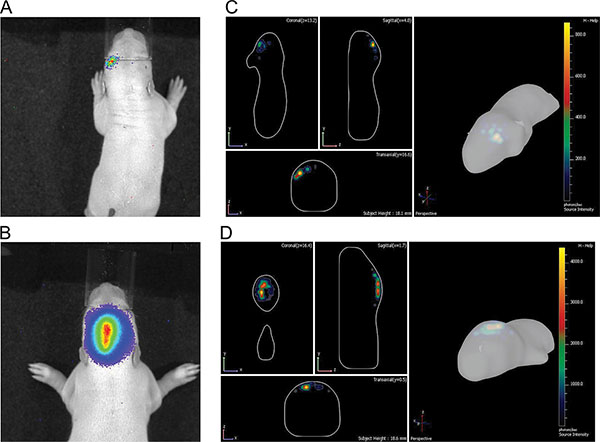
图 5. P7 时期皮层与海马电穿孔差异示意图。A) 和 B) 为二维图像;C) 和 D) 为三维图像;A) 和 C) 来源于皮层;B) 和 D) 来源于海马。 点击此处查看高清大图。
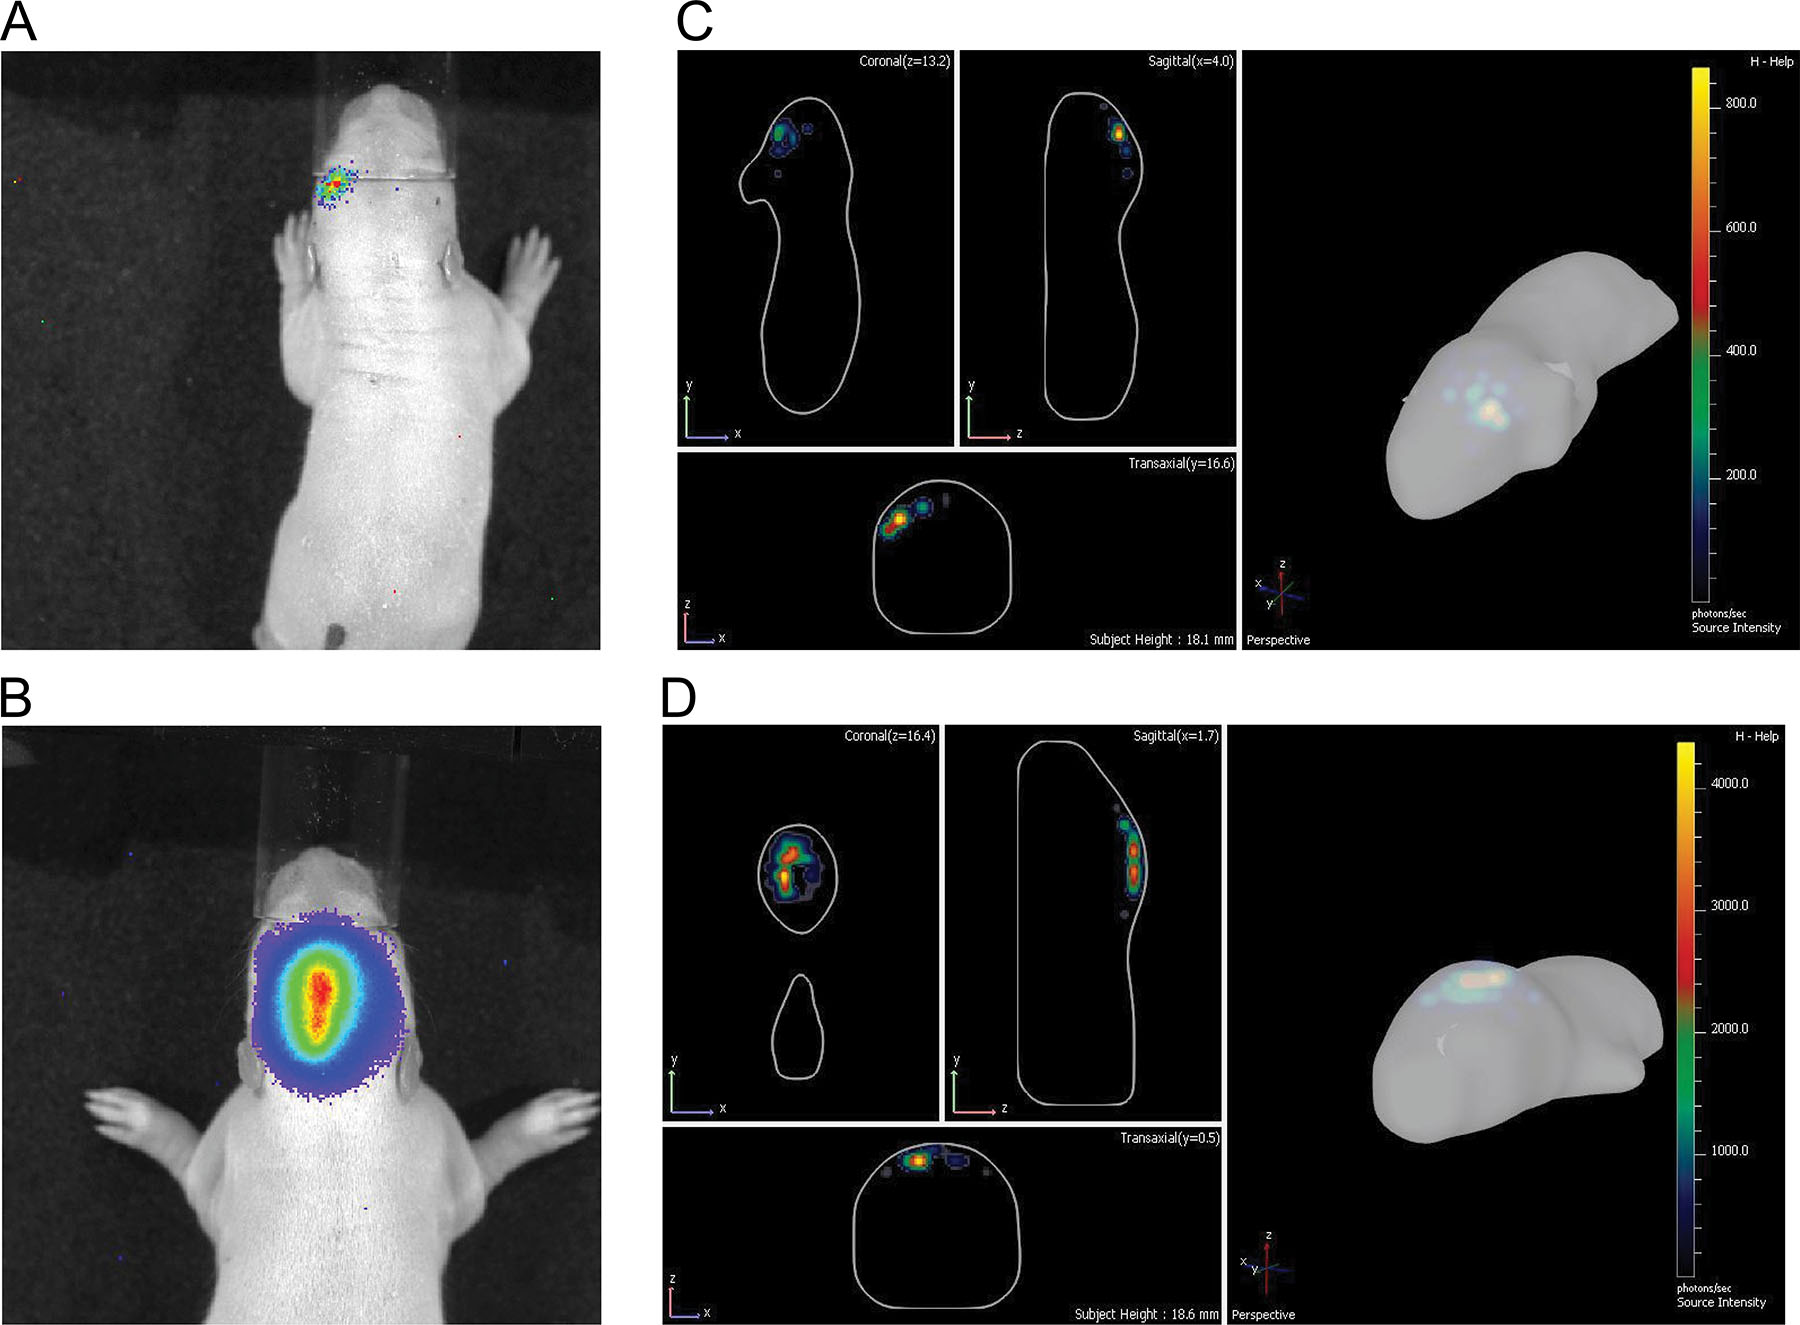
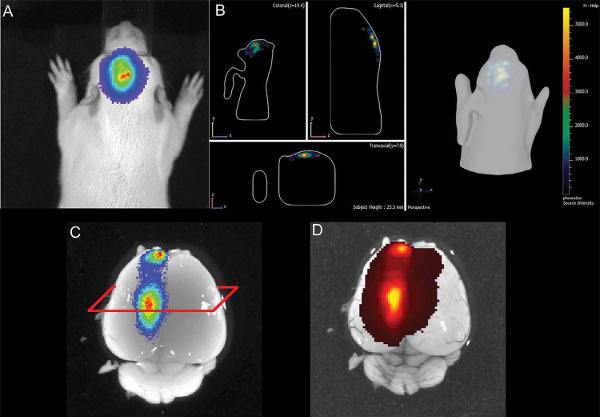
图6. P14大鼠幼崽E16海马电穿孔示意图 A) A) 生物发光的二维图像 B) 生物发光信号的三维示意图 C) 显示生物发光信号的解剖脑组织 D) 表达GFP表位荧光信号的大脑 单击此处查看大图.
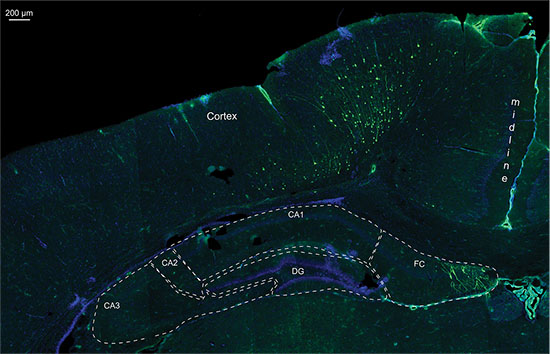
图 7. 来自同一大鼠P14脑组织20 μm冷冻切片的荧光图像细节,该组织通过电穿孔导入了含GFP的质粒和荧光素酶载体,并用DAPI对细胞核进行染色;CA1-3 = 阿蒙角1-3区;DG = 齿状回;FC = 灰色束。
视频 1. P14 大鼠海马电穿孔的 3D 动画。
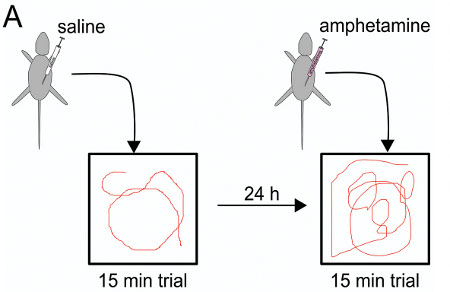
图8. 安非他明测试方案:第一天在15分钟试验前注射生理盐水,24小时后在开放旷场实验前注射安非他明。
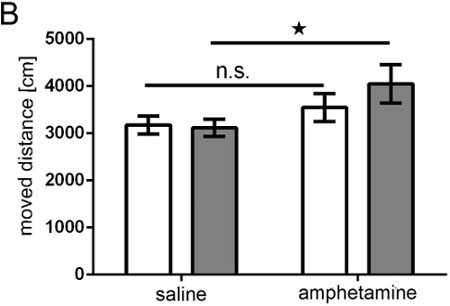
图9. 苯丙胺实验。通过TrueScan系统记录的动物在15分钟内移动距离(厘米)的柱状图。 白色柱 = 对照组;灰色柱 = DISC1过表达组;对照组 n = 10;DISC1过表达组 n = 11;ANOVA:基因型*处理 p = 0.043;总时间的t检验:盐水 vs 苯丙胺,n.s. = 无显著性,p对照 = 0.172,pDISC1 = 0.001。
讨论
本研究表明,宫内电转染(IUE)适用于在成年大鼠脑内特定区域产生表达外源基因的神经元,并且由于该干预措施,这些动物表现出行为学改变,提示所进行的操作具有功能效应。在本研究中,作为示例,前额叶皮层局部单侧过表达DISC1的大鼠对苯丙胺表现出高度敏感性(图9)。
通过筛选提高大鼠电穿孔实验成功率 体内 生物发光成像在控制IUE细胞转染固有变异性方面效果显著,并被用于建立具有均一IUE区域且个体间变异较小的实验分组,以供后续研究使用。
在本研究中,即使在同一时间、同一只新生动物体内,注射荧光素后可检测到共电穿孔导入的荧光素酶产生的生物发光信号(图6),且在六个月龄时大脑中仍存在表达GFP的神经元,我们仍无法通过检测共电穿孔导入的GFP所诱导的荧光来从仔鼠中筛选出成功电穿孔的个体。我们得出结论:在大鼠中,荧光素酶/荧光素反应非常适合用于区分电穿孔成功的大脑动物个体(图3)。
IUE 成功率的定量监测与生物发光信号的强度相关,该信号通过在相同曝光时间内检测光子计数来测量(图3),并对应于共表达的荧光素酶的酶活性。微弱的生物发光信号可通过100–200个光子计数检出;当辐射强度约为 ~1×10⁴ 光子/秒/cm2/球面度时,组织学结果显示在6月龄大鼠脑中存在1,000–2,000个GFP染色细胞。最强信号的辐射强度可达约 ~5×10⁶ 光子/秒/cm2/球面度,光子计数约为64,000。
在所使用的Sprague Dawley大鼠品系中,我们观察到随着年龄增长,生物发光信号在纵向观察中逐渐减弱,并在出生后第35天(P35)以上完全消失(图4)。目前尚不清楚信号消失的原因是由于荧光素酶的瞬时质粒载体表达水平下降,还是由于脑组织质量增加导致生物发光信号衰减,或两者共同作用所致。在当前针对成年大鼠的功能检测中,行为学研究的动物选择仅依据信号位置,而不考虑生物发光信号的强度。
尽管3D定量生物发光监测能够区分不同的电穿孔区域(图5),但对于位于脑组织深度方向的细胞,其准确性有限。 图6 显示了海马体电穿孔的一个示例,其中二维和三维图像中的生物发光测量结果表明电穿孔定位良好。在死后解剖获得的脑组织中,绿色荧光蛋白(GFP)荧光信号出现在与生物发光信号大致相同的位置,表明海马体被准确靶向。但组织学结果显示,海马体背侧皮层的细胞也被靶向(图7这表明,生物发光检测是一种用于识别阳性宫内电穿孔幼鼠以及初步判断电转区域的有效工具,但最终成像技术无法替代 死后 组织学以精确定位靶向阳性细胞。
我们的演示表明,IUE 技术在产生皮层或海马脑区的细微靶向操控方面具有应用前景,可用于模拟皮层迁移异常或其他可能影响成年动物的神经发育缺陷。虽然双侧电穿孔26对行为的影响可能更显著,但其胚胎死亡率也更高。因此选择单侧电穿孔,以便将两侧半球进行比较,其中一侧作为内部对照,同时也证明即使在单侧小范围区域内进行 IUE 操控,也足以引起行为改变。因此,IUE 可诱导神经元之间连接性或结构的改变,而无需引发病灶;且需根据具体科学问题,将拟通过 IUE 操控的脑区与相应的行为学测试相匹配。
问题排查
产仔数减少 关于提高宫内电转(IUE)幼鼠存活率,有以下几点建议:首先,电穿孔过程中建议使用非常细的玻璃毛细管,以尽量减少组织损伤。其次,不要对每个子宫角靠近阴道端的第一个胚胎进行电穿孔:第一个胚胎的死亡会增加其余所有胚胎流产的风险。第三,产后母鼠常因围产期应激而杀死部分仔鼠。为减少额外应激,不要在出生后立即开始活体成像,而应等待七天后再进行。
幼崽的GFP荧光检测
出生一周后,通过活体双目荧光显微成像或使用IVIS Spectrum进行荧光成像(包括落射荧光和透射荧光模式;GFP激发/发射波长分别为465/520 nm和500/540 nm),均未检测到荧光信号。这可能是由于短波长的激发光和发射光在穿透颅骨等组织时受到限制,同时皮肤具有较高的自发荧光背景,从而导致在大鼠体内上述条件下无法有效使用荧光成像。如图6所示,在活体动物中检测到的荧光素酶信号,也可在剥离颅骨后的离体脑组织中检测到,并且在此情况下亦可观察到荧光信号(图6D)。
邻近脑区生物发光的区分
即使在三维图像中,也无法百分之百准确预测生物发光区域的位置。位于预测区域上方或下方的细胞也可能被意外靶向并转染。确切的位置需通过死后(荧光)组织学分析来确认(见图7)。
披露
本研究的作者在本研究中无经济利益,且未接受任何行业赞助。开放获取费用由 PerkinElmer Inc. 在出版后提供。
致谢
作者感谢 Tracy Young-Pearse 和 Atsushi Kamiya 提供质粒。
本工作由NEURON-ERANET DISCover资助O.R.和C.K.(BMBF 01EW1003),德国研究基金会(DFG)资助C.K.(Ko 1679/3-1;GRK1033)以及资助M.A.S.S.(DE 792/2-4)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 试剂名称 | |||
| 杜尔贝科磷酸盐缓冲液(PBS) | Invitrogen | 14190-250 | 无钙,无镁 |
| D-荧光素钠盐 | SynChem OHG,德国 | BC218 | CAS号:103404-75-7,萤火虫荧光素酶底物 |
| 快绿 FCF | Sigma Aldrich,美国 | F7258-25G | CAS:2353-45-9 |
| D-苯丙胺 | Sigma Aldrich,美国 | A 5880 | CAS:51-63-8 |
| kodan Tinktur forte | Schülke Mayr GmbH,德国 | 104 005 | |
| 材料 / 产品 | |||
| 玻璃毛细管 | Sutter Instrument | 美国加利福尼亚州诺瓦托 | 硼硅酸盐玻璃,外径:1 mm,内径:0.78 mm |
| 针管拉制仪 | David Kopf Instruments | 美国加利福尼亚州图洪加 | |
| 镊子电极 | Nepa Gene CO., LTD. | Shioyaki, Ichikawa, Chiba, Japan | 直径7 mm的铂圆盘电极(CUY650P7) |
| 手术剪 - 锐利型 | Fine Science Tools | 德国海德堡 | 直型,12 cm(14002-12) |
| 环形镊 | Fine Science Tools | 德国海德堡 | 2.2 mm 内径,3 mm 外径(11021-12) |
| 方波脉冲电穿孔仪(CUY21SC) | Nepa Gene CO., LTD. | Shioyaki, Ichikawa, Chiba, Japan | (CUY21SC) |
| Vicryl 外科缝合材料 | Ethicon | 德国诺德施泰特 | 3-0;2 欧洲药典 |
| 伤口夹施加器 | Fine Science Tools | 德国海德堡 | Reflex 9 mm (12032-09) |
| 注射器滤器 | VWR | 德国达姆施塔特 | 0.45 μm 醋酸纤维素 |
| IVIS Spectrum | Caliper Life Science / PerkinElmer | 美国马萨诸塞州沃尔瑟姆 | |
| XGI-8 气体麻醉系统 | PerkinElmer | 马萨诸塞州沃尔瑟姆,美国 | |
| 开放场 | Coulbourn Instruments | 美国艾伦镇 | (40 × 40 × 39 厘米) |
| Tru Scan 活动系统 | Coulbourn Instruments | 美国艾伦镇 | |
| <表格 边框="1"> | |||
| 配方表 | |||
| 数量 | 缓冲液名称 | 内容 | 评论 |
| 1 | 用于DISC-1过表达的DNA混合物 | 1.5 μ克/μpCAX 人源 DISC-1 0.5 μ克/μpCAX-荧光素酶 10倍PBS(10%)快速绿染料(0.5%)加H₂O2O | 100 μ混合物的 l 量足以进行约 5 次 IUE |
| 2 | 对照用DNA混合物 | 0,75 μ克/μ阴性对照 shRNA1,0.75 μ克/μ阴性对照 shRNA2,0.5 μ克/μpCAX-荧光素酶,0.5 μ克/μpCAGGS-GFP 10x PBS(10%)快绿染料(0.5%)加H2O | 100 μ混合物的量足以进行约5次IUE |
| 3 | 快绿染料 | 10 mg/ml 快绿FCF溶于ddH₂O2O | |
| 4 | D-荧光素溶液 | 15 mg/ml D-荧光素钠盐(D-luciferin, sodium salt)溶于PBS | |
| 5 | 苯丙胺溶液 | 0.5 mg/ml D-苯丙胺溶于PBS | |
参考文献
- Saito, T., Nakatsuji, N. Efficient gene transfer into the embryonic mouse brain using in vivo electroporation. Developmental Biology. 240, 237-246 (2001).
- Fukuchi-Shimogori, T., Grove, E. A. Neocortex patterning by the secreted signaling molecule FGF8. Science. 294, 1071-1074 (2001).
- Walantus, W., Elias, L., Kriegstein, A. In Utero Intraventricular Injection and Electroporation of E16 Rat Embryos. J. Vis. Exp. (6), e236(2007).
- Rice, H., Suth, S., Cavanaugh, W., Bai, J., Young-Pearse, T. L. In utero Electroporation followed by Primary Neuronal Culture for Studying Gene Function in Subset of Cortical Neurons. J. Vis. Exp. (44), e2103(2010).
- Takahashi, M. Manipulating gene expressions by electroporation in the developing brain of mammalian embryos. Differentiation. 70, 155(2002).
- Tabata, H., Nakajima, K. Efficient in utero gene transfer system to the developing mouse brain using electroporation: visualization of neuronal migration in the developing cortex. Neuroscience. 103, 865-872 (2001).
- Nakahira, E., Yuasa, S. Neuronal generation, migration, and differentiation in the mouse hippocampal primoridium as revealed by enhanced green fluorescent protein gene transfer by means of in utero electroporation. J Comp Neurol. 483, 329-340 (2005).
- Young-Pearse, T. L., et al. A critical function for beta-amyloid precursor protein in neuronal migration revealed by in utero RNA interference. The Journal of Neuroscience : the Official Journal of the Society for Neuroscience. 27, 14459-14469 (2007).
- Niwa, M., et al. Knockdown of DISC1 by in utero gene transfer disturbs postnatal dopaminergic maturation in the frontal cortex and leads to adult behavioral deficits. Neuron. 65, 480-489 (2010).
- Sapir, T., et al. Accurate balance of the polarity kinase MARK2/Par-1 is required for proper cortical neuronal migration. The Journal of Neuroscience : the Official Journal of the Society for Neuroscience. 28, 5710-5720 (2008).
- Weinberger, D. R. From neuropathology to neurodevelopment. Lancet. 346, 552-557 (1995).
- Murray, R. M., Lewis, S. W. Is schizophrenia a neurodevelopmental disorder? British Medical Journal. 295, 681-682 (1987).
- Kamiya, A., et al. A schizophrenia-associated mutation of DISC1 perturbs cerebral cortex development. Nat Cell Biol. 7, 1167-1178 (2005).
- Miyoshi, K., et al. Disrupted-In-Schizophrenia 1, a candidate gene for schizophrenia, participates in neurite outgrowth. Mol Psychiatry. 8, 685-694 (2003).
- Mao, Y., et al. Disrupted in schizophrenia 1 regulates neuronal progenitor proliferation via modulation of GSK3beta/beta-catenin signaling. Cell. 136, 1017-1031 (2009).
- Millar, J. K., et al. Disruption of two novel genes by a translocation co-segregating with schizophrenia. Hum Mol Genet. 9, 1415-1423 (2000).
- Steinecke, A., Gampe, C., Valkova, C., Kaether, C., Bolz, J. Disrupted-in-Schizophrenia 1 (DISC1) is necessary for the correct migration of cortical interneurons. The Journal of Neuroscience : the Official Journal of the Society for Neuroscience. 32, 738-745 (2012).
- Niwa, M., et al. Knockdown of DISC1 by in utero gene transfer disturbs postnatal dopaminergic maturation in the frontal cortex and leads to adult behavioral deficits. Neuron. 65, 480-489 (2010).
- Taniguchi, Y., Young-Pearse, T., Sawa, A., Kamiya, A. In utero electroporation as a tool for genetic manipulation in vivo to study psychiatric disorders: from genes to circuits and behaviors. The Neuroscientist : a Review Journal Bringing Neurobiology, Neurology and Psychiatry 18. , 169-179 (2012).
- Bai, J., et al. RNAi reveals doublecortin is required for radial migration in rat neocortex. Nat Neurosci. 6, 1277-1283 (2003).
- Osumi, N., Inoue, T. Gene transfer into cultured mammalian embryos by electroporation. Methods. 24, 35-42 (2001).
- Momose, T., et al. Efficient targeting of gene expression in chick embryos by microelectroporation. Development, Growth & Differentiation. 41, 335-344 (1999).
- LoTurco, J., Manent, J. B., Sidiqi, F. New and improved tools for in utero electroporation studies of developing cerebral cortex. Cereb Cortex. 19, 120-125 (2009).
- Featherstone, R. E., Kapur, S., Fletcher, P. J. The amphetamine-induced sensitized state as a model of schizophrenia. Progress in Neuro-psychopharmacology & Biological Psychiatry. 31, 1556-1571 (2007).
- Pum, M., Carey, R. J., Huston, J. P., Muller, C. P. Dissociating effects of cocaine and d-amphetamine on dopamine and serotonin in the perirhinal, entorhinal, and prefrontal cortex of freely moving rats. Psychopharmacology. 193, 375-390 (2007).
- dal Maschio, M., et al. High-performance and site-directed in utero electroporation by a triple-electrode probe. Nature Communications. 3, 960(2012).
重印与许可
