我们提出了一种实验方案,用于 体外 外排泵的研究 铜绿假单胞菌该方案可在脂质体膜内产生一个稳定、可逆且可调节的质子梯度,因此应适用于任何由质子驱动力供能的膜蛋白。
本文内容
摘要
摘要
对于监测膜蛋白转运的可靠工具,目前正日益产生科学需求。本文介绍一种方法,可将革兰氏阴性细菌Pseudomonas aeruginosa的外排泵在仿生环境中重建,从而精确研究其转运活性。该方法满足三个先决条件:在脂质环境中实现区室化、采用与转运相关的有效指标,以及建立质子梯度。将膜蛋白转运体与细菌视紫红质共同重建入脂质体中,后者是一种光激活的质子泵,可生成稳定、可逆且可调控的质子梯度。通过使用对pH敏感的荧光探针吡喃素,检测脂质体内pH的变化,从而推断出蛋白的活性。我们详细描述了一步一步的操作流程,涵盖膜蛋白纯化、脂质体制备、蛋白重建以及转运分析。尽管这些方法最初是为RND转运体设计的,但其原则上也可适用于任何依赖质子梯度供能的其他膜蛋白转运体。
引言
整合膜蛋白占真核生物基因组中编码基因的30%左右。在所有活细胞中,这类蛋白具有关键功能,例如作为“守门人”发挥作用(受体)、转运营养物质、离子或有害化合物(转运蛋白),或维持跨膜双分子层的通透性(通道蛋白)1。外排泵在对抗抗生素治疗的耐药性中起核心作用2。在具有外膜保护的革兰氏阴性菌Pseudomonas aeruginosa中,外排转运蛋白以三组分系统形式存在,其中位于内膜的外排泵MexB与周质蛋白MexA以及外膜通道OprM协同作用。胞质内膜蛋白作为依赖能量的泵,具有广泛的底物特异性;外膜蛋白则发挥孔蛋白的功能,而第三个组分位于周质空间,被认为可稳定整个复合物3。下文将重点介绍MexA-MexB组装体功能性检测方法的设计。
过去5年中,由于解析了大肠杆菌(Escherichia coli)同源蛋白AcrB的X射线晶体结构,结构信息不断积累4-7。尽管将这些结构信息与动态和动力学数据相结合显然至关重要,但为该转运蛋白设计功能性检测方法仍面临巨大挑战8。事实上,膜蛋白必须维持在膜环境中,且必须保持封闭的区室结构,才能实现底物的定向转运。
膜蛋白在蛋白脂质体中的重组已被广泛报道和综述(参见 Rigaud 和 Levy)9)。此类方案可用于监测膜蛋白的活性,例如通过追踪底物在脂质体膜上的跨膜过程。然而,该方法的局限性在于可滴定底物(如荧光标记、放射性标记)的可获得性。 等等。此外,由于这些底物通常具有疏水性,无论是否存在转运蛋白,它们都倾向于穿过膜,这也给研究带来了困难。作为替代方法,可以通过检测对转运过程中发生的化学变化敏感的报告染料的光谱变化来追踪转运过程。如上所述,质子通过MexB驱动转运过程,因此,一种可行的方法是监测对pH敏感的报告染料的光谱变化,以反映由质子驱动的底物转运所引起的pH变化。选择荧光染料可避免因底物疏水性而产生的伪像效应。
另一个难点是质子梯度的生成。文献中可找到多种实验方案。其中,缬氨霉素技术被广泛使用,但我们已证明该方法操作繁琐10-11,且不可重复、不可逆。我们转而采用嗜盐菌红素(bacteriorhodopsin, BR),它是一种来自嗜盐盐杆菌(Halobacter salinarium)的光激活质子泵,该菌为一种嗜盐性海洋革兰氏阴性专性需氧古菌。该蛋白与MexB共同重组至脂质体中,在光照条件下,BR将质子泵入脂质体内,从而形成蛋白转运底物所必需的∆pH(内酸性)12-13。
方案
1. 蛋白质的生产与纯化
- MexA,MexB 来自 铜绿假单胞菌
- 将含有 MexA 和 MexB 基因的质粒转化至 E. coli 生产菌株(例如 C43 DE3)。在添加适当抗生素的LB琼脂培养基上划线培养。挑取单菌落接种于过夜(O/N)培养物中 预培养。次日早晨,将预培养物接种至1 在37 °C、振荡(240 rpm)条件下,在LB培养基中培养。
- 当细胞进入对数生长期(OD600 = 0.6-0.8 时,加入 1 mM IPTG 进行诱导。诱导持续 2-3 小时 在30 °C下振荡培养。
- 离心细胞(9,000 × g,20 分钟),重悬 在30 ml Tris-HCl 20 mM、pH 8、NaCl 150 mM中。
- 使用法国压(10,000 psi,通过4次)裂解细胞。在9,000 × g离心20分钟,弃去未破碎的细胞和包涵体。
- 在 100,000 × g 条件下离心沉淀膜成分 1 小时,将每份沉淀重悬于 30 ml 10 mM Bis-Tris(pH 7.4)、20%(w/v)甘油、10 mM 咪唑、500 mM NaCl 溶液中。
- 使用BCA比色法测定总膜蛋白浓度,并将膜在4℃过夜溶解 使用2%十二烷基麦芽糖苷(DDM),终体积根据使去垢剂与蛋白质比例为1:1.5(w/w)确定。
- 在100,000 × g条件下超速离心1小时,以去除未溶解及聚集的物质。
- 孵育上清液 在 4 °C 下孵育 2 小时,使用预先用 Bis-Tris 10 mM pH 7.4、甘油 5% (w/v)、咪唑 10 mM、NaCl 500 mM、DDM 0.2% 平衡的镍树脂(MexA 纯化)或钴树脂(MexB 纯化)。
- 将树脂倒入空柱中。收集流穿液。
- 用 50 ml 的 Bis-Tris 10 mM pH 7.4、甘油 20% (w/v)、咪唑 10 mM、NaCl 500 mM、DDM 0.2% 洗涤树脂,随后用 25 ml 的 Bis-Tris 10 mM pH 6、甘油 5% (w/v)、咪唑 10 mM、NaCl 500 mM、DDM 0.2% 洗涤。
- 用 20 ml Bis-Tris 10 mM pH 7.4、甘油 5% (w/v)、咪唑 300 mM、NaCl 500 mM、DDM 0.2% 的溶液洗脱蛋白质。
- 使用超滤装置将蛋白质浓缩至 3 ml,然后上样至经不含咪唑的缓冲液平衡的脱盐柱。在重组(见下文)之前,将溶解的蛋白质进行超速离心(100,000 × g,20 min),以去除脂质和未溶解的蛋白质。随后再次将蛋白质浓缩至 0.3 ml。
- 来自的细菌视紫红质 Halobacter salinarium
- 培养 Halobacter salinarium 在含有4 M NaCl和MgSO₄的液体培养基中,于37 °C光照条件下培养细胞10天4 150 mM,柠檬酸盐 10 毫摩尔/升,氯化钾 30 毫摩尔/升,酵母提取物 5 克/升,蛋白胨 5 克/升。
- 通过透析去离子水裂解细胞。
- 在30-40% (w/v) 蔗糖梯度中纯化紫色膜(100,000 × g,离心17小时)。
- 用2%的辛基葡萄糖苷在37 °C下溶解膜悬液24小时(溶解时的体积应使膜以2:1(w/w)的去垢剂:蛋白比例重新悬浮)。使用ε(570 nm)= 54,000 M⁻¹cm⁻¹测定溶解后细菌视紫红质(BR)的浓度。-1 cm-1在重悬前(见下文),将溶解的BR进行超速离心(100,000 × g,20分钟),以去除脂质和未溶解的蛋白质。
注意:天然膜中视紫红质(BR)天然富集,因此无需进一步纯化。
2. 蛋白脂质体的制备
- 脂质体形成:加入 400 μl 将溶解于氯仿中的DOPC(25 mg/ml)置于玻璃烧杯中,并加入1.5 mg以粉末形式储存的胆固醇。在操作前,用氮气流或真空干燥至少1 hr置于玻璃烧杯中。DOPC:胆固醇的摩尔比为3.3:1。
- 干燥后,用1 ml水合脂质 25 mM HEPES,pH 7,K2SO4 100 mM,MgCl2 2 mM,荧光黄 2 mM。此时悬浮液应呈浑浊状。
- 将溶液加热10分钟 在37 °C下进行。在室温下以40 W超声处理10分钟,采用30秒脉冲、30秒暂停的循环模式。此时悬浮液应呈现澄清状态。
- 为获得单一分散的脂质体群体,进行两轮挤出处理,每轮循环中至少将脂质体悬液通过滤膜11次。第一轮使用孔径为200 nm的膜 nm,第二个循环使用孔径为100 nm的膜。此步骤可进行动态光散射测量,以检测悬浮液的均一性。
- 蛋白质整合
原理:由于去垢剂的增溶作用,膜蛋白可在脂质体中重建。将经去垢剂增溶的脂质体与经去垢剂增溶的膜蛋白共同孵育,随后通过聚苯乙烯珠快速去除去垢剂,从而触发蛋白脂质体的形成9.- 加入28 mg Triton X-100(终浓度0.56%),4℃孵育过夜 在4 °C下(溶解温度可根据所研究的蛋白质进行调整)。
- 将去垢剂溶解的蛋白质(BR、MexB 和 MexA)加入溶解的脂质体中,孵育 15 分钟 在 4 °C 下,按以下比例将蛋白质加入到溶解的脂质体悬浮液中 (质量比):脂质/MexB = 20,MexB/MexA = 2.5,脂质/BR = 30。
- 以30:1的珠粒与去污剂质量比(w/w,按去污剂总质量计,包括随纯化蛋白加入的去污剂)加入聚苯乙烯微球,避光(因含BR)室温孵育5小时 在温和搅拌下进行。在进行此步骤前,先用甲醇和乙醇孵育活化生物珠,并用水充分洗涤。
- 使用已用含 25 mM HEPES(pH 7)、K 平衡的 PD-10 脱盐柱纯化蛋白脂质体蛋白及游离底物2SO4 100 mM 和 MgCl2 2 mM
- 将蛋白脂质体在18 °C避光保存,可存放2-3周。
- 蔗糖梯度中重组效率的评估
为验证 MexB 和 BR 是否均已成功重组至脂质体中,需对蛋白脂质体悬液进行不连续蔗糖梯度离心纯化。- 将蛋白脂质体轻柔地置于五层蔗糖梯度(60%、20%、10%、5% 和 2.5%,w/v)上。
- 在100,000 × g条件下超速离心17小时(加速度和减速度设为最低)。
- 仔细收集各梯度组分(尤其是蔗糖各层之间的界面部分),并使用考马斯亮蓝染色或蛋白质印迹法对样品进行10% SDS-PAGE分析。聚集的蛋白质位于离心管底部,而未被包埋的、去垢剂溶解的蛋白质位于离心管顶部。蛋白脂质体和脂质体位于与其内在密度相对应的蔗糖界面处。空脂质体在梯度中所处位置高于蛋白脂质体,回收位置更靠上。
3. 荧光测量
- 使用可进行双波长测量的荧光分光光度计(氙灯,150 W),在 25.0 °C 下进行荧光测定。交替进行光照期(以激发光激活 BR) / 发射波长为550 nm / 550 nm的荧光检测,以及激发/发射波长为455 nm / 509 nm、持续2秒的荧光测定 测量吡喃荧光。将激发和发射狭缝宽度均设为5 nm。在含有50 nM缬氨霉素的条件下进行测量,以防止反向膜电位ΔΨ的形成。
注意:事实上,由于细菌视紫红质(BR)泵送质子,脂质体内部的正电荷多于外部。该电荷梯度可通过缬氨霉素(valinomycin)消除,后者是一种钾离子载体。+ 选择性离子载体。将缬氨霉素加入脂质体悬浮液后,作为一种疏水性分子,它会插入脂质体膜中,被动转运 K+,从而消散膜电位ΔΨ。
结果
该实验通过监测随时间变化的吡喃荧光来检测质子梯度的生成。为此,样品交替接受光照(从而触发BR的质子泵作用)和荧光检测,荧光检测使用吡喃的激发和发射波长(λex = 455 nm 和 λem = 509 nm)。
图1 显示了在无 MexA/MexB 条件下通过该检测获得的代表性对照结果,证实了由细菌视紫红质(BR)产生的质子梯度是可逆的。经过一个酸化循环后,将蛋白脂质体置于暗处 45 分钟,使 BR 停止泵送质子(质子会沿着浓度梯度缓慢且被动地穿过脂双层)。经过这一恢复期后,只需再次照射同一悬液,即可重新激活 BR。
图2对应一次实际的转运测量结果。不含蛋白质的脂质体阴性对照显示,光照后pH值保持恒定,符合预期(图2A和2B,橙色圆圈)。然而,膜中含有BR的蛋白脂质体能够泵送质子,因此脂质体内部pH值下降,并形成稳定的质子梯度(图2A和图2B,紫色方块)。灰色三角形和红色菱形(图2A)分别代表含有BR和MexB的蛋白脂质体在存在或不存在Hoechst 33342时的内部pH值。我们观察到一种底物非依赖性的活性,其中MexB的反向转运仅部分消散了质子梯度。我们认为这一现象归因于MexB的本底活性。
为了检测 MexA 对 MexB 活性的影响,在重建体系中加入了 MexA,首先在无任何底物的情况下进行实验(图 2B,蓝色菱形)。同样,由细菌视紫红质(BR)产生的质子梯度仅被部分消散。实际的转运测量在完全相同的样品上进行。在此之前,必须重新建立质子梯度,并将底物加入悬浮液中,以使其到达蛋白中的结合位点。为此,将悬浮液在黑暗中与底物共同孵育 45 分钟。随后进行光照,可以观察到由 BR 产生的质子梯度现在被 MexAB 完全消散(图 2B,绿色三角形),这是由于泵介导的底物转运所致。
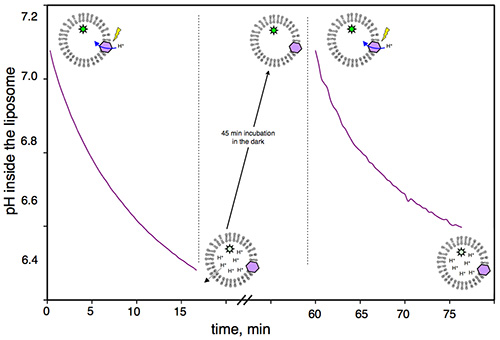
图1. 光激活BR构建的质子梯度的可逆性:随时间变化测得的BR蛋白脂质体的吡喃荧光。0–15分钟期间,BR因光照激活而泵送质子。15–60分钟期间,蛋白脂质体在黑暗中孵育;在此期间,质子被动地从脂质体中流出,直至囊内pH与囊外pH相等。60–75分钟期间,BR仍具功能,并在光照下重新泵送质子。
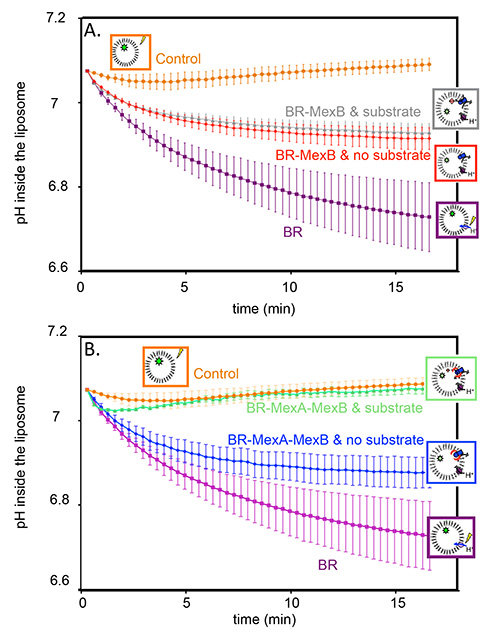
图 2. 转运实验:吡喃荧光信号转换为相应的 pH 值变化,随时间的变化关系。A) 对照脂质体内部的 pH 值(橙色圆圈);膜中含有 BR 的蛋白脂质体内部的 pH 值(紫色方块);膜中含有 BR 和 MexB 但不含 Hoechst 33342 的蛋白脂质体内部的 pH 值(红色菱形);膜中含有 BR 和 MexB 并添加 Hoechst 33342 的蛋白脂质体内部的 pH 值(灰色三角形)。B) 对照脂质体内部的 pH 值(橙色圆圈);膜中含有 BR 的蛋白脂质体内部的 pH 值(紫色方块);膜中含有 BR、MexB 和 MexA 但不含 Hoechst 33342 的蛋白脂质体内部的 pH 值(蓝色菱形);膜中含有 BR、MexB 和 MexA 并添加 Hoechst 33342 的蛋白脂质体内部的 pH 值(绿色三角形)。
讨论
我们描述了一种用于检测膜蛋白转运功能的重建方法。该蛋白重建方法一旦建立,即可获得高度可重复的测量结果。然而,不同蛋白的重建条件可能存在差异。在优化以下参数时需格外注意:i)蛋白纯化的质量(纯度及是否存在聚集物);ii)去污剂溶解步骤的效率(在可能的情况下,应优先选用临界胶束浓度(cmc)较低的去污剂,因其更容易去除);iii)去污剂的脱除(例如,可将聚苯乙烯珠与透析步骤结合使用,但这可能影响脱除速率,而脱除速率是影响蛋白后续活性的关键参数,参见参考文献[9]);iv)脂质重建(脂质的化学性质、脂质与蛋白的比例、以及是否存在其他两亲性分子,均为必须调整和优化的关键参数)。此外,温度和孵育时间会影响上述所有环节。
因此,在重建过程的每一步中,质量控制都至关重要。从这一角度来看,光散射是一种非常便捷的技术,因为它快速、无损,且仅需20 μl微摩尔浓度范围的样品。一旦蛋白脂质体形成,蔗糖梯度也是一种非常有用的工具,因为它为系统性验证重建效果提供了途径:既包括定性分析(蛋白质是否确实嵌入脂质体膜中),也包括定量分析(每个脂质体中含有多少蛋白质)。后者可通过精确测定蛋白质和脂质的浓度来实现。
我们的检测方法不依赖于底物自身的滴定,从而避免了因分子在膜中的疏水性分配而可能导致的非特异性被动扩散等复杂问题。该检测利用了吡喃荧光素(pyranine)作为可靠且定量的探针来监测pH变化的特性。我们的结果与另一种使用缬氨霉素(valinomycin)建立质子梯度的方法所得结果一致10,但本方法可形成更稳定且可重复的梯度11。此外,通过调节缓冲液浓度即可精确调控质子梯度(更多细节参见Verchere et al.12)。
在该实验过程中,首先在无底物条件下进行对照测量(由此可获得蛋白的被动活性)。随后在同一比色皿中加入底物,测定实际的膜蛋白转运活性。这一方法具有显著优势,因为该实验结果可明确归因于底物诱导的效应,结果清晰且无歧义。
由于光照样品会触发反应,该方案可适用于高-中通量(例如96孔检测)的自动化。自动化和平行化操作包括制备大量蛋白脂质体,并将其分装至96孔板中。随后加入底物(以及可能的抑制剂),在避光条件下孵育45分钟后,将96孔板置于酶标仪中进行光照/荧光素荧光检测循环。
有关该方案的更多详细信息,读者可参阅 Verchere et al.12,13
致谢
本研究由法国国家研究署(项目编号 ANR-2010-BLAN-1535)以及法兰西岛大区(DIM-Malinf 110058)资助项目提供支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DOPC(1,2-二油酰基-sn-甘油-3-磷脂酰胆碱) | Avanti Polar Lipids | 850375C | |
| 胆固醇 | Sigma Aldrich | C8667 | |
| Hoechst 33342 | Sigma Aldrich | B2261 | |
| 吐温 X-100 | Sigma Aldrich | 93427 | |
| 缬氨霉素 | Invitrogen | V-1644 | |
| 派若宁(8-羟基芘-1,3,6-三磺酸) | Invitrogen | H-348 | |
| DDM(正十二烷基-β-D-麦芽糖苷) | Affymetrix | D310LA | |
| 挤出器套装(挤出装置,Hamilton 气密性注射器) | Avanti Polar Lipids | 610000 | |
| Biobeads SM-2 吸附剂 | Bio-Rad | 152-3920 | |
| Econo-Pac 层析空柱 | Biorad | 732-1010 | |
| 脱盐柱 | Bio-Rad | 54805 | |
| 动态光散射仪 | Wyatt Technology | DynaPro NanoStar | |
| 荧光分光光度计 JASCO FP-6200 | JASCO | 6816-J002A |
参考文献
- Granseth, E., et al. Membrane protein structural biology - How far can the bugs take us? (Review). Molecular Membrane Biology. 24 (5-6), 329 (2007).
- Nikaido, H. Multidrug resistance in bacteria. Annu Rev Biochem. 78, 119 (2009).
- Pos, K. M. Drug transport mechanism of the AcrB efflux pump. Biochim Biophys Acta. 1794 (5), 782 (2009).
- Murakami, S., et al. Crystal structures of a multidrug transporter reveal a functionally rotating mechanism. Nature. 443 (7108), 173 (2006).
- Seeger, M. A. Structural Asymmetry of AcrB Trimer Suggests a Peristaltic Pump Mechanism. Science. 313 (5791), 1295 (2006).
- Sennhauser, G., Bukowska, M. A., Briand, C., Grutter, M. G. Crystal structure of the multidrug exporter MexB from Pseudomonas aeruginosa. J Mol Biol. 389 (1), 134(2009).
- Su, C. C., et al. Crystal structure of the CusBA heavy-metal efflux complex of Escherichia coli. Nature. 470 (7335), (2011).
- Nikaido, H., Takatsuka, Y. Mechanisms of RND multidrug efflux pumps. Biochim Biophys Acta. 1794 (5), 769 (2009).
- Rigaud, J. L., Levy, D. Reconstitution of membrane proteins into liposomes. Methods in enzymology. 372, 65 (2003).
- Aires, J. R., Nikaido, H. Aminoglycosides are captured from both periplasm and cytoplasm by the AcrD multidrug efflux transporter of Escherichia coli. J Bacteriol. 187 (6), 1923 (2005).
- Picard, M., Verchere, A., Broutin, I. Monitoring the active transport of efflux pumps after their reconstitution into proteoliposomes: caveats and keys. Anal Biochem. 420 (2), 194 (2012).
- Verchere, A., Dezi, M., Broutin, I., Picard, M. Basic Methods in Protein Purification and Analysis, edited by iConcept Press. , (2012).
- Verchere, A., Broutin, I., Picard, M. Photo-induced proton gradients for the in vitro investigation of bacterial efflux pumps. Sci Rep. 2, 306 (2012).
重印与许可
标签
