染色体涂染是研究细胞核结构和核型进化的一种有用方法。本文演示了一种从单条多线染色体中分离并扩增特定目标区域的方法,所获得的材料随后用于二维和三维荧光 原位 杂交(FISH)
本文内容
摘要
摘要
荧光 原位 杂交(FISH)使用整条染色体臂探针是一种用于定位基因组感兴趣区域、检测染色体重排以及研究细胞核内染色体三维(3D)结构的可靠技术。激光捕获显微切割(LCM)与全基因组扩增(WGA)技术的出现,使得从单个细胞中获取大量DNA成为可能。WGA试剂盒灵敏度的提升促使我们开发染色体涂染探针,并将其用于研究非模式生物中染色体的组织结构与进化。本文介绍一种从非洲疟蚊卵巢滋养细胞的单条多线染色体臂中分离并扩增常染色质区段的简便方法 Anopheles gambiae该方法为获得染色体涂染探针提供了一个高效的平台,同时降低了向样本引入外源DNA的整体风险。通过使用全基因组扩增(WGA),可进行多轮再扩增,从而获得足量DNA,用于包括二维和三维荧光原位杂交(FISH)在内的多种实验。我们证实,所开发的染色体涂染探针可成功用于建立多线染色体与有丝分裂染色体臂常染色质区域之间的对应关系 An. gambiae总体而言,激光显微切割与单染色体全基因组扩增技术的结合为未来细胞遗传学和基因组学研究提供了高效生成大量目标DNA的有效工具。
引言
染色体涂染是一种用于研究核型进化1-5以及通过荧光标记的染色体DNA杂交来可视化细胞遗传学异常的有效技术1,6-8。该方法还被应用于研究染色体区域在发育9和病理状态10中的三维动态。使用不同标记的染色体涂染探针,可对有丝分裂11,12、减数分裂13,14或间期非多线15,16以及多线9,11,17染色体进行个体可视化。一种简单且稳健的染色体涂染探针制备方案,将有助于将该技术扩展至蚊子等非模式生物。按蚊复合体(Anopheles gambiae complex)是一类形态上难以区分的七种蚊子,其行为与适应性各异,包括传播疟疾的能力。 这些蚊子是研究在媒介能力上存在显著差异的近缘物种进化的理想模型。 目前对疟蚊的大多数细胞遗传学研究均基于发育良好且高度多线化的染色体(综述见18,19)。多线染色体清晰可辨的带型使研究人员得以揭示Anopheles gambiae中多态性倒位与生态适应之间的关联20。此外,在An. macullipennis复合体中,已对多线染色体三维结构的组织特异21和物种特异22特征进行了表征。然而,对有丝分裂染色体的研究可提供额外的重要信息。例如,在An. gambiae中观察到有丝分裂染色体存在更高水平的异染色质多态性,并与交配活动减少和生育力下降相关23。仅通过比较多线染色体与有丝分裂染色体臂的相对长度,难以准确建立常染色质区段之间的对应关系。这是因为异染色质在有丝分裂染色体中占比较大,而在多线染色体中则代表性不足24。若能获得适用于疟蚊的染色体涂染探针,研究人员将可显著拓展细胞遗传学研究的范围,涵盖更多物种,同时大幅降低对这一类具有重要流行病学意义的昆虫进行核型进化及染色体三维动态分析所需的成本与时间。
为了获得大段的染色体序列,显微切割已成为操控和分离染色体组中特定目标区域的一项关键技术。 当与全基因组扩增(WGA)技术结合时,显微切割可有力支持后续多种应用,包括荧光原位杂交(FISH)11,12 和新一代基因组测序25-27。过去,该技术依赖于使用需由经验丰富的操作者手动控制的专用显微切割针28。 激光捕获显微切割(LCM)技术的进步提供了一种更简化的工具,更适合用于分离单个细胞29,30 或单条染色体31-33,并降低了污染风险。该方法使研究者能够分析单个细胞中发生的遗传异质性和染色体异常,而非多个细胞混合后所得到的共识性图谱34-36。已有多种方法被用于扩增显微切割所得的DNA。 DOP-PCR是一种适用于高度重复序列扩增的技术,已被用于扩增来自多种物种的显微切割染色体,包括蝗虫37、刺鳅38 和尼罗罗非鱼39。 近年来,基于PCR的GenomePlex WGA4单细胞试剂盒以及基于多重置换扩增(MDA)的Repli-G单细胞试剂盒,已成为对单个人类细胞及染色体进行遗传分析实验中的重要工具40-42,其中包括对蝗虫37 和蚱蜢 43 中B染色体系统的研究。这两种试剂盒各有优缺点,但其相较于其他现有扩增系统的明显优越性已得到证实44。
从单条染色体或染色体片段中可获得的DNA量远少于整个细胞核中的DNA量。因此,对单条染色体进行显微切割、扩增及后续分析的难度要大得多,尤其是在基因组较小的生物中,如果蝇(Drosophila)或按蚊(Anopheles)。 尽管已有研究从人类33和黄蜂45的单条显微切割染色体中制备出染色体涂染探针,但成功的荧光原位杂交(FISH)实验通常需要至少10–15条显微切割的果蝇有丝分裂染色体11。然而,实现单条染色体的显微切割与扩增具有重要意义:(i)可降低来自其他染色体材料污染的风险;(ii)减少显微切割所需的染色体制片数量;(iii)在后续的FISH和测序应用中,降低显微切割样本的核苷酸多态性和结构多态性。许多双翅目物种中存在的多线染色体为获取更高起始量的DNA提供了独特机会。此外,多线染色体还能提供比有丝分裂染色体更高的分辨率和更清晰的染色体结构。这种更高的分辨率对于观察染色体重排、染色质结构以及待显微切割的染色体片段至关重要28,46。
本文介绍了一种高效分离单条多线染色体臂中常染色质片段、扩增DNA并将其用于疟疾蚊子荧光原位杂交(FISH)下游应用的实验方法。 首先,我们采用激光显微切割(LCM)技术,从特殊制备的膜载玻片上分离并提取单条染色体臂;其次,利用全基因组扩增(WGA)对显微切割所得材料中的DNA进行扩增;最后,将扩增后的DNA用于FISH实验,靶向多线染色体压片47、中期和间期染色体玻片48,以及三维卵巢整体封片样本。该方法已成功实现对冈比亚按蚊(An. gambiae)染色体臂中大部分常染色质区域的特异性标记。
方案
1) 用于激光捕获显微切割的多线染色体玻片制备
- 解剖半 gravid 蚊虫 按蚊属 雌性个体在吸血后25小时。将约五只雌性个体的卵巢进行固定。 500 µl 于室温下用新鲜配制的改良卡诺氏液(100% 甲醇 : 冰醋酸,3:1)固定 24 小时。将卵巢转移至 -20 °C 用于长期保存。
- 制备卡诺氏液(100% 乙醇∶冰醋酸,3∶1)和 50% 丙酸,用于染色体玻片制备前的处理。
- 将一对卵巢置于蔡司1.0 PET膜载玻片上的一滴卡诺氏液中。根据卵巢大小,用解剖针在解剖显微镜下将其分割成约2–4段,转移至洁净载玻片上的一滴50%丙酸中。
- 在解剖体视显微镜下用纸巾分离卵泡并去除残留组织。向卵泡中加入一滴新的50%丙酸,室温下静置3–5分钟。
- 将硅化盖玻片置于液滴上,静置约1分钟。
- 用吸水材料覆盖载玻片(本方法使用滤纸),然后用铅笔的橡皮端反复轻敲盖玻片,施加较大的压力。
- 加热载玻片至 60 °C 在载玻片上使用变性/杂交系统处理15-20分钟,以帮助压平多线染色体。将载玻片放入湿润 chamber 中 4 °C 过夜,以使酸进一步展平染色体。
- 将载玻片置于冷的50%乙醇中10分钟。轻轻移除盖玻片,再放入冷的50%乙醇中继续孵育10分钟。
- 将切片依次在70%、90%、100%乙醇中脱水,每级5分钟。空气干燥切片。
- 将一片GURR缓冲液片剂加入1升蒸馏水中,配制GURR缓冲液溶液。经高压灭菌。
- 将1 ml吉姆萨染色液加入50 ml GURR缓冲液中,配制吉姆萨染液。
- 将风干的载玻片放入吉姆萨染液中染色10分钟,然后用1×PBS洗涤三次。再次在受控的无菌环境中风干载玻片,以避免污染。
2) 单条多线染色体臂的激光捕获显微切割
本部分详细介绍了随 PALM MicroBeam 激光显微切割系统提供的 PALMRobo 软件的使用方法。
- 用100%乙醇清洁显微镜。在紫外交联仪中用紫外光对手套和离心管进行灭菌。
- 启动 PALM MicroBeam 激光显微切割显微镜并打开激光。启动激光切割软件 PALMRobo,根据需要设置“功率”和“聚焦”参数。
- 寻找目标多线染色体臂。
- 使用“铅笔”工具勾画选定区域。
- 从菜单栏中打开“Elements 窗口”。
- 选择“绘制的元素”,并确保已选中“剪切”。
- 将粘附帽管安装到支架中,并置于载玻片上方,留出微小间隙 <1 mm 大小,然后启动激光切割。
- 将“弹射选择”置于切割位点内,边缘与染色体之间需留出一定空间。
- 从下拉选项中选择“LPC”,然后开始弹射。
- 单击“Eye”图标,确认样本已弹射至管盖内。
3) 从单条显微切割的多线染色体臂中纯化DNA
按照QIAamp DNA Micro试剂盒的说明书释放并纯化所收集的DNA。步骤3.1已修改以适配倒置的离心管。
- 向倒置的试管(管盖内部)中加入 15 µl ATL 缓冲液和 10 µl 蛋白酶 K,在 56 °C 下孵育 3 小时。
- 加入 25 µl ATL 缓冲液、50 µl AL 缓冲液和 1 µl 载体 RNA;混匀。再加入 50 µl 100% 乙醇;混匀。
- 将裂解液转移至 QIAamp 柱中,离心。加入 500 µl AW1 缓冲液洗涤,离心。将柱放入新的收集管中,加入 500 µl AW2 缓冲液,离心。将柱转移至另一新管中,离心以去除残留液体。
- 将柱放入一个 1.5 µl 微量离心管中,加入 20 µl 水进行洗脱;离心。
- 使用真空浓缩仪将新鲜洗脱的 DNA 浓缩至终体积 9 µl。
4) 从单条显微切割的多线染色体臂扩增 DNA
对单个染色体臂的全基因组扩增采用了两种不同的实验方案。
- 通过GenomePlex WGA进行DNA扩增和探针制备
- 按照GenomePlex单细胞WGA4试剂盒说明书操作,制备第一批扩增DNA:
- 将新配制的蛋白酶K溶液加入9 µl样本中;混匀。在50 °C孵育1小时,然后在99 °C加热4分钟。置于冰上保存。
- 加入2 µl 1X单细胞文库制备缓冲液和1 µl文库稳定化溶液;混匀。将样本在95 °C加热2分钟。在冰上冷却后离心。
- 加入1 µl文库制备酶;混匀并离心。按以下条件孵育:
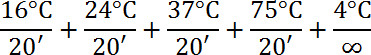
- 加入7.5 µl 10X扩增主混合液和48.5 µl水,再加入5.0 µl WGA DNA聚合酶;混匀并离心。
- 按以下条件进行热循环:
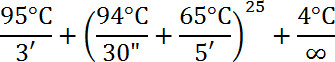
- 使用Genomic DNA Clean & Concentrator试剂盒纯化DNA。操作步骤如下:
- 加入5:1比例的DNA结合缓冲液与DNA样本(特别适用于小于2 kb的基因组DNA。若样本DNA大于2 kb,则使用2:1比例),混匀后转移至提供的离心柱中。离心。
- 加入200 µl DNA洗涤缓冲液并离心。重复洗涤步骤一次。然后加入50 µl水,将DNA洗脱至新的1.5 ml离心管中。
- 使用GenomePlex WGA3再扩增试剂盒对样本DNA进行再扩增,操作如下:
- 在PCR管中加入10 µl DNA(试剂盒建议总DNA量为10 ng),再加入49.5 µl水、7.5 µl 10x扩增主混合液、3.0 µl 10 mM dNTP混合液和5.0 µl WGA DNA聚合酶。混匀并离心。
- 使用以下程序进行反应:
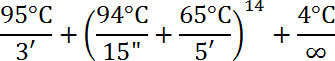
- 将DNA储存于-20 °C。
- 使用GenomePlex WGA3再扩增试剂盒对FISH用DNA进行标记,操作如下:
- 通过向PCR管中加入10 µl DNA、49.5 µl水、7.5 µl 10X扩增主混合液、3.0 µl 1 mM dNTP混合液(含1 mM dATP、dCTP、dGTP和0.3 µl 1 mM dTTP——若使用标记的dUTP)、1 µl 25 nM标记dUTP以及5.0 µl WGA DNA聚合酶,配制主混合液。
- 使用以下程序进行反应:
- 通过加入终反应体积1/10量的3 M乙酸钠(pH 5.2)(75 µl反应体系加7.5 µl)和2–3倍体积的100%乙醇,对标记探针进行乙醇沉淀。将DNA样本在-80 °C冷冻至少30分钟。
- 在4 °C下离心10分钟,形成标记沉淀物,弃去上清液并空气干燥沉淀。
- 按以下配方配制杂交缓冲液:
0.2 g 硫酸葡聚糖
1200 µl 去离子甲酰胺
580 µl H2O
120 µl 20X SSC - 向空气干燥的沉淀中加入40 µl杂交缓冲液。
- 按照GenomePlex单细胞WGA4试剂盒说明书操作,制备第一批扩增DNA:
- 通过REPLI-G单细胞WGA结合切刻平移法进行DNA扩增和探针制备
- 按照REPLI-g单细胞WGA试剂盒说明书操作,制备扩增DNA:
- 配制Buffer D2(3 µl 1 M DTT + 33 µl Buffer DLB)。
- 将4 µl纯化的显微切割材料与3 µl Buffer D2混合。轻弹管壁混匀。在65 °C孵育10分钟。加入3 µl终止液;混匀。
- 向样本中加入9 µl H2O、29 µl REPLI-g反应缓冲液和2 µl REPLI-g DNA聚合酶。在30 °C孵育8小时。通过在65 °C加热3分钟使DNA聚合酶失活。将DNA储存于-20 °C。
- 按照切刻平移法说明书对REPLI-g扩增的DNA进行标记:
- 配制以下标记混合液:
1 µg 扩增DNA
5 µl 10X DNA聚合酶缓冲液
5 µl 10X dNTP
5 µl 1X BSA
1 µl 1 mM 标记dNTP
4 µl 1 U/µl DNase I
1 µl 10 U/µl DNA聚合酶I
加H2O至50 µl - 在15 °C孵育2小时。加入2 µl 0.5 M EDTA终止反应。通过凝胶电泳检测DNA片段大小。
- 参照步骤4.1.4.3–4.1.4.6进行沉淀和溶解沉淀的操作。
- 配制以下标记混合液:
- 按照REPLI-g单细胞WGA试剂盒说明书操作,制备扩增DNA:
5) 聚带染色体和有丝分裂染色体压片标本上的二维荧光原位杂交
有关多线染色体压片和有丝分裂染色体玻片的FISH详细方案,请参见文献47和文献48。此处提供简要方案。
- 多线染色体压片的荧光原位杂交
- 将载玻片浸入1×PBS中,室温孵育20分钟。用含4%多聚甲醛的1×PBS固定载玻片,孵育1分钟。
- 通过乙醇梯度脱水:室温下依次使用50%、70%、90%、100%乙醇各洗涤5分钟。将玻片空气干燥。
- 在杂交缓冲液中预热探针 37 °C. 加入10-20 µl 将探针加至载玻片上,用22 × 22 mm盖玻片覆盖。用移液器吸头挤出任何气泡。
- 变性染色体和探针于 90 °C 10分钟。用橡胶胶水密封盖玻片边缘。将载玻片转移至湿盒中,在指定条件下孵育 39 °C 过夜。
- 用1X SSC缓冲液洗涤载玻片 39 °C 20分钟。在室温下用1×SSC洗涤载玻片20分钟。用1×PBS冲洗载玻片,然后加入含DAPI的Prolong抗荧光淬灭封片剂。加盖盖玻片,置于载玻片盒中保存于 4 °C 至少在观察前一小时。
- 有丝分裂染色体压片的荧光原位杂交
- 从4龄幼虫的成虫盘中提取有丝分裂染色体th 龄幼虫 An. gambiae.
- 制备适用于FISH的染色体玻片
- 加入2-3 µl 将标记的DNA探针加入杂交缓冲液中,用移液器轻轻混匀。
- 应用 10 µl 将探针混合物加到载玻片上,并用22 × 22 mm的盖玻片覆盖。用移液器吸头挤出任何气泡。
- 为复染和检测,将含DAPI的Prolong抗荧光淬灭剂滴加至样本上,避光孵育至少一小时后观察。
6) 卵巢组织全装片的三维荧光原位杂交(3D FISH)
- 配制以下缓冲液 A 混合液:
60 mM KCl
15 mM NaCl
0.5 mM 亚精胺(Spermidine)
0.15 mM 精胺(Spermine)
2 mM EDTA
0.5 mM EGTA
15 mM PIPES - 通过在载玻片上以指甲油绘制与盖玻片尺寸相匹配的方形图案,制备用于细胞核可视化的载玻片。此操作可形成一个隆起的表面,防止后续放置盖玻片时压碎细胞核。
- 从 Christopher’s 3 期雌性个体中解剖新鲜卵巢,并将其保存在含有 0.5% 数字宁(digitonin)的 150–250 µl 缓冲液 A 溶液中。使用较大的解剖针在装有含 0.5% 数字宁缓冲液 A 的离心管中反复划过卵泡,以破坏卵泡膜。
- 涡旋振荡 5–10 分钟以进一步破坏卵泡结构。刮下任何较大的卵泡碎片,并在最低转速(约 500 转/分钟(RPM))下离心 30 秒。将上清液转移至新的 2 ml 离心管中,加入 100 µl 缓冲液 A。重复步骤 6.3 共 5–7 次,直至可见组织被分解成细小颗粒。
- 将两个离心管均在 2,000 RPM 下离心 10 分钟,弃去上清液。注意:两个离心管都将用于最终的细胞核可视化载玻片制备。收集上清液的离心管应主要含有提取的细胞核,而原始含有组织的离心管则含有嵌在滋养细胞中的组织与细胞核混合物。 向两个管中各加入 200 µl 缓冲液 A – 0.1% Triton,并在 4 °C 下孵育过夜。在 10,000 RPM(10,621 × g)下离心 5 分钟,弃去上清液。
- 加入 200 µl 含 4% 多聚甲醛的 PBS 溶液。在恒温混匀仪中于 30 分钟内以 450 RPM 混合孵育。在 5,000 RPM(2,655 × g)下离心 5 分钟,弃去上清液。用含 0.1% Triton 的缓冲液 A 在恒温混匀仪中以 450 RPM 混合洗涤 5 分钟。再次在 5,000 RPM(2,655 × g)下离心 5 分钟,弃去上清液。
- 向离心管中加入预热至 37 °C 的标记探针。在恒温混匀仪中于 95 °C、450 RPM 条件下变性 10 分钟。继续在 80 °C 下保持 15 分钟并持续混合。随后在 37 °C 恒温混匀仪中以 450 RPM 混合过夜孵育。在 5,000 RPM(2,655 × g)下离心 5 分钟,弃去上清液。
- 用含 0.1% Triton 的缓冲液 A 洗涤 5 分钟,在 5,000 RPM(2,655 × g)下离心 5 分钟。重复此步骤两次。滴加含 DAPI 的 Prolong 抗荧光淬灭封片剂。
- 小心吸取细胞核/DAPI 溶液(避免产生气泡),滴加至载玻片上,加盖盖玻片。
结果
图1 描述了本文所述实验方案的整体流程。用户首先从膜片上显微解剖染色体DNA样本。显微解剖获得的材料被提取并纯化。纯化后的DNA随后进行扩增、再扩增、标记,然后用于荧光原位杂交(FISH)以标记染色体铺展样本。
激光显微切割(LCM)方案可分为三个主要步骤:1)寻找目标染色体并准备切割区域(图2A);2)通过激光切割并将目标染色体区域弹射出去(图2B);3)检查样本是否成功弹射至黏附帽中(图2C)。视频1展示了在An. gambiae Sua品系的多线染色体上进行LCM操作的全过程,详细介绍了从程序启动开始的每一步操作,包括重要的软件功能和操作提示。
本方案中使用的GenomePlex和REPLI-g单细胞全基因组扩增试剂盒在扩增产物大小和总体得率方面存在显著差异。图3展示了GenomePlex和REPLI-g试剂盒的凝胶电泳结果,以及通过Nanodrop对样品进行的定量分析。
已利用显微切割材料制备出靶向染色体常染色质区域的FISH探针。图4展示了由显微切割材料生成的五个探针在An. gambiae多线染色体上的FISH结果。使用WGA3试剂盒,通过三种荧光素对四条常染色体臂进行标记:3R染色体以绿色(荧光素)标记,3L染色体以红色(Cy-3)和黄色(Cy-5)混合标记,2R染色体为黄色(Cy-5),2L染色体为红色(Cy-3)。X染色体则在另一项实验中通过对REPLI-g材料进行缺口平移法标记为橙色(Cy-3)。为了建立多线染色体与有丝分裂染色体臂之间常染色质区域的对应关系,染色体涂染探针已杂交至An. gambiae的间期、前期、前中期和中期染色体(图5)。为观察细胞核内单条多线染色体臂的三维结构,对An. gambiae Sua品系卵巢滋养细胞进行了整体FISH实验(视频2)。在具有间期(图5D)和多线染色体(视频2)的细胞核中,可清晰观察到不同的染色体臂区域。
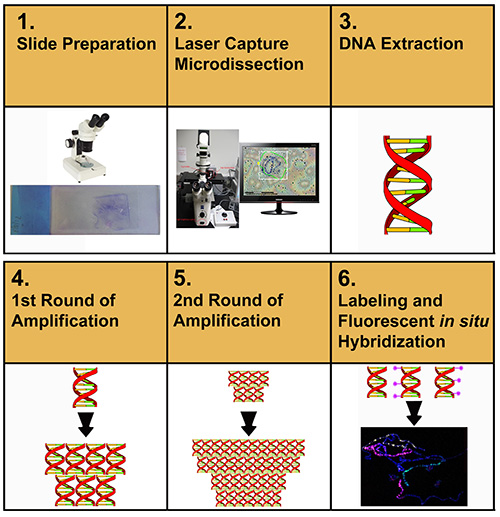
图1. 染色体涂染制备实验流程示意图。 点击此处查看大图。

图2. 染色体显微切割的主要步骤。A) 通过激光辅助在膜上切割目标染色体区域。B) 弹射完成后留有孔洞的膜。C) 带有染色体片段并附着于粘性帽上的弹射后膜片视图。箭头指示仍留在载玻片上的X染色体异染色质区域。星号标记的是另一条染色体残留在载玻片上的部分。点击此处查看高清图像。
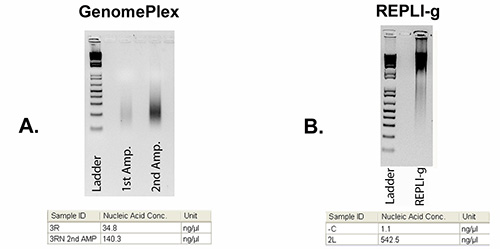
图3. 琼脂糖凝胶图像显示全基因组扩增(WGA)后的DNA。A) 使用WGA4和WGA3 GenomePlex试剂盒后,来自3R臂的低分子量(200-500 bp)DNA。B) 经REPLI-g扩增后,来自2L臂的高分子量(10-20 kb)DNA。左侧泳道显示100 bp DNA ladder。凝胶图像下方的表格显示通过Nanodrop测定的DNA浓度。点击此处查看高清图像。
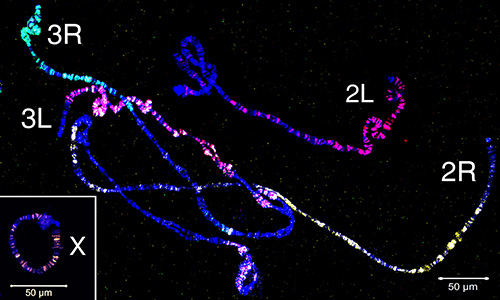
图4. 利用显微切割材料制备的四种探针对冈比亚按蚊(An. gambiae)卵巢滋养细胞中的多线染色体进行染色。X染色体通过REPLI-g材料的缺口平移法标记为橙色(Cy-3);2R臂标记为黄色(Cy-5);2L臂标记为红色(Cy-3);3R臂标记为绿色(荧光素);3L臂则用红色(Cy-3)与黄色(Cy-5)混合标记。常染色体使用WGA3扩增试剂盒进行标记。染色质用蓝色(DAPI)染色。染色体名称标注于端粒区域附近。点击此处查看高清图像。
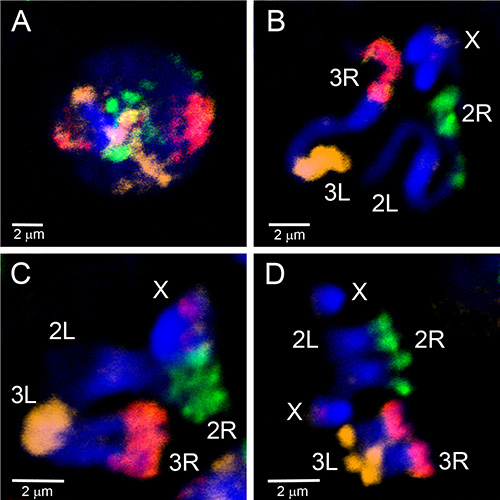
图5. 使用从冈比亚按蚊莫普提(An. gambiae Mopti)品系幼虫成虫盘细胞中显微切割材料经WGA3标记后制备的三种探针,对间期(A)、前期(B)、前中期(C)和中期(D)染色体进行染色。2R臂以绿色(荧光素)标记;2L臂未标记;3R臂呈粉红色,由红色(Cy-3)与橙色(Cy-5)混合而成;3L臂以橙色(Cy-5)标记。X染色体显示红色信号,对应18S rDNA探针。染色质用蓝色(DAPI)染色。染色较亮的染色体区域对应异染色质。点击此处查看高清图像
视频 1. 埃及按蚊(An. gambiae)多线染色体激光显微切割过程。点击此处查看视频 1。
视频 2. 在An. gambiae 卵巢滋养细胞上进行的整体三维 FISH 实验。探针用 Cy-3 标记(图中显示为蓝色),由显微切割的 2R 染色体臂制备而成。染色质经 DAPI 染色,并以青色伪彩(浅蓝色)显示。点击此处查看视频 2。
讨论
从显微切割的多线染色体样品中成功扩增DNA涉及多个关键步骤。本方案采用激光捕获显微切割技术(LCM),该方法通过避免物理工具与样品的直接接触,既提高了整体效率,又减少了外源DNA污染的风险。然而,外源DNA的扩增仍是本实验最大的潜在风险。因此,在整个操作过程中,必须始终确保样品免受污染。在载玻片制备和显微切割阶段,必须使用乙醇清洗解剖针、载玻片、盖玻片以及工作区域。 同时建议在使用前对所有适用的器械(如针具、载玻片、盖玻片)进行紫外线处理。
解剖载片上的膜使得染色体的铺展非常困难。 制作这些玻片时,应使用更多的卵巢组织(半对至一对完整的卵巢),以提高找到染色体分散良好细胞核的几率。 建议在制作切片时使用新鲜组织,因为随着组织老化,扩增效率似乎会下降 49 染色体铺展变得更加困难。 制备显微切割用载玻片是本实验方案中最耗时的步骤。 染色体必须充分分散,以避免意外获取不需要的物质。 吉姆萨染色可使用户在使用显微切割系统前,通过相差显微镜检查铺展样品的质量。
显微切割与扩增技术的结合使得研究人员能够提取并分析染色体片段,其大小范围可从特定的小片段区域到大部分染色体臂。 本实验方案允许用户从形态上可区分的区域(如倒位区、特定的常染色质带与间带、端粒区、着丝粒区以及中间异染色质)中获取DNA。用户可将所制备的染色体涂染探针用于分析异常染色体、研究特定基因座的种间同源性,或表征完整三维细胞核内染色体的空间构象。在构建染色体涂染探针时,我们选择常染色质区段,以避免重复序列DNA与多个染色体区域发生杂交。因此,无需使用总基因组DNA或C0t-1 DNA等竞争性DNA,即可获得染色体臂特异性的涂染效果。
我们选择使用GenomePlex WGA和REPLI-G试剂盒,是基于对多种扩增试剂盒效率和扩增失败率进行比较的文献综述40,44。 在扩增失败率(GenomePlex为12.5%,REPLI-g为37.5%)和扩增标记百分比(GenomePlex扩增率为45.24%,REPLI-g为30.0%)两个指标上,这两种试剂盒在现有方法中表现最佳40。 此外,GenomePlex试剂盒能够获得更高产量的DNA,因此更适用于多种下游技术。 GenomePlex系统还提供再扩增试剂盒,可用于对DNA进行进一步扩增。然而,必须注意的是,扩增过程并非完美无缺。 成功扩增仍有可能引入错误,或对目标DNA中的特定基因座存在偏好性偏差。还应充分考虑现有基因组扩增方法所产生的最终片段大小。 GenomePlex的片段化产生的文库片段长度范围为200–500 bp,而REPLI-g试剂盒产生的片段长度约为10–20 kb。本方案的预期下游应用为FISH,因此GenomePlex试剂盒是更合适的选择,因其可提供理想的片段大小,并可通过WGA直接对DNA片段进行标记。REPLI-g扩增产生的长DNA分子则必须在下游的缺口平移标记反应中进行片段化处理。
本方案已针对单条多线染色体臂成功扩增DNA进行了优化。 其他方案通常需要合并多个(一般为10–30个)染色体片段才能成功扩增样本7,11,28,40。 尽管使用本方法仍可合并多条染色体,但样本污染风险随之增加,因此强调实验应尽可能使用最少数量的染色体起始操作。若无法获得多线染色体,本方案亦可调整用于有丝分裂染色体。然而,为成功进行FISH检测,可能需要在扩增前合并10–15条有丝分裂染色体11。起始模板DNA量较高时,扩增偏差更低50。多线染色体可提供单条DNA序列约512个拷贝,以及两条同源DNA序列约1024个拷贝。 因此,合并有丝分裂染色体有助于提高扩增后DNA产物的整体质量。
该方法在细胞遗传学和基因组学研究中具有多种潜在应用。在此,我们利用染色体涂染技术建立了多线染色体与有丝分裂染色体臂的常染色质区段之间的对应关系 An. gambiae. 相同的探针可用于细胞遗传学特征分析 An. gambiae 细胞系。广泛的基因组重排和染色体数目的改变是细胞系的常见特征 51,52非整倍性、多倍性以及染色体结构重排(如易位、倒位、缺失和环状染色体)已在不同的蚊子细胞系中被检测到。 53,54经典细胞遗传学观察 55 物理作图 56 已证明在疟疾蚊子的进化过程中存在整臂染色体易位。因此,可将显微切割获得的材料与荧光原位杂交(FISH)实验结合,用于比较不同物种间染色体区域的同源性。我们成功在整体卵巢滋养细胞的多线染色体上,利用2R-染色探针进行了三维FISH实验。该方法将有助于追踪染色体轨迹并研究细胞核结构 按蚊属DNA分型技术 57,58下一代基因组测序 26,27物理图谱与连锁图谱构建,以及染色体涂染探针的制备 33,59 所有研究均可从特定染色体臂和区域的显微切割中受益。通过结合激光显微切割技术(LCM)和单细胞全基因组扩增(WGA)技术的进步,我们展示了一种高效且实用的方法,可从单条多线染色体臂获得适量的DNA。
披露
作者无任何利益冲突需要披露。
致谢
本研究由美国国立卫生研究院(National Institutes of Health)基金项目 1R21AI094289 资助,授予 Igor V. Sharakhov
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙酸 | Fisher Scientific | A491-212 | |
| 甲醇 | Fisher Scientific | A412-4 | |
| 丙酸 | Sigma-Aldrich | 402907 | |
| 膜片 1.0 PET | Zeiss | 415190-9051-000 | |
| 缓冲液片剂 “GURR” | Life Technologies | 10582-013 | |
| KaryoMAX 吉姆萨染色液 | Life Technologies | 10092-013 | |
| ThermoBrite 载片变性/杂交系统 | Abbott Molecular | 30-144110 | |
| Vacufuge 真空浓缩仪 | Eppendorf | 22820001 | |
| Spectroline 微处理器控制紫外交联仪 XL-1000 | Fisher Scientific | 11-992-89 | |
| Thermo Scientific NanoDrop | Fisher Scientific | ND-2000 | |
| REPLI-g 单细胞试剂盒 | Qiagen | 150343 | |
| GenomePlex 单细胞扩增试剂盒 (WGA4) | Sigma-Aldrich | WGA4-10RXN | |
| GenomePlex 全基因组再扩增试剂盒 (WGA3) | Sigma-Aldrich | WGA3-50RXN | |
| MZ6 Leica 体视显微镜 | Leica | VA-OM-E194-354 | 可使用其他体视显微镜 |
| Olympus CX41 相差显微镜 | Olympus | CX41RF-5 | 可使用其他相差显微镜 |
| PALM MicroBeam 激光显微切割显微镜 | Zeiss | ||
| Thermomixer | Eppendorf | 22670000 | |
| 10x PBS | Invitrogen | P5493 | |
| 50x Denhardt’s 溶液 | Sigma-Aldrich | D2532 | |
| 99% 甲酰胺 | Fisher Scientific | BP227500 | |
| 硫酸葡聚糖钠盐 | Sigma | D8906 | |
| 20x SSC 缓冲液 | Invitrogen | AM9765 | |
| 含 DAPI 的 ProLong Gold 抗荧光淬灭试剂 | Invitrogen | P-36931 | |
| dATP、dCTP、dGTP、dTTP | Fermentas | R0141, R0151, R0161, R0171 | |
| Cy3-dUTP、Cy5-dUTP | GE Healthcare | PA53022, PA55022 | |
| BSA | Sigma-Aldrich | A3294 | |
| DNA 聚合酶 I | Fermentas | EP0041 | |
| DNase I | Fermentas | EN0521 | |
| 精胺 | Sigma-Aldrich | S3256-1G | |
| 亚精胺 | Sigma-Aldrich | S0266-1G | |
| 氯化钾 (KCl) | Fisher Scientific | BP366-500 | |
| 氯化钠 (NaCl) | Fisher Scientific | BP3581 | |
| EGTA | Sigma-Aldrich | E0396-25G | |
| PIPES | Sigma-Aldrich | P6757-25G | |
| EDTA | Fisher Scientific | S311-500 | |
| 皂苷 | Sigma-Aldrich | D141-100MG | |
| Triton-X100 | Fisher Scientific | BP151-100 | |
| AdhesiveCap 500 透明盖片 | Zeiss | 415190-9211-000 | |
| QIAamp DNA Micro 试剂盒 (50) | Qiagen | 56304 | |
| 基因组 DNA 纯化与浓缩试剂盒 | Zymo Research | D4010 | |
| 37% 多聚甲醛 | Fisher Scientific | F79-500 |
参考文献
- Ried, T., Schrock, E., Ning, Y., Wienberg, J. Chromosome painting: a useful art. Human molecular genetics 7. , 1619-1626 (1998).
- Yang, F., et al. Reciprocal chromosome painting illuminates the history of genome evolution of the domestic cat, dog and human. Chromosome Res. 8, 393-404 (2000).
- Badenhorst, D., Dobigny, G., Robinson, T. J. Karyotypic evolution of hapalomys inferred from chromosome painting: a detailed characterization contributing new insights into the ancestral murinae karyotype. Cytogenet Genome Res 136. , 83-88 (2012).
- Trifonov, V. A., et al. Chromosomal evolution in Gekkonidae. I. Chromosome painting between Gekko and Hemidactylus species reveals phylogenetic relationships within the group. Chromosome Res. 19, 843-855 (2011).
- Nie, W., et al. Chromosomal rearrangements and karyotype evolution in carnivores revealed by chromosome painting. Heredity (Edinb. , 108-1017 (2012).
- Guan, X. Y., et al. Detection of chromosome 6 abnormalities in melanoma cell lines by chromosome arm painting probes). Cancer Genet Cytogenet. 107, 89-92 (1998).
- Guan, X. Y., et al. Characterization of a complex chromosome rearrangement involving 6q in a melanoma cell line by chromosome microdissection. Cancer genetics and cytogenetics 134. , 65-70 (2002).
- Breen, M., et al. Detection of equine X chromosome abnormalities in equids using a horse X whole chromosome paint probe (WCPP). Vet J. 153, 235-238 (1997).
- Kokhanenko, A. A., Anan'ina, T. V., Stegniy, V. N. The changes in chromosome 6 spatial organization during chromatin polytenization in the Calliphora erythrocephala Mg. (Diptera: Calliphoridae) nurse cells. Protoplasma 250. , 141-149 (2013).
- Timme, S., et al. Nuclear position and shape deformation of chromosome 8 territories in pancreatic ductal adenocarcinoma. Anal Cell Pathol (Amst. 34, 21-33 (2011).
- Drosopoulou, E., et al. Sex chromosomes and associated rDNA form a heterochromatic network in the polytene nuclei of Bactrocera oleae (Diptera: Tephritidae). Genetica. 140, 169-180 (2012).
- Pazian, M. F., Shimabukuro-Dias, C. K., Pansonato-Alves, J. C., Oliveira, C., Foresti, F. Chromosome painting of Z and W sex chromosomes in Characidium (Characiformes). Crenuchidae). Genetica. 141, 1-9 (2013).
- Howe, E. S., Murphy, S. P., Bass, H. W. Three-dimensional acrylamide fluorescence in situ hybridization for plant cells. Methods Mol Biol 990. , 53-66 (2013).
- Lysak, M. A., Mandakova, T. Analysis of plant meiotic chromosomes by chromosome painting. Methods Mol Biol 990. , 13-24 (2013).
- Ji, Z., Zhang, L. Chromosomics: detection of numerical and structural alterations in all 24 human chromosomes simultaneously using a novel OctoChrome FISH assay. J Vis Exp. 10, (2012).
- Idziak, D., et al. Painting the chromosomes of Brachypodium: current status and future prospects. Chromosoma. 120, 469-479 (2011).
- Fuchs, J., Kuhfittig, S., Reuter, G., Schubert, I. Chromosome painting in Drosophila. Chromosome Res. 6, 335-336 (1998).
- Zhimulev, I. F. Morphology and structure of polytene chromosomes. 34, Academic Press. 1-490 (1996).
- Sharakhov, I. V., Sharakhova, M. V. in Chromosome Mapping Research Developments eds. J.F. Verrity & L.E. Abbington) (Nova Science. , Publishers, Inc. (2008).
- Coluzzi, M., Sabatini, A., Torre, della, Di Deco, A., A, M., Petrarca, V. A polytene chromosome analysis of the Anopheles gambiae species complex). Science. 298, 1415-1418 (2002).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malaria mosquitoes. Genetika. 23, 821-827 (1987).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malarial mosquitoes. II. Species specificity in the pattern of chromosome relations with the nuclear envelope of nutrient ovarian cells. Genetika. 23, 1194-1199 (1987).
- Bonaccorsi, S., Santini, G., Gatti, M., Pimpinelli, S., Colluzzi, M. Intraspecific polymorphism of sex chromosome heterochromatin in two species of the Anopheles gambiae complex. Chromosoma. 76, 57-64 (1980).
- Zhimulev, I. F. Polytene chromosomes, heterochromatin, and position effect variegation. Adv Genet. 37, 1-566 (1998).
- Seifertova, E., et al. Efficient high-throughput sequencing of a laser microdissected chromosome arm. BMC Genomics. 14, 1471-2164 (2013).
- Weise, A., et al. High-throughput sequencing of microdissected chromosomal regions. European journal of human genetics. EJHG. 18, 457-462 (2010).
- Murphy, S. J., et al. Mate pair sequencing of whole-genome-amplified DNA following laser capture microdissection of prostate cancer. DNA research : an international journal for rapid publication of reports on genes and genomes 19. , 395-406 (2012).
- Moshkin, Y. M., et al. Microdissection and sequence analysis of pericentric heterochromatin from the Drosophila melanogastermutant Suppressor of Underreplication. Chromosoma. 111, 114-125 (2002).
- Decarlo, K., Emley, A., Dadzie, O. E., Laser Mahalingam, M. capture microdissection: methods and applications. Methods Mol Biol 755. , 1-15 (2011).
- Iyer, E. P., Cox, D. N. Laser capture microdissection of Drosophila peripheral neurons. J Vis Exp. 10, (2010).
- Kubickova, S., Cernohorska, H., Musilova, P., Rubes, J. The use of laser microdissection for the preparation of chromosome-specific painting probes in farm animals. Chromosome Res. 10, 571-577 (2002).
- Fukova, I., et al. Probing the W chromosome of the codling moth, Cydia pomonella, with sequences from microdissected sex chromatin. Chromosoma. 116, 135-145 (2007).
- Thalhammer, S., Langer, S., Speicher, M. R., Heckl, W. M., Geigl, J. B. Generation of chromosome painting probes from single chromosomes by laser microdissection and linker-adaptor PCR. Chromosome Res. 12, 337-343 (2004).
- Sims, C. E., Allbritton, N. L. Analysis of single mammalian cells on-chip. Lab on a chip 7. , 423-440 (2007).
- Hutchison, C. A., 3rd,, Venter, J. C. Single-cell genomics. Nature biotechnology. 24, 657-658 (2006).
- Lasken, R. S., Egholm, M. Whole genome amplification: abundant supplies of DNA from precious samples or clinical specimens. Trends in biotechnology 21. , 531-535 (1016).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in the grasshopper Eyprepocnemis plorans. Cytogenet Genome Res. 125, 286-291 (2009).
- Liu, J. D., et al. Sex chromosomes in the spiny eel (Mastacembelus aculeatus) revealed by mitotic and meiotic analysis. Cytogenet Genome Res. 98, 291-297 (2002).
- Harvey, S. C., et al. Molecular-cytogenetic analysis reveals sequence differences between the sex chromosomes of Oreochromis niloticus: evidence for an early stage of sex-chromosome differentiation. Cytogenet Genome Res. 97, 76-80 (2002).
- Hockner, M., Erdel, M., Spreiz, A., Utermann, G., Kotzot, D. Whole genome amplification from microdissected chromosomes. Cytogenet Genome Res. 125, 98-102 (2009).
- Kitada, K., Taima, A., Ogasawara, K., Metsugi, S., Aikawa, S. Chromosome-specific segmentation revealed by structural analysis of individually isolated chromosomes. Genes Chromosomes Cancer. 50, 217-227 (2011).
- Ma, L., et al. Direct determination of molecular haplotypes by chromosome microdissection. Nature methods. 7, 299-301 (2010).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in Locusta migratoria. Chromosome Res. 17, 11-18 (2009).
- Treff, N. R., Su, J., Tao, X., Northrop, L. E., Scott, R. T. Single-cell whole-genome amplification technique impacts the accuracy of SNP microarray-based genotyping and copy number analyses. Molecular human reproduction 17. , 335-343 (2011).
- Rutten, K. B., et al. Chromosomal anchoring of linkage groups and identification of wing size QTL using markers and FISH probes derived from microdissected chromosomes. in Nasonia(Pteromalidae : Hymenoptera). Cytogenetic and Genome Research 105. , 126-133 (2004).
- Post, R. J., Kruger, A., Somiari, S. B. Laser-assisted microdissection of polytene chromosomes from Diptera for the development of molecular markers. Molecular Ecology Notes. 6, 634-637 (2006).
- George, P., Sharakhova, M. V., Sharakhov, I. V. High-throughput physical mapping of chromosomes using automated in situ hybridization. Journal of visualized experiments : JoVE. 10, (2012).
- Timoshevskiy, V. A., Sharma, A., Sharakhov, I. V., Sharakhova, M. V. Fluorescent in situ Hybridization on Mitotic Chromosomes of Mosquitoes. J Vis Exp. 10, (2012).
- Frumkin, D., et al. Amplification of multiple genomic loci from single cells isolated by laser micro-dissection of tissues. BMC biotechnology. 8, 10-1186 (2008).
- Raghunathan, A., et al. Genomic DNA amplification from a single bacterium. Applied and environmental microbiology 71. , 3342-3347 (2005).
- Cassio, D. Long term culture of MDCK strains alters chromosome content. BMC Res Notes. 6, 162-1610 (2013).
- Landry, J. J., et al. The Genomic and Transcriptomic Landscape of a HeLa Cell Line. G3. , Bethesda. (1534).
- Steiniger, G. E., Mukherjee, A. B. Insect chromosome banding: technique for G- and Q-banding pattern in the mosquito Aedes albopictus. Can J Genet Cytol. 17, 241-244 (1975).
- Brown, S. E., et al. Toward a physical map of Aedes aegypti. Insect Mol Biol. 4, 161-167 (1995).
- Green, C., Hunt, R. Interpretation of variation in ovarian polytene chromosomes of Anopheles funestus Giles. A. parensis Gillies, and A. aruni? Genetica. 51, 187-195 (1980).
- Sharakhova, M. V., Xia, A., Leman, S. C., Sharakhov, I. V. Arm-specific dynamics of chromosome evolution in malaria mosquitoes. BMC evolutionary biology. 11, 10-1186 (2011).
- Gu, L. H., et al. DNA genotyping of oral epithelial cells by laser capture microdissection]. Fa yi xue za zhi 22. , 196-197 (2006).
- Rook, M. S., Delach, S. M., Deyneko, G., Worlock, A., Wolfe, J. L. Whole genome amplification of DNA from laser capture-microdissected tissue for high-throughput single nucleotide polymorphism and short tandem repeat genotyping. The American journal of pathology 164. , 23-33 (2004).
- Houen, A., Field, B. L., Saunders, V. A. Microdissection and chromosome painting of plant B chromosomes. Methods in cell science : an official journal of the Society for In. Vitro Biology. 23, 115-124 (2001).
重印与许可
